研究论文

D-天冬氨酸对溃疡性结肠炎小鼠肠道细胞坏死关键信号分子及肠道微生物组成的影响

  • 黄乐 , 1, 2 ,
  • 何羿文 1, 3 ,
  • 刘思危 1, 3 ,
  • 王晨昱 1, 3 ,
  • 陈铭哲 3 ,
  • 范高升 3 ,
  • 冯舒锾 3 ,
  • 印遇龙 , 1, 2, 3, * ,
  • 李铁军 1, 2 ,
  • 何流琴 , 1, 3, *
展开
  • 1 中国科学院亚热带农业生态研究所,畜禽养殖污染控制与资源化技术国家工程实验室,动物营养生理与代谢过程湖南省重点实验室,长沙 410125
  • 2 中国科学院大学现代农业科学学院,北京 100049
  • 3 湖南师范大学生命科学学院,动物肠道功能与调控湖南省重点实验室,长沙 410081
*印遇龙,院士,博士生导师,E-mail: ;
何流琴,教授,博士生导师,E-mail:

黄 乐(2000—),女,湖南桃源人,博士研究生,研究方向为动物生态营养与环境。E-mail:

Copy editor: 武海龙

收稿日期: 2024-04-10

  网络出版日期: 2024-10-14

基金资助

广西省自然科学面上项目(2022JJA130333)

国家自然科学基金(32172755)

国家自然科学基金(3210099)

国家自然科学区域创新联合基金重点支持项目(U23A20233)

湖南省科技创新领军人才项目(2023RC1054)

湖南省重点研发项目(2022NK2023)

Effects of D-Aspartate on Key Signaling Molecules for Intestinal Cell Necrosis and Intestinal Microbiota Composition of Ulcerative Colitis Mice

  • HUANG Le , 1, 2 ,
  • HE Yiwen 1, 3 ,
  • LIU Siwei 1, 3 ,
  • WANG Chenyu 1, 3 ,
  • CHEN Mingzhe 3 ,
  • FAN Gaosheng 3 ,
  • FENG Shuhuan 3 ,
  • YIN Yulong , 1, 2, 3, * ,
  • LI Tiejun 1, 2 ,
  • HE Liuqin , 1, 3, *
Expand
  • 1 Hunan Provincial Key Laboratory of Animal Nutritional Physiology and Metabolic Process, National Engineering Laboratory for Pollution Control and Waste Utilization in Livestock and Poultry Production, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 College of Advanced Agricultural Sciences, University of Chinese Academy of Science, Beijing 100049, China
  • 3 Hunan Provincial Key Laboratory of Animal Intestinal Function and Regulation, College of Life Sciences, Hunan Normal University, Changsha 410081, China
*YIN Yulong, academician, E-mail: ;
HE Liuqin, professor, E-mail:

Received date: 2024-04-10

  Online published: 2024-10-14

摘要

本试验旨在探讨D-天冬氨酸(D-Asp)对葡聚糖硫酸钠(DSS)诱导的溃疡性结肠炎(UC)小鼠肠道细胞坏死关键信号分子及肠道微生物组成的影响。试验选取40只C57BL/6J雄性小鼠,初始体重为(20.98±0.14) g,随机分为5组:对照组(CON组)、葡聚糖硫酸钠组(DSS组)、低浓度D-天冬氨酸组(L-Dasp组)、中浓度D-天冬氨酸组(M-Dasp组)、高浓度D-天冬氨酸组(H-Dasp组)。每组8个重复,每个重复1只小鼠。试验前7 d,CON组小鼠饮用蒸馏水,其他各组小鼠饮用含3.5% DSS的蒸馏水;从第8天开始,CON组和DSS组小鼠直肠灌注100 μL生理盐水,L-Dasp组、M-Dasp组和H-Dasp组直肠灌注100 μL浓度分别为0.15、2.30和7.70 mmol/L的D-Asp溶液,每隔1 d灌注1次,共灌注5次。结果表明:1)与CON组相比,DSS组结肠细胞凋亡率显著升高(P<0.05),线粒体出现明显肿胀,呈空泡状,且数量减少(P>0.05)。与DSS组相比,L-Dasp、M-Dasp和H-Dasp组的结肠细胞凋亡率均显著降低(P<0.05),结肠细胞线粒体数量均显著升高(P<0.05)。2)与CON组相比,DSS组的结肠Toll样受体4(TLR4)和白细胞介素-1β(IL-1β)mRNA相对表达量显著升高(P<0.05);与DSS组相比,M-Dasp组的结肠TLR4 mRNA相对表达量显著降低(P<0.05)。各组之间结肠白细胞介素-1α(IL-1α)、白细胞介素-6(IL-6)和肿瘤坏死因子-α(TNF-α)含量无显著差异(P>0.05)。3)与CON组相比,DSS组的结肠受体相互作用蛋白激酶1(RIPK1)蛋白相对表达量显著升高(P<0.05);与DSS组相比,L-Dasp、M-Dasp和H-Dasp组的结肠RIPK1蛋白相对表达量显著降低(P<0.05),H-Dasp组的结肠受体相互作用蛋白激酶3(RIPK3)蛋白相对表达量显著降低(P<0.05)。4)与CON组相比,DSS组的结肠放线菌门(Actinobacteria)相对丰度显著升高(P<0.05);与DSS组相比,L-Dasp组、M-Dasp组和H-Dasp组的结肠放线菌门相对丰度显著降低(P<0.05)。与CON组相比,DSS组的结肠另枝菌属(Alistipes)相对丰度显著降低(P<0.05),结肠芽孢杆菌属(Bacillus)和糖多孢菌属(Saccharopolyspora)相对丰度显著升高(P<0.05);与DSS组相比,L-Dasp组、M-Dasp组和H-Dasp组的结肠芽孢杆菌属和糖多孢菌属相对丰度显著降低(P<0.05)。综上所述,D-Asp可通过调控受体相互作用蛋白信号通路表达和肠道微生物组成来减少UC小鼠细胞凋亡,改善线粒体形态和提高免疫力。

本文引用格式

黄乐 , 何羿文 , 刘思危 , 王晨昱 , 陈铭哲 , 范高升 , 冯舒锾 , 印遇龙 , 李铁军 , 何流琴 . D-天冬氨酸对溃疡性结肠炎小鼠肠道细胞坏死关键信号分子及肠道微生物组成的影响[J]. 动物营养学报, 2024 , 36(10) : 6710 -6722 . DOI: 10.12418/CJAN2024.571

Abstract

This study aimed to investigate the effects of D-aspartate (D-Asp) on the key signal molecules for intestinal cell necrosis and intestinal microbiota composition of ulcerative colitis (UC) mice induced by dextran sodium sulfate (DSS). Forty C57BL/6J male mice with similar body weight of (20.98±0.14) g were randomly selected and divided into 5 groups: control group (CON group), dextran sodium sulfate group (DSS group), low concentration D-Asp group (L-Dasp group), medium concentration D-Asp group (M-Dasp group) and high concentration D-Asp group (H-Dasp group). Each group included 8 replicates with 1 mouse in each replicate. Seven days before the experiment, mice in the CON group were given distilled water, while mice in other groups were given distilled water containing 3.5% DSS. From day 8, mice in CON and DSS groups were rectal perfused with 100 μL of saline, while mice in L-Dasp, M-Dasp and H-Dasp groups were rectal perfused with solution containing 0.15, 2.30 and 7.70 mmol/L D-Asp, respectively, perfused once every other day, and 5 times of perfusion were performed. The results showed as follows: 1) compared with the CON group, the apoptosis rate of colonic cells of DSS group was significantly increased (P<0.05), the mitochondria were observed swelling, vacuolated, and the number was reduced (P>0.05). Compared with the DSS group, the apoptosis rate of colonic cells of L-Dasp, M-Dasp and H-Dasp groups was significantly decreased (P<0.05), and the number of mitochondria in colon cells was significantly increased (P<0.05). 2) Compared with the CON group, the mRNA relative expression levels of Toll-like receptor 4 (TLR4) and interleukin-1β (IL-1β) in colon of DSS group were significantly increased (P<0.05); compared with the DSS group, the mRNA relative expression level of TLR4 in colon of M-Dasp group was significantly decreased (P<0.05). There were no significant differences in contents of nterleukin-1α (IL-1α), interleukin-6 (IL-6) and tumor necrosis factor-α (TNF-α) in colon among all groups (P>0.05). 3) Compared with the CON group, the protein relative expression level of receptor interacting protein kinase 1 (RIPK1) in colon of DSS group was significantly increased (P<0.05); compared with the DSS group, the protein relative expression level of RIPK1 in colon of L-Dasp, M-Dasp and H-Dasp groups was significantly decreased (P<0.05), and the protein relative expression level of receptor interacting protein kinase 3 (RIPK3) in colon of H-Dasp group was significantly decreased (P<0.05). 4) Compared with the CON group, the relative abundance of Actinobacteria in colon of DSS group was significantly increased (P<0.05); compared with the DSS group, the relative abundance of Actinobacteria in colon of L-Dasp, M-Dasp and H-Dasp groups was significantly decreased (P<0.05). Compared with the CON group, the relative abundance of Alistipes in colon of DSS group was significantly decreased (P<0.05), and the relative abundances of Bacillus and Saccharopolyspora in colon were significantly increased (P<0.05); compared with the DSS group, the relative abundances of Bacillus and Saccharopolyspora in colon of L-Dasp, M-Dasp and H-Dasp groups was significantly decreased (P<0.05). In summary, the D-Asp can reduce cell apoptosis, improve mitochondrial morphology and enhance immunity of UC mice by regulating the receptor interacting protein signaling pathway expression and intestinal microbiota composition.

溃疡性结肠炎(UC)是发生在结肠或直肠黏膜层的炎症性肠病。研究表明,UC诱发因素有很多,包括基因突变、氧化应激、免疫应激和肠道菌群紊乱等[1],但其发病机制尚不明确。UC的发病特征主要包括肠上皮损伤、炎性因子增多、线粒体形态和功能紊乱等[2-3]。有研究表明,受体相互作用蛋白激酶(RIPK)可介导肠道上皮细胞坏死,在调控UC发病进程中起到关键作用。例如,RIPK抑制剂能减轻UC小鼠症状,抑制炎症和肠道上皮细胞坏死[4]。因此,受体相互作用蛋白(RIP)信号通路成为了预防和治疗UC的关键靶点。
D-天冬氨酸(D-Asp)是一种天然的内源性氨基酸,广泛存在于动物中枢神经系统与内分泌系统中[5],具有潜在的营养性、抗氧化性及抗炎性生理功能[6-9]。研究表明,在断奶仔猪饲粮中添加1%的D-Asp可通过下调空肠中Toll样受体4(TLR4)和核苷酸结合寡聚结构域1(NOD1)的表达而降低炎症因子分泌,从而改善肠道免疫功能[10]。Wang等[11]研究发现,在低蛋白质饲粮中添加D-Asp可改变育肥猪肠道微生物区系,进而调节能量代谢和脂质代谢。最新研究发现,D-Asp可提高UC小鼠肠道抗氧化和免疫功能,进而促进肠道组织损伤修复,并改善UC小鼠的生长状态[12],但其调控机制是否与肠道微生物和RIP信号通路有关尚未可知。因此,本研究利用葡聚糖硫酸钠(DSS)诱导UC小鼠模型[13],探讨了D-Asp介导RIP信号通路和肠道微生物缓解小鼠结肠炎的影响机制,为治疗UC相关疾病提供新的理论基础与思考方向。

1 材料与方法

1.1 试验设计

于湖南斯莱克景达试验动物有限公司购入40只初始体重为(20.98±0.14) g的70日龄C57BL/6J雄性小鼠,在经过为期3 d的预饲适应期后,随机将小鼠分为5组:对照组(CON组)、葡聚糖硫酸钠组(DSS组)、低浓度D-天冬氨酸组(L-Dasp组)、中浓度D-天冬氨酸组(M-Dasp组)、高浓度D-天冬氨酸组(H-Dasp组)。每组8个重复,每个重复1只小鼠,单笼饲养。试验前7 d,CON组小鼠饮用蒸馏水,其他各组小鼠饮用含3.5% DSS(相对分子质量为36 000~50 000,合肥博美生物科技有限公司)的蒸馏水。前期文献调研表明,绝大部分的D-Asp在小肠被完全吸收,而直肠灌注可以直接将目的物质输送到结肠[12-14],因此本试验采取直肠灌注给药的方式。从第8天开始,CON组和DSS组小鼠直肠灌注100 μL生理盐水,L-Dasp组、M-Dasp组和H-Dasp组直肠灌注100 μL浓度分别为0.15、2.30和7.70 mmol/L的D-Asp(纯度≥99.0%,张家港市思普生化有限公司)溶液,每间隔1 d灌注1次,共灌注5次。在第16天灌完最后1次后6 h处死小鼠,并严格按照采样方法采集相关组织样品。
本试验所使用的小鼠均在中国科学院亚热带农业生态研究所无特定病原体(SPF)级动物房内进行饲养,所有试验操作均严格遵循中国科学院亚热带农业生态研究所管理委员会的动物管理条例。小鼠处死及采样细节参考前期试验[12],即采用颈椎脱臼的方法将小鼠致死,迅速剪开腹腔,取出整段结肠,测定长度,并截取相同部位用4%多聚甲醛固定,同时采集结肠食糜,并将剩余肠段液氮速冻,转存于-80 ℃冰箱待用。

1.2 指标测定

1.2.1 结肠细胞凋亡率

采用末端脱氧核苷酸转移酶介导的脱氧尿嘧啶三磷酸荧光标记(TUNEL)法检测结肠细胞凋亡,DeadEndTM Colorimetric TUNEL System试剂盒购自普洛麦格北京生物技术有限公司,具体操作步骤严格按照说明书的指示进行。

1.2.2 结肠RIP信号通路关键蛋白表达

使用Western blot进行蛋白浓度测定。使用RIPA裂解缓冲液(上海碧云天生物技术股份有限公司)提取总蛋白,缓冲液中添加了蛋白酶抑制剂和磷酸酶抑制剂。用BCA试剂盒(上海碧云天生物技术股份有限公司)检测蛋白质浓度。用10%十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)在100 V下分离相同质量(50 μg)的蛋白质2 h,然后先将凝胶紧贴于一块硝酸纤维滤膜,然后再将这种夹层组合直接置于2个电极之间,蛋白质从凝胶中转印至硝酸纤维素膜上。再用5%脱脂牛奶在室温下封闭2 h,然后在4 ℃下与一抗受体相互作用蛋白激酶1(RIPK1)、受体相互作用蛋白激酶3(RIPK3)和混合谱系激酶结构域样蛋白(MLKL)(1∶500)孵育过夜。次日,用PBST缓冲液清洗膜,用适当稀释的辣根过氧化物酶标记的二抗在室温下孵育1 h,再用TBST缓冲液清洗3次。在TBST缓冲液清洗后,使用ECL试剂盒(上海碧云天生物技术股份有限公司)在Bio-Rad ChemiDoc XRS+图像分析仪(美国Bio-Rad公司)上显示蛋白质条带[15]

1.2.3 结肠线粒体形态和数目

收集试验小鼠结肠组织,用4 ℃预冷的磷酸盐缓冲液(PBS)清洗。之后用3%丙二醛、丙酮固定和脱水。脱水后的组织依次用脱水剂和环氧树脂(Epon812)浸润,然后用包埋剂填充。将样品包埋在聚苯乙烯-苯乙烯树脂中,制成厚度为50 nm的超薄切片,并用醋酸铀酰和柠檬酸铅染色。前处理完成后,使用120 kV透射电子显微镜(HT7 800,日本日立公司)观察结肠线粒体超微结构,计数线粒体数量。

1.2.4 结肠炎症细胞因子表达

使用TRIzol(长沙艾科瑞生物工程有限公司)提取结肠样本的总RNA。使用NanoDrop 2000仪器对RNA进行浓度测定。cDNA文库的建立采用的是Prime Script RT Reagent Kit试剂盒(大连TaKaRa公司)。实时荧光定量PCR采用的是SYBR Premix Ex TaqTM Ⅱ试剂(大连TaKaRa公司),其中包括5 μL SYBR Green mix、3 μL ddH2O、1 μL cDNA模板、0.5 μL上游引物和0.5 μL下游引物。引物序列见表1。PCR程序如下:95 ℃预变性5 min,95 ℃ 10 s、60 ℃ 15 s、72 ℃ 15 s,共40个循环。实时荧光定量PCR仪器为LightCycler® 480 Ⅱ Real-Time PCR System(瑞士Roche公司)。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,使用2-ΔΔCt方法计算目的基因[Toll样受体4(TLR4)、髓样分化因子88(MyD88)和白细胞介素-1β(IL-1β)]相对表达量。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
引物长度
Product length/bp
Toll 样受体4
TLR4
F: TTCAGAACTTCAGTGGCTGGATT
R: CCATGCCTTGTCTTCAATTGTTT
NM_021297.3 64
髓样分化因子88
MyD88
F: GCATGGTGGTGGTTGTTTCTG
R: GAATCAGTCGCTTCTGTTGG
NM_010851.3 108
白细胞介素-1β
IL-1β
F: GGGCCTCAAGGAAAAGAATC
R: TTCTGCTTGAGAGGTGCTGA
NM_008361.4 205
甘油醛-3-磷酸脱氢酶
GAPDH
F: GCACAGTCAAGGCCGAGAAT
R: GCCTTCTCCATGGTGGTGAA
XM_017321385.2 151

1.2.5 结肠炎症细胞因子含量

结肠组织样品在含有蛋白酶抑制剂的缓冲液中匀浆1 min,离心后取上清液,在-80 ℃保存,以备后续测量。使用酶联免疫吸附测定(ELISA)定量试剂盒(武汉华美生物工程有限公司)检测结肠中肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)和白细胞介素-1α(IL-1α)含量。

1.2.6 结肠微生物组成

从食糜样本中提取微生物DNA,利用热循环PCR系统(Gene Amp 9 700,美国ABI公司)用引物338 F扩增细菌16S rRNA基因的V3~V4高变区,将序列聚类成至少97%同源性的功能分类单元,并从非稀有的操作分类单元表中生成微生物分类群的相关丰度。再对微生物菌群进行Alpha多样性、Beta多样性分析、线性判别分析效应大小(linear discriminant analysis effect size,LEfSe)分析。

1.3 数据统计分析

所有数据均以平均值±标准误(SE)表示,使用SPSS 22.0软件对数据进行单因素方差分析,采用Duncan氏法对数据进行多重检验。P<0.05为差异显著。

2 结果

2.1 D-Asp对UC小鼠结肠线粒体形态和数量及细胞凋亡率的影响
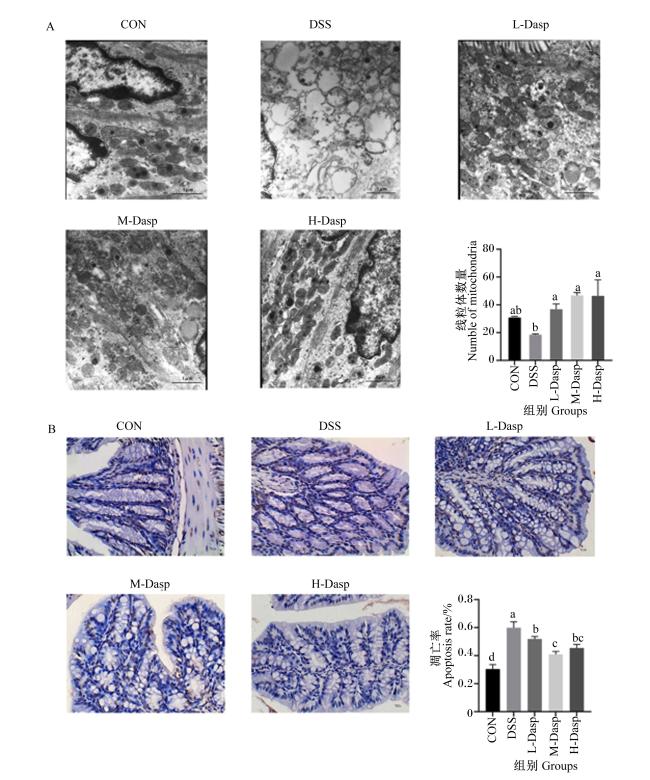
UC小鼠结肠线粒体形态和数量见图1-A,与CON组相比,DSS组结肠细胞线粒体出现明显肿胀,内脊消失,呈空泡状,L-Dasp、M-Dasp和H-Dasp组结肠细胞线粒体形态有明显改善。与CON组相比,DSS组的结肠细胞线粒体数量下降,但差异不显著(P>0.05)。与DSS组相比,L-Dasp、M-Dasp和H-Dasp组的结肠细胞线粒体数量均显著升高(P<0.05),且L-Dasp、M-Dasp和H-Dasp组之间结肠细胞线粒体数量无显著差异(P>0.05)。
图1 D-Asp对UC小鼠结肠线粒体形态和数量及细胞凋亡率的影响

CON:对照组;DSS:葡聚糖硫酸钠组;L-Dasp:低浓度D-天冬氨酸组;M-Dasp:中浓度D-天冬氨酸组;H-Dasp:高浓度D-天冬氨酸组。数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of D-Asp on colonic mitochondria morphology and number and cell apoptosis rate of UC mice

CON: control group; DSS: dextran sulfate sodium group; L-Dasp: low concentration D-Asp group; M-Dasp: medium concentration D-Asp group H-Dasp: high concentration D-Asp group. Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

UC小鼠结肠细胞凋亡图片和凋亡率见图1-B,与CON组相比,DSS组的结肠细胞凋亡率显著升高(P<0.05)。与DSS组相比,L-Dasp、M-Dasp和H-Dasp组的结肠细胞凋亡率均显著降低(P<0.05);但L-Dasp、M-Dasp和H-Dasp组的结肠细胞凋亡率均显著高于CON组(P<0.05),其中,M-Dasp组的结肠细胞凋亡率最低。

2.2 D-Asp对UC小鼠结肠炎症细胞因子含量和表达的影响

表2所示,各组之间结肠IL-1α、IL-6和TNF-α含量无显著差异(P>0.05)。与CON组相比,DSS组的结肠TLR4 mRNA相对表达量显著升高(P<0.05);与DSS组相比,M-Dasp组的结肠TLR4 mRNA相对表达量显著降低(P<0.05),且M-Dasp组的结肠TLR4 mRNA相对表达量与CON组无显著差异(P>0.05)。各组之间结肠MyD88 mRNA相对表达量无显著差异(P>0.05)。与CON组相比,DSS组的结肠IL-1β mRNA相对表达量显著升高(P<0.05);与DSS组相比,L-Dasp、M-Dasp和H-Dasp组的结肠IL-1β mRNA相对表达量分别下降了25.22%、27.83%和20.87%,但差异不显著(P>0.05)。
表2 D-Asp对UC小鼠结肠炎症细胞因子含量和表达的影响

Table 2 Effects of D-Asp on contents and expression of inflammatory cytokines in colon of UC mice

项目
Items
组别 Groups P
P-value
CON DSS L-Dasp M-Dasp H-Dasp
含量 Contents/(ng/g)
白细胞介素-1α IL-1α 33.86±2.58 51.65±6.86 25.60±1.79 36.07±9.53 24.19±5.08 0.478
白细胞介素-6 IL-6 23.72±1.08 29.26±1.17 20.91±0.67 28.48±2.50 22.13±4.63 0.812
肿瘤坏死因子-α TNF-α 266.99±15.16 338.47±18.98 233.32±15.23 271.20±15.76 200.99±14.00 0.643
mRNA相对表达量 mRNA relative expression levels
Toll样受体4 TLR4 1.00±0.29c 2.11±0.20a 1.96±0.16ab 1.45±0.16bc 1.69±0.11abc 0.005
髓样分化因子88 MyD88 1.00±0.22 1.41±0.21 1.06±0.11 1.02±0.04 1.11±0.16 0.290
白细胞介素-1β IL-1β 1.00±0.28b 2.30±0.33a 1.72±0.17ab 1.66±0.06ab 1.82±0.26a 0.037

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05).

2.3 D-Asp对UC小鼠结肠RIP信号通路关键蛋白表达的影响

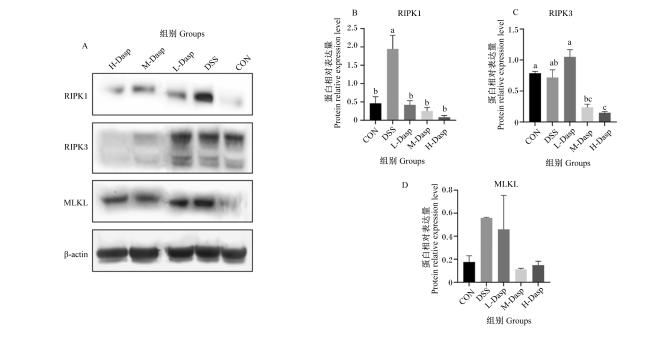
图2所示,与CON组相比,DSS组的结肠RIPK1蛋白相对表达量显著升高(P<0.05);与DSS组相比,L-Dasp、M-Dasp和H-Dasp组的结肠RIPK1蛋白相对表达量显著降低(P<0.05),且L-Dasp、M-Dasp和H-Dasp组的结肠RIPK1蛋白相对表达量与CON组无显著差异(P>0.05)。与DSS组相比,H-Dasp组的结肠RIPK3蛋白相对表达量显著降低(P<0.05)。各组之间结肠MLKL蛋白相对表达量无显著差异(P>0.05)。
图2 D-Asp对UC鼠结肠RIP信号通路关键蛋白表达的影响

RIPK1:受体相互作用蛋白激酶1 receptor interacting protein kinase 1;RIPK3:受体相互作用蛋白激酶3 receptor interacting protein kinase 3;MLKL:混合谱系激酶结构域样蛋白 mixed lineage kinase domain-like protein;β-actin:β-肌动蛋白。

Fig.2 Effects of D-Asp on expression of key protein in RIP signaling pathway in colon of UC mice

2.4 D-Asp对UC小鼠结肠微生物组成的影响

2.4.1 D-Asp对UC小鼠结肠微生物Alpha多样性、Beta多样性、差异菌群的影响

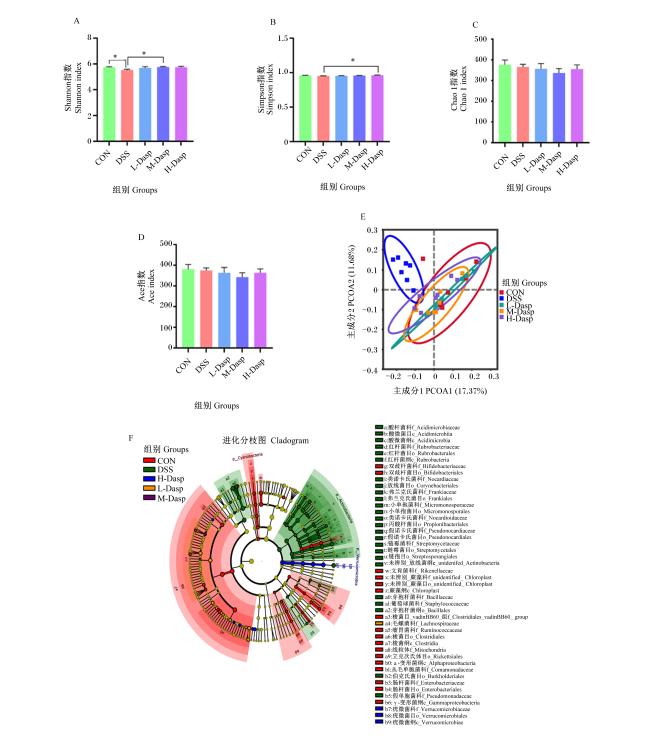
图3所示,DSS组的Shannon指数显著低于CON组(P<0.05),而M-Dasp组的Shannon指数和H-Dasp组的Simpson指数均显著高于DSS组(P<0.05)。各组之间Chao1指数和Ace指数无显著差异(P>0.05)。主成分分析(PCOA)显示,DSS组与CON组之间能够明显区分成2个群,说明DSS组与CON组之间菌群可能存在较大差异;L-Dasp组、M-Dasp组和H-Dasp组样本与DSS组分散较远,而与CON组分散较近,说明直肠灌注不同浓度D-Asp后菌群组成与DSS组的差异较大,与CON组的差异较小。各组差异微生物均属于不同的分类,DSS组结肠微生物多集中于放线菌门(Actinobacteria),而CON组则集中于拟杆菌门(Bacteroidetes)、厚壁菌门(Firmicutes)和变形菌门(Proteobacteria),L-Dasp组、M-Dasp组和H-Dasp组则集中于厚壁菌门和变形菌门。
图3 UC小鼠结肠微生物Alpha多样性、Beta多样性、LEfSe分析

*表示有显著差异(P<0.05)。

Fig.3 Alpha diversity, Beta diversity and LEfSe analysis of colonic microbiota of UC mice

* indicated significant difference (P<0.05).

2.4.2 D-Asp对UC小鼠结肠微生物相对丰度的影响

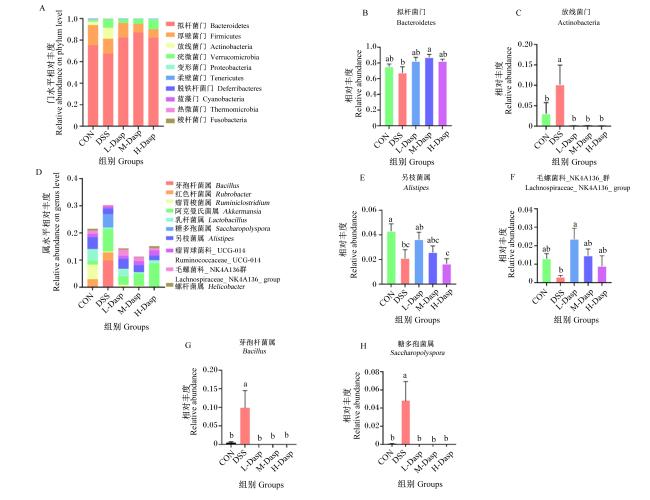
图4所示,在门水平上,结肠优势菌门为拟杆菌门,与CON组相比,DSS组的结肠拟杆菌门相对丰度有所下降,但差异不显著(P>0.05);与DSS组相比,M-Dasp组的结肠拟杆菌门相对丰度显著升高(P<0.05)。与CON组相比,DSS组的结肠放线菌门相对丰度显著升高(P<0.05);与DSS组相比,L-Dasp组、M-Dasp组和H-Dasp组的结肠放线菌门相对丰度显著降低(P<0.05),且L-Dasp组、M-Dasp组和H-Dasp组的结肠放线菌门相对丰度与CON组无显著差异(P>0.05)。
图4 D-Asp对UC小鼠结肠微生物相对丰度的影响

Fig.4 Effects of D-Asp on relative abundance of colonic microbiota of UC mice

在属水平上,各组结肠微生物主要由另枝菌属(Alistipes)、毛螺菌科_NK4A136_群(Lachnospiraceae_NK4A136_group)、芽孢杆菌属(Bacillus)和糖多孢菌属(Saccharopolyspora)等组成。与CON组相比,DSS组的结肠另枝菌属相对丰度显著降低(P<0.05);与DSS组相比,L-Dasp组和M-Dasp组的结肠另枝菌属相对丰度有所上升,但差异不显著(P>0.05)。与CON组相比,DSS组的结肠毛螺菌科_NK4A136_群相对丰度有所降低,但差异不显著(P>0.05);与DSS组相比,L-Dasp组的结肠毛螺菌科_NK4A136_群相对丰度显著升高(P<0.05)。与CON组相比,DSS组的结肠芽孢杆菌属和糖多孢菌属相对丰度显著升高(P<0.05);与DSS组相比,L-Dasp组、M-Dasp组和H-Dasp组的结肠芽孢杆菌属和糖多孢菌属相对丰度显著降低(P<0.05),且L-Dasp组、M-Dasp组和H-Dasp组的结肠芽孢杆菌属和糖多孢菌属相对丰度与CON组无显著差异(P>0.05)。

2.4.3 UC小鼠关键差异微生物与RIP信号通路关键因子的相关性分析

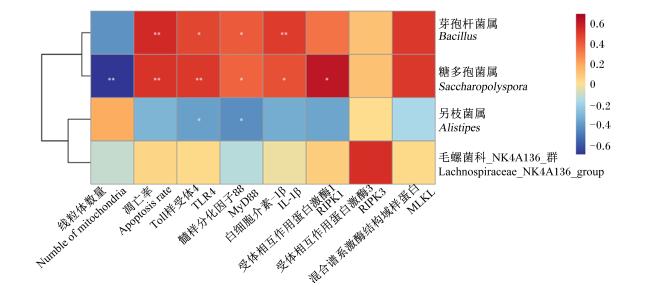
图5所示,结肠芽孢杆菌属相对丰度与结肠细胞凋亡率及TLR4、MyD88、IL-1β mRNA相对表达量呈显著正相关(P<0.05)。结肠糖多孢菌属相对丰度与结肠细胞线粒体数量呈显著负相关(P<0.05),与结肠细胞凋亡率和TLR4、MyD88、IL-1β mRNA相对表达量及RIPK1蛋白相对表达量呈显著正相关(P<0.05)。结肠另枝菌属相对丰度与结肠TLR4、MyD88 mRNA相对表达量呈显著负相关(P<0.05)。
图5 UC小鼠结肠关键差异微生物与RIP信号通路关键因子的相关性分析

*、**表示显著相关(P<0.05)。

Fig.5 Correlation analysis between key differential microbiota and RIP signaling pathway key factors in colon of UC mice

* and ** mean significant correlation (P<0.05).

3 讨论

3.1 D-Asp改善UC小鼠结肠线粒体形态结构和降低细胞凋亡率

许多研究表明,UC的发生发展往往伴随着肠道功能的损伤,主要表现在肠道屏障功能受损、肠道细胞快速凋亡和线粒体功能紊乱等[2-3]
本研究发现,D-Asp在可一定程度上改善由DSS引起的结肠线粒体形态结构的破坏,并增加线粒体数量。这一结果与Wang等[11]研究结果一致,其研究表明D-Asp可通过增加肌肉中线粒体转录因子A蛋白的表达进而提高猪肌纤维中的线粒体数量,并维持线粒体形态完整。也有研究表明,D-Asp可通过天冬氨酸消旋酶转化为L-天冬氨酸(L-Asp),也可通过D-Asp氧化酶代谢为草酰乙酸(OAA)[16-17],L-Asp被证实可改善由游离脂肪酸诱导的肝细胞的线粒体功能障碍[18],OAA作为三羧酸循环的关键底物对调节线粒体能量代谢与维持线粒体稳态发挥重要作用。这些研究提示,本研究中添加不同浓度的D-Asp可能被转化为L-Asp或者OAA,为UC小鼠提供能量,进而促进线粒体增殖和维持线粒体形态。
肠道细胞的凋亡率是衡量肠道健康的指标之一,UC患者的结肠细胞凋亡率显著高于正常人[2],这与本研究的结论一致;而直肠灌注不同浓度的D-Asp则反转了这一现象,表明D-Asp可有效干预UC小鼠肠细胞凋亡。这可能是因为DSS处理诱导了小鼠线粒体功能障碍[19],而D-Asp的添加维持了线粒体稳态,从而减少结肠细胞凋亡。有研究表明,30 mmol/L的OAA会抑制细胞糖酵解,抑制细胞增殖,引起细胞凋亡[20]。本研究结果发现,高浓度的D-Asp抑制细胞凋亡能力不如低和中浓度的D-Asp,这或许是高浓度D-Asp转化较多的OAA,抑制了细胞增殖,促进了细胞凋亡。

3.2 D-Asp调节UC小鼠结肠炎症细胞因子的分泌和表达

炎症细胞因子的过度表达或异常分泌被认为是导致UC发生的重要机制之一[21],因此提高抗炎能力成为预防和治疗UC的有效途径。TLR4是机体固有免疫的重要组分,其与MyD88结合后刺激炎症因子的表达,包括IL-1β、IL-6和TNF-α等,从而引起肠道炎症反应。本研究发现,DSS处理可提高结肠TLR4和IL-1β mRNA相对表达量,不同浓度的D-Asp处理降低了其mRNA相对表达量。Li等[10]研究表明,饲粮中添加1%的D-Asp可下调空肠中TLR4、NOD1和MyD88的mRNA相对表达量,从而缓解断奶应激导致的肠道炎症,这与本研究结果类似。D-Asp处理可降低试验性自身免疫性脑脊髓炎小鼠血清IL-6含量[22],提示D-Asp具有抗炎作用。Chen等[23]研究发现,天冬酰胺(Asn)可以下调仔猪肠道TLR4/MyD88信号通路,进而缓解由脂多糖(LPS)引起的炎症,而D-Asp在天冬酰胺合成酶的作用下合成Asn,表明D-Asp可能通过转化为Asn来发挥抗炎作用。

3.3 D-Asp介导RIP信号通路调控UC小鼠结肠细胞坏死

肠道上皮细胞的凋亡和坏死是UC发病的重要特征之一,调节肠道上皮细胞过度凋亡或坏死是控制结肠炎的潜在治疗策略[24-25]。RIPK1通过调控半胱氨酸蛋白酶8介导的细胞凋亡途径在细胞凋亡和坏死过程中发挥作用。RIPK1活化后,激活了RIP1/RIP3/MLKL信号通路,RIPK1、RIPK3和MLKL将形成坏死体,直接导致细胞膜爆裂[26]。研究表明,DSS诱导的结肠炎小鼠结肠中RIP信号通路显著上调[27]。这与本研究DSS处理结果一致,而直肠灌注2.3和7.7 mmol/L D-Asp后可显著降低UC小鼠结肠中RIPK1和RIPK3的蛋白相对表达量,同时D-Asp处理后降低了TNF-α含量和细胞凋亡率,TNF-α是RIPK1/RIPK3/MLKL坏死性凋亡信号通路的典型触发因素[28],推测D-Asp可能通过减少TNF-α的分泌,抑制RIP信号通路,从而抑制细胞坏死或凋亡。

3.4 D-Asp调节小鼠结肠微生物菌群区系缓解UC

肠道微生物组成的改变是UC发病的前兆之一,而UC发病后也会导致肠道微生物区系的改变[29-30]。本试验中,DSS处理可导致肠道微生物的Alpha多样性和Beta多样性发生变化,并出现不同的特征性微生物,而直肠灌注不同浓度的D-Asp后会减轻这种变化。这可能是因为D-Asp抑制了有害菌而促进了有益菌的生长,因此改变了UC小鼠结肠微生物区系。Li等[10]研究表明,饲粮中添加1%的D-Asp可调节断奶仔猪肠道菌群结构,进而提高生长性能;Wang等[11]研究表明,饲粮中添加不同浓度的D-Asp改变了育肥猪回肠食糜微生物多样性,继而改善肉品质,说明D-Asp可以通过调控肠道微生物改善宿主性状。本研究发现,DSS处理上调了结肠放线菌门、糖多孢菌属、芽孢杆菌属相对丰度和下调了研究表明,拟杆菌门、毛螺菌科_NK4A136_群、另枝菌属相对丰度,而直肠灌注不同浓度的D-Asp可下调结肠放线菌门相对丰度和上调结肠拟杆菌门、另枝菌属、毛螺菌科_NK4A136_群相对丰度,且灌注2.30、7.70 mmol/L的D-Asp效果较好。
糖多孢菌属和芽孢杆菌属相对丰度与结肠细胞凋亡率及TLR4、MyD88、IL-1β mRNA相对表达量呈显著正相关,而另枝菌属相对丰度与结肠TLR4、MyD88 mRNA相对表达量呈显著负相关,表明糖多孢菌属和芽孢杆菌属可能会促进炎性因子的产生并加速结肠细胞凋亡,而另枝菌属可能起到抑制炎性因子分泌的作用。另枝菌属和毛螺菌科_NK4A136_群均可以产生多种短链脂肪酸以维持肠道屏障完整性、抵抗肠道炎症和提高免疫防御耐受性[31-32]。有研究表明,UC小鼠中另枝菌属、毛螺菌科_NK4A136_群相对丰度显著降低[32-33],与本研究结果一致。也有研究指出亚精胺(spermidine,SPD)可以上调肥胖小鼠盲肠中毛螺菌科_NK4A136_群相对丰度[34],D-Asp可能通过转化为SPD来增加其相对丰度。有研究发现,UC患者肠道微生物中放线菌门比例显著增高[35],本研究也进一步证实了这一点。也有报道指出糖多孢菌属的红色糖多孢菌(Saccharopolyspora rectivirgula)能破坏机体免疫系统,引发机体超敏性肺炎[36],芽孢杆菌属的相关提取物加重了大鼠UC症状[37],推测DSS处理使放线菌门、糖多孢菌属、芽孢杆菌属相对丰度增加可能是导致小鼠UC发生的原因之一,不同浓度的D-Asp均抑制了糖多孢菌属、芽孢杆菌属相对丰度,提示D-Asp可能具有抗菌潜力,且0.15 mmol/L的D-Asp足以发挥其抗菌作用,但具体作用机制有待进一步探究。

4 结论

直肠灌注不同浓度的D-Asp可通过介导RIP信号通路和肠道微生物菌群区系减少UC小鼠结肠细胞凋亡和改善线粒体形态,进而缓解DSS诱导的小鼠UC。在本试验中,干预小鼠UC的适宜D-Asp浓度为2.30 mmol/L。
[1]
SHENG K L, ZHANG G H, SUN M, et al. Grape seed proanthocyanidin extract ameliorates dextran sulfate sodium-induced colitis through intestinal barrier improvement,oxidative stress reduction,and inflammatory cytokines and gut microbiota modulation[J]. Food & Function, 2020, 11(9):7817-7829.

[2]
WAN Y, YANG L, JIANG S, et al. Excessive apoptosis in ulcerative colitis:crosstalk between apoptosis,ROS,ER stress,and intestinal homeostasis[J]. Inflammatory Bowel Diseases, 2022, 28(4):639-648.

[3]
HAN J R, LI W H, SHI G Y, et al. Atractylenolide Ⅲ improves mitochondrial function and protects against ulcerative colitis by activating AMPK/SIRT1/PGC-1α[J]. Mediators of Inflammation, 2022,2022:9129984.

[4]
LEE S H, KWON J Y, MOON J, et al. Inhibition of RIPK3 pathway attenuates intestinal inflammation and cell death of inflammatory bowel disease and suppresses necroptosis in peripheral mononuclear cells of ulcerative colitis patients[J]. Immune Network, 2020, 20(2):e16.

[5]
USIELLO A, DI FIORE M M, DE ROSA A, et al. New evidence on the role of D-aspartate metabolism in regulating brain and endocrine system physiology:from preclinical observations to clinical applications[J]. International Journal of Molecular Sciences, 2020, 21(22):8718.

[6]
HOLEČEK M. et al. Aspartic acid in health and disease[J]. Nutrients, 2023, 15(18):4023.

[7]
RASPA M, PAOLETTI R, PELTIER M, et al. Oral D-aspartate treatment improves sperm fertility in both young and adult B6N mice[J]. Animals, 2022, 12(11):1350.

[8]
尹杰, 韩慧, 刘泽民, 等. 功能性氨基酸调控猪氧化应激的研究进展[J]. 中国科学:生命科学, 2019, 49(3):193-201.

YIN J, HAN H, LIU Z M, et al. Regulation of functional amino acids on oxidative stress in pigs[J]. Science in China (Life Sciences), 2019, 49(3):193-201. (in Chinese)

[9]
TANG W J, WU J, JIN S S, et al. Glutamate and aspartate alleviate testicular/epididymal oxidative stress by supporting antioxidant enzymes and immune defense systems in boars[J]. Science China:Life Sciences, 2020, 63(1):116-124.

[10]
LI Y Y, HAN H, YIN J, et al. D- and L-aspartate regulates growth performance,inflam mation and intestinal microbial community in young pigs[J]. Food & Function, 2019, 10(2):1028-1037.

[11]
WANG C Y, HUANG L, JIN S S, et al. D-aspartate in low-protein diets improves the pork quality by regulating energy and lipid metabolism via the gut microbes[J]. Journal of Agricultural and Food Chemistry, 2023, 71(33):12417-12430.

DOI PMID

[12]
胡鲜, 王晨昱, 刘娣, 等. D-天冬氨酸对葡聚糖硫酸钠诱导结肠炎小鼠抗氧化和炎症反应的影响[J]. 动物营养学报, 2021, 33(8):4708-4718.

DOI

HU X, WANG C Y, LIU D, et al. Effects of D-aspartic on antioxidant and inflammation of dextran sodium sulfate induced colitis of mice[J]. Chinese Journal of Animal Nutrition, 2021, 33(8):4708-4718. (in Chinese)

[13]
EICHELE D D, KHARBANDA K K. Dextran sodium sulfate colitis murine model: an indispensable tool for advancing our understanding of inflammatory bowel diseases pathogenesis[J]. World Journal of Gastroenterology, 2017, 23(33):6016-6029.

DOI PMID

[14]
BRÖER S. Intestinal amino acid transport and metabolic health[J]. Annual Review of Nutrition, 2023,43:73-99.

[15]
HU X, HE X M, PENG C, et al. Improvement of ulcerative colitis by aspartate via RIPK pathway modulation and gut microbiota composition in mice[J]. Nutrients, 2022, 14(18):3707.

[16]
KATANE M, HOMMA H. D-aspartate oxidase:the sole catabolic enzyme acting on free D-aspartate in mammals[J]. Chemistry & Biodiversity, 2010, 7(6):1435-1449.

[17]
丁婧, 何流琴, 李铁军, 等. 氨基酸转运载体SLC1A3的功能及对神经系统和线粒体功能的调节作用机制研究进展[J]. 科学通报, 2022, 67(25):3005-3013.

DING J, HE L Q, LI T J, et al. Research progress on the function of the amino acid transporter SLC1A3 and its regulation mechanism of action in the nervous system and mitochondria[J]. Chinese Science Bulletin, 2022, 67(25):3005-3013. (in Chinese)

[18]
金奇. 天冬氨酸在非酒精性脂肪肝行病中的作用及其机制研究[D]. 硕士学位论文. 杭州: 浙江大学,2021:20-30.

JIN Q. The role and the mechanism of aspartic acid in non-alcoholic fatty liver disease[D]. Master’s Thesis. Hangzhou: Zhejiang University,2021:20-30. (in Chinese)

[19]
SHAO B Z, YAO Y, ZHAI J S, et al. The role of autophagy in inflammatory bowel disease[J]. Frontiers in Physiology, 2021,12:621132.

[20]
KUANG Y, HAN X Y, XU M, et al. Oxaloacetate induces apoptosis in HepG2 cells via inhibition of glycolysis[J]. Cancer Medicine, 2018, 7(4):1416-1429.

DOI PMID

[21]
WANG Y F, LIU J J, HUANG Z W, et al. Coptisine ameliorates DSS-induced ulcerative colitis via improving intestinal barrier dysfunction and suppressing inflammatory response[J]. European Journal of Pharmacology, 2021,896:173912.

[22]
AFRAEI S, D’ANIELLO A, SEDAGHAT R, et al. Therapeutic effects of D-aspartate in a mouse model of multiple sclerosis[J]. Journal of Food and Drug Analysis, 2017, 25(3):699-708.

[23]
CHEN S K, LIU Y L, WANG X Y, et al. Asparagine improves intestinal integrity,inhibits TLR4 and NOD signaling,and differently regulates p38 and ERK1/2 signaling in weanling piglets after LPS challenge[J]. Innate Immunity, 2016, 22(8):577-587.

[24]
ZHANG J, CEN L, ZHANG X F, et al. MPST deficiency promotes intestinal epithelial cell apoptosis and aggravates inflammatory bowel disease via AKT[J]. Redox Biology, 2022,56:102469.

[25]
KUO W T, SHEN L, ZUO L, et al. Inflammation-induced occludin downregulation limits epithelial apoptosis by suppressing caspase-3 expression[J]. Gastroenterology, 2019, 157(5):1323-1337.

[26]
YUAN J Y, AMIN P, OFENGEIM D. Necroptosis and RIPK1-mediated neuroinflammation in CNS diseases[J]. Nature Reviews Neuroscience, 2019, 20(1):19-33.

DOI PMID

[27]
WU C, YANG H J, HAN C P, et al. Quyu shengxin decoction alleviates DSS-induced ulcerative colitis in mice by suppressing RIP1/RIP3/NLRP3 signalling[J]. Evidence-based Complementary and Alternative Medicine:eCAM, 2021,2021:6682233.

[28]
ZHANG Y Y, SU S S, ZHAO S B, et al. RIP1 autophosphorylation is promoted by mitochondrial ROS and is essential for RIP3 recruitment into necrosome[J]. Nature Communications, 2017,8:14329.

[29]
FOPPA C, RIZKALA T, REPICI A, et al. Microbiota and IBD:current knowledge and future perspectives[J]. Digestive and Liver Disease, 2024, 56(6):911-922.

[30]
RODRÍGUEZ C, ROMERO E, GARRIDO-SANCHEZ L, et al. Microbiota insights in clostridium difficile infection and inflammatory bowel disease[J]. Gut Microbes, 2020, 12(1):1725220.

[31]
KANG Y B, KUANG X Y, YAN H, et al. A novel synbiotic alleviates autoimmune hepatitis by modulating the gut microbiota-liver axis and inhibiting the hepatic TLR4/NF-κB/NLRP3 signaling pathway[J]. mSystems, 2023, 8(2):e0112722.

[32]
WU Y, RAN L, YANG Y, et al. Deferasirox alleviates DSS-induced ulcerative colitis in mice by inhibiting ferroptosis and improving intestinal microbiota[J]. Life Sciences, 2023,314:121312.

[33]
LU H Y, SHEN M Y, CHEN Y, et al. Alleviative effects of natural plant polysaccharides against DSS-induced ulcerative colitis via inhibiting inflammation and modulating gut microbiota[J]. Food Research International, 2023,167:112630.

[34]
MA L Y, NI Y H, WANG Z, et al. Spermidine improves gut barrier integrity and gut microbiota function in diet-induced obese mice[J]. Gut Microbes, 2020, 12(1):1-19.

[35]
宋璐, 夏冰. 溃疡性结肠炎发病机制及其诊断[J]. 中国实用内科杂志, 2010, 30(11):1056-1058.

SONG L, XIA B. The pathogenesis and diagnosis of ulcerative colitis[J]. Chinese Journal of Practical Internal Medicine, 2010, 30(11):1056-1058. (in Chinese)

[36]
YOON T W, FITZPATRICK E A, SNYDER J D, et al. Contribution of protein kinase D1 on acute pulmonary inflammation and hypersensitivity pneumonitis induced by Saccharopolyspora rectivirgula[J]. Immunohorizons, 2022, 6(3):224-242.

[37]
SALEM G A, MOHAMED A A R, GHONIMI W A M, et al. The synbiotic mixture of Bacillus licheniformis and saccharomyces cerevisiae extract aggravates dextran sulfate sodium induced colitis in rats[J]. BMC Veterinary Research, 2022, 18(1):405.

文章导航

/