研究论文

槲皮素对产肠毒素大肠杆菌K88诱导的猪肠上皮细胞凋亡和焦亡信号通路的影响

  • 徐晓叶 ,
  • 龚晗秋 ,
  • 张敏芳 ,
  • 贺鹏伟 ,
  • 周墨涵 ,
  • 刘玉兰 ,
  • 肖勘 , *
展开
  • 武汉轻工大学,动物营养与饲料科学湖北省重点实验室,武汉 430023
*肖 勘,副教授,硕士生导师,E-mail:

徐晓叶(2000—),女,湖北孝感人,硕士研究生,畜牧学专业。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-04-30

  网络出版日期: 2024-10-14

基金资助

武汉市科技局知识创新专项曙光计划项目(2022020801020394)

Effects of Quercetin on Apoptosis and Pyroptosis Signaling Pathways in Porcine Intestinal Epithelium Cells Induced by Enterotoxigenic Escherichia coli K88

  • XU Xiaoye ,
  • GONG Hanqiu ,
  • ZHANG Minfang ,
  • HE Pengwei ,
  • ZHOU Mohan ,
  • LIU Yulan ,
  • XIAO Kan , *
Expand
  • Hubei Key Laboratory of Animal Nutrition and Feed Science, Wuhan Polytechnic University, Wuhan 430023, China
*associate professor, E-mail:

Received date: 2024-04-30

  Online published: 2024-10-14

摘要

本试验旨在研究槲皮素(Que)对产肠毒素大肠杆菌K88(ETEC K88)诱导的猪肠上皮细胞损伤、炎症反应、凋亡和焦亡信号通路的影响。试验以猪肠上皮细胞IPEC-1为研究对象,分为4组:对照组、Que组、ETEC K88组、Que+ETEC K88组。用0或10 μmol/L Que处理细胞24 h后,再用磷酸盐缓冲液(PBS)或50倍细胞数的ETEC K88刺激细胞2 h,收集样品测定细胞活力、细胞上清液中乳酸脱氢酶(LDH)活性、细胞中炎性因子含量、细胞凋亡和焦亡信号通路相关基因的mRNA表达水平。结果显示:1)Que显著缓解了ETEC K88诱导的细胞活力的下降和细胞上清液中LDH活性的上升(P<0.05)。2)Que显著缓解了ETEC K88诱导的细胞中炎性因子白细胞介素-1β(IL-1β)、白细胞介素-18(IL-18)和肿瘤坏死因子-α(TNF-α)含量的上升(P<0.05)。3)Que显著缓解了ETEC K88诱导的细胞凋亡信号通路相关基因凋亡相关因子配体(FasL)、半胱氨酸天冬氨酸蛋白酶-3(Caspase-3)、半胱氨酸天冬氨酸蛋白酶-9(Caspase-9)、B细胞淋巴瘤-2相关X蛋白(Bax)的mRNA表达水平的上升和B细胞淋巴瘤-xL(Bcl-xL)的mRNA表达水平的下降(P<0.05)。4)Que显著缓解了ETEC K88诱导的细胞焦亡信号通路相关基因含pyrin结构域NOD样受体家族3(NLRP3)、IL-18、消皮素D(GSDMD)和NLR家族CARD结构域4(NLRC4)的mRNA表达水平的上升(P<0.05)。综上所述,Que可抑制ETEC K88刺激导致的IPEC-1细胞凋亡和焦亡信号通路的激活,缓解细胞损伤。

本文引用格式

徐晓叶 , 龚晗秋 , 张敏芳 , 贺鹏伟 , 周墨涵 , 刘玉兰 , 肖勘 . 槲皮素对产肠毒素大肠杆菌K88诱导的猪肠上皮细胞凋亡和焦亡信号通路的影响[J]. 动物营养学报, 2024 , 36(10) : 6723 -6731 . DOI: 10.12418/CJAN2024.572

Abstract

This study aimed to investigate the effects of quercetin (Que) on injury, inflammatory response, apoptosis and pyroptosis signaling pathways in intestinal porcine epithelial cells induced by enterotoxigenic Escherichia coli (ETEC) K88. Porcine intestinal epithelial cell IPEC-1 was used as the study object, they were divided into four groups: control group, Que group, ETEC K88 group and Que+ETEC K88 group. After treating with 0 or 10 μmol/L Que for 24 h, IPEC-1 cells were stimulated with PBS or 50 times cell number of ETEC K88 for 2 h. Samples were collected to measure cell viability, lactate dehydrogenase (LDH) activity in cell supernatant, inflammatory factor contents in cells, and mRNA expression levels of genes related to apoptosis and pyroptosis signaling pathways. The results showed that: 1) Que significantly alleviated the decrease of cell viability and the increase of LDH activity in supernatants induced by ETEC K88 (P<0.05). 2) Que significantly relieved the increase of interleukin-1β (IL-1β), interleukin-18 (IL-18) and tumor necrosis factor-α (TNF-α) in cells induced by ETEC K88 (P<0.05). 3) Que significantly alleviated the increase of mRNA expression levels of genes related to apoptosis signaling pathway induced by ETEC K88 such as apoptosis-related factor ligand (FasL), cysteine aspartate protease-3 (Caspase-3), cysteine aspartate protease-9 (Caspase-9), B-cell lymphoma-2-related X protein (Bax) and the decrease of mRNA expression level of B-cell lymphoma-xL (Bcl-xL) (P<0.05). 4) Que significantly relieved the increase of mRNA expression levels of genes related to pyroptosis signaling pathway in cells induced by ETEC K88 such as NOD-like receptors family pyrin domain containing 3 (NLRP3), IL-18, gasdermin D (GSDMD) and NLR family CARD domain containing 4 (NLRC4) (P<0.05). In summary, Que can inhibit the apoptosis and pyroptosis signaling pathways activated by ETEC K88 in IPEC-1 cells, and alleviate the cell injury.

在养猪生产中,外界环境刺激(细菌、毒素等)易使仔猪产生应激,造成仔猪腹泻或死亡,给养猪生产带来很大的经济损失。产肠毒素大肠杆菌(enterotoxigenic Escherichia coli,ETEC)是引起仔猪腹泻的主要致病菌之一。其中,ETEC K88是引起仔猪腹泻最主要的病原菌,它主要通过黏附于仔猪肠道上皮,释放毒素,造成仔猪肠道损伤[1]。研究表明,给断奶仔猪灌喂ETEC K88会导致其生长性能下降,肠道形态以及肠道屏障功能受损[2]。此外,Wen等[3]的研究表明,ETEC K88会导致仔猪肠道内抗氧化稳态失衡,并诱发炎症反应。
肠道损伤与细胞死亡关系密切。细胞凋亡和细胞焦亡都是典型的程序性细胞死亡方式。细胞凋亡主要有2条途径,即死亡受体途径和线粒体途径[4]。死亡受体途径起始于FasL与Fas受体结合,激活的受体通过适配蛋白和半胱氨酸天冬氨酸蛋白酶(Caspase)相互作用,导致Caspase的活化,活化的Caspase-8进一步激活其他Caspase,特别是Caspase-3,形成Caspase联级反应,最终导致细胞凋亡[5]。线粒体途径则是由于细胞内部发生信号导致线粒体膜通透性改变,线粒体上的孔道开放,细胞色素C释放,促进Caspase-9形成并被激活其他Caspase,最终导致细胞凋亡[6]。线粒体上孔道的开放与关闭受到B细胞淋巴瘤(B-cell lymphoma,Bcl)蛋白家族的调控,促凋亡蛋白B细胞淋巴瘤-2相关X蛋白(Bcl-2-associated X,Bax)等可以通过与线粒体内膜腺苷转位因子(adenine nucleotide translocator,ANT)或外膜的电压依赖性阴离子通道(voltage-dependent anion channel,VDAC)的结合促进孔道的开放,而抗凋亡类蛋白如Bcl-2、Bcl-xL等则可通过与Bax竞争性地与ANT结合或直接阻止Bax与ANT、VDAC结合来抑制孔道的开放[4]。研究表明,镉可诱导小鼠肠道细胞凋亡,引起肠道损伤[7];敌草快可诱导猪小肠上皮细胞发生凋亡,提高肠道的通透性,破坏肠道紧密连接蛋白,从而引起肠道损伤[8]。细胞焦亡起始于炎性小体的组装,炎性小体通过消皮素D(gasdermin D,GSDMD)的切割以及白细胞介素-1β(interleukin-1β,IL-1β)和白细胞介素-18(interleukin-18,IL-18)等细胞因子的激活引起细胞炎症性死亡[9]。细胞焦亡有Caspase-1依赖性的经典途径和Caspase-4/5/11依赖性的非经典途径[10]。研究表明,细胞焦亡与肠道损伤有密切关系,如肠伤寒沙门菌可活化Caspase-4/11,诱导感染肠伤寒沙门菌的肠道上皮细胞发生焦亡,并从肠道脱落[11];阪崎肠杆菌可通过调节含pyrin结构域NOD样受体家族3(NOD-like receptors family pyrin domain containing 3,NLRP3)活化、上调Caspase-1、释放IL-1β和裂解GSDMD等复杂过程诱发细胞焦亡,进而引起肠道损伤[12]
槲皮素(quercetin,Que)是一种广泛存在于植物体中具有多种生物活性的黄酮醇类化合物。Que具有多种药理作用和生物学功能,如抗炎、抗菌、抗癌、抗肿瘤、抗氧化以及降低血糖、血压等[13]。研究表明,饲粮中添加Que可提高仔猪的平均日增重和营养物质表观消化率[14];灌喂Que可有效缓解猪流行性腹泻病毒感染导致的仔猪肠道损伤,提高仔猪肠道抗氧化能力[15]。然而,目前关于Que对仔猪肠上皮细胞凋亡和焦亡信号通路影响的研究还非常有限。因此,本试验以猪肠上皮细胞IPEC-1为研究对象,探究Que对ETEC K88诱导的细胞损伤、细胞凋亡和焦亡信号通路的影响,以期为Que作为功能性饲料添加剂应用于仔猪生产提供参考。

1 材料与方法

1.1 试验材料

IPEC-1细胞,德克萨斯农工大学馈赠;槲皮素,购于Sigma-Aldrich公司;ETEC K88,购于中国兽医药品监察所,血清型为 O149:K91:K88ac;乳酸脱氢酶(lactic dehydrogenase,LDH)试剂盒,购于南京建成生物工程研究所;CCK8试剂盒,购于武汉丁香园科技有限公司;肿瘤坏死因子-α(TNF-α)酶联免疫吸附测定(ELISA)试剂盒、IL-1β ELISA试剂盒、IL-18 ELISA试剂盒,购于北京四正柏生物科技有限公司;DMEM/F-12培养基,购于HyClone公司;RNAiso Plus裂解液、PrimeScript® RT reagent Kit With gDNA Eraser反转录试剂盒、SYBR® Premix Ex TaqTM RT-PCR试剂盒、无酶水,购于日本TaKaRa公司;氯仿、异丙醇和乙醇,购于国药集团;DEPC水,购于Biosharp公司;磷酸盐缓冲液(PBS)、胎牛血清(FBS),购于HyClone公司;谷氨酰胺(Gln)溶液(200 mmol/L)、青链霉素混合液(PSF)、胰岛素-转铁蛋白-硒-X(ITS-X)(100×)、表皮生长因子(EGF)和胰酶(0.25%,0.9 mmol EDTA),购于Gibco公司;75 cm2细胞培养瓶、100 mm培养皿、60 mm培养皿、6孔细胞培养板、12孔细胞培养板、96孔细胞培养板、15 mL无菌离心管、50 mL无菌离心管、10 mL无菌移液管、细胞刮、2.0外旋冻存管,购于Corning公司;无菌EP管(200 μL、1.5 mL、2 mL),购于KIRGEN公司。

1.2 细菌培养

从-80 ℃中取出冻存的细菌置于37 ℃水浴复苏,吸取10 μL浓度为5×10⁶ CFU/mL的ETEC K88菌液,加入到含有10 mL LB液体培养基的细菌瓶中,放入37 ℃恒温摇床,培养12 h。将复壮菌液用接种环于培养皿上划线,于37 ℃恒温培养箱培养30 min,倒置过夜。取长有单菌落的培养皿,挑选单菌落加入含有10 mL LB液体培养基的细菌瓶中,混匀,放入37 ℃恒温摇床,120 r/min培养12 h用以后续试验。
取1 mL培养好的菌液加入到1.5 mL无菌EP管中,6 124×g离心5 min,弃上清,加入1 mL PBS,涡旋离心,重复3次后,再加入1 mL PBS,吹打均匀,取300 μL悬浊液加入无菌96孔细胞培养板,使用酶标仪测量600 nm处的吸光度(OD)值,对比生长曲线,确定细菌个数。

1.3 细胞培养

将冻存的IPEC-1细胞置于37 ℃恒温水浴锅解冻,吸取1 mL细胞液于无菌EP管,加入1 mL 10%细胞完全培养基,离心,接着将细胞加入含有2 mL细胞完全培养基的25 cm2培养瓶中,摇晃均匀,置于5% CO2、37 ℃的培养箱中,每天更换1次培养基。当细胞贴壁覆盖率达到70%~80%后,对细胞进行传代培养,直至2~3代细胞状态稳定后用于正式试验。

1.4 细胞活力的测定

将细胞以1×10⁵个/mL的密度接种于96孔细胞培养板,分为4组:对照组(细胞先用PBS处理24 h,再用含PBS的无抗培养液处理2 h)、Que组(细胞先用Que处理24 h,再用含PBS的无抗培养液处理2 h)、ETEC K88组(细胞先用PBS处理24 h,再用含ETEC K88的无抗培养液处理2 h)、Que+ETEC K88组(细胞先用Que处理24 h,再用含ETEC K88的无抗培养液处理2 h),每组8个重复。用细胞完全培养基培养细胞至覆盖底部70%~80%后,先用PBS或10 μmol/L Que处理细胞24 h,再加入含PBS或5×10⁶ CFU/mL ETEC K88的无抗培养液处理2 h,然后用PBS清洗2遍,接着加入100 μL完全培养基(含10% CCK8),避光孵育1.5 h后,取出,使用自动酶标仪在450 nm波长下读取OD值。

1.5 细胞上清液中LDH活性的测定

将细胞以1×10⁵个/mL的密度接种于12孔细胞培养板,分为4个组,每组4个重复,分组处理同1.4。处理结束后收集上清液,根据LDH试剂盒说明书检测LDH活性。

1.6 细胞中炎性因子含量的测定

将细胞以1×10⁵个/mL的密度接种于6孔细胞培养板,分为4个组,每组4个重复,分组处理同1.4。处理结束后收集细胞,按照ELISA试剂盒说明书步骤检测IL-1β、IL-18和TNF-α含量。

1.7 细胞凋亡和焦亡信号通路相关基因mRNA表达水平的测定

将细胞以1×10⁵个/mL的密度接种于12孔细胞培养板,分为4个组,每组4个重复,分组处理同1.4。处理结束后弃培养液,用PBS清洗细胞2次,每孔加入500 μL RNAiso Plus裂解液,室温静置3 min,然后吹打吸取细胞裂解液于1.5 mL无菌EP管中,放入-80 ℃冰箱保存待测。按照RNAiso Plus说明书提取细胞总RNA,使用PCR仪将总RNA反转录成cDNA,并在-20 ℃保存备用。以β-肌动蛋白(β-actin)为参比基因,使用实时荧光定量PCR检测细胞凋亡和焦亡信号通路相关基因FasLCaspase-3、Caspase-9、BaxBcl-xLNLRP3、Caspase-1、IL-18、凋亡相关斑点样蛋白(ASC)、GSDMD、NLR家族CARD结构域4(NLRC4)的mRNA表达水平。PCR引物序列见表1
表1 PCR引物序列

Table 1 Primer sequences for PCR

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
产物大小
Product size/bp
凋亡相关因子配体
FasL
F:TCCTCTTCCTCTTGCCATAGA
R:CGAAGCCATTCCGAGTCTG
BH168716.1 148
半胱氨酸天冬氨酸蛋白酶-3
Caspase-3
F:ACCCAAACTTTTCATAATTCA
R:ACCAGGTGCTGTAGAATATGC
NM_214131.1 145
半胱氨酸天冬氨酸蛋白酶-9
Caspase-9
F:AACCAGTAGACAAGCAACAA
R:TGAATCCTCCAGAACCAATG
XM_013998997.2 209
B细胞淋巴瘤-2相关X蛋白
Bax
F:CTACCAAGAAGTTGAGCGAGTG
R:CCAGTTGAAGTTGCCGTCAG
XM_003127290.5 158
B细胞淋巴瘤-xL
Bcl-xL
F:GCAACCCATCCTGGCACCT
R:TCAAACTCATCGCCCGCCT
XM_021077302.1 136
含pyrin结构域NOD样受体家族3
NLRP3
F:TCCACACTTCTGACTTCTARAC
R:CCTGCTTCCACCACTACT
NM_001256770.2 241
半胱氨酸天冬氨酸蛋白酶-1
Caspase-1
F:GAAGGAGAAGAGGAGGCTGTT
R:AGATTGTGAACCTGTGGAGAGT
NM-214162.1 263
白细胞介素-18
IL-18
F:AGTAACCATCTCTGTGCAGTGT
R:TCTTATCATCATGTCCAGGAAC
AF191088.1 155
凋亡相关斑点样蛋白
ASC
F:CTTGTGCTGCGTGACATC
R:TGCCTGGTACTGCTCTTC
AB873106.1 237
消皮素D
GSDMD
F:GTGTTGACCTGTCCATCTG
R:TGACCTCCACCTCCTTCT
XM_021090506.1 351
NLR家族CARD结构域4
NLRC4
F:GTCCAATGGGAGGGACATGAA
R:GAATCCCGCTCGACCTTCTC
XM_021088408.1 162
β-肌动蛋白
β-actin
F:TGCGGGACATCAAGGAGAAG
R:AGTTGAAGGTGGTCTCGTGG
AF017079.1 194

1.8 统计方法

试验数据采用SPSS 23.0软件进行2×2因子分析,模型主效应包括Que和ETEC K88以及两者互作效应。当Que与ETEC K88有互作效应时,采用Duncan氏法进行多重比较。P<0.05时认为有显著性差异。

2 结果

2.1 Que对ETEC K88刺激细胞损伤的影响

图1-A可知,ETEC K88刺激显著降低了细胞活力(P<0.05)。Que与ETEC K88对细胞活力的影响无互作效应(P>0.05)。与对照组相比,Que可显著提高细胞活力(P<0.05);与ETEC K88组相比,Que可显著提高ETEC K88刺激细胞活力(P<0.05)。由图1-B可知,与对照组相比,ETEC K88刺激显著提高了细胞上清液中LDH活性(P<0.05)。Que与ETEC K88对细胞上清液中LDH活性的影响存在互作效应(P<0.05)。与对照组相比,Que对细胞上清液中LDH活性无显著影响(P>0.05);而与ETEC K88组相比,Que可显著降低ETEC K88刺激细胞上清液中LDH活性(P<0.05)。
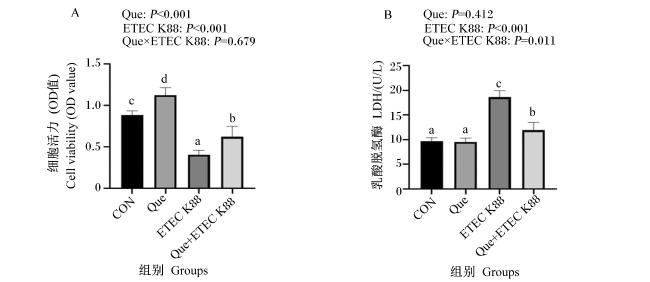
图1 Que对ETEC K88刺激细胞活力和细胞上清液中LDH活性的影响

CON:对照;Que:槲皮素;ETEC K88:产肠毒素大肠杆菌K88 。数据柱形标注不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of Que on cell viability and LDH activity in supernatants of cells stimulated by ETEC K88

CON: control; Que: quercetin; ETEC K88: enterotoxigenic Escherichia coli K88. Value columns with different small letters mean significant difference (P<0.05). The same as below.

2.2 Que对ETEC K88刺激细胞中炎性因子含量的影响

图2可知,与对照组相比,ETEC K88刺激显著提高了细胞中炎性因子IL-1β、IL-18和TNF-α的含量(P<0.05)。Que与ETEC K88对细胞中IL-1β、IL-18和TNF-α含量的影响存在互作效应(P<0.05)。与对照组相比,Que可显著降低细胞中IL-1β的含量(P<0.05),对IL-18和TNF-α的含量无显著影响(P>0.05);而与ETEC K88组相比,Que可显著降低ETEC K88刺激细胞中IL-1β、IL-18和TNF-α的含量(P<0.05)。
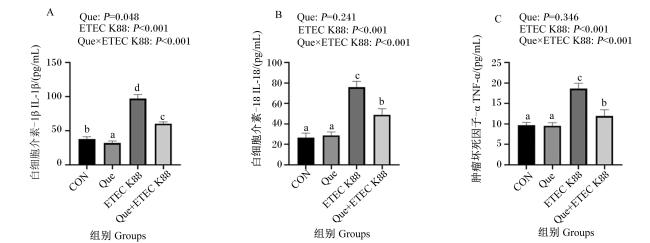
图2 Que对ETEC K88刺激细胞中炎性因子含量的影响

Fig.2 Effects of Que on inflammatory factor contents in cells stimulated by ETEC K88

2.3 Que对ETEC K88刺激细胞中细胞凋亡信号通路相关基因表达的影响

图3可知,与对照组相比,ETEC K88刺激显著提高了细胞中细胞凋亡信号通路相关基因FasLCaspase-3、Caspase-9和Bax的mRNA表达水平(P<0.05),显著降低了Bcl-xL的mRNA表达水平(P<0.05)。Que与ETEC K88对细胞中FasLCaspase-9、BaxBcl-xL的mRNA表达水平的影响存在互作效应(P<0.05)。与对照组相比,Que对细胞中FasLCaspase-9、BaxBcl-xL的mRNA表达水平无显著影响(P>0.05);而与ETEC K88组相比,Que显著降低了ETEC K88刺激细胞中FasLCaspase-9和Bax的mRNA表达水平(P<0.05),显著提高了Bcl-xL的mRNA表达水平(P<0.05)。
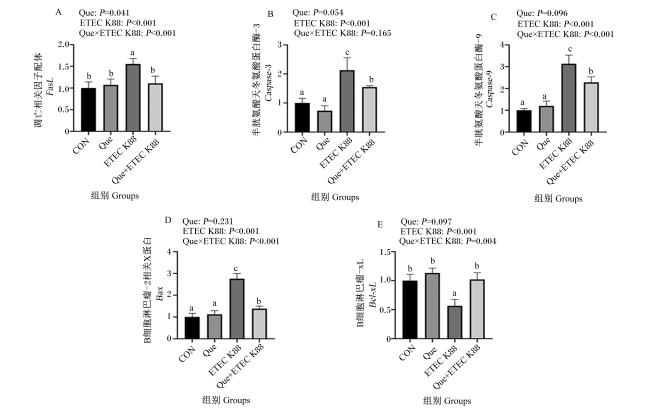
图3 Que对ETEC K88刺激细胞中细胞凋亡信号通路相关基因表达的影响

Fig.3 Effects of Que on expression of genes related to apoptosis signaling pathway in cells stimulated by ETEC K88

2.4 Que对ETEC K88刺激细胞中细胞焦亡信号通路相关基因表达的影响

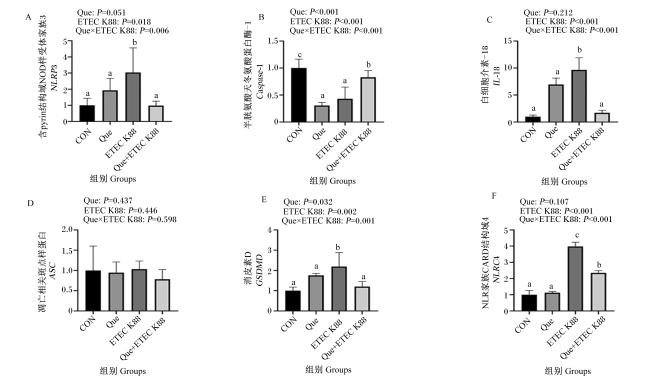
图4可知,与对照组相比,ETEC K88刺激显著提高了细胞中细胞焦亡信号通路相关基因NLRP3、IL-18、GSDMDNLRC4的mRNA表达水平(P<0.05),显著降低了Caspase-1的mRNA表达水平(P<0.05)。Que与ETEC K88对细胞中NLRP3、Caspase-1、IL-18、GSDMDNLRC4的mRNA表达水平的影响存在互作效应(P<0.05)。与对照组相比,Que显著降低了细胞中Caspase-1的mRNA表达水平(P<0.05),对NLRP3、IL-18、GSDMDNLRC4的mRNA表达水平无显著影响(P>0.05);而与ETEC K88组相比,Que显著提高了ETEC K88刺激细胞中Caspase-1的mRNA表达水平(P<0.05),显著降低了NLRP3、IL-18、GSDMDNLRC4的mRNA表达水平(P<0.05)。
图4 Que对ETEC K88刺激细胞中细胞焦亡信号通路相关基因表达的影响

Fig.4 Effects of Que on expression levels of genes related to pyroptosis signaling pathway in cells stimulated by ETEC K88

3 讨论

3.1 Que对ETEC K88诱导的细胞损伤的影响

细胞活力通常用来反映细胞的生存状态和功能活性。当细胞发生损伤时,细胞活力降低。Que是一种天然植物提取物,具有多种生物学活性和功能,包括抗氧化和抗菌功能[13]。本试验结果表明,Que可缓解ETEC K88刺激导致的IPEC-1细胞活力降低。与此类似的是,Que可缓解坏死性凋亡抑制剂Necrostatin-1诱导的MCF-7人癌乳腺癌细胞活力的降低[16]。Lin等[17]的研究也表明,Que可缓解脂多糖(LPS)诱导的大鼠心肌细胞活力的降低。总之,Que可缓解ETEC K88诱导的IPEC-1细胞活力降低,从而发挥对IPEC-1细胞的保护作用。
LDH是一种存在于细胞质中的酶,当细胞受到外界刺激发生损伤时,LDH就会释放到细胞外,因此细胞上清液中LDH活性升高往往意味着细胞发生损伤。本试验结果表明,Que可缓解ETEC K88刺激导致的细胞上清液中LDH活性的升高。研究表明,5 μmol/L的Que可抑制过氧化氢诱导的血管内皮细胞上清液中LDH活性升高,缓解细胞损伤[18]。此外,Que还可缓解氧/葡萄糖剥夺诱导的少突胶质细胞前体细胞上清液中LDH活性的升高,保护细胞免受损伤[19]。这些结果与本试验的结果一致。综上所述,Que可缓解ETEC K88刺激导致的IPEC-1细胞损伤。

3.2 Que对ETEC K88诱导的细胞炎症反应的影响

TNF-α、IL-1β和IL-18是典型的细胞炎性因子,其含量的升高往往意味着炎症反应的发生。本研究结果表明,Que可显著缓解ETEC K88诱导的IPEC-1细胞中炎性因子含量的上升。目前,已有报道证明Que具有抗炎作用,其体现在Que可减轻LPS诱导的蛋鸡肠道炎症[20]。此外,Sul等[21]的研究表明,Que可通过抑制烟酰胺腺嘌呤二核苷酸磷酸氧化酶2的产生来减少活性氧诱导的肺上皮A549细胞的炎症反应。这些与本试验的结果一致。综上所述,Que可缓解ETEC K88诱导的IPEC-1细胞炎症反应。

3.3 Que对ETEC K88诱导的细胞凋亡信号通路的影响

细胞凋亡主要有细胞膜上的死亡受体途径和胞质内的线粒体途径[4]。细胞膜上的死亡受体途径起始于Fas受体与FasL的结合,随后形成死亡诱导信号复合体(death-inducing signaling complex,DISC),激活Caspase,发生Caspase联级反应,最终导致细胞凋亡[5]。胞质内的线粒体途径则依赖于线粒体膜通透性转换孔的开放与关闭,其中,促凋亡蛋白Bax可通过促进线粒体膜通透性转换孔的开放诱导细胞凋亡的发生,而抗凋亡蛋白Bcl-xL则可以通过抑制线粒体膜通透性转换孔的开放抑制细胞凋亡[4]。本试验结果显示,Que可显著缓解ETEC K88诱导的IPEC-1细胞促凋亡因子的mRNA表达水平的上升和抗凋亡因子的mRNA表达水平的下降。Que已被证明与细胞凋亡存在密切的关系,例如,Que可降低LPS和玉米赤霉烯酮诱导的IPEC-J2细胞Bax基因的表达水平,抑制细胞凋亡[22]。这与本试验结果一致。总之,Que可缓解ETEC K88诱导的IPEC-1细胞凋亡信号通路的激活。

3.4 Que对ETEC K88诱导的细胞焦亡信号通路的影响

细胞焦亡有依赖炎性小体激活的经典通路和不依赖炎性小体激活的非经典通路[10]。其中,经典途径依赖于ASC募集pro-Caspase-1,组装炎性小体,NLRC4激活Caspase-1,活化的Caspase-1剪切炎性因子前体pro-IL-1β和pro-IL-18,促进IL-1β和IL-18的成熟与释放,招募更多的炎症细胞聚集,最终诱导细胞焦亡。本课题组前期的一篇文章报道了Que与ETEC K88诱导的细胞焦亡的关系[23]。由本试验结果可知,Que可缓解ETEC K88诱导的IPEC-1细胞中IL-1β和IL-18含量的升高,而Que可显著抑制ETEC K88诱导的IPEC-1细胞中焦亡信号通路相关基因的表达。因此,本研究证明了Que可缓解ETEC K88诱导的IPEC-1细胞焦亡信号通路的激活。

4 结论

Que可缓解ETEC K88诱导的IPEC-1细胞损伤和炎症反应,抑制细胞凋亡和焦亡信号通路的激活。
[1]
袁万哲, 何孔旺, 陆承平, 等. 产肠毒素性大肠杆菌主要毒力因子的研究进展[J]. 动物医学进展, 2005, 26(2):6-9.

YUAN W Z, HE K W, LU C P, et al. Progress of study on major virulence factors in enterotoxigenic Escherichia coli[J]. Progress in Veterinary Medicine, 2005, 26(2):6-9. (in Chinese)

[2]
刘春艳, 唐青松, 杨必婧, 等. 产肠毒素大肠杆菌对断奶仔猪肠道形态、紧密连接蛋白及细胞外基质的影响[J]. 中国畜牧兽医, 2023, 50(7):2697-2706.

DOI

LIU C Y, TANG Q S, YANG B J, et al. Effects of enterotoxigenic Escherichia coli on intestinal morphology,tight junction protein and extracellular matrix of weaned piglets[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(7):2697-2706. (in Chinese)

[3]
WEN C Y, ZHANG H, GUO Q P, et al. Engineered Bacillus subtilis alleviates intestinal oxidative injury through Nrf2-Keap1 pathway in enterotoxigenic Escherichia coli (ETEC) K88-infected piglet[J]. Journal of Zhejiang University:Science B, 2023, 24(6):496-509.

[4]
李超, 伏圣博, 刘华玲, 等. 细胞凋亡研究进展[J]. 世界科技研究与发展, 2007, 29(3):45-53.

LI C, FU S B, LIU H L, et al. Research advances on apoptosis[J]. World Scientific and Technological Research and Development, 2007, 29(3):45-53. (in Chinese)

[5]
JIA L T, CHEN S Y, YANG A G. Cancer gene therapy targeting cellular apoptosis machinery[J]. Cancer Treatment Reviews, 2012, 38(7):868-876.

[6]
李敏, 林俊. 细胞凋亡途径及其机制[J]. 国际妇产科学杂志, 2014, 41(2):103-107.

LI M, LIN J. The apoptotic pathways and their mechanisms[J]. Journal of International Obstetrics and Gynecology, 2014, 41(2):103-107. (in Chinese)

[7]
ZHAO L X, ZHANG H N, JIANG P, et al. Isoliquiritin counteracts cadmium-induced intestinal damage in mice through enhancing intestinal barrier function and inhibiting apoptosis[J]. Food and Chemical Toxicology, 2024,186:114544.

[8]
TIAN J Q, JIANG Q, BAO X T, et al. Plant-derived squalene supplementation improves growth performance and alleviates acute oxidative stress-induced growth retardation and intestinal damage in piglets[J]. Animal Nutrition, 2023,15:386-398.

[9]
GILAD D, GALLOWAY N L K, XIN G, et al. Cell death by pyroptosis drives CD4 T-cell depletion in HIV-1 infection[J]. Nature, 2014, 505(7484):509-514.

[10]
MAN S M, KARKI R, KANNEGANTI T D. Molecular mechanisms and functions of pyroptosis,inflammatory caspases and inflammasomes in infectious diseases[J]. Immunological Reviews, 2017, 277(1):61-75.

[11]
KNODLER L A, CROWLEY S M, SHAM H P, et al. Noncanonical inflammasome activation of Caspase-4/Caspase-11 mediates epithelial defenses against enteric bacterial pathogens[J]. Cell Host & Microbe, 2014, 16(2):249-256.

[12]
CHEN Z H, ZHANG Y D, LIN R Q, et al. Cronobacter sakazakii induces necrotizing enterocolitis by regulating NLRP3 inflammasome expression via TLR4[J]. Journal of Medical Microbiology, 2020, 69(5):748-758.

[13]
孙涓, 余世春. 槲皮素的研究进展[J]. 现代中药研究与实践, 2011, 25(3):85-88.

SUN J, YU S C. Research progress of quercetin[J]. Research and Practice on Chinese Medicines, 2011, 25(3):85-88. (in Chinese)

[14]
梅华迪, 李袁飞, 田琦, 等. 槲皮素对断奶仔猪生长性能、营养物质表观消化率、血清生化指标、粪便微生物及其代谢产物的影响[J]. 动物营养学报, 2022, 34(5):2884-2895.

DOI

MEI H D, LI Y F, TIAN Q, et al. Effects of quercetin on growth performance,nutrient apparent digestibility,serum biochemical indices,fecal microorganisms and their metabolites of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):2884-2895. (in Chinese)

[15]
张卫辉, 朱秋凤, 张永静, 等. 槲皮素对仔猪生长性能、肠道抗氧化及免疫相关基因表达的影响[J]. 河南农业大学学报, 2023, 57(1):136-142.

ZHANG W H, ZHU Q F, ZHANG Y J, et al. Effects of quercetin on growth performance and intestinal antioxidant capacity and immune related gene expression in piglets[J]. Journal of Henan Agricultural University, 2023, 57(1):136-142. (in Chinese)

[16]
KHORSANDI L, ORAZIZADEH M, NIAZVAND F, et al. Quercetin induces apoptosis and necroptosis in MCF-7 breast cancer cells[J]. Bratislavske Lekarske Listy, 2017, 118(2):123-128.

[17]
LIN X, ZHAO A A, CHEN Q F, et al. Quercetin ameliorates ferroptosis of rat cardiomyocytes via activation of the SIRT1/p53/SLC7A11 signaling pathway to alleviate sepsis-induced cardiomyopathy[J]. International Journal of Molecular Medicine, 2023, 52(6):116.

[18]
林蓉, 刘俊田, 李旭, 等. 槲皮素对血管内皮细胞损伤的保护作用[J]. 中国循环杂志, 2000, 15(5):304-305.

LIN R, LIU J T, LI X, et al. Protection of vascular endothelial cells from hydrogen peroxide-induced injury by quercetin[J]. Chinese Circulation Journal, 2000, 15(5):304-305. (in Chinese)

[19]
WANG X Q, YAO R Q, LIU X, et al. Quercetin protects oligodendrocyte precursor cells from oxygen/glucose deprivation injury in vitro via the activation of the PI3K/Akt signaling pathway[J]. Brain Research Bulletin, 2011, 86(3/4):277-284.

[20]
FENG J, LI Z R, MA H, et al. Quercetin alleviates intestinal inflammation and improves intestinal functions via modulating gut microbiota composition in LPS-challenged laying hens[J]. Poultry Science, 2023, 102(3):102433.

[21]
SUL O J, RA S W. Quercetin prevents LPS-induced oxidative stress and inflammation by modulating NOX2/ROS/NF-κB in lung epithelial cells[J]. Molecules, 2021, 26(22):6949.

[22]
WANG C Q, FU Y R, WANG R Q, et al. Quercetin attenuates the combined effects of zearalenone and lipopolysaccharide on IPEC-J2 cell injury through activating the Nrf2 signaling pathway[J]. Toxins, 2023, 15(12):679.

[23]
XIAO K, ZHOU M H, LV Q Q, et al. Protocatechuic acid and quercetin attenuate ETEC-caused IPEC-1 cell inflammation and injury associated with inhibition of necroptosis and pyroptosis signaling pathways[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):5.

DOI PMID

文章导航

/