综述

奶牛酮病代谢物变化、候选基因及相关代谢途径

  • 曹佩佩 ,
  • 马敏 ,
  • 户春丽 ,
  • 马燕芬 , *
展开
  • 宁夏大学动物科技学院,银川 750021
* 马燕芬,研究员,博士生导师,E-mail:

曹佩佩(1998—),河南南阳人,硕士研究生,研究方向为动物营养调控与免疫。E-mail:

Copy editor: 武海龙

收稿日期: 2024-04-25

  网络出版日期: 2024-11-09

基金资助

宁夏自然科学基金项目(2023AAC03042)

宁夏反刍动物营养科技创新团队(2024CXTD008)

宁夏留学回国人员创新创业项目(2023)

Metabolite Changes, Candidate Genes and Related Metabolic Pathways of Ketosis in Dairy Cows

  • CAO Peipei ,
  • MA Min ,
  • HU Chunli ,
  • MA Yanfen , *
Expand
  • School of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
* professor, E-mail:

Received date: 2024-04-25

  Online published: 2024-11-09

摘要

酮病作为常见的代谢性疾病,会降低奶牛产奶量和繁殖性能,增加其他围产期疾病的患病风险,对乳制品行业造成重大经济损失。酮体是奶牛酮病的重要代谢信号传导介质,酮病的发生涉及脂质代谢、氨基酸代谢、糖代谢等多种代谢途径和基因组改变,但对酮病奶牛体内代谢物含量变化与候选基因之间的相关性缺乏了解。本文综述了酮体对奶牛机体内代谢的改变,并筛选酮病靶向基因,结合候选基因与代谢途径分析,有助于阐明奶牛酮病发病的潜在分子机制,为生产实践中快速精准诊断奶牛酮病提供技术支撑。

本文引用格式

曹佩佩 , 马敏 , 户春丽 , 马燕芬 . 奶牛酮病代谢物变化、候选基因及相关代谢途径[J]. 动物营养学报, 2024 , 36(11) : 6864 -6871 . DOI: 10.12418/CJAN2024.585

Abstract

Ketosis as a common metabolic disease can reduce the milk yield and reproductive performance of dairy cows, increase the risk of other perinatal diseases, and cause significant economic losses to the dairy industry. Ketone body is an important metabolic signaling mediator of ketone sickness in dairy cows. The occurrence of ketosis involves many metabolic pathways and genomic changes, including lipid metabolism, amino acid metabolism and sugar metabolism, but the correlation between metabolite content changes and candidate genes in ketosis cows is lacking. This review summarizes the changes of ketone body metabolism in dairy cows, and the screening of ketosis targeted genes, combining candidate genes and metabolic pathway analysis can help to elucidate the potential molecular mechanism of ketosis in dairy cows, and provide technical support for the rapid and accurate diagnosis of ketosis in dairy cows in production practice.

酮病是高产奶牛产后过渡期常见的代谢性疾病,多表现为产奶量下降、体重减轻等。酮病的发生和宿主代谢途径的改变与各种代谢性发病密切相关,可能会造成奶牛乳腺炎患病率增加和繁殖性能下降,以及增加其他代谢性疾病如跛行、子宫炎、胎盘滞留和低钙血症等的发病率和奶牛淘汰风险,给乳品行业带来巨大的经济损失[1]。泌乳早期奶牛患酮病风险高达40%以上,大多数发生在泌乳启动后的1~7周。奶牛酮病的临床特征为酮体如β-羟基丁酸(β-hydroxybutyric acid,BHBA)、乙酰乙酸和丙酮含量增加,葡萄糖含量降低[2-3]。BHBA作为评估酮病的典型指标,是增加奶牛产后疾病患病的危险因素。因此,探寻酮病奶牛代谢特征、阐明酮病发病机制、降低奶牛酮病及其产生的其他疾病发病率至关重要。通过整合近几年相关文献,梳理出酮病奶牛机体内代谢物变化特征,并找寻精准的诊断方法,将有助于提高奶牛酮病诊断的准确性。本文通过筛选奶牛酮病候选基因,挖掘酮病候选基因与代谢物含量变化之间的相关性,解析候选基因与酮病奶牛氨基酸、脂质和碳水化合物等营养物质代谢中相关代谢物的关系,有助于解析奶牛酮病发病潜在机制,为奶牛酮病早期诊断和防控提供技术支撑。

1 奶牛酮病

酮病是一种常见的高产奶牛营养代谢性疾病,主要与围产期奶牛体脂动员相关,奶牛临床酮病(clinical ketosis,CK)和亚临床酮病(subclinical ketosis,SCK)的患病率分别为4%~10%和10%~50%[4]。酮病通常发生在奶牛泌乳早期,以亚临床酮病形式先出现,其特征是血液、尿液或牛奶中含有过量的BHBA、乙酰乙酸和丙酮,但没有高酮血症的临床症状。一些奶牛亚临床酮病可发展成为临床酮病,具有明显的临床症状。BHBA、乙酰乙酸和丙酮含量与体内过量脂肪动员的β-氧化不完全有关[5-6],尽管BHBA与其他酮体之间的关系存在潜在差异,但BHBA仍然是评估奶牛酮病的黄金标准。目前判定健康、亚临床酮病和临床酮病奶牛血液中BHBA阈值分别为BHBA含量<1.2 mmol/L、1.2 mmol/L≤BHBA含量<3.0 mmol/L和BHBA含量≥3.0 mmol/L[7]。血浆非酯化脂肪酸(nonestesterified fatty acid,NEFA)含量是脂质动员的主要指标,当NEFA含量>0.4 mmol/L时,代表奶牛机体开始经历能量负平衡和脂质动员[2]。此外,酮病还会通过增加奶牛其他疾病的发病率,严重影响奶牛机体健康。
亚临床酮病和临床酮病涉及包括脂肪酸代谢、氨基酸代谢、糖酵解、糖异生和磷酸戊糖途径等许多代谢途径的紊乱[1]。丙酮酸作为糖异生底物,通过糖异生转化为葡萄糖,其他糖异生如氨基酸和三羧酸(tricarboxylic acid,TCA)循环的中间产物也可通过生产草酰乙酸(oxaloacetic acid,OAA)用作糖异生底物,如果丙酸不足以作为糖异生底物进行TCA循环,肝脏中过量的NEFA就会不完全氧化产生酮体,从而导致酮病[8-9]。酮病还分为Ⅰ型酮病和Ⅱ型酮病,Ⅰ型酮病常发生在奶牛产后3~6周,产奶的能量需求最高;Ⅱ型酮病可导致奶牛脂肪肝等并发症,主要是由于奶牛在干奶期过量进食大量精饲料导致肝脏中葡萄糖和胰岛素含量升高所致[10]

2 奶牛酮病代谢物变化

2.1 生酮底物

生酮主要发生在奶牛肝脏线粒体基质中,其速率与总脂肪氧化成正比[10]。在酰基链跨线粒体膜转运和β-氧化后,线粒体亚型催化乙酰乙酰辅酶A(acetoacetyl-CoA,AcAc-CoA)和乙酰辅酶A缩合,生成羟甲基戊二酰辅酶A(hydroxymethyl glutaryl CoA,HMG-CoA),裂解后释放乙酰辅酶A和乙酰乙酸(acetoacetic acid,AcAc),AcAc被磷脂酰胆碱(phosphatidylcholine,PC)依赖性线粒体β-羟基丁酸脱氢酶(β-hydroxybutyrate dehydrogenase,BDH)还原为BHBA[11]。生酮底物包括脂肪酸和氨基酸,产生酮体的乙酰辅酶A底物主要来源于脂肪酸,在碳水化合物供应减少时,丙酮酸通过ATP依赖性羧化为OAA或苹果酸(malic acid,MAL)进入肝脏TCA循环[12-13]。乙酰辅酶A变构激活丙酮酸羧化酶和丙酮酸脱氢酶激酶,从而激活代谢调控机制,增加代谢物进入TCA循环。生酮氨基酸如亮氨酸(leucine,Leu)、异亮氨酸(isoleucine,Ile)和赖氨酸(lysine,Lys)等则通过氧化脱氨进入TCA循环,生酮氨基酸脱氨后在乙酰辅酶A的参与下转化为乙酰乙酸[14-15]。苯丙氨酸(phenylalanine,Phe)既是糖原氨基酸又是生酮氨基酸,具有免疫抑制作用,可抑制T淋巴细胞的增殖,Leu和缬氨酸(valine,Val)参与免疫细胞对蛋白质合成的调节和细胞因子的释放[16]。有研究发现,羧甲基壳聚糖负载的还原谷胱甘肽能通过增强糖异生和减少氨基酸中的生酮作用来缓解亚临床酮病[17]

2.2 机体代谢物

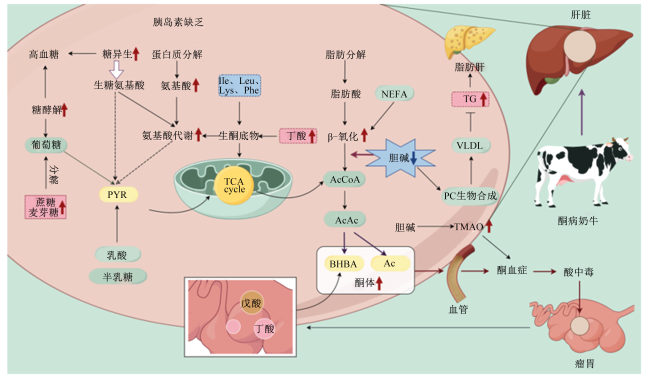
酮病临床特征为奶牛机体内含有较高的酮体含量和较低的葡萄糖含量[2-3],较低的葡萄糖含量与低胰岛素血症有关,低胰岛素血症会动员奶牛机体内脂肪酸,进而增加BHBA、乙酰乙酸和丙酮含量。挥发性脂肪酸如乙酸、丙酸、丁酸和戊酸等约占反刍动物能量来源的70%,酮病奶牛中26%~33%丁酸和18%~24%戊酸被瘤胃吸收后转化为BHBA[18],丁酸也被认为是生酮前体物质,所以导致酮病奶牛瘤胃中含有过高的丁酸和戊酸含量[19]。瘤胃中的异丙醇接收来自中枢神经系统的酮病信号,而酮病与瘤胃液中异丙醇的存在有关,瘤胃中较高的异丙醇含量也代表着奶牛酮病的发生[19]。酮病奶牛患有瘤胃酸中毒时会增加2,3-丁二醇和3-羟基异丁酸酯含量,降低二甲基砜和甲酸盐含量,2,3-丁二醇在酮病奶牛发生瘤胃酸中毒条件下由2-丁酮通过乙酰脲生成[20]。有研究发现,血清中3-羟基异丁酸含量与酮病奶牛瘤胃酸中毒水平直接相关,主要由Val产生[21],而Val或其他支链氨基酸(branched-chain amino acids,BCAAs)如Ile和Leu含量增加则会导致胰岛素抵抗,胰岛素抵抗则会抑制蛋白质合成[15]。高酮血症奶牛BCAAs含量的增加表明高酮血症奶牛可能与BHBA含量成比例发展成胰岛素抵抗[20]。此外,高BHBA含量或高酮血症会导致胆碱发生改变,胆碱可转化为三甲胺-N-氧化物(trimethylamine-N-oxide,TMAO),而TMAO含量的增加与高酮血症有关,TMAO含量可以减少糖酵解并增强脂肪酸的β-氧化,TMAO还是氧化应激的标志物[22]。胆碱还可乳化成胆固醇并以PC的形式从肝脏释放[17]。PC作为反刍动物中的主要磷脂,对细胞膜结构、游离脂肪酸代谢、脂质吸收、细胞信号转导和脂蛋白合成至关重要。酮病发病前期和患有酮病奶牛机体中PC含量较低可能是宿主大量利用PC缓解脂肪肝所致[23],而胆碱含量的显著降低可能会增加奶牛发生脂肪肝的风险,但胆碱途径的改变可能不是PC生物合成不足的主要原因,可能是磷酯酰乙醇胺N-甲基转移酶(phosphatidylethanolamine N-methyltransferase,PEMT)的第2种途径,即PC生物合成的内源性途径在酮病奶牛中被抑制,降低极低密度脂蛋白(very low density lipoprotein,VLDL)的分泌,进一步促进甘油三酯(triglyceride,TG)在肝脏中的积累,从而影响肝功能[24]。酮病奶牛机体代谢物变化途径详见图1
图1 酮病奶牛机体代谢物变化途径

PYR:丙酮酸 pyruvic acid;Leu:亮氨酸 leucine;Ile:异亮氨酸 leucine;Lys:赖氨酸 lysine;Phe:苯丙氨酸 phenylalanine;TCA cycle:三羧酸循环 tricarboxylic acid cycle;NEFA:非酯化脂肪酸 nonestesterified fatty acid;AcCoA:乙酰辅酶A acetyl-CoA;AcAc:乙酰乙酸 acetoacetic acid;BHBA:β-羟基丁酸 β-hydroxybutyric acid;Ac:丙酮 acetone;TG:甘油三酯 triglyceride;VLDL:极低密度脂蛋白 very low density lipoprotein;PC:磷脂酰胆碱 phosphatidylcholine;TMAO:三甲胺-N-氧化物 trimethylamine-N-oxide。

Fig.1 Metabolite change pathways in body of ketotic cows[14-24]

3 奶牛酮病候选基因及相关代谢途径

3.1 酮病候选基因

神经酪氨酸激酶受体2(neurotrophic tyrosine kinase receptor type 2,NTRK2)编码酪氨酸蛋白激酶受体B(tyrosine kinase receptor B,TrkB)是一种脑源性神经营养因子(brain-derived neurotrophic factor,BDNF),在细胞质溶胶和脂肪细胞的质膜上被鉴定出来[25],被认为是Ⅱ型酮病的关键基因,NTRK2在Ⅱ型酮病奶牛皮下白色脂肪组织(subcutaneous white adipose tissue,sWAT)中下调[26]。溶质载体家族蛋白26成员6(solute carrier family 26 member 6,SLC26A6)与亚临床酮病有关[27],SLC26A6也被称为假定的阴离子转运蛋白-1(putative anion transporter-1,PAT-1),是一种编码参与转运氯化物、草酸盐、硫酸盐和碳酸氢盐的蛋白质。此外,在奶牛常染色体(bos taurus autosome,BTA)6上鉴定出的碳酸氢钠协同转运蛋白4-A4抗体(sodium bicarbonate co transporter 4-A4 antibody,SLC4A4)、Ras相关域家族成员6(Ras association domain family member 6,RASSF6)、鸟苷酸环化酶(guanylate cyclase,GC)、神经肽FF受体2(neuropeptide FF receptor 2,NPFFR2)、具有血小板反应蛋白1型基序3的ADAM金属肽酶(ADAM metallopeptidase with thrombospondin type 1 motif 3,ADAMTS3)和亚甲基四氢叶酸脱氢酶(methylenetetrahydrofolate dehydrogenase,MTHFD)等6个候选基因[28]均与奶牛酮病发病有关。SLC4A4是一种编码碳酸氢钠协同转运蛋白,参与调节碳酸氢盐的分泌、吸收和细胞内pH。RASSF6与泌乳期奶牛的亚临床酮病有关[27-28]。GC编码维生素D结合蛋白(vitamin D binding protein,DBP),是维生素D3的主要载体,属于功能性候选基因[29]。此外,酮病奶牛中还鉴定出BTA20(55~63 MB)位置候选基因进行性强直蛋白(progressive ankylosis protein,ANKH)、肌球蛋白Ⅹ(myosin Ⅹ,MYO10)和轴丝动力蛋白5抗体(dynein axonemal heavy chain 5,DNAH5)[28],这在先前的研究中并没有报道其与奶牛酮病或亚临床酮病相关,这个区域似乎是亚临床酮病的新区域。此外,奶牛BTA10、BTA13、BTA14和BTA25上的6个基因组区域均显示出与奶牛酮病相关,其中新发现的基因自噬相关蛋白14(autophagy-related protein 14,ATG14)、G蛋白信号调节因子6(regulator of G-protein signaling 6,RGS6)、胆固醇7α-羟化酶(cholesterol 7α-hydroxylase,CYP7A1)和丝裂原活化蛋白激酶3(mitogen-activated protein kinase 3,MAPK3)主要参与胰岛素代谢或脂质代谢[30]

3.2 酮病候选基因的代谢途径

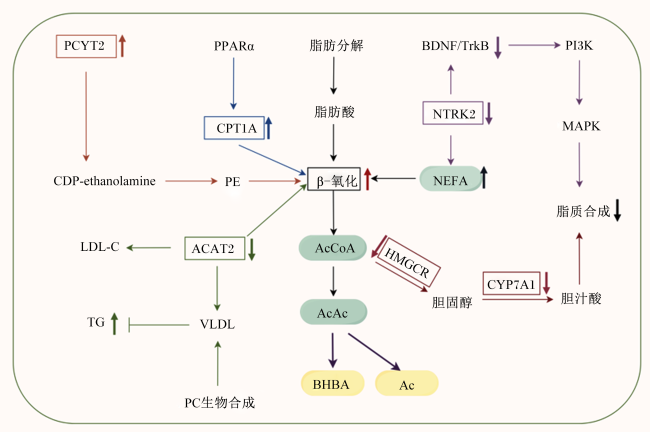
新基因组区域的发现有助于解释奶牛对临床酮病和亚临床酮病的易感性。NTRK2在白色脂肪组织中表达的降低可能会损害奶牛脂质代谢的神经调节,并破坏Ⅱ型酮病奶牛脂肪生成和脂肪分解之间的平衡[26]。BDNF/TrkB信号转导的减少可能会损害其下游通路如MAPK、磷酸肌醇3-激酶(phosphoinositide 3-kinase,PI3K)和磷脂酶Cγ(phospholipase Cγ,PLCγ)信号通路,导致Ⅱ型酮病奶牛的脂质合成减少和NEFA含量升高[26]。PI3K信号通路通过促进脂质合成和脂联素分泌,增加对胰岛素的敏感性,在预防Ⅱ型酮病中发挥积极作用[31];而MAPK信号通路调节胰岛素抵抗,与Ⅱ型酮病呈负相关[32-33](图2)。
图2 酮病候选基因代谢途径

PCYT2:磷酸胆碱胞苷基转移酶2 phosphoethanolamine cytidylyltransferase;CDP-ethanolamine:CDP乙醇胺;PE:磷脂酰乙醇胺 phosphatidylethanolamine;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferator-activated receptor α;CPT1A:肉碱棕榈酰转移酶1A carnitine palmitoyltransferase 1A;NTRK2:神经酪氨酸激酶受体2;TrkB:编码酪氨酸蛋白激酶受体B tyrosine kinase receptor;BDNF:脑源性神经营养因子 brain-derived neurotrophic factor;PI3K:磷酸肌醇3-激酶 phosphoinositide 3-kinase;MAPK:丝裂原活化蛋白激酶 mitogen-activated protein kinase;NEFA:非酯化脂肪酸 nonestesterified fatty acid;HMGCR:3-羟基-3-甲基戊二酰辅酶A还原酶 3-hydroxy-3-methylglutaryl-CoA reductase;CYP7A1:胆固醇7α-羟化酶 cholesterol 7α-hydroxylase;AcCoA:乙酰辅酶A acetyl-CoA;AcAc:乙酰乙酸 acetoacetic acid;BHBA:β-羟基丁酸 β- hydroxybutyric acid;Ac:丙酮 acetone;ACAT2:乙酰辅酶A乙酰转移酶2 recombinant acetyl coenzyme a acetyltransferase 2;TG:甘油三酯 triglyceride;LDL-C:低密度脂蛋白胆固醇 low-density lipoprotein-cholesterol;VLDL:极低密度脂蛋白 very low density lipoprotein;PC:磷脂酰胆碱 phosphatidylcholine。

Fig.2 Ketosis candidate gene metabolic pathway[10,26-27,30-31,34,37,40-42,46]

乙酰辅酶A乙酰转移酶2(recombinant acetyl coenzyme a acetyltransferase 2,ACAT2)和胰岛素样生长因子1(insulin like growth factor 1,IGF1)是与奶牛临床酮病和亚临床酮病相关的基因[27],ACAT2是与奶牛临床酮病相关的重要基因,负责编码脂肪酸β-氧化、脂质代谢、酮体合成和降解酶[10],若ACAT2在患有酮病的奶牛肝脏组织中表达降低,表明肝脏对脂肪酸的利用受损[34](图2)。奶牛体内酮体含量升高可能是通过负反馈降低ACAT2含量。IGF1已被提议作为奶牛酮病发病早期的生物标志物[35],IGF1表达水平与ACAT2表达水平显著相关,说明奶牛酮病发病和胰岛素抵抗可能相关[36]。磷酸胆碱胞苷基转移酶2(phosphoethanolamine cytidylyltransferase,PCYT2)是通过CDP-乙醇胺肯尼迪途径从乙醇胺和二酰基甘油生物合成磷脂酰乙醇胺的主要调节酶,PCYT2等位基因缺失可通过糖异生转变为葡萄糖,减少脂肪分解和脂肪酸氧化,增加肝糖原和脂质含量,导致脂肪变性和代谢综合征[37](图2)。SLC26A6与奶牛酮病、糖尿病、瘤胃酸中毒、胰岛素抵抗增加的表型相关,SLC26A6在rs184187143位点的基因突变可能是通过影响其阴离子交换功能,从而影响正常的乳酸或酮体释放或运输,rs184187143位点的SLC26A6基因多态性可作为糖尿病、酮病和酸中毒的理想标志物[27,38]
RASSF6诱导细胞凋亡,并在Ras被激活时具有增强的杀死细胞的能力,还可以控制炎性反应[39]。Nayeri等[28]鉴定出BTA6上的RASSF6基因与加拿大荷斯坦奶牛泌乳后期的亚临床酮病发病相关[27]。过氧化物酶体增殖物激活受体α(peroxisome proliferator-activated receptor α,PPARα)及其靶基因肉碱棕榈酰转移酶1A(carnitine palmitoyltransferase 1A,CPT1A)和肉碱棕榈酰转移酶2(carnitine palmitoyl transferase 2,CPT2)在亚临床酮病奶牛中表达水平升高,而在临床酮病奶牛中表达水平降低[40]。当奶牛血液中脂肪酸含量在补偿范围内,肝脏中PPARα及其靶基因CPT1A在产后1周内被诱导,导致亚临床酮病奶牛肝脏脂肪酸β-氧化的增加[41-42](图2)。然而高脂肪酸含量表现出脂毒性,并可能损害线粒体功能并进一步抑制脂肪酸的β-氧化[43-44];临床酮病奶牛PPARαCPT1ACPT2的表达降低可能是由于高脂肪酸和长链酰基辅酶A含量的抑制作用[45]。但在最新研究中发现,3-羟基-3-甲基戊二酰辅酶A还原酶(3-hydroxy-3-methylglutaryl-CoA reductase,HMGCR)表达水平降低[46],而HMGCR可以作用于乙酰辅酶A促进胆固醇合成,HMGCR表达水平降低可能是亚临床酮病通过下调奶牛中ACAT2的表达抑制胆固醇合成,增加TG合成,降低VLDL和低密度脂蛋白胆固醇(low-density lipoprotein-cholesterol,LDL-C)含量,最终导致TG和胆固醇代谢紊乱[46](图2)。CYP7A1负责胆汁酸的合成,参与脂质代谢和胆汁酸相关途径[30](图2)。胆汁酸通过与胆汁酸受体结合来激活相关的信号通路来调节宿主代谢和免疫功能[47]。最新研究表明,次生胆汁酸的存在可用于预测奶牛酮病的发生[48]。此外,潜在候选基因轴突蛋白3(neurexin 3,NRXN3)、类酰基辅酶A氧化酶(acyl-CoA oxidase like,ACOXL)、B-细胞淋巴瘤因子2样蛋白11(B-cell/cymphoma 2 like protein 11,BCL2L11)、3-羟基异丁酸脱氢酶(3-hydroxyisobutyrate dehydrogenase,HIBADH)、钾电压门控通道亚家族J成员1(potassium voltage-gated channel subfamily J member 1,KCNJ1)和蛋白多糖4(proteoglycan 4,PRG4)主要参与脂质代谢和葡萄糖代谢途径[49],其中HIBADH与泌乳早期酮病奶牛的能量负平衡有关,在严重能量负平衡的奶牛中表达下调[50]

4 小结

酮病作为一种常见的代谢性疾病,经历全身代谢过程的改变,并伴随有氧化应激、炎症,最终导致肝脏损伤。通过确定酮病奶牛机体中代谢物变化、分布差异和可能代谢途径,可以更好地揭示出奶牛酮病发病的病理代谢机制,有助于提高奶牛酮病检测的准确性。通过筛选酮病候选基因,整合酮病相关基因在代谢途径中发挥的作用,如通过靶向调控ACAT2、CPT1A等基因,可在关键代谢途径(β-氧化)中发挥作用,降低酮体的产生,进而提高奶牛健康,促进奶业高质量发展。
[1]
SHAHZAD K, LOPREIATO V, LIANG Y S, et al. Hepatic metabolomics and transcriptomics to study susceptibility to ketosis in response to prepartal nutritional management[J]. Journal of Animal Science and Biotechnology, 2019,10:96.

[2]
GONZÁLEZ F D, MUIÑO R, PEREIRA V, et al. Relationship among blood indicators of lipomobilization and hepatic function during early lactation in high-yielding dairy cows[J]. Journal of Veterinary Science, 2011, 12(3):251-255.

PMID

[3]
SUN L W, ZHANG H Y, WU L, et al. (1)H-nuclear magnetic resonance-based plasma metabolic profiling of dairy cows with clinical and subclinical ketosis[J]. Journal of Dairy Science, 2014, 97(3):1552-1562.

DOI PMID

[4]
SATOŁA A, BAUER E A. Predicting subclinical ketosis in dairy cows using machine learning techniques[J]. Animals :an Open Access Journal From MDPI, 2021, 11(7):2131.

[5]
COOKE R F, SILVA DEL RÍO N, CARAVIELLO D Z, et al. Supplemental choline for prevention and alleviation of fatty liver in dairy cattle[J]. Journal of Dairy Science, 2007, 90(5):2413-2418.

DOI PMID

[6]
ZHOU Z, LOOR J J, PICCIOLI-CAPPELLI F, et al. Circulating amino acids in blood plasma during the peripartal period in dairy cows with different liver functionality index[J]. Journal of Dairy Science, 2016, 99(3):2257-2267.

DOI PMID

[7]
SUTHAR V S, CANELAS-RAPOSO J, DENIZ A, et al. Prevalence of subclinical ketosis and relationships with postpartum diseases in European dairy cows[J]. Journal of Dairy Science, 2013, 96(5):2925-2938.

DOI PMID

[8]
CONTRERAS G A, SORDILLO L M. Lipid mobilization and inflammatory responses during the transition period of dairy cows[J]. Comparative Immunology,Microbiology and Infectious Diseases, 2011, 34(3):281-289.

[9]
DAROS R R, WEARY D M, VON KEYSERLINGK M A G. Invited review:risk factors for transition period disease in intensive grazing and housed dairy cattle[J]. Journal of Dairy Science, 2022, 105(6):4734-4748.

[10]
PUCHALSKA P, CRAWFORD P A. Multi-dimensional roles of ketone bodies in fuel metabolism,signaling,and therapeutics[J]. Cell Metabolism, 2017, 25(2):262-284.

[11]
BOCK H, FLEISCHER S. Preparation of a homogeneous soluble D-beta-hydroxybutyrate apodehydrogenase from mitochondria[J]. The Journal of Biological Chemistry, 1975, 250(15):5761-5774.

[12]
JEOUNG N H, RAHIMI Y, WU P F, et al. Fasting induces ketoacidosis and hypothermia in PDHK2/PDHK4-double-knockout mice[J]. The Biochemical Journal, 2012, 443(3):829-839.

[13]
MERRITT M E, HARRISON C, SHERRY A D, et al. Flux through hepatic pyruvate carboxylase and phosphoenolpyruvate carboxykinase detected by hyperpolarized 13C magnetic resonance[J]. Proceedings of the National Academy of Sciences of the United States of America, 2011, 108(47):19084-19089.

[14]
GRASSI I, NANNI C, ALLEGRI V, et al. The clinical use of PET with (11)C-acetate[J]. American Journal of Nuclear Medicine and Molecular Imaging, 2012, 2(1):33-47.

PMID

[15]
LIU S G, SUN Y M, ZHAO R, et al. Isoleucine increases muscle mass through promoting myogenesis and intramyocellular fat deposition[J]. Food & Function, 2021, 12(1):144-153.

[16]
STACHLEWITZ R F, LI X, SMITH S, et al. Glycine inhibits growth of T lymphocytes by an IL-2-independent mechanism[J]. Journal of Immunology, 2000, 164(1):176-182.

PMID

[17]
ZHAO C, BAI Y L, FU S X, et al. Metabolic alterations in dairy cows with subclinical ketosis after treatment with carboxymethyl chitosan-loaded,reduced glutathione nanoparticles[J]. Journal of Veterinary Internal Medicine/American College of Veterinary Internal Medicine, 2020, 34(6):2787-2799.

[18]
DOREAU M, OLLIER A, MICHALET D B. An atypical case of ruminal fermetations leading to ketosis in early lactating cows[J]. Revue de médecine vétérinaire, 2001, 152(4):301-306.

[19]
EOM J S, KIM H S, LEE S J, et al. Metabolic profiling of rumen fluid and milk in lactating dairy cattle influenced by subclinical ketosis using proton nuclear magnetic resonance spectroscopy[J]. Animals, 2021, 11(9):2526.

[20]
LISUZZO A, LAGHI L, FAILLACE V, et al. Differences in the serum metabolome profile of dairy cows according to the BHB concentration revealed by proton nuclear magnetic resonance spectroscopy (1H-NMR)[J]. Scientific Reports, 2022, 12(1):2525.

[21]
LANDAAS S. Accumulation of 3-hydroxyisobutyric acid,2-methyl-3-hydroxybutyric acid and 3-hydroxyisovaleric acid in ketoacidosis[J]. Clinica Chimica Acta:International Journal of Clinical Chemistry, 1975, 64(2):143-154.

[22]
XU C, SUN L W, XIA C, et al. (1)H-nuclear magnetic resonance-based plasma metabolic profiling of dairy cows with fatty liver[J]. Asian-Australasian Journal of Animal Sciences, 2016, 29(2):219-229.

DOI PMID

[23]
ZHANG G S, MANDAL R, WISHART D S, et al. A multi-platform metabolomics approach identifies urinary metabolite signatures that differentiate ketotic from healthy dairy Cows[J]. Frontiers in Veterinary Science, 2021,8:595983.

[24]
VANCE D E, WALKEY C J. Roles for the methylation of phosphatidylethanolamine[J]. Current Opinion in Lipidology, 1998, 9(2):125-130.

PMID

[25]
COLITTI M, LOOR J J, STEFANON B. Expression of NGF, BDNF and their receptors in subcutaneous adipose tissue of lactating cows[J]. Research in Veterinary Science, 2015,102:196-199.

[26]
NING M, ZHAO Y H, DAI D M, et al. Gene co-expression network and differential expression analyses of subcutaneous white adipose tissue reveal novel insights into the pathological mechanisms underlying ketosis in dairy cows[J]. Journal of Dairy Science, 2023, 106(7):5018-5028.

DOI PMID

[27]
SOARES R A N, VARGAS G, DUFFIELD T, et al. Genome-wide association study and functional analyses for clinical and subclinical ketosis in Holstein cattle[J]. Journal of Dairy Science, 2021, 104(9):10076-10089.

DOI PMID

[28]
NAYERI S, SCHENKEL F, FLEMING A, et al. Genome-wide association analysis for β-hydroxybutyrate concentration in milk in Holstein dairy cattle[J]. BMC Genetics, 2019, 20(1):58.

DOI PMID

[29]
OLSEN H G, KNUTSEN T M, LEWANDOWSKA-SABAT A M, et al. Fine mapping of a QTL on bovine chromosome 6 using imputed full sequence data suggests a key role for the group-specific component (GC) gene in clinical mastitis and milk production[J]. Genetics,Selection, Evolution :GSE, 2016, 48(1):79.

[30]
HUANG H, CAO J, HANIF Q, et al. Genome-wide association study identifies energy metabolism genes for resistance to ketosis in Chinese Holstein cattle[J]. Animal Genetics, 2019, 50(4):376-380.

DOI PMID

[31]
DEL RINCON J P, IIDA K, GAYLINN B D, et al. Growth hormone regulation of p85alpha expression and phosphoinositide 3-kinase activity in adipose tissue:mechanism for growth hormone-mediated insulin resistance[J]. Diabetes, 2007, 56(6):1638-1646.

[32]
SUMARA G, FORMENTINI I, COLLINS S, et al. Regulation of PKD by the MAPK p38delta in insulin secretion and glucose homeostasis[J]. Cell, 2009, 136(2):235-248.

DOI PMID

[33]
OZAKI K I, AWAZU M, TAMIYA M, et al. Targeting the ERK signaling pathway as a potential treatment for insulin resistance and type 2 diabetes[J]. American Journal of Physiology:Endocrinology and Metabolism, 2016, 310(8):E643-E651.

[34]
XU C, WANG Z, LIU G, et al. Metabolic characteristic of the liver of dairy cows during ketosis based on comparative proteomics[J]. Asian-Australasian Journal of Animal Sciences, 2008, 21(7):1003-1010.

[35]
PIECHOTTA M, MYSEGADES W, LIGGES U, et al. Antepartal insulin-like growth factor 1 and insulin-like growth factor binding protein 2 concentrations are indicative of ketosis in dairy cows[J]. Journal of Dairy Science, 2015, 98(5):3100-3109.

DOI PMID

[36]
FARRÉS J, PUJOL A, COMA M, et al. Revealing the molecular relationship between type 2 diabetes and the metabolic changes induced by a very-low-carbohydrate low-fat ketogenic diet[J]. Nutrition & Metabolism, 2010,7:88.

[37]
GRAPENTINE S, SINGH R K, BASU P L I, et al. Pcyt2 deficiency causes age-dependant development of nonalcoholic steatohepatitis and insulin resistance that could be attenuated with phosphonoethylamine[J]. Scientific Reports, 2022, 12(1):1048.

[38]
ZHANG F M, TIAN S X, GENG Y, et al. Novel SLC26A6 gene polymorphism rs184187143 is associated with diabetic ketoacidosis of gestational diabetes[J]. European Review for Medical and Pharmacological Sciences, 2019, 23(17):7526-7531.

[39]
ALLEN N P C, DONNINGER H, VOS M D, et al. RASSF6 is a novel member of the RASSF family of tumor suppressors[J]. Oncogene, 2007, 26(42):6203-6211.

DOI PMID

[40]
ZHU Y W, LIU G W, DU X L, et al. Expression patterns of hepatic genes involved in lipid metabolism in cows with subclinical or clinical ketosis[J]. Journal of Dairy Science, 2019, 102(2):1725-1735.

DOI PMID

[41]
DANN H M, MORIN D E, BOLLERO G A, et al. Prepartum intake,postpartum induction of ketosis,and periparturient disorders affect the metabolic status of dairy cows[J]. Journal of Dairy Science, 2005, 88(9):3249-3264.

[42]
SCHLEGEL G, KELLER J, HIRCHE F, et al. Expression of genes involved in hepatic carnitine synthesis and uptake in dairy cows in the transition period and at different stages of lactation[J]. BMC Veterinary Research, 2012, 8(1):28.

[43]
SHI A A, LI D D, DENG Q H, et al. NEFAs activate the oxidative stress-mediated NF-κB signaling pathway to induce inflammatory response in calf hepatocytes[J]. The Journal of Steroid Biochemistry and Molecular Biology, 2015,145:103-112.

[44]
SONG Y X, LI N, GU J M, et al. β-hydroxybutyrate induces bovine hepatocyte apoptosis via an ROS-p38 signaling pathway[J]. Journal of Dairy Science, 2016, 99(11):9184-9198.

DOI PMID

[45]
FLAMMENT M, RIEUSSET J, VIDAL H, et al. Regulation of hepatic mitochondrial metabolism in response to a high fat diet:a longitudinal study in rats[J]. Journal of Physiology and Biochemistry, 2012, 68(3):335-344.

[46]
ZHOU S D, CHEN M R, MENG M J, et al. Subclinical ketosis leads to lipid metabolism disorder by downregulating the expression of acetyl-coenzyme A acetyltransferase 2 in dairy cows[J]. Journal of Dairy Science, 2023, 106(12):9892-9909.

[47]
CAI J W, RIMAL B, JIANG C T, et al. Bile acid metabolism and signaling,the microbiota,and metabolic disease[J]. Pharmacology & Therapeutics, 2022,237:108238.

[48]
DU Z, LUO Z, HUANG Y, et al. Screening for potential warning biomarkers in cows with ketosis based on host-microbiota co-metabolism analysis[J]. Frontiers in Microbiology, 2024,15:1373402.

[49]
KLEIN S L, SCHEPER C, MAY K, et al. Genetic and nongenetic profiling of milk β-hydroxybutyrate and acetone and their associations with ketosis in Holstein cows[J]. Journal of Dairy Science, 2020, 103(11):10332-10346.

DOI PMID

[50]
MCCARTHY S D, WATERS S M, KENNY D A, et al. Negative energy balance and hepatic gene expression patterns in high-yielding dairy cows during the early postpartum period:a global approach[J]. Physiological Genomics, 2010, 42A(3):188-199.

文章导航

/