研究论文

不同磷源对奶牛泌乳性能和血浆代谢物的影响

  • 李天宇 , 1, 2 ,
  • 孙同玉 1, * ,
  • 屠焰 1 ,
  • 张涛 3 ,
  • 刘松林 3 ,
  • 陆伟 3 ,
  • 杨宏 3 ,
  • 黄艳玲 , 2, ** ,
  • 马涛 , 1, **
展开
  • 1 中国农业科学院饲料研究所,农业农村部生物技术重点实验室,奶牛营养学北京市重点实验室,北京 100081
  • 2 西南民族大学畜牧兽医学院,成都 610000
  • 3 瓮福(集团)有限责任公司,贵阳 550005
** 黄艳玲,教授,博士生导师,E-mail: ;
马 涛,副研究员,硕士生导师,E-mail:

* 同等贡献作者

李天宇(1998—),女,河北承德人,硕士研究生,从事反刍动物营养研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-05-06

  网络出版日期: 2024-11-09

基金资助

饲料配方软件国产化(IFR-ZDRW202303)

家畜产业技术体系北京市创新团队(BAIC05)

瓮福(集团)研发基金(WWF-001-2022-QT-00236)

Effects of Different Phosphorus Sources on Lactation Performance and Plasma Metabolites of Dairy Cows

  • LI Tianyu , 1, 2 ,
  • SUN Tongyu 1, * ,
  • TU Yan 1 ,
  • ZHANG Tao 3 ,
  • LIU Songlin 3 ,
  • LU Wei 3 ,
  • YANG Hong 3 ,
  • HUANG Yanling , 2, ** ,
  • MA Tao , 1, **
Expand
  • 1 Beijing Key Laboratory for Dairy Cow Nutrition, Key Laboratory of Biotechnology of Ministry of Agriculture and Rural Affairs, Institute of Feed Research, Chinese Academy of Agricultural Sciences, Beijing 100081, China
  • 2 College of Animal Husbandry and Veterinary Medicine, Southwest University for Nationalities, Chengdu 610000, China
  • 3 Wengfu (Group) Co., Ltd., Guiyang 550005, China
** HUANG Yanling, professor, E-mail: ;
MA Tao, associate professor, E-mail:

* Contributed equally

Received date: 2024-05-06

  Online published: 2024-11-09

摘要

本试验旨在探究不同磷源对泌乳后期奶牛泌乳性能和血浆代谢物的影响。选择60头体重、胎次、采食量和泌乳天数相近的泌乳后期荷斯坦奶牛,采用单因素试验设计随机分为2组,每组30头。2组奶牛饲粮中的磷分别来源于磷酸氢钙(DCP)和采用高温烧结法制备的磷酸三钙(TCP),2种饲粮主要营养成分和钙、磷含量均一致。试验期65 d,包括预试期10 d和正试期55 d,期间每天记录试验牛的产奶量,并于试验第30和65天采集乳样并进行奶牛生产性能测定(DHI),第65天采集血液测定血浆中的代谢物。结果表明: 1)2组奶牛产奶量和乳成分之间均无显著差异(P>0.05);2)2组奶牛血浆碱性磷酸酶活性以及降钙素、甲状旁腺素和钙含量之间均无显著差异(P>0.05),DCP组血浆磷含量显著高于TCP组(P<0.05);3)不同磷源条件下奶牛血浆中存在的差异代谢物有31种,其中TCP组血浆代谢物相对DCP组上调的有肌肽、甲基咪唑乙酸等,通过对差异代谢物的京都基因与基因组百科全书(KEGG)通路进行分析发现,显著富集的通路只有组氨酸代谢(P<0.05)。综上可知,在本试验条件下,不同磷源对于奶牛泌乳性能无显著影响,TCP可能提高了奶牛对磷的利用率,且上调了血浆中与抗氧化和抗炎相关的代谢物,对奶牛健康有积极影响。

本文引用格式

李天宇 , 孙同玉 , 屠焰 , 张涛 , 刘松林 , 陆伟 , 杨宏 , 黄艳玲 , 马涛 . 不同磷源对奶牛泌乳性能和血浆代谢物的影响[J]. 动物营养学报, 2024 , 36(11) : 7060 -7067 . DOI: 10.12418/CJAN2024.602

Abstract

This experiment was conducted to investigate the effects of different phosphorus sources on lactation performance and plasma metabolites of dairy cows in late lactation period. Sixty Holstein cows with similar body weight, parity, feed intake and lactation days in late lactation period were randomly divided into 2 groups with 30 cows in each group by a single-factor experimental design. The phosphorus in the diets for dairy cows in the two groups was derived from dibasic calcium phosphate (DCP) and tertiary calcium phosphate (TCP) prepared by high-temperature sintering method, respectively. The main nutrients and the contents of calcium and phosphorus in the two diets were consistent. The experiment lasted for 65 days, including a pre-trial period of 10 days and a trial period of 55 days, during which milk yield was recorded every day. Milk samples were collected and dairy herd improvement (DHI) was performed on days 30 and 65, and blood was collected on day 65 to determine metabolites in plasma. The results showed as follows: 1) there were no significant differences in milk yield and milk composition of dairy cows between the two groups (P>0.05); 2) there were no significant differences in plasma alkaline phosphatase activity and contents of calcitonin, parathyroid hormone and calcium of dairy cows between the two groups (P>0.05), and the plasma phosphorus content in DCP group was significantly higher than that in TCP group (P<0.05); 3) there were 31 different metabolites in plasma of dairy cows under different phosphorus sources, among which carnosine and methylimidazoleacetic acid were up-regulated in TCP group compared with DCP group. The Kyoto Encyclopedia of Genes and Genomes (KEGG) pathway of the differential metabolites was found to be significantly enriched only in histidine metabolism (P<0.05). In conclusion, under the conditions of this experiment, different phosphorus sources have no significant effects on lactation performance of dairy cows. TCP may improve the utilization of phosphorus in dairy cows and up-regulate the metabolites related to antioxidant and anti-inflammatory in plasma, which has a positive effect on the health of dairy cows.

磷是包括反刍动物在内的畜禽生长不可或缺的营养素之一,饲粮中的磷被动物摄入后进入血液循环,为骨骼、肌肉、神经等各个组织器官发挥正常功能提供必要的磷。养殖动物饲粮中的磷通常以磷酸盐的形式供给,且以磷酸氢钙(dibasic calcium phosphate,DCP)为主。磷酸三钙(tertiary calcium phosphate,TCP)作为一种新型磷源,其钙与磷质量比为1.935,与人类和动物骨骼中的钙磷比相当,常被用于骨骼的修复[1-2]。我国于2018年正式实施《饲料添加剂 磷酸三钙》[3]标准,《饲料添加剂品种目录》中规定TCP可用于养殖动物。然而,TCP在养殖动物上的应用研究尚未见报道,此外,不同磷源对动物生产性能影响的研究主要集中在猪[4]和蛋鸡[5]上,且研究以磷酸一二钙替代DCP为主要目的。在饲料级TCP生产过程中,高温烧结法能够实现产品的脱氟并减少砷、铅等重金属含量[6],因此,本试验拟通过在饲粮中分别以DCP和高温烧结法制备的TCP为磷源,研究其对奶牛泌乳性能和血液钙磷代谢相关指标以及其他代谢物的影响,旨在为TCP在畜禽养殖中的应用提供参考。

1 材料与方法

1.1 试验时间与地点

本试验于2023年5月7日至7月11日在北京市昌平区三石奶牛场进行,试验期65 d,包括10 d预试期和55 d正试期。

1.2 试验材料

本试验所用的DCP和TCP均由瓮福(集团)有限责任公司生产,其中TCP由高温烧结法制成。DCP中钙含量为22.5%,磷含量为17.8%;TCP中钙含量为32.4%,磷含量为18.3%。分别将DCP和TCP配制成2种添加剂预混料,其钙和磷含量一致(由北京精准动物营养研究中心有限公司生产),其组成见表1
表1 预混料组成

Table 1 Premix composition %

项目
Items
磷酸氢
钙预混料
DCP premix
磷酸三钙
预混料
TCP premix
多维Multi-vitamin 0.8 0.8
多矿Multi-mineral 4.0 4.0
维生素E Vitamin E 0.1 0.1
磷酸氢钙DCP 20.0
磷酸三钙TCP 19.5
石粉Limestone 40.0 34.9
膨润土Bentonite 17.1 22.7
沸石粉Zeolite powder 8.0 8.0
稻壳粉Rice hull powder 10.0 10.0
合计Total 100.0 100.0

1.3 试验设计

采用单因素试验设计,选择60头体重、胎次、采食量和泌乳天数相近的泌乳后期荷斯坦奶牛,随机分成2组,每组30头。2组奶牛分别饲喂由DCP(DCP组)和TCP(TCP组)提供磷源的全混合日粮(TMR),TMR组成及营养水平见表2。试验奶牛饲养于开放式牛舍内,每天饲喂2次(06:00和16:00),自由饮水。
表2 TMR组成及营养水平(干物质基础)

Table 2 Composition and nutrient levels of TMR (DM basis) %

项目Items 含量Content
原料Ingredients
玉米青贮Corn silage 54.5
燕麦干草Oatgrass hay 4.4
苜蓿干草Alfalfa hay 3.1
压片玉米Flaked corn 7.8
玉米Corn 8.3
麸皮Wheat bran 1.1
湿玉米酒糟WDGS 8.4
玉米干酒糟及其可溶物Corn DDGS 1.3
糖蜜Molasses 1.0
豆粕Soybean meal 2.0
双低菜籽粕Double-low rapeseed meal 2.0
棉籽粕Cottonseed meal 2.1
大豆皮Soybean hulls 0.7
脂肪粉Fat powder 0.4
氯化钠NaCl 0.2
碳酸氢钠NaHCO3 0.2
益生菌Probiotics1) 1.0
预混料Premix2) 1.5
合计Total 100.0
营养水平Nutrient levels3)
总能GE/(MJ/kg) 27.61
干物质DM 94.02
粗蛋白质CP 13.04
中性洗涤纤维NDF 40.66
酸性洗涤纤维ADF 23.52
粗灰分Ash 7.69
钙Ca 0.67
磷P 0.34

1)益生菌含1×10⁷ CFU/g枯草芽孢杆菌和1×107 CFU/g酿酒酵母。Probiotics contained 1×10⁷ CFU/g Bacillus subtilis and 1×10⁷ CFU/g Saccharomyces cerevisiae.

2)每千克预混料含有 One kg of premix contained the following:VA 370 000 IU,VD3 130 000 IU,VE 750 IU,Cu 550 mg,Zn 3 400 mg,Mn 1 800 mg,I 56 mg,Se 19 mg,Co 64 mg。

3)营养水平为实测值,干物质含量为风干基础。Nutrient levels were measured values and dry matter content was based on air-dry basis.

1.4 测定指标及方法

1.4.1 饲粮营养成分

试验第30和65天采集饲粮样品,于60 ℃烘干48 h并放在密封袋中室温保存用以实验室分析。试样过2 mm筛后,再过1 mm筛粉碎制样,营养成分中干物质含量参照GB/T 6435—2014测定,粗蛋白质含量参照GB/T 6432—2018测定,中性洗涤纤维含量参照GB/T 20806—2022测定,酸性洗涤纤维含量参照NY/T 1459—2022测定,粗灰分含量参照GB/T 6438—2007测定,钙含量参照GB/T 6436—2018采用高锰酸钾滴定法测定,磷含量参照GB/T 6437—2018采用分光光度法测定;总能参照ISO 9831:1998采用弹式量热计法测定。

1.4.2 奶牛生产性能测定(DHI)

每天记录每头奶牛的产奶量,于试验第30和65天采集每头牛的乳样,送至北京奶牛中心检测体细胞数、尿素氮、乳脂率以及乳蛋白率等DHI指标。

1.4.3 血浆指标和代谢物测定

试验第65天清晨饲喂前,每组选取6头奶牛实施尾根静脉采血10 mL,然后于3 000×g、4 ℃条件下离心15 min,收集血浆并于-20 ℃条件下保存。取5 mL血浆,分别采用邻酚酞络合酮比色法和磷钼酸法测定钙和磷含量,并采用酶联免疫吸附试验(ELISA)法测定碱性磷酸酶(ALP)活性以及降钙素(CT)和甲状旁腺素(PTH)含量。
另取5 mL血浆于冰上解冻后小心移取100 μL样品到EP管中,加入400 μL含有内标混合物的提取液(甲醇和乙腈的体积比为1∶1),涡旋混匀30 s;然后于冰水浴中超声10 min,在-40 ℃条件下静置1 h后将样品离心,取上清预处理后上机检测。分析平台为液相色谱-质谱联用仪(Orbitrap Exploris 120,Thermo Fisher Scientific);色谱柱为ACQUITY UPLC BEH Amide(1.7 μm,2.1 mm×50 mm);流动相A为25 mmol/L水+25 mmol/L甲酸,流动相B为100%乙腈。采用Xcalibur 4.4软件控制质谱仪使之进行一级和二级的质谱数据采集。

1.5 数据统计与分析

将DHI和血浆钙磷代谢指标相关数据经过Excel 2010统计整理后,采用SPSS 26.0软件进行t检验分析,结果用平均值和均值标准误(SEM)表示,以P<0.05作为判断差异显著性的标准。对于代谢组数据,首先采用ProteoWizard将质谱原始数据转换成mzXML格式;采用学生t检验来评估组间代谢物浓度的差异,设定矫正后的P值(FDR corrected P-value)小于0.05作为显著性水平;利用差异倍数(fold change,FC)来进一步量化这些差异,设定FC>1.5或<0.67作为筛选标准;结合正交偏最小二乘法判别分析(OPLS-DA)模型中第1主成分变量投影重要度(variable importance in the projection,VIP)值来评估每个代谢物在模型中的贡献程度,设定VIP值大于1作为筛选标准,利用差异代谢物与京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)数据库进行映射,确定所有差异代谢物所参与的生物通路,对差异代谢物进行了深入的代谢通路分析,应用MetaboAnalyst 5.0分析差异代谢物显著性富集的通路。

2 结果与分析

2.1 不同磷源对奶牛泌乳性能的影响

表3可知,2组奶牛产奶量和乳成分(体细胞数、尿素氮含量、乳脂率、乳蛋白率、乳脂产量和乳蛋白产量)之间均无显著差异(P>0.05)。
表3 不同磷源对奶牛泌乳性能的影响

Table 3 Effects of different phosphorus sources on lactating performance of dairy cows (n=30)

项目
Items
组别Groups 均值标准误
SEM
P
P-value
DCP TCP
干物质采食量DMI/kg 22.69 21.77
产奶量Milk yield/(kg/d) 29.11 28.92 0.830 0.82
体细胞数SCC/(×104个/mL) 16.24 15.84 0.158 0.80
尿素氮UN/(mg/dL) 8.09 8.18 0.328 0.79
乳脂率Milk fat percentage/% 4.00 4.10 0.167 0.27
乳蛋白率Milk protein percentage/% 3.53 3.51 0.076 0.74
乳脂产量Milk fat yield/(kg/d) 1.14 1.18 0.033 0.16
乳蛋白产量Milk protein yield/(kg/d) 1.03 1.02 0.029 0.67

同行数据肩标不同字母表示差异显著(P<0.05),肩标无字母表示无显著差异(P>0.05)。表4同。

Values in the same row with different letter superscripts mean significant difference (P<0.05), while with no letter superscripts mean no significant difference (P>0.05). The same as Table 4.

2.2 不同磷源对奶牛血浆钙磷代谢相关指标的影响

表4可知,不同磷源对奶牛血浆ALP活性以及钙、PTH和CT含量均无显著影响(P>0.05),DCP组奶牛血浆磷含量显著高于TCP组(P<0.05)。
表4 不同磷源对奶牛血浆钙磷代谢相关指标的影响

Table 4 Effects of different phosphorus sources on plasma calcium and phosphorus metabolism related indices of dairy cows (n=6)

项目
Items
组别Groups 均值标准误
SEM
P
P-value
DCP TCP
降钙素CT/(pg/mL) 66.127 73.187 4.340 0.14
甲状旁腺素PTH/(pg/mL) 113.765 115.705 10.132 0.85
钙Ca/(mmol/L) 3.483 3.928 0.287 0.15
磷P/(mmol/L) 1.808a 1.687b 0.102 0.04
碱性磷酸酶ALP/(U/L) 165.263 173.433 10.916 0.47

2.3 不同磷源对奶牛血浆代谢物的影响

2.3.1 差异代谢物分析

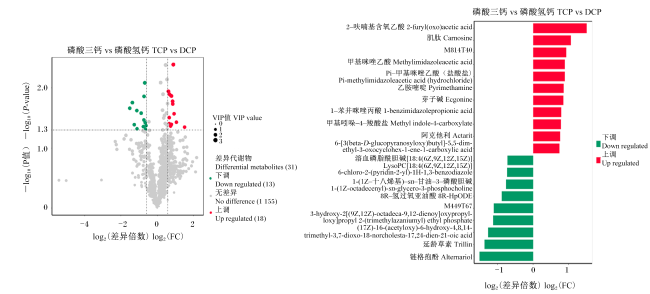
在不同磷源条件下,奶牛血浆中存在的差异代谢物共有31种,其中TCP组相对DCP组表达量显著上调的代谢物有18种,显著下调的代谢物有13种(图1-A)。如图1-B所示,相对于DCP组,TCP组奶牛血浆中上调的代谢物有肌肽(carnosine)、甲基咪唑乙酸(methylimidazoleacetic acid)和Pi-甲基咪唑乙酸(盐酸盐)[Pi-methylimidazoleacetic acid (hydrochloride)]等,下调的代谢物有链格孢酚(alternariol)、M449T67和8R-氢过氧亚油酸(8R-HpODE)等。
图1 不同磷源条件下奶牛血浆差异代谢物火山图(A)和柱状图(B)

Fig.1 Volcano chart (A) and column chart (B) of plasma differential metabolites of dairy cows fed with different phosphorus sources

2.3.2 血浆差异代谢物KEGG通路分析

表5可知,2组奶牛血浆差异代谢物KEGG通路中显著富集的通路只有组氨酸代谢(P<0.05)。
表5 不同磷源条件下奶牛血浆差异代谢物KEGG通路分析

Table 5 KEGG pathway analysis of differential metabolites in plasma of dairy cows fed with different phosphorus sources

序号
No.
代谢通路
Metabolic pathways
差异代谢物
Differential metabolites
P
P-value
1 组氨酸代谢 3-甲基-L-组氨酸、肌肽、甲基咪唑乙酸 <0.001
2 β-丙氨酸代谢 肌肽 0.185
3 脂肪酸降解 棕榈酰肉碱 0.189
4 甘油磷脂代谢 1-(1Z-十八烯基)-sn-甘油-3-磷酸胆碱 0.189

3 讨论

3.1 不同磷源对奶牛泌乳性能的影响

乳体细胞数可以作为衡量奶牛健康与否的重要指标[7]。健康奶牛与非健康状态奶牛乳体细胞数量存在一定差异,健康奶牛乳中的体细胞数在5×10⁴~2×10⁵个/mL,但是当奶牛受患病、饲粮营养水平变化等影响时,乳中体细胞数可能会升高,通常情况下以超过3×105~4×105个/mL以上的乳体细胞数定为乳房炎的基准[8]。本试验中奶牛乳体细胞数处于正常水平,表明奶牛健康状态良好。乳中尿素氮常被用来监测奶牛蛋白质营养和代谢状况[9],其含量与饲粮蛋白质水平呈正相关。研究表明,当饲粮粗蛋白质含量为11.1%~24.9%时,乳中尿素氮含量在3.8~27.0 mg/dL[10]。乳中尿素氮含量通常在泌乳第150天后开始下降[11],研究发现泌乳后期奶牛饲粮粗蛋白质含量由11.8%提高到16.0%时,乳中尿素氮含量由6.0 mg/dL提高到13.3 mg/dL[12],本试验结果在上述合理范围之内。除尿素氮外,本试验中2组奶牛的乳脂率和乳蛋白率均在研究报道的范围(乳脂率为2.26%~4.78%;乳蛋白率为2.57%~3.90%)[13]之内。综上所述,本试验条件下,饲粮中不同磷源对奶牛泌乳性能并未产生显著影响。

3.2 不同磷源对奶牛血浆钙磷代谢相关指标的影响

研究表明,以DCP、二磷酸钙和磷酸二铵为磷源饲喂绵羊时,DCP组绵羊血浆钙含量较其他2组显著提高,而磷酸二铵组血浆磷含量较其他2组显著提高[14],表明不同磷源对反刍动物对于钙和磷的吸收和利用存在影响。本试验中,DCP组奶牛血浆磷含量显著高于TCP组,可能由于TCP组奶牛对于饲粮磷的吸收利用率更高,因此在血液等体液中游离的磷含量降低,但2组奶牛血浆磷含量均在正常范围内[15-16],且其他指标并未受磷源的影响。奶牛体内钙磷代谢动态平衡,受CT、PTH和ALP的共同调节。其中,PTH由甲状旁腺分泌,通过刺激破骨细胞增加骨钙和磷的动员,维持血液钙磷稳态[17];CT与PTH作用相反,能够通过减缓破骨细胞的形成速度从而减缓由骨组织释放的钙盐[18];PTH与CT协同作用可抑制奶牛高钙血症和高磷血症的发生[19]。ALP属磷酸单酯水解酶,与钙、磷吸收促进骨组织的沉积有关,血浆ALP活性在正常奶牛中有较大的变化范围(28~259 U/L)[20]。本试验结果表明,TCP替代DCP并未对奶牛钙磷代谢造成不利影响,且可能在一定程度上提高了泌乳奶牛对磷的利用率。

3.3 不同磷源对奶牛血浆代谢物的影响

本试验进一步对泌乳奶牛血浆代谢物进行分析发现,在TCP组奶牛血浆显著上调的差异代谢物中,肌肽是一种由氨基酸β-丙氨酸和组氨酸组成的二肽,也称为β-丙氨酰-L-组氨酸。肌肽在哺乳动物的脑和肌肉多有分布,可以清除活性氧(ROS)以及氧化应激期间脂肪酸过氧化形成的α,β不饱和醛,起到抗氧化的作用[21]。研究表明,泌乳奶牛肌肉中肌肽含量随饲粮中组氨酸添加量的升高表现出上升趋势[22],表明肌肽代谢与组氨基酸代谢存在联系,这能够解释本研究发现的差异代谢物主要富含在组氨酸代谢通路上。另有研究表明,高饲料转化率的肉牛血浆中肌肽含量高于低饲料转化率的肉牛[23],可能是与肌肽能够清除肌肉中的自由基以及降低了蛋白质糖基化有关[24]。除肌肽外,TCP组奶牛血浆中显著上调的代谢物还包括甲基咪唑乙酸,甲基咪唑乙酸是组胺的主要代谢产物,后者是组氨酸在脱羧酶作用下产生的一种免疫活性物质[25]。江妍[26]研究发现,处于亚健康状态的泌乳奶牛瘤胃液中的甲基咪唑乙酸含量相对于健康状态的奶牛显著下调,表明甲基咪唑乙酸可能是一种指示奶牛健康状态的标志性代谢物。由此推测,TCP引起的肌肽和甲基咪唑乙酸等代谢产物的上调可能在一定程度上反映了奶牛抗氧化和抗炎能力的提高,对于奶牛保持健康状态具有积极作用。

4 结论

在本试验条件下,与以DCP为主要磷源的TMR相比,以TCP为主要磷源的TMR对奶牛泌乳性能和除磷以外的血浆钙磷代谢相关指标没有显著影响,血浆肌肽和甲基咪唑乙酸含量显著上调,且差异代谢产物主要富集在组氨酸代谢通路上。综上可知,在泌乳奶牛饲粮中可使用TCP替代DCP。
[1]
李忠杰, 李绍波. 磷酸钙人工骨修复骨缺陷的研究进展[J]. 生物骨科材料与临床研究, 2021, 18(4):87-91.

LI Z J, LI S B. Progress of calcium phosphate artificial bone in repairing bone defect[J]. Orthopaedic Biomechanics Materials and Clinical Study, 2021, 18(4):87-91. (in Chinese)

[2]
史冬雪, 陈智华, 梁倩, 等. β-TCP与EGF复合物对犬胫骨骨缺损修复作用的研究[J]. 扬州大学学报(农业与生命科学版), 2020, 41(3):47-51.

SHI D X, CHEN Z H, LIANG Q, et al. Effect of β-TCP and EGF complex on bone defects repair in dogs[J]. Journal of Yangzhou University (Agricultural and Life Science Edition), 2020, 41(3):47-51. (in Chinese)

[3]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料添加剂磷酸三钙:GB 34457—2017[S]. 北京: 中国标准出版社, 2018.

General Administration of Quality Supervision, Inspection and Quarantine of the People’s Republic of China, Standardization Administration of the People’s Republic of China. Feed additive-trmcalcium phosphate:GB 34457—2017[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[4]
刘景, 陈炳钿, 何姝颖, 等. 不同磷源对育肥猪生长性能、血清指标、骨骼钙和磷代谢以及肠道微生物的影响[J]. 动物营养学报, 2022, 34(1):104-114.

DOI

LIU J, CHEN B D, HE S Y, et al. Effects of different phosphorus sources on growth performance,serum indices,bone calcium and phosphorus metabolism and intestinal microbes of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):104-114. (in Chinese)

[5]
任跃昌, 邓夕民, 陈正平, 等. 不同磷源和水平对69-78周龄蛋鸡产蛋性能和骨代谢的影响[J]. 动物营养学报, 2022, 34(6):3604-3614.

DOI

REN Y C, DENG X M, CHEN Z P, et al. Effects of different phosphorus sources and levels on laying performance and bone metabolism of laying hens aged from 69 to 78 weeks[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3604-3614. (in Chinese)

DOI

[6]
王磊磊. 饲料级磷酸二氢钙、磷酸三钙和磷酸二氢钠的质量和安全特性研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2013.

WANG L L. Study on the quality and safety charactenstics of feed-grade calcium dihydrogen phosphate,tricaicium phosphate and sodium dihydrogen phosphate[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2013. (in Chinese)

[7]
高树新, 王国富, 邵志文, 等. 奶牛乳房炎乳的危害及其检测方法探讨[J]. 中国乳品工业, 2008, 36(2):58-61,64.

GAO S X, WANG G F, SHAO Z W, et al. Probe into the disserve and determination methods of bovire mastitis milk[J]. China Dairy Industry, 2008, 36(2):58-61,64. (in Chinese)

[8]
ALHUSSIEN M N, DANG A K. Milk somatic cells,factors influencing their release,future prospects,and practical utility in dairy animals:an overview[J]. Vet World, 2018, 11(5):562-577.

[9]
HOF G, VERVOORN M D, LENAERS P J, et al. Milk urea nitrogen as a tool to monitor the protein nutrition of dairy cows[J]. Journal of Dairy Science, 1997, 80(12):3333-3340.

PMID

[10]
NOUSIAINEN J, SHINGFIELD K J, HUHTANEN P. Evaluation of milk urea nitrogen as a diagnostic of protein feeding[J]. Journal of Dairy Science, 2004, 87(2):386-398.

DOI PMID

[11]
GODDEN S M, LISSEMORE K D, KELTON D F, et al. Factors associated with milk urea concentrations in Ontario dairy cows[J]. Journal of Dairy Science, 2001, 84(1):107-114.

PMID

[12]
BARROS T, REED K F, COLMENERO J J O, et al. Short communication: milk urea Nitrogen as a predictor of urinary nitrogen and urea nitrogen excretions of late-lactation dairy cows fed nitrogen limiting diets[J]. Journal of Dairy Science, 2019, 102(2):1601-1607.

[13]
DALEY V L, ARMENTANO L E, HANIGAN M D. Models to predict milk fat concentration and yield of lactating dairy cows:a Meta-analysis[J]. Journal of Dairy Science, 2022, 105(10):8016-8035.

[14]
孟宪煜, 刘伯河, 马吉庆, 等. 不同磷源对绵羊生长性能、养分消化及血液生化指标的影响[J]. 中国饲料, 2021(22):51-54.

MENG X Y, LIU B H, MA J Q, et al. Effects of different phosphorus sources on growth performance,nutrient digestion and blood biochemical indices of sheep[J]. China Feed, 2021(22):51-54. (in Chinese)

[15]
COHRS I, WILKENS M R, GRÜNBERG W. Short communication: effect of dietary phosphorus deprivation in late gestation and early lactation on the calcium homeostasis of periparturient dairy cows[J]. Journal of Dairy Science, 2018, 101(10):9591-9598.

DOI PMID

[16]
ANDERSON S T, KIDD L J, BENVENUTTI M A, et al. New candidate markers of phosphorus status in beef breeder cows[J]. Animal Production Science, 2017,57:2291-2303.

[17]
BEN-AWADH A N, DELGADO-CALLE J, TU X L, et al. Parathyroid hormone receptor signaling induces bone resorption in the adult skeleton by directly regulating the RANKL gene in osteocytes[J]. Endocrinology, 2014, 155(8):2797-2809.

[18]
WILKENS M R, NELSON C D, HERNANDEZ L L, et al. Symposium review: transition cow calcium homeostasis-health effects of hypocalcemia and strategies for prevention[J]. Journal of Dairy Science, 2020, 103(3):2909-2927.

DOI PMID

[19]
LOMBARDI G, ZIEMANN E, BANFI G, et al. Physical acitivity-dependent regulation of parathyroid hormone and calcium-phosphorous metabolism[J]. International Journal of Molecular Sciences, 2020, 21(15):5388.

[20]
HATA A, FUJITANI N, TAKESHITA M, et al. Comparison of regression for blood ALP levels using methods of the Japan society of clinical chemistry and the international federation of clinical chemistry and laboratory medicine in bovine,canine,feline,and human testing[J]. PLoS One, 2021, 16(6):e0253396.

[21]
BROSNAN M E, BROSNAN J T. Histidine metabolism and function[J]. Journal of Nutrition, 2020, 150(Suppl.1):2570S-2575S.

[22]
LAPIERRE H, LOBLEY G E, OUELLET D R. Histidine optimal supply in dairy cows through determination of a threshold efficiency[J]. Journal of Dairy Science, 2021, 104(2):1759-1776.

DOI PMID

[23]
WANG Z, YU Y A, SHEN W J, et al. Metabolomics analysis across multiple biofluids reveals the metabolic responses of lactating holstein dairy cows to fermented soybean meal replacement[J]. Frontiers in veterinary science, 2022,9:812373.

[24]
HOLEČEK M. Histidine in health and disease:metabolism,physiological importance,and use as a supplement[J]. Nutrients, 2020, 12(3):848.

[25]
BRANCO A C C C, YOSHIKAWA F S Y, PIETROBON A J, et al. Role of histamine in modulating the immune response and inflammation[J]. Mediators of Inflammation, 2018,2018:9524075.

[26]
江妍. 乳腺健康状况对泌乳奶牛消化道微生物的影响研究[D]. 硕士学位论文. 泰安: 山东农业大学, 2021.

JIANG Y. A study on effect of udder health on microbiota in lactating cows[D]. Master’s Thesis. Tai’an: Shandong Agricultural University, 2021. (in Chinese)

文章导航

/