研究论文

犬源嗜酸乳杆菌GLA09对成年比格犬肠道菌群及代谢组的影响

  • 赵梦迪 , 1, 2 ,
  • 张媛媛 1 ,
  • 李悦垚 1 ,
  • 李鑫康 1 ,
  • 吴怡 1 ,
  • 梁爽 1 ,
  • 李光玉 , 1, *
展开
  • 1 青岛农业大学动物科技学院,青岛 266109
  • 2 吉林农业大学动物科技学院,长春 130118
* 李光玉,研究员,博士生导师,E-mail:

赵梦迪(1995—),女,吉林白城人,博士研究生,从事宠物肠道健康及益生菌研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-05-27

  网络出版日期: 2024-11-09

基金资助

青岛农业大学高层次人才科研启动基金(1121021)

Effects of Canine-Derived Lactobacillus acidophilus GLA09 on Intestinal Flora and Metabolome of Adult Beagles

  • ZHAO Mengdi , 1, 2 ,
  • ZHANG Yuanyuan 1 ,
  • LI Yueyao 1 ,
  • LI Xinkang 1 ,
  • WU Yi 1 ,
  • LIANG Shuang 1 ,
  • LI Guangyu , 1, *
Expand
  • 1 College of Animal Science and Technology, Qingdao Agricultural University, Qingdao 266109, China
  • 2 College of Animal Science and Technology, Jilin Agricultural University, Changchun 130118, China
* professor, E-mail:

Received date: 2024-05-27

  Online published: 2024-11-09

摘要

本研究旨在探讨犬源嗜酸乳杆菌GLA09对成年比格犬肠道菌群及代谢组的影响。试验选取12只体重为(17.93±2.03) kg成年健康比格犬,随机分成2组,每组6只。对照组(CK组)饲喂基础饲粮,益生菌组(LA组)饲喂基础饲粮+2×10¹⁰ CFU/d。预试期7 d,正试期28 d。结果表明: 1)CK组和LA组之间的肠道菌群可观测物种及Chao1、PD whole tree、Shannon和Simpson指数均无显著差异(P>0.05)。2)与CK组相比,LA组的肠道乳杆菌属(Lactobacillus)和Parasutterella相对丰度显著提高(P<0.05)。3)与CK组相比,LA组的肠道有21个下调差异代谢物,40个上调差异代谢物。4)与CK组相比,LA组的差异代谢产物主要注释到氨基糖和核苷酸糖的代谢通路、ABC转运蛋白、嘧啶代谢。由此可见,饲粮中添加犬源嗜酸乳杆菌GLA09可提高比格犬的肠道乳酸杆菌和双歧杆菌相对丰度,上调N-乙酰氨基葡萄糖、L-阿拉伯糖和谷氨酸等功能性代谢产物,从而改善犬的肠道健康。

本文引用格式

赵梦迪 , 张媛媛 , 李悦垚 , 李鑫康 , 吴怡 , 梁爽 , 李光玉 . 犬源嗜酸乳杆菌GLA09对成年比格犬肠道菌群及代谢组的影响[J]. 动物营养学报, 2024 , 36(11) : 7294 -7304 . DOI: 10.12418/CJAN2024.621

Abstract

This study aimed to investigate the effects of canine-derived Lactobacillus acidophilus GLA09 on intestinal flora and metabolome of adult beagles. Twelve adult beagles with body weight of (17.93±2.03) kg were randomly divided into 2 groups with 6 dogs per group. The control group (CK group) was fed a basal diet, and the probiotic group (LA group) was fed a basal diet+2×10¹⁰ CFU/d. The pre-experimental period lasted for 7 days, and the experimental period lasted for 28 days. The results showed as follows: 1) there were no significant differences in the observed species and Chao1, PD whole tree, Shannon and Simpson indices in intestinal flora between CK group and LA group (P>0.05). 2) Compared with CK group, the relative abundances of Lactobacillus and Parasutterella in intestine of LA group were significantly increased (P<0.05). 3) Compared with CK group, there were 21 down-regulated differential metabolites and 40 up-regulated differential metabolites of LA group. 4) Compared with CK group, the differential metabolites of LA group were annotated to the metabolic pathways of aminoglycans and nucleotide sugars, ABC transporter proteins and pyrimidine metabolism. In summary, dietary canine-derived Lactobacillus acidophilus GLA09 can increase the relative abundances of Lactobacillus and Bifidobacterium in intestine of beagles, and up-regulate the functional metabolites such as N-acetylglucosamine, L-arabinose, and glutamate, resulting in an improvement in canine intestinal health.

近年来,我国宠物的数量迅速增加,特别是犬和猫的数量增加更为明显,宠物主越来越重视宠物的健康和福利[1]。宠物的健康与其肠道菌群密切相关[2]。益生菌作为改善宿主肠道健康的活性微生物,可以调节宿主免疫功能,与宿主肠道菌群相互作用,并产生短链脂肪酸(SCFA)、胞外多糖和细菌素等代谢物[3-6]。嗜酸乳杆菌(Lactobacillus acidophilus)是一种微需氧、革兰氏阳性微生物,属于乳杆菌属,被批准可用于食品。嗜酸乳杆菌能调节免疫反应,通过恢复肠道菌群和产生代谢物来预防或治疗炎症性肠病[7]。Kye等[8]报道,嗜酸乳杆菌通过调节免疫因子和肠道菌群的组成,能改善葡聚糖硫酸钠诱导的结肠炎。研究表明,选择源自宿主的微生物作为益生菌更合适[9-10]。研究发现,犬源嗜酸乳杆菌菌株对犬结肠黏液的黏附能力高于来源于猪和人的菌株[11]。但目前宠物市场使用的益生菌大多数都是非犬源菌株,且大部分菌株未进行益生特性评价,使用效果也良莠不齐,无法满足快速发展的宠物市场的需求[12-13]。因此,有必要探索宿主源益生菌对宠物健康的影响。本研究旨在评估犬源嗜酸乳杆菌GLA09对成年比格犬肠道菌群及代谢组的影响,为犬源益生菌调控犬的肠道健康提供理论依据。

1 材料与方法

1.1 供试菌株

本研究中使用的犬源嗜酸乳杆菌GLA09是本实验室从健康比格犬的肠道中分离出来的,并完成了其益生潜能和安全性评价,保藏于中国典型培养物保藏中心,保藏号为:CCTCC NO:M 2023982。
在本试验中,犬源嗜酸乳杆菌GLA09菌株按2.0%接种量接种于MRS液体培养基(青岛海博生物科技有限公司)中,置于37 ℃摇床恒温培养18~20 h,传代3次备用,并采用梯度稀释法进行平板计数。每天饲喂犬之前,取培养18~20 h的菌液,9 391×g、4 ℃离心10 min,倒掉上清液(去掉代谢产物的影响),用磷酸盐缓冲液(PBS)重悬菌体,按照试验前期平板计数结果稀释至1×10¹⁰ CFU/mL。

1.2 试验设计和饲养管理

1.2.1 伦理声明

动物试验由青岛农业大学试验动物伦理委员会批准,批准号:DWKJ202401124。

1.2.2 试验设计

采用完全随机设计,选择12只成年比格犬,平均年龄为(3.17±0.49)岁,体重为(17.93±2.03) kg,身体状况评分(BCS)[14]为(5.38±0.57)分,随机分成2组,每组6只(3公、3母)。对照组(CK组)饲喂基础饲粮,益生菌组(LA组)在饲喂基础饲粮的基础上,每只灌服2 mL犬源嗜酸乳杆菌GLA09(2×10¹⁰ CFU/d)。预试期7 d,正试期28 d。

1.2.3 饲养管理

试验开始前对犬舍和笼具进行全面消毒。每只动物单笼饲养,所有犬舍均位于同一环境内,温度(21.0±1.0) ℃。每天06:00—07:00户外运动1 h,每周洗澡1次。根据NRC(2006)[15]成年犬维持能量需要量、以前的采食记录信息和饲粮能量估算值,提供满足维持体重需要的饲粮,自由饮水。每天观察记录采食量,观察试验犬的精神状态、健康状况。

1.3 基础饲粮

参考NRC(2006)[15]犬营养需要配制基础饲粮,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料
Ingredients
含量
Content
营养水平
Nutrient levels2)
含量
Content
膨化玉米Extruded corn 26.00 粗蛋白质CP 25.58
膨化豆粕Extruded soybean meal 12.00 粗脂肪EE 10.19
玉米胚芽粕Corn germ meal 22.00 粗灰分Ash 7.99
小麦粉Wheat flour 5.00 碳水化合物CHO 56.24
鱼粉Fish meal 3.00 粗纤维CF 4.10
肉骨粉Meat and bone meal 3.00 代谢能ME/(MJ/kg) 16.59
鸡肉粉Chicken meal 18.00 钙Ca 0.85
鸭肉粉Duck meal 5.00 总磷TP 0.55
鸡油Chicken oil 3.00 赖氨酸Lys 1.34
磷酸氢钙CaHPO4 0.70 水溶性氯化物WSC 0.14
赖氨酸Lys 0.80
蛋氨酸Met 0.50
预混料Premix1) 1.00
合计Total 100.00

1)每千克预混料含有 One kg of premix contained the following: VA 625 000 IU,VD3 100 000 IU,VE 6 000 IU,VK3 200 mg,VB1 1 250 mg,VB2 900 mg,VB6 750 mg,VB12 2.25 mg,生物素 biotin 10 mg,叶酸 folic acid 150 mg,烟酸 niacin acid 2 500 mg,泛酸钙 pantothenic acid calcium 1 750 mg,VC 10 050 mg,胆碱 choline 240 000 mg,FeSO4 9 600 mg,CuSO4 1 800 mg,ZnSO4 7 800 mg,MnSO4 4 800 mg,KI 144 mg,Na2SeO3 30 mg。

2)代谢能为计算值[15],其余为实测值。ME was a calculated value[15], while the others were measured values.

1.4 样品采集

试验第28天,收集约10 g新鲜粪便(15 min内)置于冷冻管(美国Axygen公司),并立即放入液氮中,-80 ℃保存备用。

1.5 检测指标和方法

1.5.1 饲粮营养成分测定

采用GB/T 6432—2018的方法测定粗蛋白质(CP)含量,采用GB/T 6433—2006的方法测定粗脂肪(EE)含量,采用GB/T 6438—2007的方法测定粗灰分(Ash)含量,采用张丽英[16]的方法测定碳水化合物(CHO)和粗纤维(CF)含量,采用GB/T 6436—2018的方法测定钙含量,采用GB/T 6437—2018的方法测定总磷含量,采用GB/T 6439—2023的方法测定水溶性氯化物含量;采用GB/T 18246—2019的方法,使用全自动氨基酸分析仪(LA8080,日本日立公司)测定赖氨酸含量。

1.5.2 16S rRNA测序

用粪便DNA试剂盒(美国Omega Bio-Tek公司)提取粪便基因组DNA,接着采用通用引物扩增细菌16S rRNA基因的V3~V4区域。采用Agencourt AMPure XP试剂盒(美国Beckman Coulter公司)纯化核酸,并使用NEB Next Ultra II DNA文库制备试剂盒(美国New England Biolabs公司)构建文库。最后,通过NovaSeq 6000 SP Reagent Kit v1.5(美国Illumina公司)对文库进行测序。操作分类单元(OTU)聚类的相似值设定为97%[17]。分析α多样性时对数据进行抽平处理,用QIIME(v1.8.0)分析[18]。β多样性通过R(v3.6.0)的ggplot2、ggrepel包进行分析和作图。通过线性判别分析效应大小(LEfSe)寻找组间具有统计学差异的生物标识(biomarker),判断标准为P<0.05,线性判别分析(LDA)≥3.0。

1.5.3 非靶向代谢组检测

使用超高效液相色谱仪(LC-30,日本Shimadzu公司)和高分辨质谱仪(TripleTOF 5600+,上海SCIEX分析仪器贸易有限公司)检测非靶向代谢组。取50 mg粪便样品加入含内标的MeOH∶ACN∶H2O溶液(V∶V∶V=2∶2∶1)及钢珠,60 Hz研磨120 s,超声10 min;-20 ℃静置1 h,15 294×g、4 ℃离心15 min;取上层清液冷冻干燥。质谱分析时加入适量ACN∶H2O溶液(V∶V=1∶1)复溶,涡旋振荡30 s,超声10 min;15 294×g、4 ℃离心15 min;吸取上层清液到进样瓶中,进样体积为2 μL,流速0.3 mL/min,柱温50 ℃。色谱柱为Acquity Uplc(美国Waters公司)。从色谱柱流出的样本代谢分析物经质谱仪进行正离子模式和负离子模式各采集1次。数据采用t检验,设置变量投影重要度(variable importance in the projection,VIP)>1,P<0.05,筛选出差异代谢物。使用火山图显示差异代谢物的整体分布情况。基于KEGG数据库(https://www.kegg.jp/)对差异代谢物进行通路富集分析。

1.5.4 皮尔森相关性分析

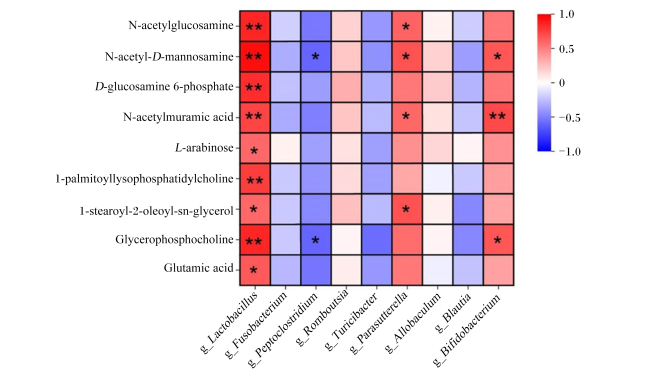
采用皮尔逊相关系数分析肠道菌群与代谢产物的相关性,数值矩阵通过热图展示,相关性通过不同颜色梯度反映。

1.6 数据分析

试验结果用平均值和标准误差差值(standard error difference,SED)表示,采用SPSS 25.0中的独立样本t检验进行统计分析,P<0.05为差异显著,P>0.05为差异不显著。

2 结果

2.1 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群α多样性的影响

表2可知,CK组和LA组之间比格犬的肠道菌群可观测物种及Chao1、PD whole tree、Shannon和Simpson指数均无显著差异(P>0.05)。
表2 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群α多样性的影响

Table 2 Effects of canine-derived Lactobacillus acidophilus GLA09 on intestinal flora α diversity of beagles (n=6)

项目
Items
对照组
CK group
益生菌组
LA group
标准误差差值
SED
P
P-value
Chao1指数Chao1 index 569.51 584.54 57.96 0.80
可观测物种Observed species 494.30 505.65 55.38 0.84
PD whole tree指数PD whole tree index 39.96 40.62 3.42 0.85
Shannon指数Shannon index 4.70 4.81 0.32 0.73
Simpson指数Simpson index 0.90 0.90 0.04 0.86

同行数据肩标不同小写字母表示差异显著(P<0.05),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群门水平相对丰度的影响

表3可知,CK组和LA组之间比格犬肠道菌群优势菌门均为厚壁菌门(Firmicutes)、梭菌门(Fusobacteria)、拟杆菌门(Bacteroidetes)、放线菌门(Actinobacteria)和变形菌门(Proteobacteria)。CK组和LA组之间比格犬肠道菌群优势菌门相对丰度均无显著差异(P>0.05)。
表3 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群门水平相对丰度的影响

Table 3 Effects of canine-derived Lactobacillus acidophilus GLA09 on relative abundance of intestinal flora at phylum level of beagles (n=6) %

项目
Items
对照组
CK group
益生菌组
LA group
标准误差差值
SED
P
P-value
厚壁菌门Firmicutes 64.41 66.03 9.98 0.87
梭菌门Fusobacteria 14.81 7.37 7.05 0.32
拟杆菌门Bacteroidetes 11.98 17.42 7.44 0.48
放线菌门Actinobacteria 5.91 5.82 1.71 0.96
变形菌门Proteobacteria 2.83 3.30 1.22 0.71
Epsilonbacteraeota 0.01 0.03 0.01 0.14
其他Others 0.06 0.04 0.03 0.60

2.3 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群属水平相对丰度的影响

表4可知,与CK组相比,LA组的肠道乳杆菌属(Lactobacillus)和Parasutterella相对丰度显著提高(P<0.05)。CK组和LA组之间比格犬肠道梭杆菌属(Fusobacterium)、PeptoclostridiumRomboutsia、苏黎世杆菌属(Turicibacter)、异杆菌属(Allobaculum)、经黏液真杆菌属(Blautia)和双歧杆菌属(Bifidobacterium)相对丰度均无显著差异(P>0.05)。
表4 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群属水平相对丰度的影响

Table 4 Effects of canine-derived Lactobacillus acidophilus GLA09 on relative abundance of intestinal flora at genus level of beagles (n=6) %

项目
Items
对照组
CK group
益生菌组
LA group
标准误差差值
SED
P
P-value
乳杆菌属Lactobacillus 4.39b 26.60a 7.76 0.02
梭杆菌属Fusobacterium 11.89 6.27 7.60 0.48
Peptoclostridium 13.91 4.53 4.37 0.06
Romboutsia 2.79 3.64 0.91 0.37
苏黎世杆菌属Turicibacter 6.95 3.53 2.98 0.28
Parasutterella 0.38b 2.82a 0.86 0.02
异杆菌属Allobaculum 7.58 3.41 4.30 0.36
经黏液真杆菌属Blautia 6.76 2.51 2.49 0.12
双歧杆菌属Bifidobacterium 1.22 2.99 1.32 0.21
其他Others 44.14 43.70 8.20 0.96

2.4 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群β多样性的影响

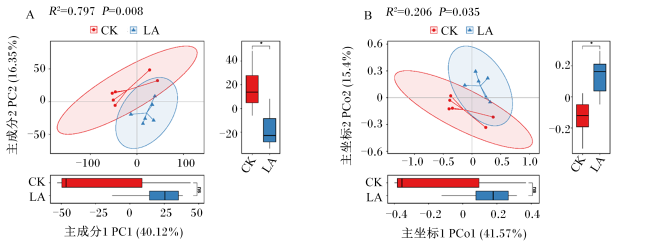
图1所示,LA组和CK组之间比格犬肠道菌群存在一定差异,主成分分析(principal component analysis,PCA)的主成分2(PC2,16.35%)坐标上2组比格犬肠道菌群差异显著(P<0.05);主坐标分析(principal co-ordinates analysis,PCoA)的主坐标2(PCo2,15.4%)坐标上2组比格犬肠道菌群差异显著(P<0.05),呈现各自聚类。
图1 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群β多样性的影响

A:主成分分析 PCA;B:主坐标分析PCoA。*:差异显著 significant difference (P<0.05)。

CK:对照组 control group;LA:益生菌组 probiotic group。下图同 the same as below。

Fig.1 Effects of canine-derived Lactobacillus acidophilus GLA09 on intestinal flora β diversity of beagles

2.5 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群LEfSe分析

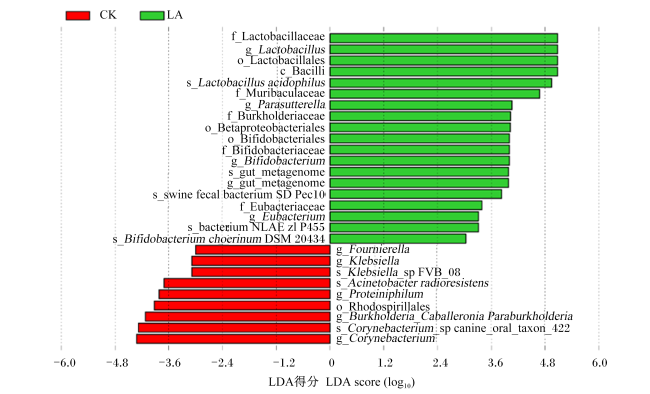
图2所示,与CK组相比,LA组注释到的差异生物标志物(LDA≥3.0)为芽孢杆菌纲(Bacilli)、乳酸杆菌目(Lactobacillales)、乳酸杆菌科(Lactobacillaceae)、乳杆菌属、嗜酸乳杆菌(Lactobacillus_acidophilus)、Muribaculaceae、Parasutterella、伯克氏菌科(Burkholderiaceae)、Betaproteobacteriales、双歧杆菌目(Bifidobacteriales)、双歧杆菌科(Bifidobacteriaceae)和双歧杆菌属。
图2 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群LEfSe分析

Lactobacillaceae:乳杆菌科;Lactobacillus:乳杆菌属; Lactobacillales:乳杆菌目;Bacilli:芽孢杆菌纲;Lactobacillus acidophilus:嗜酸乳杆菌;Burkholderiaceae:伯克氏菌科; Betaproteobacteriales:变形菌目; Bifidobacteriales:双歧杆菌目;Bifidobacteriaceae:双歧杆菌科;Bifidobacterium:双歧杆菌属; swine fecal bacterium SD Pec10:猪粪细菌SD Pec10;Eubacteriaceae:优杆菌科;Eubacterium:优杆菌属;bacterium NLAE zl P455:细菌NLAE zl P455;Bifidobacterium choerinum DSM 20434:豚双歧杆菌DSM 20434;Fournierella:弗兰克氏菌属;Klebsiella:克雷伯氏菌属;Klebsiella_sp FVB_08:克雷伯氏菌_sp FVB_08;Acinetobacter radioresistens:抗辐射不动杆菌;Proteiniphilum:产乙酸嗜蛋白质菌属; Rhodospirillales:红螺菌目;Burkholderia_Caballeronia Paraburkholderia:加勒比群岛副伯克霍尔德氏菌;Corynebacterium_sp canine_oral_taxon_422:帚石南棒杆菌_sp犬口腔分类群_422;Corynebacterium:帚石南棒杆菌属。

Fig.2 LEfSe analysis of canine-derived Lactobacillus acidophilus GLA09 on intestinal flora of beagles

2.6 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群代谢产物的影响

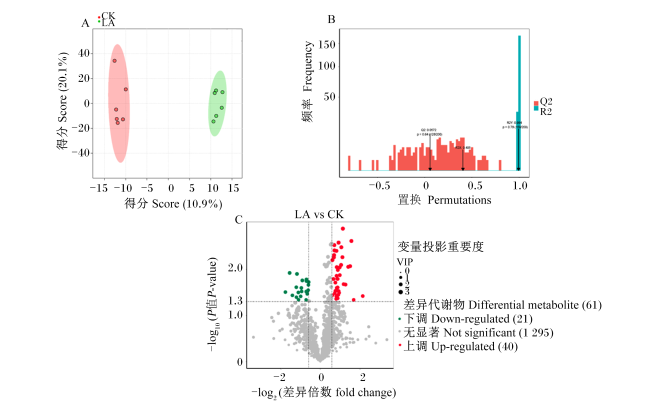
图3所示,LA组和CK组比格犬肠道菌群代谢产物的正交偏最小二乘法判别分析(orthogonal partial least squares-discriminant analysis,OPLS-DA)呈现各自聚类。使用置换检验进行模型验证,R2Y=0.994,约接近1,说明2组之间的差异较大。差异代谢物火山图显示,与CK组相比,LA组的肠道菌群有21个下调差异代谢物,40个上调差异代谢物。
图3 犬源嗜酸乳杆菌GLA09对比格犬肠道菌群代谢产物的影响

A:正交偏最小二乘法判别分析 OPLS-DA;B:置换检验 permutation test;C:差异代谢物火山图 differential metabolite volcanogram。

Fig.3 Effects of canine-derived Lactobacillus acidophilus GLA09 on intestinal flora metabolites of beagles

2.7 犬源嗜酸乳杆菌GLA09对比格犬KEGG代谢通路分析

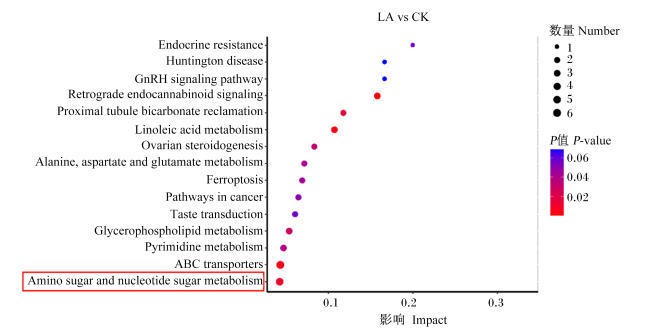
图4所示,与CK组相比,LA组的差异代谢产物注释到氨基糖和核苷酸糖的代谢通路(amino sugar and nucleotide sugar metabolism)、ABC转运蛋白(ABC transporters)、嘧啶代谢(pyrimidine metabolism)。其中,氨基糖和核苷酸糖的代谢通路中差异代谢产物有5种,分别是N-乙酰氨基葡萄糖(N-acetylglucosamine)、N-乙酰基-D-甘露糖胺(N-acetyl-D-mannosamine)、D-氨基葡萄糖6-磷酸钠(D-glucosamine 6-phosphate)、N-乙酰胞壁酸(N-acetylmuramic acid)和L-阿拉伯糖(L-arabinose),且均上调。
图4 犬源嗜酸乳杆菌GLA09对比格犬KEGG代谢通路分析

Endocrine resistance:内分泌抵抗;Huntington disease:亨廷顿病;GnRH signaling pathway:GnRH信号通路;Retrograde endocannabinoid signaling:逆行内源性大麻素信号;Proximal tubule bicarbonate reclamation:近端小管碳酸氢盐回收;Linoleic acid metabolism:亚油酸代谢;Ovarian steroidogenesis:卵巢类固醇生成;Alanine,aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;Ferroptosis:铁死亡;Pathways in cancer:癌症途径;Taste transduction:味觉传导通路;Glycerophospholipid metabolism:糖酰磷脂代谢;Pyrimidine metabolism:嘧啶代谢;ABC transporters:ABC转运蛋白;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖的代谢通路。

Fig.4 Analysis of canine-derived Lactobacillus acidophilus GLA09 on KEGG metabolites pathway of beagles

2.8 比格犬肠道菌群与差异代谢产物相关性分析

图5所示,乳杆菌属相对丰度与N-乙酰氨基葡萄糖、N-乙酰基-D-甘露糖胺、D-氨基葡萄糖6-磷酸钠、N-乙酰胞壁酸、L-阿拉伯糖、1-棕榈酰磷脂酰胆碱、1-硬脂酰-2-油酰基-sn-甘油(1-stearoyl-2-oleoyl-sn-glycerol)、甘油磷酸胆碱(glycerophosphocholine)、谷氨酸(glutamic acid)含量呈显著正相关(P<0.05)。Peptoclostridium相对丰度与N-乙酰基-D-甘露糖胺、甘油磷酸胆碱含量呈显著负相关(P<0.05)。Parasutterella相对丰度与N-乙酰氨基葡萄糖、N-乙酰基-D-甘露糖胺、N-乙酰胞壁酸、1-硬脂酰-2-油酰基-sn-甘油含量呈显著正相关(P<0.05)。双歧杆菌属相对丰度与N-乙酰基-D-甘露糖胺、N-乙酰胞壁酸、甘油磷酸胆碱含量呈极显著正相关(P<0.01)。
图5 比格犬肠道菌群与差异代谢产物相关性分析

Lactobacillus:乳杆菌属;Fusobacterium:梭杆菌属;Turicibacter:苏黎世杆菌属;Allobaculum:异杆菌属;Blautia:经黏液真杆菌属;Bifidobacterium:双歧杆菌属;N-acetylglucosamine:N-乙酰氨基葡萄糖;N-acetyl-D-mannosamine:N-乙酰基-D-甘露糖胺;D-glucosamine 6-phosphate:D-氨基葡萄糖6-磷酸钠;N-acetylmuramic acid:N-乙酰胞壁酸;L-arabinose:L-阿拉伯糖;1-palmitoyllysophosphatidylcholine:1-棕榈酰磷脂酰胆碱;1-stearoyl-2-oleoyl-sn-glycerol:1-硬脂酰-2-油酰基-sn-甘油;Glycerophosphocholine:甘油磷酸胆碱;Glutamic acid:谷氨酸。

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.5 Correlation analysis of intestinal flora and differential metabolites of beagles

* indicated significant correlation (P<0.05), and ** indicated extremely significant correlation (P<0.01).

3 讨论

益生菌在肠道中的浓度决定着其是否起到益生作用,益生菌在小肠中的浓度至少应为106 CFU/mL,在结肠中的浓度至少应为108 CFU/mL[19]。Ouwehand[20]报道,益生菌只有在较高剂量(>1010 CFU/d)时才能有效治疗抗生素相关性腹泻。本实验室之前的研究发现,饲喂2×1010 CFU/d的乳酸菌可显著提高比格犬的抗氧化能力和免疫功能[21]。本研究结果显示,各组比格犬肠道菌群优势菌门均为厚壁菌门、梭菌门、拟杆菌门、放线菌门和变形菌门,这与已经报道的结果[22]一致。本研究发现,嗜酸乳杆菌GLA09没有改变宿主肠道菌群的α多样性和优势菌门组成。LEfSe分析结果显示,LA组的比格犬乳酸杆菌目和双歧杆菌目的相对丰度较CK组上调。Rossi等[23]给健康犬饲喂益生混合物Slab51®,结果显示有益菌(双歧杆菌和乳酸杆菌)相对丰度明显增加,这与本研究结果一致。研究已经证实了几株乳酸杆菌具有防治急性腹泻和预防抗生素腹泻的潜力[24-25]。双歧杆菌被报道可通过阻断免疫检查点CTLA-4,增强肠道T细胞的功能,从而缓解肠道炎症[26]。值得注意的是,双歧杆菌和乳酸菌可以产生乳酸和乙酸,也可以通过与产生丁酸的微生物交叉喂养相互作用来增加丁酸的产量[27]。丁酸是肠道菌群和宿主代谢健康的重要中介,具有改善高脂饮食诱导的肥胖和高血糖/高胰岛素血症[28]。本研究结果显示,LA组的肠道乳酸杆菌和双歧杆菌相对丰度较CK组提高,表明嗜酸乳杆菌GLA09可能通过调节比格犬肠道有益菌的相对丰度影响丁酸的含量,防治宠物肥胖和高血糖[27-28]
本研究中,共注释到1 356个代谢产物,主要注释通路氨基糖和核苷酸糖的代谢通路,包含5种上调差异代谢产物:N-乙酰氨基葡萄糖、N-乙酰基-D-甘露糖胺、D-氨基葡萄糖6-磷酸钠、N-乙酰胞壁酸和L-阿拉伯糖。N-乙酰氨基葡萄糖是一种有益于骨骼和关节疾病的营养保健品,已广泛用于食品、化妆品和制药行业[29-30]。N-乙酰氨基葡萄糖能够促进成纤维细胞释放糖胺聚糖,恢复胃肠道黏膜的完整性和正常功能[31]。Peng等[32]给饲喂高脂粮的小鼠补充饲喂N-乙酰基-D-甘露糖胺能预防小鼠肥胖诱导的高血压。N-乙酰基-D-甘露糖胺还被报道可缓解与年龄相关的犬学习能力下降[33]L-阿拉伯糖也称为果胶糖,是一种戊糖,因其能抑制蔗糖吸收,调节血糖的功能而闻名[34]L-阿拉伯糖被报道具有调节肠道菌群、抗肥胖、减轻肠道炎症、损伤和缓解代谢综合征[35-37]。Li等[35]给肥胖小鼠补充L-阿拉伯糖,发现L-阿拉伯糖可减轻肥胖症状,改善胰岛素抵抗、脂质代谢和炎症反应,降低了厚壁菌门与拟杆菌门的比值。Xiang等[38]研究表明,L-阿拉伯糖可显著提高双歧杆菌和短链脂肪酸含量,从而促进肠道和机体健康。本研究中发现,LA组N-乙酰氨基葡萄糖、N-乙酰基-D-甘露糖胺、L-阿拉伯糖含量较CK组均提高,这些发现有助于为嗜酸乳杆菌GLA09在防治宠物肥胖、骨关节炎、胃肠道疾病方面的应用提供一个新的视角。此外,LA组注释到丙氨酸、天冬氨酸和谷氨酸代谢通路中主要上调的差异代谢产物是谷氨酸。谷氨酸是一种非必需氨基酸,可以通过不同的代谢途径在体内合成,其在神经元兴奋性、免疫力、行为机制(如中枢神经系统的学习和记忆)和抗肿瘤中起着重要作用[39-40]。谷氨酸在机体肠道中可调节谷胱甘肽的合成,谷胱甘肽是主要的细胞内抗氧化物质,可以抵消自由基的氧化损伤[41-42]。嗜酸乳杆菌GLA09在体外和小鼠试验中均显示出抗氧化特性,本研究结果显示,LA组谷氨酸含量较CK组增加,进一步证实了菌株的抗氧化应激能力,并且可能在神经调节、免疫和抗肿瘤中发挥作用[39]

4 结论

犬源嗜酸乳杆菌GLA09可提高比格犬肠道乳酸杆菌和双歧杆菌相对丰度,上调N-乙酰氨基葡萄糖、L-阿拉伯糖和谷氨酸等功能性代谢产物,从而改善肠道健康。
[1]
赵梦迪, 李光玉, 刘可园, 等. 饲粮和益生菌对犬、猫肠道菌群影响的研究进展[J]. 动物营养学报, 2022, 34(11):6817-6829.

DOI

ZHAO M D, LI G Y, LIU K Y, et al. Research progress on effects of diet and probiotics on gut microbiota in dogs and cats[J]. Chinese Journal of Animal Nutrition, 2022, 34(11):6817-6829. (in Chinese)

DOI

[2]
YANG Q, WU Z L. Gut probiotics and health of dogs and cats:benefits,applications,and underlying mechanisms[J]. Microorganisms, 2023, 11(10):2452.

[3]
AOUDIA N, RIEU A, BRIANDET R, et al. Biofilms of lactobacillus plantarum and Lactobacillus fermentum:effect on stress responses,antagonistic effects on pathogen growth and immunomodulatory properties[J]. Food Microbiology, 2016, 53(Pt A):51-59.

[4]
LA FATA G, WEBER P, MOHAJERI M H. Probiotics and the gut immune system:indirect regulation[J]. Probiotics and Antimicrobial Proteins, 2018, 10(1):11-21.

[5]
SANDERS M E, MERENSTEIN D J, REID G, et al. Author correction:probiotics and prebiotics in intestinal health and disease:from biology to the clinic[J]. Nature Reviews Gastroenterology & Hepatology, 2019, 16(10):642.

[6]
VAN BAARLEN P, WELLS J M, KLEEREBEZEM M. Regulation of intestinal homeostasis and immunity with probiotic Lactobacilli[J]. Trends in Immunology, 2013, 34(5):208-215.

[7]
KIM W K, HAN D H, JANG Y J, et al. Alleviation of DSS-induced colitis via Lactobacillus acidophilus treatment in mice[J]. Food & Function, 2021, 12(1):340-350.

[8]
KYE Y J, LEE S Y, KIM H R, et al. Lactobacillus acidophilus PIN7 paraprobiotic supplementation ameliorates DSS-induced colitis through anti-inflammatory and immune regulatory effects[J]. Journal of Applied Microbiology, 2022, 132(4):3189-3200.

[9]
DOGI C A, PERDIGÓN G. Importance of the host specificity in the selection of probiotic bacteria[J]. The Journal of Dairy Research, 2006, 73(3):357-366.

[10]
LEE J Y, HAN G G, CHOI J, et al. Pan-genomic approaches in Lactobacillus reuteri as a porcine probiotic:investigation of host adaptation and antipathogenic activity[J]. Microbial Ecology, 2017, 74(3):709-721.

[11]
KAINULAINEN V, TANG Y R, SPILLMANN T, et al. The canine isolate Lactobacillus acidophilus LAB20 adheres to intestinal epithelium and attenuates LPS-induced IL-8 secretion of enterocytes in vitro[J]. BMC Microbiology, 2015, 15(1):4.

[12]
COMAN M M, VERDENELLI M C, CECCHINI C, et al. Probiotic characterization of Lactobacillus isolates from canine faeces[J]. Journal of Applied Microbiology, 2019, 126(4):1245-1256.

[13]
PILLA R, SUCHODOLSKI J S. The role of the canine gut microbiome and metabolome in health and gastrointestinal disease[J]. Frontiers in Veterinary Science, 2019,6:498.

[14]
LAFLAMME D. Development and validation of a body condition score system for dogs[J]. Canine Practice, 1997, 22(4):10-15.

[15]
NRC. Nutrient requirements of dogs and cats[S]. Washington,D.C.:The National Academies Press, 2006.

[16]
张丽英. 饲料分析及饲料质量检测技术[M]. 3版. 北京: 中国农业大学出版社, 2007.

ZHANG L Y. Feed analysis and feed quality testing technology[M]. 3rd ed. Beijing: China Agricultural University Press, 2007. (in Chinese)

[17]
STACKEBRANDT E, GOEBEL B M. Taxonomic note:a place for DNA-DNA reassociation and 16s rRNA sequence analysis in the present species definition in bacteriology[J]. International Journal of Systematic and Evolutionary Microbiology. 1994, 44(4):846-849.

[18]
MILLER G E, ENGEN P A, GILLEVET P M, et al. Lower neighborhood socioeconomic status associated with reduced diversity of the colonic microbiota in healthy adults[J]. PLoS One, 2016, 11(2):e0148952.

[19]
MINELLI E B, BENINI A. Relationship between number of bacteria and their probiotic effects[J]. Microbial Ecology in Health and Disease, 2008, 20(4):180-183.

[20]
OUWEHAND A C. A review of dose-responses of probiotics in human studies[J]. Beneficial Microbes, 2017, 8(2):143-151.

DOI PMID

[21]
ZHAO M D, ZHANG Y Y, LI Y Y, et al. Impact of Pediococcus acidilactici GLP06 supplementation on gut microbes and metabolites in adult beagles:a comparative analysis[J]. Frontiers in Microbiology, 2024,15:1369402.

[22]
ROSTAHER A, MORSY Y, FAVROT C, et al. Comparison of the gut microbiome between atopic and healthy dogs-preliminary data[J]. Animals, 2022, 12(18):2377.

[23]
ROSSI G, PENGO G, GALOSI L, et al. Effects of the probiotic mixture slab51(SivoMixx) as food supplement in healthy dogs:evaluation of fecal microbiota,clinical parameters and immune function[J]. Frontiers in Veterinary Science, 2020,7:613.

[24]
LEBEER S, VANDERLEYDEN J, DE KEERSMAECKER S C J. Genes and molecules of Lactobacilli supporting probiotic action[J]. Microbiology and Molecular Biology Reviews, 2008, 72(4):728-764.

[25]
SAZAWAL S, HIREMATH G, DHINGRA U, et al. Efficacy of probiotics in prevention of acute diarrhoea:a Meta-analysis of masked,randomised,placebo-controlled trials[J]. The Lancet Infectious Diseases, 2006, 6(6):374-382.

[26]
SUN S, LUO L J, LIANG W H, et al. Bifidobacterium alters the gut microbiota and modulates the functional metabolism of T regulatory cells in the context of immune checkpoint blockade[J]. Proceedings of the National Academy of Sciences of the United States of America, 2020, 117(44):27509-27515.

DOI PMID

[27]
SONG M, CHAN A T, SUN S, et al. Influence of the gut microbiome,diet and environment on risk of colorectal cancer[J]. Gastroenterology, 2020, 158(2):322-340.

[28]
ZHANG L, LIU C D, JIANG Q Y, et al. Butyrate in energy metabolism:there is still more to learn[J]. Trends in Endocrinology & Metabolism, 2021, 32(3):159-169.

[29]
CHEN J K, SHEN C R, LIU C L. N-acetylglucosamine:production and applications[J]. Marine Drugs, 2010, 8(9):2493-2516.

[30]
LIU Y F, LIU L, SHIN H D, et al. Pathway engineering of Bacillus subtilis for microbial production of N-acetylglucosamine[J]. Metabolic Engineering, 2013,19:107-115.

[31]
KARZEL K, DOMENJOZ R. Effects of hexosamine derivatives and uronic acid derivatives on glycosaminoglycane metabolism of fibroblast cultures[J]. Pharmacology, 1971, 5(6):337-345.

PMID

[32]
PENG J, VONGPATANASIN W, SACHARIDOU A, et al. Supplementation with the sialic acid precursor N-acetyl-D-mannosamine breaks the link between obesity and hypertension[J]. Circulation, 2019, 140(24):2005-2018.

DOI PMID

[33]
NAGASAWA M, SHIMOZAWA A, MOGI K, et al. N-acetyl-D-mannosamine treatment alleviates age-related decline in place-learning ability in dogs[J]. The Journal of Veterinary Medical Science, 2014, 76(5):757-761.

[34]
OSAKI S, KIMURA T, SUGIMOTO T, et al. L-arabinose feeding prevents increases due to dietary sucrose in lipogenic enzymes and triacylglycerol levels in rats[J]. The Journal of Nutrition, 2001, 131(3):796-799.

[35]
LI X F, CAI Z F, LIU J, et al. Antiobesity effect of L-arabinose via ameliorating insulin resistance and modulating gut microbiota in obese mice[J]. Nutrition, 2023,111:112041.

[36]
LI Y, PAN H O, LIU J X, et al. l-arabinose inhibits colitis by modulating gut microbiota in mice[J]. Journal of Agricultural and Food Chemistry, 2019, 67(48):13299-13306.

DOI PMID

[37]
KANG L Y, PANG J M, ZHANG X Y, et al. L-arabinose attenuates LPS-induced intestinal inflammation and injury through reduced M1 macrophage polarization[J]. The Journal of Nutrition, 2023, 153(11):3327-3340.

[38]
XIANG S, GE Y, ZHANG Y, et al. L-arabinose exerts probiotic functions by improving gut microbiota and metabolism in vivo and in vitro[J]. Journal of Functional Foods, 2024, 113(6):106047.

[39]
YELAMANCHI S D, JAYARAM S, THOMAS J K, et al. A pathway map of glutamate metabolism[J]. Journal of Cell Communication and Signaling, 2016, 10(1):69-75.

DOI PMID

[40]
DUTTA S, RAY S, NAGARAJAN K. Glutamic acid as anticancer agent:an overview[J]. Saudi Pharmaceutical Journal, 2013, 21(4):337-343.

[41]
YOUNG V R, AJAMI A M. Glutamate:an amino acid of particular distinction[J]. The Journal of Nutrition, 2000, 130(4):892S-900S.

[42]
SHANWARE NP, MULLEN AR, DEBERARDINIS RJ, et al. Glutamine:pleiotropic roles in tumor growth and stress resistance[J]. Journal of Molecular Medicine, 2011, 89(3):229-236.

文章导航

/