研究论文

菊粉通过调节肠道菌群改善Ⅱ型糖尿病小鼠的认知功能障碍

  • 冯焱 , 1 ,
  • 蒙爱 1, * ,
  • 魏思昂 1, 2 ,
  • 李旭旭 1 ,
  • 王磊 3 ,
  • 赵燕 , 4, ** ,
  • 薛智权 1 ,
  • 丁志文 2
展开
  • 1 山西农业大学生命科学学院,太谷 030800
  • 2 复旦大学附属中山医院,上海 200030
  • 3 山西医科大学基础医学院,太原 030001
  • 4 山西农业大学动物科技学院,太谷 030800
** 赵 燕,副教授,硕士生导师,E-mail:

* 同等贡献作者

冯 焱(1974—),女,山西太原人,副教授,博士,主要从事动物营养与肠道健康研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-01-25

  网络出版日期: 2024-11-09

基金资助

山西省自然科学基金资助项目(20210302124081)

山西省科研基金项目(2022HX159)

Inulin Ameliorates Cognitive Dysfunction in Type Ⅱ Diabetic Mice by Regulating Intestinal Flora

  • FENG Yan , 1 ,
  • MENG Ai 1, * ,
  • WEI Siang 1, 2 ,
  • LI Xuxu 1 ,
  • WANG Lei 3 ,
  • ZHAO Yan , 4, ** ,
  • XUE Zhiquan 1 ,
  • DING Zhiwen 2
Expand
  • 1 College of Life Science, Shanxi Agricultural University, Taigu 030800, China
  • 2 Zhongshan Hospital Affiliated to Fudan University, Shanghai 200030, China
  • 3 College of Basic Medicine, Shanxi Medical University, Taiyuan 030001, China
  • 4 College of Animal Science, Shanxi Agricultural University, Taigu 030800, China
** associate professor, E-mail:

* Contributed equally

Received date: 2024-01-25

  Online published: 2024-11-09

摘要

本试验利用高脂饮食联合链脲佐菌素构建Ⅱ型糖尿病(T2D)模型,旨在探究菊粉对T2D小鼠认知功能的影响。将45只小鼠随机分为3组,每组15只,单笼饲养。正常组(Con组)饲喂普通饲粮,模型组(T2D组)饲喂高脂饲粮,菊粉干预组(DI组)饲喂添加10%菊粉的高脂饲粮,适应性饲喂1周后进行8周的饲养试验。结果显示: 菊粉可显著缓解T2D小鼠体重损失(从第4周开始)(P<0.05),显著或极显著降低空腹血糖(从第4周开始)(P<0.05或P<0.01);显著降低血清低密度脂蛋白胆固醇(LDL-C)和总胆固醇(TC)水平(P<0.05),并显著升高血清高密度脂蛋白胆固醇(HDL-C)水平(P<0.05)。此外,菊粉可改善T2D小鼠认知行为和海马神经元损伤;显著或极显著上调海马中核因子E2相关因子2(Nrf2)和血红素氧合酶-1(HO-1)的mRNA和蛋白相对表达量(P<0.05或P<0.01),极显著下调高迁移率族蛋白B1(HMGB1)的蛋白相对表达量(P<0.01);显著降低血清与海马中白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)以及海马中白细胞介素-6(IL-6)含量(P<0.05);显著降低海马中丙二醛(MDA)含量(P<0.05),极显著升高超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性(P<0.01)。T2D小鼠结肠中乳球菌属(Lactococcus)、魏斯氏菌属(Weissella)、杜氏杆菌属(Dubosiella)、库特氏菌属(Kurthia)和丹毒丝菌科未分类属(unclassified_f_Erysipelotrichaceae)等富集,结肠内容物中乙酸、丁酸、异戊酸、戊酸、己酸和总短链脂肪酸(SCFAs)含量均极显著降低(P<0.01);菊粉的添加使T2D小鼠结肠中双歧杆菌属(Bifidobacterium)、粪杆菌属(Faecalibaculum)和回肠杆菌属(Ileobacterium)等富集,结肠内容物中乙酸、丁酸、异戊酸、戊酸和己酸含量显著或极显著增加(P<0.05或P<0.01)。综上可知,菊粉可调节结肠菌群结构及其代谢产物SCFAs的产生,改善T2D小鼠的体重和空腹血糖,调节血脂水平、血清与海马中炎症因子含量,调控海马中Nrf2、HO-1和HMGB1表达,同时改善海马中氧化应激指标,对T2D小鼠海马神经元损伤和认知行为起到改善作用。

本文引用格式

冯焱 , 蒙爱 , 魏思昂 , 李旭旭 , 王磊 , 赵燕 , 薛智权 , 丁志文 . 菊粉通过调节肠道菌群改善Ⅱ型糖尿病小鼠的认知功能障碍[J]. 动物营养学报, 2024 , 36(11) : 7305 -7319 . DOI: 10.12418/CJAN2024.622

Abstract

This study aimed to explore the effects of inulin on cognitive function of type 2 diabetes (T2D) mice. The T2D model was constructed by high-fat diet combined with streptozotocin. Forty-five mice were randomly divided into 3 groups with 15 mice in each group, and each mouse was kept in a single cage. Mice in normal group (Con group) were fed with a normal diet, those in model group (T2D group) were fed a high-fat diet, and those in inulin intervention group (DI group) were fed the high-fat diet supplemented with 10% inulin. The feeding experiment was carried out for 8 weeks after adaptive feeding for 1 week. The results showed that inulin significantly alleviated the weight loss in T2D mice (starting from week 4, P<0.05), significantly reduced the fasting blood glucose (starting from week 4, P<0.05), significantly decreased serum low-density lipoprotein-cholesterol (LDL-C) and total cholesterol (TC) levels (P<0.05), and significantly increased serum high-density lipoprotein-cholesterol (HDL-C) level (P<0.05). In addition, inulin improved the cognitive behavioral and hippocampal neuronal damage in T2D mice, significantly or extremely significantly un-regulated the mRNA and protein relative expression levels of nuclear factor E2 related factor 2 (Nrf2) and heme oxygenase-1 (HO-1) (P<0.05 or P<0.01), and extremely significantly down-regulated the protein relative expression level of high mobility group box protein 1 (HMGB1) (P<0.01). Inulin significantly decreased the contents of interleukin-1β (IL-1β) and tumor necrosis factor-α (TNF-α)in serum and hippocampus, and interleukin-6 (IL-6) in hippocampus (P<0.05). Inulin significantly decreased the content of malondialdehyde (MDA) in hippocampus (P<0.05), and extremely significantly increased the activities of superoxide dismutase (SOD) and glutathione peroxidase (GSH-Px) in hippocampus (P<0.01). The enrichment of Lactobacillus, Weissella, Dubosiella, Kurthia and unclassified_f_erysipelotrichaceae in T2D mice, and resulted in an extremely significantly decrease in the contents of acetic acid, butyric acid, isovaleric acid, valeric acid, hexanoic acid and total short-chain fatty acids (SCFAs) in the colon contents (P<0.01); the addition of inulin enriched Bifidobacterium, Faecalibacterium and Ileobacterium in T2D mice, and significantly or extremely significantly increased the contents of acetic acid, butyric acid, isovaleric acid, valeric acid andhexanoic acid in the colon contents (P<0.05 or P<0.01). In conclusion, inulin can affect the structure of the colon microbiota and the production of its metabolites SCFAs, improve T2D mice’ weight and FBG, regulate blood lipid level, serum and hippocampal inflammatory factor contents, regulate Nrf2, HO-1 and HMGB1 expression and improve oxidative stress-related indicators in the hippocampus, and it play an important role in reducing hippocampal neuronal damage and cognitive behaviors.

糖尿病(diabetes mellitus,DM)在全球范围内越来越普遍,导致医疗保健负担增加,生活质量下降,患者的预期寿命缩短。其中,Ⅱ型糖尿病(type 2 diabetes,T2D)约占所有糖尿病的90%[1]。不幸的是,T2D与一系列慢性并发症有关,这些并发症会影响多个器官,包括大脑和神经系统[2]。T2D相关认知功能障碍(T2D-associated cognitive disorders,TDACD)受到越来越多的关注[3],表现为神经性退行变或认知能力下降,导致精神运动速度、信息处理速度和注意力持续时间下降,如果不治疗可能发展为阿尔茨海默病(Alzheimer’s disease,AD)。尽管有研究表明,T2D中氧化应激和炎症水平的升高是导致神经损伤和认知功能受损的关键因素[4],但其发生的机制仍不完全清楚,且该领域的研究处于初始阶段,其缺乏有效的治疗策略。目前还没有可行的治疗方法可以逆转或完全停止该疾病的进程,而市场上销售的治疗药物只能延迟或略微改善认知功能。因此,积极寻找和开发改善TDACD的药物至关重要。
“肠道微生物-肠-脑”轴在TDACD中的调节作用已成为研究者讨论的一个主要领域。肠道微生物通过调节血脑屏障通透性、大脑能量内稳态和突触传递,对维持肠道健康和调节认知功能至关重要[5-6],同时其在T2D脑病中也起重要调节作用[7-8]。菊粉(inulin)是一种膳食纤维,胃酸不能将其水解和消化,从而降低食物吸收效率和速度以及餐后血糖水平[9]。然而菊粉可被肠道微生物发酵,有利于宿主微生物群落[10],并产生在宿主体内的能量供应中起着关键作用的短链脂肪酸(short chain fatty acids,SCFAs),SCFAs反过来可以促进益生菌的定植。研究发现,菊粉可以改变肠道菌群的结构[11-14],其在T2D和认知障碍(cognitive impairment,CI)中具有治疗和预防方面的优势,但菊粉如何影响TDACD的发展尚不清楚。本试验利用高脂饮食联合链脲佐菌素(streptozotocin,STZ)构建T2D小鼠模型,用含10%的菊粉饮食进行干预,探究菊粉对T2D小鼠生理生化指标、认知行为、炎症与海马氧化应激水平、肠道微生物及其代谢产物SCFAs等的影响,以期为菊粉调节肠道微生物结构的靶向治疗TDACD提供理论依据。

1 材料与方法

1.1 试验材料

试验用菊粉纯度为95%,聚合度为2~60。

1.2 试验动物

试验动物为45只无特定病原体(specific pathogen free,SPF)级的8周龄雄性C57BL/6J小鼠,体重19.4~25.1 g,由北京唯尚立德生物科技有限公司提供[许可证号:SCXK(京)2021-0010],饲养于北京唯尚立德生物科技有限公司动物育种中心[许可证号:SYXK(北京)2016-0039],动物伦理委员会批准号:20200037。

1.3 试验饲粮

试验用普通饲粮(货号:SWS9102)和高脂饲粮(货号:D12492)均购自江苏省协同医药生物工程有限责任公司。普通饲粮的营养物质含量:粗蛋白质19.00%、粗脂肪4.00%、粗纤维5.00%、粗灰分8.00%、钙1.20%、有效磷0.80%;供能比:蛋白质20.60%、脂肪12.00%和碳水化合物67.40%。高脂饲粮是在普通饲粮配方的基础上添加猪油等原料配制而成,其组成及营养水平见表1
表1 高脂饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the high-fat diet (DM basis) %

项目Items 含量Content
原料Ingredients
普通饲粮Common diet 38.00
猪油Lard 28.00
蔗糖Sucrose 5.60
全脂奶粉Whole milk powder 10.80
酪蛋白Casein 11.50
微晶纤维素MCC 1.90
预混料Premix1) 2.00
磷酸氢钙CaHPO4 1.80
石粉Limestone 0.40
合计Total 100.00
营养水平Nutrient levels2)
粗蛋白质CP 23.25
粗脂肪EE 34.55
粗纤维CF 3.02
粗灰分Ash 4.43
钙Ca 1.08
总磷TP 0.71
供能比Provided energy ratios
蛋白质Protein 18.14
脂肪Fat 60.65
碳水化合物Carbohydrate 21.22
合计Total 100.00

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 7 000 IU,VD 800 IU,VE 60 IU,VK 3 mg,VB1 8 mg,VB2 10 mg,VB6 6 mg,VB12 0.02 mg,烟酸 nicotinic acid 45 mg,泛酸 pantothenic acid 17 mg,叶酸 folic acid 4 mg,生物素 biotin 0.1 mg,胆碱 choline 1 250 mg,Mg 2 g,K 5 g,Na 2 g,Cu 10 mg,Fe 100 mg,Mn 75 mg,Zn 30 mg,I 0.5 mg,Se 0.1 mg。

2) 营养水平均为实测值。Nutrient levels were measured values.

1.4 试验设计

将试验动物随机分为3个组,即正常组(Con组)、模型组(T2D组)和菊粉干预组(DI组),每组15只,单笼饲养。Con组给予普通饲粮,T2D组给予高脂饲粮,DI组给予添加10%菊粉的高脂饲粮,小鼠适应性饲喂1周后开始正式试验,持续饲喂8周。在正式饲喂4周后,T2D组和DI组小鼠连续2 d以75 mg/kg BW的剂量腹腔注射STZ,Con组则注射等体积柠檬酸缓冲液(pH 4.5)。4周后测定空腹血糖(fasting blood glucose,FBG),FBG≥11.1 mmol/L即为建模成功。

1.5 样品采集与制备

试验结束后,用2%的戊巴比妥钠麻醉小鼠,每组取10只小鼠眼眶采血,4 ℃静置凝固,5 000×g离心10 min,吸取上清,分装于-20 ℃保存待测;采血后颈椎脱臼处死小鼠,置于超净工作台,取一部分海马组织和结肠内容物于1.5 mL冻存管,立即存放至液氮后再转到-80 ℃保存;另取一部分海马组织样本,以重量(g)∶体积(mL)=1∶9的比例加入磷酸盐缓冲液(PBS)制作10%海马组织匀浆;再取一部分海马组织,于4%甲醛中固定,之后用梯度乙醇依次脱水,再依次进行二甲苯透明、石蜡包埋和切片,用于组织结构观察。

1.6 指标测定

1.6.1 饲粮营养成分含量测定

饲粮中粗蛋白质含量的测定参照GB/T 6432—2018,粗脂肪含量的测定参照GB/T 6433—2006,粗纤维含量的测定参照GB/T 6434—2006,粗灰分含量的测定参照GB/T 6438—2007,钙含量的测定参照GB/T 6436—2018,总磷含量的测定参照GB/T 6437—2018。

1.6.2 体重及FBG测定

试验期间,在每周末分别测定小鼠的体重和FBG。FBG检测前禁食不禁水12 h,酒精消毒尾尖,用洁净的手术刀在尾尖部分剪去0.5 mm左右,用手从尾根向尾尖挤压按摩,弃去第1滴血后使用便捷式(罗氏)血糖仪记录数值。

1.6.3 行为学测试

饲养试验结束前1周,采用Morris水迷宫法评估小鼠的空间记忆和学习能力。行为学测试分为定位导航和空间探索试验,每组选5只纳入测试,采用Smart 3.0小动物行为学视频记录与分析系统(深圳瑞沃德生命科技有限公司)分析。

1.6.4 血脂水平测定

使用生工生物工程(上海)股份有限公司生产的试剂盒测定血清中甘油三酯(triglycerides,TG)、总胆固醇(total cholesterol,TC)、高密度脂蛋白胆固醇(high density lipoprotein cholesterol,HDL-C)和低密度脂蛋白胆固醇(low density lipoprotein cholesterol,LDL-C)水平,按照试剂盒说明书方法操作。

1.6.5 海马中氧化应激指标测定

使用南京建成生物工程研究所生产的试剂盒测定海马中丙二醛(malondialdehyde,MDA)、谷胱甘肽(glutathione,GSH)含量与超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)活性,按照试剂盒说明书方法操作。

1.6.6 血清和海马中炎症因子含量测定

遵循酶联免疫吸附试验(ELISA)法测定血清和海马中白细胞介素-6(interleukin-6,IL-6)、白细胞介素-1β(interleukin-1β,IL-1β)和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)含量,试剂盒购于生工生物工程(上海)股份有限公司。

1.6.7 实时荧光定量PCR(RT-qPCR)

采用TRIzol技术分离海马的总RNA,TRIzol购自生工生物工程(上海)股份有限公司,按照TaKaRa公司说明书将RNA逆转录成cDNA,并进行RT-qPCR,引物序列见表2。以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt法检测目的基因核因子E2相关因子2(nuclear factor E 2 related factor 2,Nrf2)、血红素氧合酶-1(heme oxygenase-1,HO-1)与高迁移率族蛋白B1( high mobility group box protein 1,HMGB1)的mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因名称Gene names 引物序列Primer sequence
β-肌动蛋白β-actin F:5'-AGGGAAATCGTGCGTGAC-3'
R:5'-CATACCCAAGAAGGAAGGCT-3'
核因子E2相关因子2 Nrf2 F:5'-CCCAGCACATCCAGACAGAC-3'
R:5'-TATCCAGGGCAAGCGACTC-3'
血红素氧合酶-1 HO-1 F:5'-CCCTTCCTGTGTCTTCCTTTG-3'
R:5'-ACAGCCGCCTCTACCGACCACA-3'
高迁移率族蛋白B1 HMGB1 F:5'-TGGACTGCTCAGGAAAAC-3'
R:5'-AGGGGCAAACCGTAAT-3'

1.6.8 蛋白质免疫印迹(Western blot)

称重约30 mg海马组织进行裂解,然后使用生工生物工程(上海)股份有限公司生产的BCA蛋白浓度测定试剂盒测定蛋白质浓度。将样品蛋白加热变性(95 ℃,10~15 min),变性蛋白先进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE),之后进行转移、封闭等,并与相关抗体进行孵育后用ECL显影,使用Image J软件捕获图像进行分析。

1.6.9 海马组织结构观察

将4 μm厚的切片进行苏木精-伊红(HE)染色,显微镜下观察,用Image J软件识别并统计神经元细胞数量。

1.6.10 结肠内容物中SCFAs含量检测

使用8890B-5977BGC/MSD气相色谱仪(安捷伦)和HPFFAP毛细管柱(型号:19091F-433E)对结肠内容物中进行SCFAs检测,并以2-乙基丁酸为内参,评估结肠内容物中8种SCFAs的含量。

1.6.11 结肠菌群多样性分析

应用试剂盒提取结肠细菌基因组,利用通用上游引物338F(5'-ACTCCTACGGGGGAGGCAGCAG-3')和下游引物806R(5'-GGACTACHVGGGGTWTCTAAT-3')扩增16S rDNA的V3~V4区域,随后评估扩增产物的条带大小和同质性。样本存于-80 ℃冰箱,利用Illumina测序平台对扩增的细菌16S rDNA片段的序列进行分析。

1.7 统计学分析

试验数据用平均值±标准误(mean±SE)表示。应用SPSS 20.0软件进行统计分析,各组试验数据经方差齐性检验后采用t检验进行两两比较,以P<0.05为差异显著,P<0.01为差异极显著。使用Origin 8.0绘制图表。微生物多样性借助美吉生物云计算平台(https://www.i-sanger.com/)分析。

2 结果与分析

2.1 菊粉对T2D小鼠体重及FBG的影响

表3可知,从第1周开始T2D组体重显著高于Con组(P<0.05),从第4周开始DI组体重显著高于T2D组(P<0.05)。在整个试验过程中,T2D组和DI组FBG均极显著高于Con组(P<0.01),符合T2D造模的特征。DI组的FBG在第4周显著低于T2D组(P<0.05),之后继续降低,在第5~8周极显著低于T2D组(P<0.01)。
表3 小鼠体重和FBG变化

Table 3 Changes in body weight and FBG of mice (n=15)

时间
Time
体重Body weight/g 空腹血糖FBG/(mmol/L)
Con组
Con group
T2D组
T2D group
DI组
DI group
Con组
Con group
T2D组
T2D group
DI组
DI group
第1周Week 1 21.17±0.31 23.16±0.20* 21.25±0.17 7.16±0.11 15.65±0.15** 15.37±0.15**
第2周Week 2 21.49±0.29 23.54±0.20* 22.16±0.25 7.27±0.09 15.71±0.17** 15.03±0.14**
第3周Week 3 21.96±0.35 24.00±0.25* 22.80±0.27 7.17±0.11 15.81±0.16** 15.19±0.12**
第4周Week 4 22.26±0.41 23.50±0.27* 24.91±0.29# 7.15±0.16 15.91±0.15** 14.88±0.13**#
第5周Week 5 22.68±0.40 24.17±0.28* 25.54±0.32# 7.50±0.14 16.31±0.17** 14.68±0.12**##
第6周Week 6 22.88±0.38 24.56±0.25* 26.01±0.32# 7.51±0.13 16.33±0.20** 14.40±0.10**##
第7周Week 7 23.41±0.27 25.00±0.23* 26.35±0.30# 7.52±0.12 16.45±0.18** 13.81±0.11**##
第8周Week 8 23.99±0.35 25.73±0.24* 26.93±0.25# 7.63±0.14 16.61±0.20** 13.09±0.14**##

与Con组相比,T2D组和DI组数据标注“*”表示差异显著(P<0.05),标注“**”表示差异极显著(P<0.01);与T2D组相比,DI组数据标注“#”表示差异显著(P<0.05),标注“##”表示差异极显著(P<0.01)。

Compared with the Con group, values of the T2D group and DI group marked with “*” indicated significant difference (P<0.05), and marked with “**” indicated extremely significant difference (P<0.01); compared with the T2D group, values of the DI group marked with “#” indicated significant difference (P<0.05), and marked with “##” indicated extremely significant difference (P<0.01).

2.2 菊粉对T2D小鼠血脂水平的影响

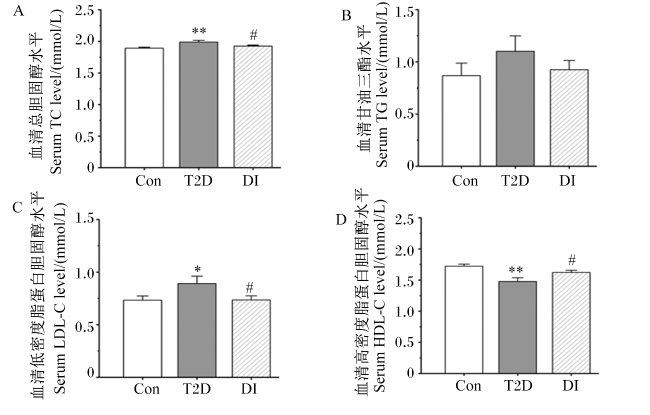
图1可知,T2D组血清TC和LDL-C水平显著或极显著高于Con组(P<0.05或P<0.01),而DI组和Con组间无显著差异(P>0.05);与T2D组比,DI组血清TC和LDL-C水平显著降低(P<0.05),而HDL-C水平显著升高(P<0.05);虽然T2D组血清TG水平略高于其他组,但各组间无显著差异(P>0.05)。
图1 小鼠血脂水平

Con:Con组;T2D:T2D组;DI:DI组。与Con组相比,T2D组和D1组数据柱标注“*”表示差异显著(P<0.05),标注“**”表示差异极显著(P<0.01);与T2D组相比,DI组数据柱标注“#”表示差异显著(P<0.05),标注“##”表示差异极显著(P<0.01)。图2图6同。

Fig.1 Serum lipid levels of mice (n=10)

Con: Con group; T2D: T2D group; DI: DI group. Compared with the Con group, data columns of the T2D group and DI group marked with “*” indicated significant difference (P<0.05), and marked with “**” indicated extremely significant difference (P<0.01); compared with the T2D group, data columns of the DI group marked with “#” indicated significant difference (P<0.05), and marked with “##” indicated extremely significant difference (P<0.01). The same as Fig.2 to Fig.6.

2.3 菊粉对T2D小鼠认知行为的影响

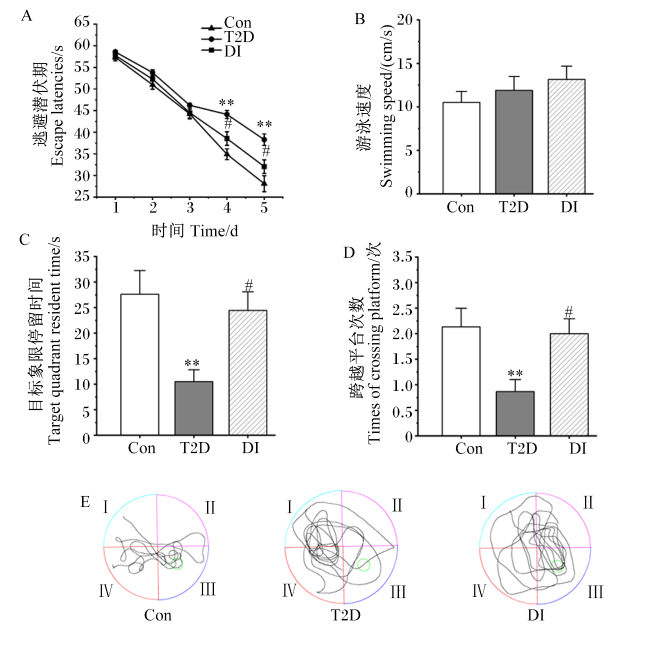
Morris水迷宫表明各组小鼠的逃避潜伏期均随着训练时间的增加而降低;从第4天开始,T2D组的逃避潜伏期极显著大于Con组(P<0.01),而DI组则显著小于T2D组(P<0.05)并与Con组接近(图2-A)。各组的游泳速度差异不显著(P>0.05)(图2-B)。T2D组在目标象限的停留时间极显著短于Con组(P<0.01),而DI组则显著长于T2D组(P<0.05)(图2-C)。DI组小鼠的跨越平台次数显著多于T2D组(P<0.05),而T2D组跨越平台的次数极显著少于Con组(P<0.01)(图2-D)。图2-E显示了各组小鼠空间探索的运动轨迹。
图2 小鼠水迷宫指标和运动轨迹

A:定位导航试验的逃避潜伏期;B:空间探索试验的游泳速度;C:空间探索试验的目标象限停留时间;D:空间探索试验的跨越平台次数;E:空间探索试验的运动轨迹。

Fig.2 Water maze indicators and movement trajectories of mice (n=15)

A: escape latency of localization navigation experiment; B: swimming speed of spatial exploration experiment; C: retention time of target quadrant of spatial exploration experiment; D: number of times of crossing platforms of spatial exploration experiment; E: movement trajectory of spatial exploration experiment.

2.4 菊粉对T2D小鼠海马组织结构的影响

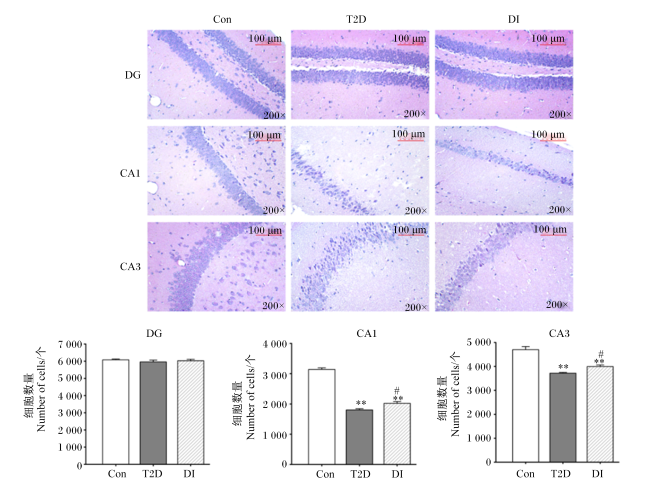
图3可知,各组海马DG区神经元细胞数量和形状没有明显变化,Con组海马CA1和CA3区的神经元清晰而整齐排列,细胞大小和形态一致;相较Con组,T2D组CA1和CA3区中神经元细胞稀疏并排列混乱,且神经元细胞数量极显著降低(P<0.01);相较T2D组,DI组CA1和CA3区的神经元表现出不同程度的改善,排列整齐且数量显著增加(P<0.05)。总体上来看,菊粉改善了T2D诱导的海马神经元细胞损伤。
图3 小鼠海马组织形态(HE染色)

Fig.3 Morphology of hippocampus tissue of mice (HE staining,n=5)

2.5 菊粉对T2D小鼠血清和海马中炎症因子含量的影响

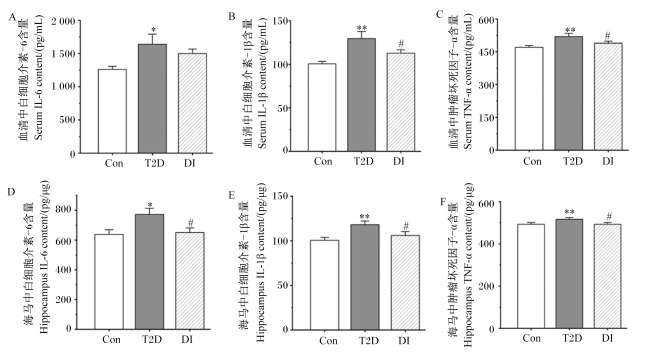
在血清中,T2D组IL-6、IL-1β和TNF-α含量显著或极显著高于Con组(P<0.05或P<0.01),而DI组IL-1β和TNF-α含量显著低于T2D组(P<0.05)(图4-A图4-B图4-C)。海马中炎症因子含量变化与血清中相似,T2D组IL-6、IL-1β和TNF-α含量显著或极显著高于Con组(P<0.05或P<0.01),DI组上述三者的含量均显著低于T2D组(P<0.05)(图4-D图4-E图4-F)。
图4 小鼠血清和海马中炎症因子含量

Fig.4 Contents of inflammatory factors in serum and hippocampal of mice (n=10)

2.6 菊粉对T2D小鼠海马中氧化应激指标的影响

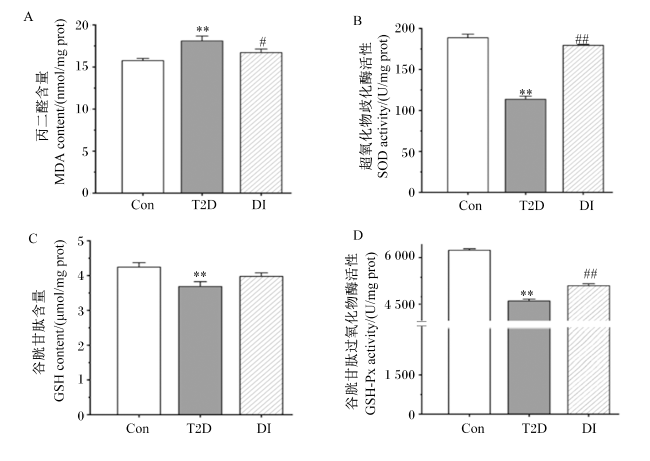
图5可知,与Con组相比,T2D组海马中MDA含量极显著升高(P<0.01),SOD、GSH-Px活性和GSH含量极显著降低(P<0.01);与T2D组相比,DI组海马中MDA含量显著降低(P<0.05),SOD和GSH-Px活性极显著升高(P<0.01)。
图5 小鼠海马中氧化应激指标

Fig.5 Indicators of oxidative stress in hippocampus of mice (n=10)

2.7 菊粉对T2D小鼠海马中Nrf2、HO-1与HMGB1表达的影响

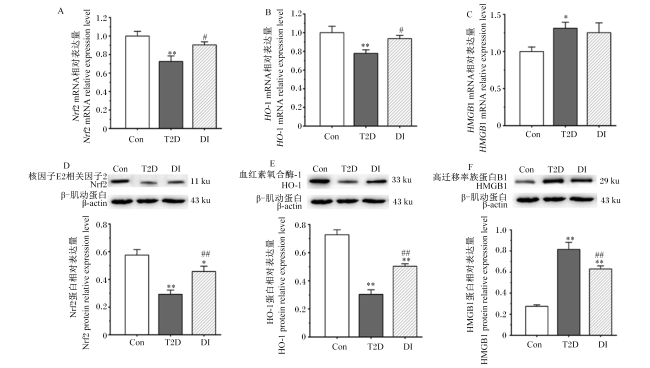
相较Con组,T2D组海马中Nrf2和HO-1 mRNA的相对表达量极显著降低(P<0.01),而HMGB1 mRNA的相对表达量显著升高(P<0.05);相较T2D组,DI组海马中Nrf2和HO-1 mRNA的相对表达量显著升高(P<0.05),HMGB1 mRNA的相对表达量有下降趋势但无显著差异(P>0.05)(图6-A图6-B图6-C)。相较Con组,T2D组海马中Nrf2和HO-1蛋白的相对表达量极显著降低(P<0.01),HMGB1蛋白的相对表达量极显著增加(P<0.01);相较T2D组,DI组海马中Nrf2和HO-1蛋白的相对表达量极显著增加(P<0.01),HMGB1蛋白的相对表达量极显著降低(P<0.01)(图6-D图6-E图6-F)。
图6 小鼠海马中Nrf2、HO-1与HMGB1的表达

Fig.6 Expression of Nrf2, HO-1 and HMGB1 in hippocampus of mice (n=5)

2.8 菊粉对T2D小鼠结肠菌群多样性的影响

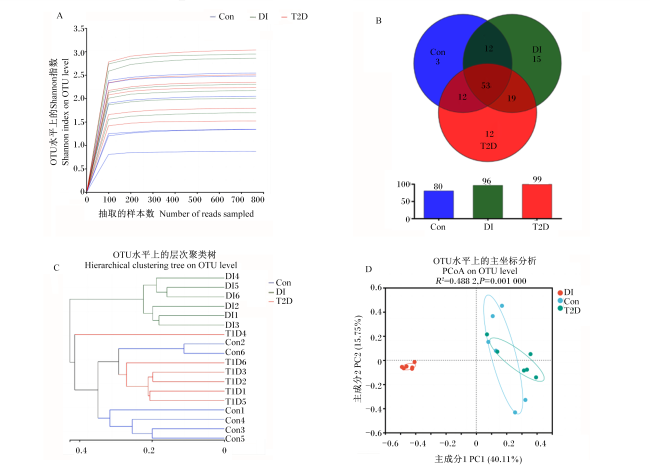
图7-A为Shannon指数在操作分类单元(OTU)水平上的稀释曲线,各组物种的曲线均趋于平缓,表明测序数据量合理,结果可靠性高。基于OTU水平的韦恩图(图7-B)显示,DI组包含99个OTU,T2D组包含96个OTU,Con组包含80个OTU,3组共享的OTU有53个。层次聚类分析显(图7-C)示,结肠中的细菌可分为3个不同的类群,虽然T2D组与Con组不能完全分离,但2组之间存在差异,而DI组与其他组完全分离。主坐标分析(PCoA,图7-D)显示,DI组样本与T2D组和Con组样本明显区分开,说明菊粉对T2D小鼠结肠菌群产生了影响。
图7 结肠菌群多样性

A:稀释曲线;B:韦恩图;C:层次聚类分析;D:主坐标分析。

Fig.7 Diversity of colonic flora

A: dilution curve; B: Venn diagram; C: hierarchical cluster analysis; D: PCoA.

2.9 菊粉对T2D小鼠结肠菌群组成的影响

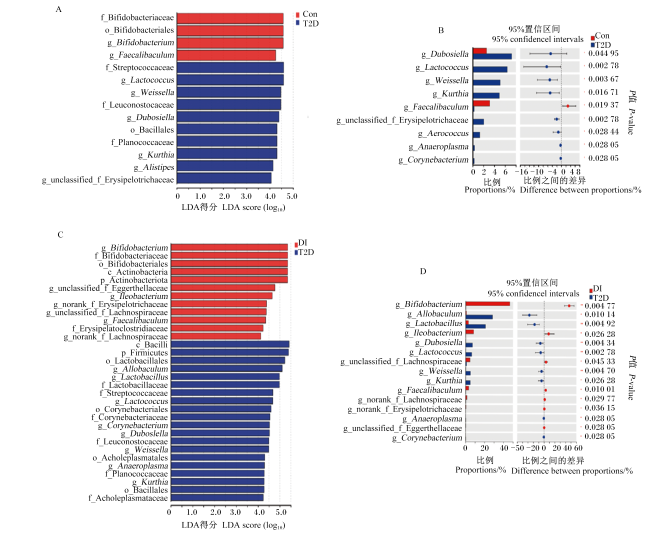
小鼠结肠菌群的线性判别分析(LDA)显示,与Con组相比,T2D组的乳球菌属(Lactococcus)、魏斯氏菌属(Weissella)、杜氏杆菌属(Dubosiella)和库特氏菌属(Kurthia)等显著富集(图8-A);与T2D组相比,DI组的双歧杆菌属(Bifidobacterium)和粪杆菌属(Faecalibaculum)等显著富集(图8-C)。Con组与T2D组结肠菌群属水平的物种差异分析(图8-B)显示,Con组中Faecalibaculum的占比显著增加(P=0.019 37);T2D组中Dubosiella(P=0.044 95)、Lactococcus(P=0.002 78)、Weissell(P=0.003 67)、Kurthia(P=0.016 71)、丹毒丝菌科未分类属(unclassified_f_Erysipelotrichaceae)(P=0.002 78)、气球菌属(Aerococcus)(P=0.028 44)、厌氧原体属(Anaeroplasma)(P=0.028 05)和棒状杆菌属(Corynebacterium)(P=0.028 05)的占比显著或极显著增加。DI组与T2D组结肠菌群属水平的物种差异分析(图8-D)显示,DI组中Bifidobacterium(P=0.004 77)、回肠杆菌属(Ileobacterium m)(P=0.026 28)、毛螺菌科未分类属(unclassified_f_Lachnospiraceae)(P=0.045 33)、Faecalibaculum(P=0.010 01)、毛螺菌科未命名属(norank_f_Lachnospiraceae)(P=0.029 77)、丹毒丝菌科未命名属(norank_f_Erysipelotrichaceae)(P=0.036 15)和埃格特菌科未分类属(unclassified_f_Eggerthellaceae)(P=0.028 05)的占比显著或极显著增加;T2D组中异杆菌属(Allobaculum)(P=0.010 14)、乳杆菌属(Lactobacillus)(P=0.004 92)、Dubosiella(P=0.004 34)、Lactococcus(P=0.002 78)、Weissella(P=0.004 70)、Kurthia(P=0.026 28)、Anaeroplasma(P=0.028 05)和Corynebacterium(P=0.028 05)的占比显著或极显著增加。
图8 属水平的物种差异

A:Con组与T2D组的线性判别分析 LDA of Con group vs. T2D group;B:Con组与T2D组在属水平上的物种差异 species differences at genus level between Con group vs. T2D group;C:DI组与T2D组的线性判别分析 LDA of DI group vs. T2D group;D:DI组与T2D组在属水平上的物种差异 species differences at genus level between DI group vs. T2D group。*:P<0.05;**:P<0.01。

f_Bifidobacteriaceae:双歧杆菌科;o_Bifidobacteriales:双歧杆菌目;g_Bifidobacterium:双歧杆菌属;g_Faecalibaculum:粪杆菌属;f_Streptococcaceae:链球菌科;g_Lactococcus:乳球菌属;g_Weissella:魏斯氏菌属;f_Leuconostocaceae:明串珠菌科;g_Dubosiella:杜氏杆菌属;o_Bacillales:芽孢杆菌目;f_Planococcaceae:动性球菌科;g_Kurthia:库特氏菌属;g_Alistipes:另枝菌属;g_unclassified_f_Erysipelotrichaceae:丹毒丝菌科未分类属;g_Aerococcus:气球菌属;g_Anaeroplasma:厌氧原体属;g_Corynebacterium:棒状杆菌属;c_Actinobacteria:放线菌纲;p_Actinobacteriota:放线菌门;g_unclassified_f_Eggerthellaceae:埃格特菌科未分类属;g_Lleibacterium:利艾杆菌属;g_norank_f_Erysipelotrichaceae:丹毒丝菌科未命名属;g_unclassified_f_Lachnospiraceae:毛螺菌科未分类属;f_Erysipelatoclostridiaceae:丹毒丝菌-梭菌科;g_norank_f_Lachnospiraceae:毛螺菌科未命名属;c_Bacilli:芽孢杆菌纲;p_Firmicutes:厚壁菌门;o_Lactobacillales:乳杆菌目;g_Allobaculum:异杆菌属;g_Lactobacillus:乳杆菌属;f_Lactobacillaceae:乳杆菌科;o_Corynebacteriales:棒杆菌目;f_Corynebacteriaceae:棒杆菌科;g_Corynebacterium:棒杆菌属;o_Acholeplasmatales:无胆甾原体目;f_Acholeplasmataceae:无胆甾原体科。

Fig.8 Species differences at genus level

2.10 菊粉对T2D小鼠结肠内容物中SCFAs含量的影响

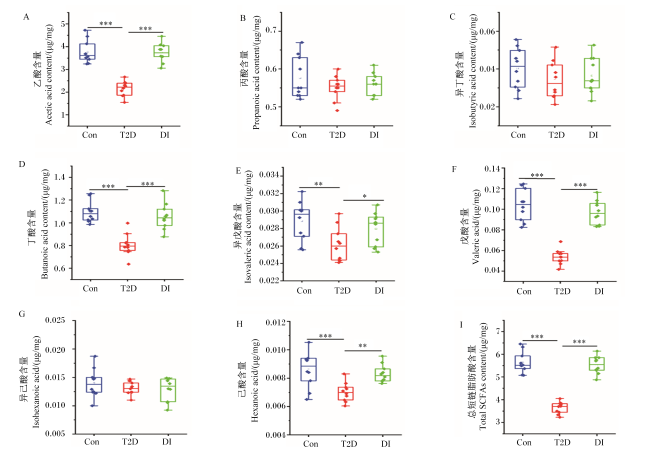
各组结肠中产生的主要SCFAs为乙酸、丁酸和丙酸。T2D组中乙酸、丁酸、异戊酸、戊酸和己酸含量均极显著低于Con组(P<0.01);与T2D组相比,DI组中乙酸、丁酸、异戊酸、戊酸和己酸含量显著或极显著升高(P<0.05或P<0.01);其他SCFAs(丙酸、异丁酸和异己酸)含量各组间均无显著差异(P>0.05)(图9A~H)。总SCFAs含量显示,T2D组极显著低于Con组(P<0.01),而DI组极显著高于T2D组(P<0.01)(图9-I)。
图9 小鼠结肠内容物中SCFAs含量

Fig.9 Contents of SCFAs in colon contents of mice (n=10)

*:P<0.05;**:P<0.01;***:P<0.001。

3 讨论

本试验中,T2D小鼠表现出明显的体重减轻、FBG升高以及多饮、多食和排泄增加的迹象,而饲喂添加菊粉饲粮的T2D小鼠上述症状得到缓解,有效降低了FBG,且血糖没有异常下降,葡萄糖耐受量显著改善,与之前的研究结果[15]一致。此外,脂质谱改变在T2D患者中相当典型。在本研究中发现,菊粉显著降低了T2D小鼠血清中LDL-C和TG水平,显著增加HDL-C水平,与之前结果[15-16]相符。糖和脂代谢紊乱是T2D患者神经病变的关键因素,血清葡萄糖浓度升高可能通过反馈调节促进胰岛素分泌,当胰岛素浓度升高时,胰岛素受体数量往往下降,这使得胰岛素信号通路受损,胰岛素信号在维持神经元功能起关键作用,血脂水平的升高可能增加脑部血管病变,揭示菊粉调节T2D小鼠血液中糖和脂水平可能是其改善T2D认知功能的重要原因之一。
以往研究表明,慢性炎症是T2D患者的典型特征[17],并已经确定炎症和认知功能障碍的病理过程之间的联系[18]。本研究表明,菊粉可以一定程度上降低T2D小鼠血清和海马中的炎症因子含量。T2D患者有可能产生过多的自由基,包括活性氧自由基(radical oxygen species,ROS)和活性氮自由基(reactive nitrogen species,RNS),自由基引起的氧化应激是导致大脑认知功能障碍的主要因素之一[19]。本研究发现,菊粉能够增加T2D小鼠海马中GSH含量、SOD和GSH-Px活性,同时降低MDA含量。HMGB1被证明与促进炎症有关[20-21]。研究表明,芍药内酯苷通过调节Nrf2/HO-1/HMGB1信号通路,减少氧化应激和炎症反应,改善小鼠的认知能力[22]。本研究同样也发现,菊粉可以使T2D小鼠海马中Nrf2和HO-1 mRNA和蛋白的相对表达量增加,同时使HMGB1 mRNA和蛋白的相对表达量降低,意味着菊粉可能调节海马中抗氧化相关的Nrf2和HO-1以及与炎症相关的HMGB1的表达,提升T2D小鼠的认知功能。从认知行为学和海马病理程度上也得到验证。然而,直接分子机制仍不清楚菊粉干预如何影响海马认知功能,有待进一步深入探究。
肠道菌群失衡在T2D认知功能损伤发展中起到重要作用,调节肠道菌群结构可能是T2D认知功能改善的关键。研究表明,T2D患者肠道菌群多样性降低[23],在门水平上拟杆菌门(Bacteroidetes)丰度降低[24],而变形菌门(Proteobacteria)和放线菌门(Actinobacteria)丰度增加[25],同时也有报道厚壁菌门(Firmicutes)与Bacteroidetes的比值(F/B比值)与葡萄糖浓度和葡萄糖耐受量呈负相关[26]。然而,本研究的发现与早期的研究结果有所不同。这些不同的结果可能是由于人体和啮齿类动物的微生物组存在差异,同时也可能存在饮食和活动等多种因素的影响。属水平物种差异显示,T2D小鼠的肠道菌群结构遭到破坏,AllobaculumLactobacillusLactococcusDubosiellaWeissellaKurthia等菌群的占比显著增加。据报道,Allobaculum是一种潜在的致结肠炎菌[27-28],对肠道T细胞反应和自身免疫的诱导有影响[29],其也会增加血清淀粉样蛋白A的产生,从而引发肠上皮细胞的炎症[29-30]。有关Lactobacillus的信息还存在许多不确定性,人们普遍认为该菌为有益菌[31-32],也有一些研究发现这种菌在糖尿病患者中存在大量增生[33-34]。因此,相较于检测总的Lactobacillus丰度,深入研究单一的Lactobacillus物种可能更为合适。据报道,Dubosiella在高脂饮食导致的肥胖小鼠的肠道中数量明显增加,可能加剧微生物失衡,并抑制产生SCFAs的菌群生长,从而破坏肠道微生物的能量供应[35]。最近的研究也指出,从糖尿病前期发展到糖尿病期间,小鼠肠道中Dubosiella的数量显著增加[36]Weissella包含19个物种[37],其中融合魏斯氏菌(Weissella confusa)和食窦魏斯氏菌(Weissella cibaria)被证实为潜在的机会性病原体[38]。另外,吉氏库特菌(Kurthia gibsonii)已被证实为家禽的机会性病原体[39],并且可能对人类构成威胁[40-41],它可能具有低毒力,损害黏膜表面。这表明,这些菌群的富集可能在TDACD的发展过程中起关键作用。菊粉的添加可以使BifidobacteriumFaecalibaculum的丰度显著增大,同时也增加了Ileobacterium的丰度。Bifidobacterium作为一种生理性有益菌,具有生物屏障、免疫增强和抗衰老等多种生理功能。最近的研究表明,该菌属下的长双歧杆菌BB68S(Bifidobacterium longum BB68S)能改善健康老年人的认知功能,对其肠道微生物区系具有有益的调节作用[42]Faecalibaculum是SCFAs的产生者,其减少可能与中枢神经系统的损害有关[43]。上述结果说明,菊粉有利于益生菌的定植,改善肠道菌群生态失调。
肠道菌群的变化会调节SCFAs的产生,而SCFAs可以调节肠道和其他外周组织的氧化应激和炎症[44]。此外,SCFAs通过抑制炎症反应、维持血脑屏障的完整性和增加神经元细胞的存活率,在大脑和认知健康中发挥着重要作用[45]。以往的研究表明,菊粉完全恢复高脂饮食小鼠粪便中乙酸、丙酸和丁酸含量,抑制支链脂肪酸(如异丁酸和异戊酸)的产生[46]。本研究结果显示,菊粉恢复了T2D小鼠结肠内容物中乙酸、丁酸、异戊酸、戊酸、己酸和总SCFAs的含量。与已有的研究结果不完全一致,结果的差异应综合考虑,即肠道代谢物谱由饮食、肠道微生物群和宿主共同控制。未来的研究应关注菊粉对疾病模型小鼠肠道微生物代谢组学的影响,以更好地了解菊粉对细菌功能的调节作用及其对TDACD的潜在益处。

4 结论

菊粉可调节结肠菌群结构及其代谢产物SCFAs的产生,改善T2D小鼠的体重和FBG,调节血脂水平、血清与海马中炎症因子含量,调控海马中Nrf2、HO-1和HMGB1表达,同时改善海马氧化应激指标,对T2D小鼠海马神经元损伤和认知行为起到改善作用。
[1]
SAEEDI P, PETERSOHN I, SALPEA P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045:results from the International Diabetes Federation Diabetes Atlas,9th edition[J]. Diabetes Research and Clinical Practice,2019,157:107843.

[2]
KANDIMALLA R, THIRUMALA V, REDDY P H. Is Alzheimer’s disease a type 3 diabetes?A critical appraisal[J]. Biochimica et Biophysica Acta:Molecular Basis of Disease, 2017, 1863(5):1078-1089.

[3]
DAMANIK J, YUNIR E. Type 2 diabetes mellitus and cognitive impairment[J]. Acta Medica Indonesiana, 2021, 53(2):213-220.

PMID

[4]
UMEGAKI H. Type 2 diabetes as a risk factor for cognitive impairment:current insights[J]. Clinical Interventions in Aging, 2014,9:1011-1019.

[5]
BRANISTE V, AL-ASMAKH M, KOWAL C, et al. The gut microbiota influences blood-brain barrier permeability in mice[J]. Science Translational Medicine, 2014, 6(263):263ra158.

[6]
DIAZ HEIJTZ R, WANG S G, ANUAR F, et al. Normal gut microbiota modulates brain development and behavior[J]. Proceedings of the National Academy of Sciences of the United States of America, 2011, 108(7):3047-3052.

DOI PMID

[7]
LIU Z G, DAI X S, ZHANG H B, et al. Gut microbiota mediates intermittent-fasting alleviation of diabetes-induced cognitive impairment[J]. Nature Communications, 2020, 11(1):855.

DOI PMID

[8]
ZHANG Y Y, LU S R, YANG Y, et al. The diversity of gut microbiota in type 2 diabetes with or without cognitive impairment[J]. Aging Clinical and Experimental Research, 2021, 33(3):589-601.

[9]
REYNOLDS A N, AKERMAN A P, MANN J. Dietary fibre and whole grains in diabetes management:systematic review and Meta-analyses[J]. PLoS Medicine, 2020, 17(3):e1003053.

[10]
SLAVIN J. Fiber and prebiotics:mechanisms and health benefits[J]. Nutrients, 2013, 5(4):1417-1435.

[11]
HO J, NICOLUCCI A C, VIRTANEN H, et al. Effect of prebiotic on microbiota,intestinal permeability,and glycemic control in children with type 1 diabetes[J]. The Journal of Clinical Endocrinology and Metabolism, 2019, 104(10):4427-4440.

[12]
DRABIŃSKA N, JAROCKA-CYRTA E, MARKIEWICZ L H, et al. The effect of oligofructose-enriched inulin on faecal bacterial counts and microbiota-associated characteristics in celiac disease children following a gluten-free diet:results of a randomized,placebo-controlled trial[J]. Nutrients, 2018, 10(2):201.

[13]
DEWULF E M, CANI P D, CLAUS S P, et al. Insight into the prebiotic concept:lessons from an exploratory,double blind intervention study with inulin-type fructans in obese women[J]. Gut, 2013, 62(8):1112-1121.

[14]
NICOLUCCI A C, HUME M P, MARTÍNEZ I, et al. Prebiotics reduce body fat and alter intestinal microbiota in children who are overweight or with obesity[J]. Gastroenterology, 2017, 153(3):711-722.

DOI PMID

[15]
ZHANG Q, YU H Y, XIAO X H, et al. Inulin-type fructan improves diabetic phenotype and gut microbiota profiles in rats[J]. PeerJ, 2018,6:e4446.

[16]
HUANG W C, LIN C L, HSU Y J, et al. Inulin and fibersol-2 combined have hypolipidemic effects on high cholesterol diet-induced hyperlipidemia in hamsters[J]. Molecules, 2016, 21(3):313.

[17]
CALLE M C, FERNANDEZ M L. Inflammation and type 2 diabetes[J]. Diabetes & Metabolism, 2012, 38(3):183-191.

[18]
CHEN T, MA Z Q, ZHU L P, et al. Suppressing receptor-interacting protein 140:a new sight for salidroside to treat cerebral ischemia[J]. Molecular Neurobiology, 2016, 53(9):6240-6250.

[19]
HUA K, SHENG X, LI T T, et al. The edaravone and 3-N-butylphthalide ring-opening derivative 10b effectively attenuates cerebral ischemia injury in rats[J]. Acta Pharmacologica Sinica, 2015, 36(8):917-927.

DOI PMID

[20]
JIANG Q, YI M, GUO Q Q, et al. Protective effects of polydatin on lipopolysaccharide-induced acute lung injury through TLR4-MyD88-NF-κB pathway[J]. International Immunopharmacology, 2015, 29(2):370-376.

DOI PMID

[21]
SAHIN K, TUZCU M, ORHAN C, et al. The effects of chromium picolinate and chromium histidinate administration on NF-κB and Nrf2/HO-1 pathway in the brain of diabetic rats[J]. Biological Trace Element Research, 2012, 150(1/2/3):291-296.

[22]
MA X J, SONG M, YAN Y S, et al. Albiflorin alleviates cognitive dysfunction in STZ-induced rats[J]. Aging, 2021, 13(14):18287-18297.

[23]
LARSEN N, VOGENSEN F K, VAN DEN BERG F W J, et al. Gut microbiota in human adults with type 2 diabetes differs from non-diabetic adults[J]. PLoS One, 2010, 5(2):e9085.

[24]
WANG J J, LI W J, WANG C, et al. Enterotype Bacteroides is associated with a high risk in patients with diabetes:a pilot study[J]. Journal of Diabetes Research, 2020,2020:6047145.

[25]
ZHAO X, ZHANG Y D, GUO R X, et al. The alteration in composition and function of gut microbiome in patients with type 2 diabetes[J]. Journal of Diabetes Research, 2020,2020:8842651.

[26]
ZHU J X, WU M R, ZHOU H, et al. Liubao brick tea activates the PI3K-Akt signaling pathway to lower blood glucose,metabolic disorders and insulin resistance via altering the intestinal flora[J]. Food Research International, 2021,148:110594.

[27]
PALM N W, DE ZOETE M R, CULLEN T W, et al. Immunoglobulin a coating identifies colitogenic bacteria in inflammatory bowel disease[J]. Cell, 2014, 158(5):1000-1010.

DOI PMID

[28]
RICE T A, BIELECKA A A, NGUYEN M T, et al. Interspecies commensal interactions have nonlinear impacts on host immunity[J]. Cell Host & Microbe, 2022, 30(7):988-1002.e6.

[29]
MIYAUCHI E, KIM S W, SUDA W, et al. Gut microorganisms act together to exacerbate inflammation in spinal cords[J]. Nature, 2020, 585(7823):102-106.

[30]
LEE J Y, HALL J A, KROEHLING L, et al. Serum amyloid a proteins induce pathogenic Th17 cells and promote inflammatory disease[J]. Cell, 2020, 180(1):79-91.e16.

[31]
DEMPSEY E, CORR S C. Lactobacillus spp. for gastrointestinal health:current and future perspectives[J]. Frontiers in Immunology, 2022,13:840245.

[32]
UN-NISA A, KHAN A, ZAKRIA M, et al. Updates on the role of probiotics against different health issues:focus on Lactobacillus[J]. International Journal of Molecular Sciences, 2022, 24(1):142.

[33]
EJTAHED H S, HOSEINI-TAVASSOL Z, KHATAMI S, et al. Main gut bacterial composition differs between patients with type 1 and type 2 diabetes and non-diabetic adults[J]. Journal of Diabetes and Metabolic Disorders, 2020, 19(1):265-271.

[34]
WANG X K, XU X Q, XIA Y. Further analysis reveals new gut microbiome markers of type 2 diabetes mellitus[J]. Antonie van Leeuwenhoek, 2017, 110(3):445-453.

[35]
CHEN L, WANG X J, CHEN J X, et al. Caffeine ameliorates the metabolic syndrome in diet-induced obese mice through regulating the gut microbiota and serum metabolism[J]. Diabetology & Metabolic Syndrome, 2023, 15(1):37.

[36]
WANG H, SHEN Q, ZHANG F, et al. Heat-treated foxtail millet protein delayed the development of pre-diabetes to diabetes in mice by altering gut microbiota and metabolomic profiles[J]. Food & Function, 2023, 14(10):4866-4880.

[37]
KAMBOJ K, VASQUEZ A, BALADA-LLASAT J M. Identification and significance of Weissella species infections[J]. Frontiers in Microbiology, 2015,6:1204.

[38]
FUSCO V, QUERO G M, CHO G S, et al. The genus Weissella:taxonomy,ecology and biotechnological potential[J]. Frontiers in Microbiology, 2015,6:155.

[39]
LOZICA L, MALJKOVIĆ M M, MAZIĆ M, et al. Kurthia gibsonii,a novel opportunistic pathogen in poultry[J]. Avian Pathology, 2022, 51(1):26-33.

[40]
KÖVESDI V, STERCZ B, ONGRÁDI J. Kurthia gibsonii as a sexually transmitted zoonosis:from a neglected condition during World War Ⅱ to a recent warning for sexually transmitted disease units[J]. Indian Journal of Sexually Transmitted Diseases and AIDS, 2016, 37(1):68-71.

[41]
WUNDER J A, BRINER W W, CALKINS G P. Identification of the cultivable bacteria in dental plaque from the beagle dog[J]. Journal of Dental Research, 1976, 55(6):1097-1102.

PMID

[42]
SHI S Q, ZHANG Q, SANG Y, et al. Probiotic Bifidobacterium longum BB68S improves cognitive functions in healthy older adults:a randomized,double-blind,placebo-controlled trial[J]. Nutrients, 2022, 15(1):51.

[43]
D’AMATO A, DI CESARE MANNELLI L, LUCARINI E, et al. Faecal microbiota transplant from aged donor mice affects spatial learning and memory via modulating hippocampal synaptic plasticity- and neurotransmission-related proteins in young recipients[J]. Microbiome, 2020, 8(1):140.

DOI PMID

[44]
BACH KNUDSEN K E, LÆRKE H N, HEDEMANN M S, et al. Impact of diet-modulated butyrate production on intestinal barrier function and inflammation[J]. Nutrients, 2018, 10(10):1499.

[45]
QIAN X H, XIE R Y, LIU X L, et al. Mechanisms of short-chain fatty acids derived from gut microbiota in Alzheimer’s disease[J]. Aging and Disease, 2022, 13(4):1252-1266.

[46]
LI L K, ZHANG L, ZHOU L K, et al. Chain length-dependent inulin alleviates diet-induced obesity and metabolic disorders in mice[J]. Food Science & Nutrition, 2021, 9(7):3470-3482.

文章导航

/