研究论文

响应面法优化仔猪玉米-豆粕型饲粮发酵工艺及其蛋白质二级结构分析

  • 耿彦超 , 1, 2 ,
  • 原雪峰 2 ,
  • 王馨 1 ,
  • 包鑫禹 1 ,
  • 李梦婷 1 ,
  • 高宇萌 1 ,
  • 杨华 1 ,
  • 洪亮 1 ,
  • 蒲蕾 1 ,
  • 张建斌 , 1, *
展开
  • 1 天津农学院动物科学与动物医学学院,天津市农业动物繁育与健康养殖重点实验室,天津 300380
  • 2 天津现代天骄农业科技股份有限公司,天津市绿色生态饲料重点实验室,天津 301800
* 张建斌,副教授,硕士生导师,E-mail:

耿彦超(2001—),男,河北石家庄人,硕士研究生,动物营养与饲料科学专业。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-05-18

  网络出版日期: 2024-11-09

基金资助

天津市科技计划项目(22ZYCGSN00620)

天津市生猪产业技术体系创新团队(ITTPRS2022006)

青海省重点研发与转化计划-科技援青合作专项(2021-QY-204)

天津市自然科学基金(20JCQNJC00650)

天津市自然科学基金重点项目(20JCZDJC00170)

Optimization of Fermentation Process of Corn-Soybean Meal Diet for Piglets Using Response Surface Method and Its Protein Secondary Structure Analysis

  • GENG Yanchao , 1, 2 ,
  • YUAN Xuefeng 2 ,
  • WANG Xin 1 ,
  • BAO Xinyu 1 ,
  • LI Mengting 1 ,
  • GAO Yumeng 1 ,
  • YANG Hua 1 ,
  • HONG Liang 1 ,
  • PU Lei 1 ,
  • ZHANG Jianbin , 1, *
Expand
  • 1 Tianjin Key Laboratory of Agricultural Animal Breeding and Healthy Husbandry, College of Animal Science and Veterinary Medicine, Tianjin Agricultural University, Tianjin 300380, China
  • 2 Tianjin Green Ecological Feed Key Laboratory, Tianjin Modern Tianjiao Agricultural Technology Co., Ltd., Tianjin 301800, China
* associate professor, E-mail:

Received date: 2024-05-18

  Online published: 2024-11-09

摘要

本试验利用响应面法优化仔猪玉米-豆粕型饲粮的菌酶协同发酵工艺,同时对其蛋白质二级结构特性进行研究,为发酵技术在畜禽饲粮生产中的应用提供参考和借鉴。首先采用单因素试验筛选影响因素,而后利用响应面法优化发酵工艺,确定最佳发酵条件,最后将玉米-豆粕型饲粮按照不同处理方法分为4组,即基础饲粮组(CK组)、乳酸菌组(B组)、酶组(E组)、菌酶协同组(BE组),并使用傅里叶变换红外光谱技术对发酵前后玉米-豆粕型饲粮的蛋白质二级结构进行分析。结果表明: 1)玉米-豆粕型饲粮的最佳发酵工艺为菌液接种量6.0%,酶添加量0.036%,发酵温度33.0 ℃,发酵时间45.0 h,料水比1∶1,蔗糖添加量2.0%。2)在此条件下进行发酵,B组、E组和BE组的粗蛋白质含量相较于发酵前分别提高了12.91%、13.42%和17.28%,酸溶蛋白含量从发酵前的1.97%分别提升到3.28%、3.39%和3.83%。3)玉米-豆粕型饲粮经过菌酶协同发酵后分子结构与发酵前存在明显差异,其中,BE组酰胺Ⅰ区峰面积显著高于其余3组(P<0.05);BE组酰胺Ⅰ区峰面积/酰胺Ⅱ区峰面积以及酰胺Ⅰ区峰高/酰胺Ⅱ区峰高显著高于其余3组(P<0.05);BE组α-螺旋峰面积显著高于其余3组(P<0.05),且β-折叠峰面积/α-螺旋峰面积显著低于其余3组(P<0.05)。综上所述,菌酶协同发酵提高了玉米-豆粕型饲粮的营养价值,且使其蛋白质更容易被畜禽消化利用;菌酶协同发酵的效果优于单独菌株发酵或单独酶制剂酶解。本试验为从分子结构评价菌酶协同发酵饲料营养价值丰富了理论依据。

本文引用格式

耿彦超 , 原雪峰 , 王馨 , 包鑫禹 , 李梦婷 , 高宇萌 , 杨华 , 洪亮 , 蒲蕾 , 张建斌 . 响应面法优化仔猪玉米-豆粕型饲粮发酵工艺及其蛋白质二级结构分析[J]. 动物营养学报, 2024 , 36(11) : 7320 -7334 . DOI: 10.12418/CJAN2024.623

Abstract

This experiment aimed to optimize the synergistic fermentation process of piglets’ corn-soybean meal diet using bacteria and enzymes with response surface method (RSM), and to study its protein secondary structure characteristics. The objective was to provide reference and guidance for the application of fermentation technology in livestock and poultry diet production. Firstly, single-factor experiment was conducted to screen influencing factors, followed by the optimization of the fermentation process using RSM to determine the optimal fermentation conditions. Finally, the corn-soybean meal diet was divided into 4 groups according to different treatments: basal diet group (CK group), lactic acid bacteria group (B group), enzyme group (E group) and bacteria-enzyme synergistic group (BE group). Fourier transform infrared spectroscopy (FTIR) technology was used to analyze the protein secondary structure of the corn-soybean meal diet before and after fermentation. The results showed as follows: 1) the optimal fermentation process for the corn-soybean meal diet was bacterial inoculation amount of 6.0%, enzyme addition of 0.036%, fermentation temperature of 33.0 ℃, fermentation time of 45.0 hours, feed-to-water ratio of 1∶1, and sucrose addition of 2.0%. 2) Under these conditions, the crude protein content of the B, E and BE groups increased by 12.91%, 13.42% and 17.28%, and the acid-soluble protein content increased from 1.97% to 3.28%, 3.39% and 3.83%, respectively, compared with before fermentation. 3) Obvious differences in molecular structure of the corn-soybean meal diet were observed before and after fermentation. The amide Ⅰ peak area of the BE group was significantly higher than that of the other three groups (P<0.05). The ratio of the amide Ⅰ peak area to the amide Ⅱ peak area and the ratio of the amide Ⅰ peak height to the amide Ⅱ peak height of the BE group were significantly higher than those of the other three groups (P<0.05). The α-helix peak area of the BE group was significantly higher than that of the other three groups (P<0.05), and the ratio of β-sheet peak area to α-helix peak area was significantly lower than that of the other three groups (P<0.05). In conclusion, the bacteria-enzyme synergistic fermentation improves the nutritional value of the corn-soybean meal diet, making the protein more digestible and utilizable by livestock and poultry, and superior to feed fermented solely by bacteria or enzymatically hydrolyzed by enzyme preparations.

在养殖业中,饲料的营养成分和品质直接影响着畜禽的生长发育和健康状况,而发酵饲料作为一种新型、绿色、安全、高效的饲料,在养殖业中得到了广泛应用[1-2]。有研究发现,菌酶协同发酵饲料在发酵酶解过程中,酶能够加速底物的分解,酶解底物中的大分子物质,降低抗营养因子的抗原性,微生物能够通过调节乳酸的生成和pH的变化影响微生物的发酵效率,并且通过产生有机酸和抑菌物质发挥其抑菌活性,可改善畜禽肠道环境;此外,部分微生物还能够生成相应功能的酶,与体系内的酶发挥协同作用,共同促进底物酵解,从而达到改善饲料的适口性、提高饲料利用率的效果[3-5]。饲料经发酵酶解处理后,其品质得到提高与其分子结构变化有很大的联系。傅里叶变换红外光谱(FTIR)技术是基于物质化学组成与化学键结构的光谱分析技术,具有高分辨率、灵敏度和准确性,以及快速简单的操作,是研究饲料分子结构的有力工具[6-7]。近年来,国内外已有大量关于FTIR技术在饲料分子结构研究中的应用报道[8-10]。Li等[11]研究发现,饲料在发酵过程中蛋白质分子结构发生了变化。此外,也有研究表明全株玉米青贮饲料的酰胺Ⅰ和酰胺Ⅱ条带的高度和面积以及α-螺旋峰可用于预测蛋白质的营养价值[12]。但目前对菌酶协同发酵饲料的营养价值进行分子结构特性研究的报道较少。本试验旨在利用响应面法优化仔猪玉米-豆粕型饲粮的菌酶协同发酵工艺,并对发酵后的饲料使用FTIR仪进行分子结构特性的研究,这不仅可以优化仔猪玉米-豆粕型饲粮的发酵工艺,提高饲料的营养价值和利用率,还可以为发酵技术在畜禽饲粮生产中的应用提供参考和借鉴,促进养殖业的可持续发展,同时还有助于深入了解发酵饲料分子结构的变化规律,为未来的饲料研究提供理论基础和试验依据。

1 材料与方法

1.1 试验材料

试验菌株为罗伊氏乳杆菌,来自天津农学院动物科学与动物医学学院动物营养与饲料科学实验室。用于细菌培养和菌落计数的培养基购自北京奥博兴生物科技有限公司。复合酶制剂购自白银赛诺生物科技有限公司,复合酶制剂主要成分和活性如下:木聚糖酶≥4 000 U/g、β-葡聚糖酶≥6 000 U/g、蛋白酶≥10 000 U/g、淀粉酶≥6 000 U/g、纤维素酶≥1 500 U/g、阿拉伯木聚糖酶=1 000 U/g。

1.2 试验设计

试验共分为4组:基础饲粮组(CK组)、乳酸菌组(B组)、酶组(E组)、菌酶协同组(BE组)。CK组作为对照,为不进行发酵的基础饲粮;B组为在底物中加入水并接种罗伊氏乳杆菌种子液于无菌密封袋中,充分搅拌混匀后静置厌氧发酵;E组在底物中加入水、复合酶制剂,充分搅拌混匀后静置厌氧发酵;BE组为在底物中加入水、复合酶制剂并接种罗伊氏乳杆菌种子液于无菌密封袋中,充分搅拌混匀后静置厌氧发酵。
本研究中使用的基础饲粮为玉米-豆粕型饲粮,是基于NRC(2012)断奶仔猪营养需求配制,其组成及营养水平见表1。3个发酵饲料组的底物组成与基础饲粮一致。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Cron 64.69
豆粕Soybean meal 22.23
麦麸Wheat bran 3.00
鱼粉Fish meal 2.00
乳清粉Whey powder 4.00
磷酸氢钙CaHPO4 1.10
石粉Limestone 0.70
食盐NaCl 0.50
赖氨酸Lysine 0.65
蛋氨酸Methionine 0.13
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
消化能Digestive energy/(MJ/kg) 14.34
粗蛋白质Crude protein 18.12
钙Calcium 0.77
总磷Total phosphorus 0.61

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 8 000 IU,VD3 2 400 IU,VE 30 IU,VK3 4 mg,VB12 0.011 mg,生物素 biotin 0.10 mg,吡哆醇 pyridoxine 2.00 mg,叶酸 folic acid 0.5 mg,泛酸 pantothenic acid 13 mg,烟酸 niacin 20 mg,硫胺素 thiamine 1.8 mg,氯化胆碱 choline chloride 550 mg,Cu (as copper sulfate) 15 mg,Fe (as ferrous sulfate) 100 mg,Mn (as manganese sulfate) 40 mg,Zn (as zinc sulfate) 100 mg,Se (as sodium selenite)0.25 mg,I (as potassium iodide) 0.15 mg。

2)消化能参照GB/T 39235—2020计算得出,其余均为实测值。DE was calculated according to GB/T 39235—2020, while the others were measured values.

1.3 单因素试验

发酵饲料初始条件为菌液(活菌数>2.11×10⁸ CFU/mL)接种量6%、酶添加量0.036%、料水比1∶0.5、发酵温度37 ℃、发酵时间为48 h。选取菌液接种量、酶添加量、发酵温度、发酵时间、料水比和蔗糖添加量6个主要考察因素。以50 g玉米-豆粕型饲粮为发酵底物,考察菌液接种量(2%、4%、6%、8%、10%)、酶添加量(0.010%、0.018%、0.036%、0.054%、0.072%)、发酵温度(28、30、35、37、40 ℃)、发酵时间(12、24、36、48、60 h)、料水比(1∶0.5、1∶0.75、1∶1、1∶1.25、1∶1.5)、蔗糖添加量(1.0%、1.5%、2.0%、2.5%、3.0%)对总酸、酸溶蛋白含量与乳酸菌活菌数的影响。经分步的单因素试验选出影响较大的4个因素,确定水平,再用Design-Expert 13.0.1软件设计响应面优化发酵条件。

1.4 响应面试验

基于单因素试验结果,选取菌液接种量、发酵温度、发酵时间和料水比4个主要考察因素进行响应面试验。应用Design-Expert 13.0.1软件的Box-Behnken设计4因素3水平试验。试验结束后,对所得结果进行方差分析及二次回归拟合,建立平方项和任意2个因素之间的数学模型,研究各因素与响应值(总酸、酸溶蛋白含量与乳酸菌活菌数)之间的关系,从而确定最佳发酵工艺。响应面试验的因素与水平设计见表2
表2 响应面试验的因素与水平

Table 2 Factors and levels of response surface test

水平
Levels
因素Factors
菌液接种量
Bacterial solution
inoculation (A)/%
发酵温度
Fermentation
temperature (B)/℃
发酵时间
Fermentation
time (C)/h
料水比
Feed-to-water
ratio (D)
-1 4 28 24 1∶0.5
0 6 34 36 1∶1
1 8 40 48 1∶1.5

1.5 指标测定

1.5.1 酸溶蛋白含量测定

酸溶蛋白含量参照《大豆肽粉》(GB/T 22492—2008)进行测定。

1.5.2 总酸含量测定

参照邓奕妮等[13]的方法进行总酸的测定。准确称取发酵饲料样品约0.5 g,置于250 mL三角瓶中,加入100 mL蒸馏水,60 ℃水浴30 min,过滤取40 mL上清液,加入2~3滴酚酞指示剂,用0.01 mol/L的标准氢氧化钠溶液滴定至终点。根据以下公式计算总酸含量:
总酸含量(%)=[(V2-V1c×0.090 08/(M×0.4)]×100。
式中:V1V2分别为空白和试样滴定时氢氧化钠标准溶液体积(mL);M为样品质量(g);c为氢氧化钠标准溶液浓度(0.01 mol/L)。

1.5.3 乳酸菌计数

无菌操作称取5 g发酵饲料样品,加到45 mL无菌生理盐水中,振荡混匀,然后使用生理盐水进行10倍系列浓度稀释,取10-5、10-6、10-7梯度的稀释液,利用MRS琼脂平板,37 ℃恒温培养48 h,计算乳酸菌活菌数。

1.5.4 常规营养成分测定

基础饲粮和发酵饲料的水分含量参照GB/T 6435—2014进行测定,粗灰分含量参照GB/T 6438—2007进行测定,粗蛋白质含量参照GB/T 6432—2018进行测定,非蛋白氮含量参照Licitra等[14]的方法进行测定,可溶性蛋白含量使用考马斯亮蓝法进行测定,粗脂肪含量参照GB/T 6433—2006进行测定,中性洗涤纤维、酸性洗涤纤维含量使用全自动纤维分析仪(ANKOM,美国)进行测定,钙含量参照GB/T 6436—2018进行测定,总磷含量参照GB/T 6437—2018进行测定。

1.6 蛋白质二级结构测定

取样品置于65 ℃干燥、粉碎过60目筛制成干粉,使用FTIR仪(Lambda FTIR-7600,澳大利亚)对样品进行光谱扫描,扫描分辨率设为4 cm-1,波段设为800~4 000 cm-1,样品均平行扫描8次,收集图谱为CSV格式并保存。数据通过OMNIC 9.1软件进行处理分析,分析后的数据用Peak Fit 4.1.2进行校正和分析每个光谱以解析蛋白质二级结构,并利用Origin 2022进行图形制作。

1.7 统计与分析

采用SPSS 21.0软件进行单因素方差分析,采用Duncan氏法进行组间多重比较,结果以平均值和均值标准误(SEM)表示,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 单因素试验结果

表3可知,在其他条件不变的情况下,随着菌液接种量的增加,总酸、酸溶蛋白含量和乳酸菌活菌数先升高后降低。当菌液接种量为6%时,总酸、酸溶蛋白含量和乳酸菌活菌数达到最佳。当菌液接种量较小时,发酵饲料中罗伊氏乳杆菌的数量较低,无法完全降解底物中的大分子物质,而接种量较大时,罗伊氏乳杆菌间相互竞争底物中的营养物质,生长处于动态平衡状态。因此,后续试验选取菌液接种量为6%。
表3 菌液接种量对发酵饲料中总酸、酸溶蛋白含量和乳酸菌活菌数的影响

Table 3 Effects of bacterial solution inoculation on total acid, acid-soluble protein contents and lactic acid bacteria count in fermented feed

项目
Items
菌液接种量Bacterial solution inoculation/% SEM P
P-value
2 4 6 8 10
总酸Total acid/% 2.36d 2.70c 3.42a 2.98b 2.76c 0.09 <0.001
酸溶蛋白Acid-soluble protein/% 2.48d 2.91c 3.65a 3.13bc 3.35b 0.11 <0.001
乳酸菌活菌数Lactic acid bacteria count/(×108 CFU/g) 1.32d 1.89c 2.49a 2.23b 2.28ab 0.11 <0.001

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

表4可知,酶添加量在0.036%时,发酵饲料中总酸含量达到最高,酶添加量超过0.036%时,酸溶蛋白含量无显著变化(P>0.05)。考虑到饲料生产成本,后续试验选取酶添加量为0.036%。
表4 酶添加量对发酵饲料中总酸、酸溶蛋白含量和乳酸菌活菌数的影响

Table 4 Effects of enzyme addition on total acid, acid-soluble protein contents and lactic acid bacteria count in fermented feed

项目
Items
酶添加量Enzyme addition/% SEM P
P-value
0.010 0.018 0.036 0.054 0.072
总酸Total acid/% 2.36d 2.7c 3.42a 2.98b 2.76c 0.09 <0.001
酸溶蛋白Acid-soluble protein/% 2.52c 2.99b 3.87a 3.83a 3.81a 0.15 <0.001
乳酸菌活菌数Lactic acid bacteria count/(×108 CFU/g) 2.29 2.48 2.49 2.42 2.37 0.03 0.062
表5可知,发酵温度超过35 ℃时,发酵饲料中总酸含量显著降低(P<0.05),酸溶蛋白含量和乳酸菌活菌数在发酵温度为35 ℃时达到最高。当发酵温度偏低时,罗伊氏乳杆菌生长缓慢;而发酵温度偏高时,罗伊氏乳杆菌生长受到抑制,使得乳酸菌活菌数偏低。因此,后续试验选取发酵温度为35 ℃。
表5 发酵温度对发酵饲料总酸、酸溶蛋白和乳酸菌活菌数的影响

Table 5 Effects of fermentation temperature on total acid, acid-soluble protein contents and lactic acid bacteria count in fermented feed

项目
Items
发酵温度Fermentation temperature/℃ SEM P
P-value
28 30 35 38 40
总酸Total acid/% 2.74d 3.68a 3.52b 3.42c 3.35c 0.09 <0.001
酸溶蛋白Acid-soluble protein/% 2.02c 2.54b 2.75a 2.62b 2.61b 0.07 <0.001
乳酸菌活菌数Lactic acid bacteria count/(×108 CFU/g) 1.22d 1.89b 2.54a 2.49a 1.42c 0.15 <0.001
表6可知,随着发酵时间的延长,发酵饲料中总酸、酸溶蛋白含量和乳酸菌活菌数逐渐增加,且在48 h后无显著变化(P>0.05)。因此,后续试验选取发酵时间为48 h。
表6 发酵时间对发酵饲料中总酸、酸溶蛋白含量和乳酸菌活菌数的影响

Table 6 Effects of fermentation time on total acid, acid-soluble protein contents and lactic acid bacteria count in fermented feed

项目
Items
发酵时间Fermentation time/h SEM P
P-value
12 24 36 48 60
总酸Total acid/% 1.69d 2.61c 3.59b 3.97a 3.88a 0.23 <0.001
酸溶蛋白Acid-soluble protein/% 2.26d 2.50c 3.46b 3.63a 3.62a 0.16 <0.001
乳酸菌活菌数Lactic acid bacteria count/(×108 CFU/g) 1.80b 2.16a 2.10a 2.30a 2.29a 0.06 0.006
表7可知,随着料水比的增加,发酵饲料中总酸、酸溶蛋白含量和乳酸菌活菌数先升高后降低,且在料水比为1∶1时总酸、酸溶蛋白含量和乳酸菌活菌数达到最佳。当水分含量较低时,底物过于干燥,不利于罗伊氏乳杆菌附着吸收其中的营养物质;而如果水分含量过高,底物容易黏成一团造成厌氧环境,罗伊氏乳杆菌生长所需的氧气不足,生长受到抑制。因此,后续试验选取料水比为1∶1。
表7 料水比对发酵饲料中总酸、酸溶蛋白含量和乳酸菌活菌数的影响

Table 7 Effects of feed-to-water ratio on total acid, acid-soluble protein contents and lactic acid bacteria count in fermented feed

项目
Items
料水比Feed-to-water ratio SEM P
P-value
1∶0.5 1∶0.75 1∶1 1∶1.25 1∶1.5
总酸Total acid/% 3.42d 3.62c 4.12a 3.93b 3.88b 0.07 <0.001
酸溶蛋白Acid-soluble protein/% 3.39b 3.50b 4.02a 3.51b 3.42b 0.07 <0.001
乳酸菌活菌数Lactic acid bacteria count/(×108 CFU/g) 1.26c 1.96b 2.46a 1.84b 1.80b 0.10 <0.001
表8可知,蔗糖添加量超过2.0%时,发酵饲料中总酸、酸溶蛋白和乳酸菌活菌数无显著变化(P>0.05)。蔗糖的添加可为罗伊氏乳杆菌的生长提供能量,当蔗糖添加量为2.0%时,与罗伊氏乳杆菌的生长所需的能量达到平衡,因此后续试验选取蔗糖添加量为2.0%。
表8 蔗糖添加量对发酵饲料总酸、酸溶蛋白和乳酸菌活菌数的影响

Table 8 Effects of sucrose addition on total acid, acid soluble protein contents and lactic acid bacteria count in fermented feed

项目
Items
蔗糖添加量Sucrose addition/% SEM P
P-value
1.0 1.5 2.0 2.5 3.0
总酸Total acid/% 3.42c 3.62b 4.12a 4.10a 4.11a 0.08 <0.001
酸溶蛋白Acid-soluble protein/% 3.39c 3.50b 3.78a 3.79a 3.78a 0.18 <0.001
乳酸菌活菌数Lactic acid bacteria count/(×108 CFU/g) 1.56c 1.96b 2.26a 2.24a 2.24a 0.29 <0.001

2.2 响应面试验结果

基于单因素试验结果,以总酸(Y1)、酸溶蛋白含量(Y2)和乳酸菌活菌数(Y3)作为响应值,选取单因素试验中的菌液接种量(A)、发酵温度(B)、发酵时间(C)和料水比(D)4个主要考察因素作为响应面试验设计的因素,建立多元线性回归方程,并根据拟合模型得到响应面图,进而优化出最佳发酵条件,试验设计方案与结果见表9
表9 响应面试验结果

Table 9 Response surface test results

序号No. A/% B/% C/h D Y1/% Y2/% Y3/(×108 CFU/g) OD值OD value
1 6 34 36 1∶0.8 4.85 3.44 2.49 0.223
2 8 34 36 1∶1.5 4.35 3.05 1.57 0.045
3 8 40 36 1∶0.8 3.98 2.94 1.90 0.058
4 6 40 48 1∶0.8 3.05 3.85 1.99 0.073
5 6 28 24 1∶0.8 2.6 2.49 1.59 0.006
6 6 34 48 1∶1.5 4.02 3.95 2.18 0.171
7 6 40 36 1∶0.4 2.91 2.49 1.50 0.007
8 6 34 24 1∶0.4 2.52 2.49 1.32 0.002
9 4 34 48 1∶0.8 4.45 3.62 2.28 0.185
10 8 34 48 1∶0.8 4.07 3.75 2.49 0.202
11 6 34 36 1∶0.8 4.87 3.59 2.41 0.234
12 6 28 48 1∶0.8 4.07 2.94 2.61 0.115
13 4 34 36 1∶0.4 2.8 2.63 1.51 0.009
14 4 34 36 1∶1.5 4.08 3.56 1.63 0.068
15 6 28 36 1∶0.4 1.86 2.04 1.83 0.000
16 6 28 36 1∶1.5 3.87 3.40 2.19 0.114
17 6 40 24 1∶0.8 3.58 2.94 1.62 0.031
18 8 34 36 1∶0.4 2.56 2.49 2.14 0.013
19 4 40 36 1∶0.8 3.89 3.39 1.79 0.072
20 8 34 24 1∶0.8 3.56 2.49 1.98 0.026
21 4 34 24 1∶0.8 3.63 2.72 1.45 0.016
22 6 34 24 1∶1.5 4.72 3.18 1.35 0.030
23 8 28 36 1∶0.8 2.96 2.94 2.39 0.049
24 6 40 36 1∶1.5 3.99 3.31 1.11 0.000
25 4 28 36 1∶0.8 2.91 2.49 1.78 0.012
26 6 34 36 1∶0.8 4.72 3.54 2.35 0.206
27 6 34 48 1∶0.4 3.52 2.72 1.81 0.031
总评分吸光度(OD)值计算步骤:1)采用Hassan法对总酸、酸溶蛋白含量和乳酸菌活菌数进行归一化处理,总酸(d1)、酸溶蛋白含量(d2)和乳酸菌活菌数(d3)数值越大越好[d=(Mi-Mmin)/(Mmax-Mmin)。式中:Mi为指标测量值;Mmax为每一指标在所有试验中所测得的最大值;Mmin为每一指标在所有试验中所测得的最小值];2)将处理所得各指标进行归一化,得总评分OD值,即OD值=(d1×d2×d3)/3。
运用Design-Expert 13.0.1软件对试验数据进行分析后,可以得到菌液接种量(A)、发酵温度(B)、发酵时间(C)和料水比(D)对OD值的二次多项式:0.221 1-0.004 6A+0.030 5B+0.055 5C+0.002 5D-0.030 3AB-0.016 6AC-0.012 6AD+0.028 1BC-0.006 8BD+0.001 7CD-0.098 9A2-0.105 0B2-0.055 0C2-0.072 0D2
回归模型的方差分析见表10。模型的P=0.000 2,失拟项不显著,说明回归方程拟合度良好,可用本模型对响应值进行分析和预测。模型的决定系数(R2)=0.913 9,校正系数( R A d j 2)=0.813 4,说明模型可信度较高,能够较好地描述试验结果。方差分析结果显示,B和C对响应值的影响差异达到极显著水平(P<0.01);二次项中A2、B2、C2、D2对响应值的影响差异达到极显著水平(P<0.01)。
表10 回归模型的方差分析

Table 10 ANOVA of regression models

来源
Source
平方和
Sum of squares
自由度
DF
均方
Square of mean
F
F-value
P
P-value
显著性
Significance
模型Model 0.143 3 14 0.010 2 9.090 0 0.000 2 **
A 0.000 3 1 0.000 3 0.229 2 0.640 7
B 0.011 2 1 0.011 2 9.940 0 0.008 3 **
C 0.036 9 1 0.036 9 32.790 0 <0.000 1 **
D 0.000 1 1 0.000 1 0.067 8 0.799 0
AB 0.003 7 1 0.003 7 3.260 0 0.095 9
AC 0.001 1 1 0.001 1 0.979 1 0.341 9
AD 0.000 6 1 0.000 6 0.566 8 0.466 1
BC 0.003 2 1 0.003 2 2.800 0 0.120 2
BD 0.000 2 1 0.000 2 0.162 8 0.693 7
CD 0.000 0 1 0.000 0 0.009 7 0.923 2
A2 0.052 1 1 0.052 1 46.320 0 <0.000 1 **
B2 0.058 8 1 0.058 8 52.280 0 <0.000 1 **
C2 0.016 3 1 0.016 3 14.450 0 0.002 5 **
D2 0.027 6 1 0.027 6 24.540 0 0.000 3 **
残差Residual 0.013 5 12 0.001 1
失拟项Lack of fit 0.013 1 10 0.001 3 6.200 0 0.142 9
纯误差Pure error 0.000 4 2 0.000 2
总和Sum 0.156 8 26

“**”表示差异极显著(P<0.01)。

“**” mean extremely significant difference (P<0.01).

2.3 最佳发酵工艺的确定和模型验证

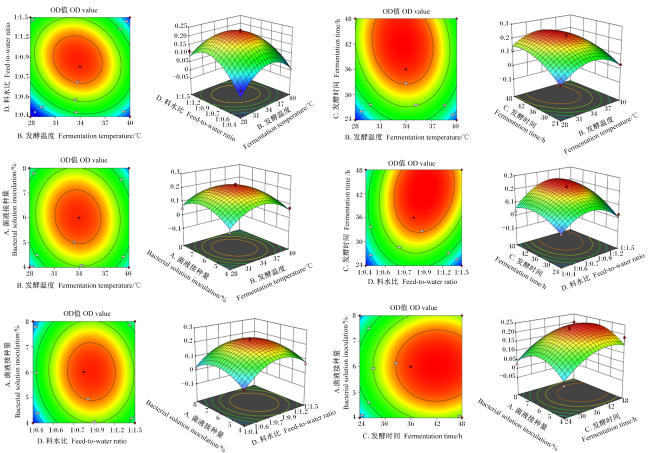
为了更加直观地了解发酵饲料中总酸、酸溶蛋白含量和乳酸菌活菌数,运用Design-Expert 13.0.1软件基于二次回归方程模型绘制影响发酵饲料中总酸、酸溶蛋白含量和乳酸菌活菌数的等高线和三维图,见图1。根据响应面试验所得结果,结合回归模型,预测菌酶协同发酵饲料的最佳发酵工艺为菌液接种量6.089%,发酵温度33.135 ℃,发酵时间45.185 h,料水比1∶0.997 3,在此条件下预测发酵饲料中总酸含量为4.786%,酸溶蛋白含量为3.849%,乳酸菌活菌数为2.569×10⁸ CFU/g。考虑试验实际的可操作性,修正最佳发酵工艺为菌液接种量6.0%,发酵温度33.0 ℃,发酵时间45.0 h,料水比1∶1。为了验证响应面模型的准确性,在上述最佳发酵工艺下进行3次平行试验,测得发酵饲料中总酸含量为4.46%,相对偏差为2.58%,酸溶蛋白含量为3.83%,相对偏差为2.35%,乳酸菌活菌数为2.33×10⁸ CFU/g,相对偏差为2.15%,与预测值接近,说明构建的响应面模型能够很好地反映菌酶协同对断奶仔猪玉米-豆粕型饲粮进行发酵的情况。
图1 菌液接种量(A)、发酵温度(B)、发酵时间(C)和料水比(D)对OD值的响应面3D图

Fig.1 3D plots of response surfaces of bacterial solution inoculation (A), fermentation temperature (B), fermentation time (C) and feed-to-water ratio (D) to OD values

2.4 常规营养成分测定结果

在响应面试验优化的最佳发酵条件下发酵玉米-豆粕型饲粮,测定发酵后玉米-豆粕型饲粮中水分、干物质、粗灰分、粗蛋白质、酸溶蛋白、非蛋白氮、可溶性蛋白、粗脂肪、中性洗涤纤维、酸性洗涤纤维、钙和总磷含量,见表11。BE组的粗蛋白质含量显著高于其余3组(P<0.05),B组和E组之间差异不显著(P>0.05),但均显著高于CK组(P<0.05)。BE组的酸溶蛋白和可溶性蛋白含量呈现出与粗蛋白质含量相同的结果。BE组的非蛋白氮含量显著低于其余3组(P<0.05),B组和E组之间差异不显著(P>0.05),但均显著低于CK组(P<0.05)。BE组的中性洗涤纤维和酸性洗涤纤维含量低于其他3组,但差异不显著(P>0.05)。
表11 发酵饲料常规营养成分含量

Table 11 Conventional nutrient contents in fermented feed %

项目
Items
组别Groups SEM P
P-value
CK B E BE
水分Moisture 6.70b 54.43a 54.41a 54.69a 6.25 <0.001
干物质Dry matter 93.30a 45.57b 45.59b 45.31b 6.25 <0.001
粗灰分Crude ash 5.66 5.66 5.61 5.71 0.03 0.680
粗蛋白质Crude protein 18.16c 20.56b 20.65b 21.35a 0.36 <0.001
酸溶蛋白Acid-soluble protein 1.97c 3.28b 3.39b 3.83a 0.26 <0.001
非蛋白氮Non protein nitrogen 1.35a 1.07b 1.11b 0.85c 0.06 <0.001
可溶性蛋白Soluble crude protein 31.31c 44.69b 47.64b 57.62a 3.16 <0.001
粗脂肪Crude fat 7.72 7.73 7.74 7.72 0.07 0.222
中性洗涤纤维Neutral detergent fiber 12.28 12.68 12.76 11.45 0.23 0.145
酸性洗涤纤维Acid detergent fiber 5.19 5.15 5.21 4.66 0.12 0.363
钙Calcium 0.74 0.71 0.71 0.71 0.01 0.441
总磷Total phosphorus 0.58 0.53 0.54 0.53 0.02 0.994

2.5 玉米-豆粕型饲粮的分子结构检测结果

2.5.1 玉米-豆粕型饲粮的红外光谱
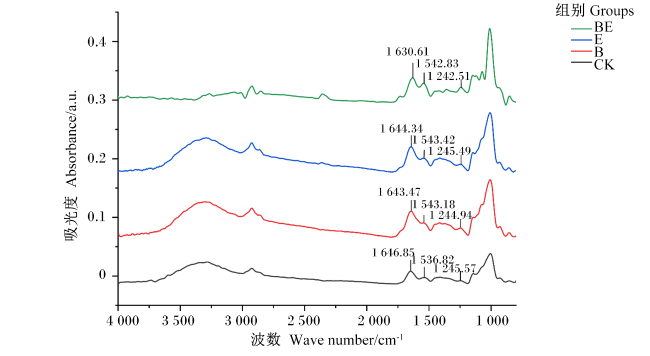
基于上述结果,为了深入研究玉米-豆粕型饲粮经发酵后营养成分变化,本研究使用FTIR仪对4组进行不同处理的玉米-豆粕型饲粮的分子结构进行检测。4组玉米-豆粕型饲粮的红外光谱如图2所示,可以看出BE组与CK组的红外光谱图有明显差异。酰胺Ⅰ、Ⅱ和Ⅲ区通常位于1 700~1 600 cm-1、1 600~1 500 cm-1和1 330~1220 cm-1。根据图3可知,CK组、B组、E组和BE组酰胺I区分别位于1 646.85、1 643.47、1 644.34和1 630.61 cm-1;分别在1 646.85、1 643.47、1 644.34和1 630.61 cm-1处观察到吸收峰,是源自于C=O基团的伸缩振动;分别在1 536.82、1 543.18、1 543.42和1 542.83 cm-1处观察到吸收峰,是源自于C-N基团的伸缩振动;分别在1 245.57、1 244.94、1 245.49和1 242.51 cm-1处观察到吸收峰,是源自于C-N基团的伸缩振动。
图2 玉米-豆粕型饲粮的红外光谱图

Fig.2 Infrared spectra of corn-soybean meal diet

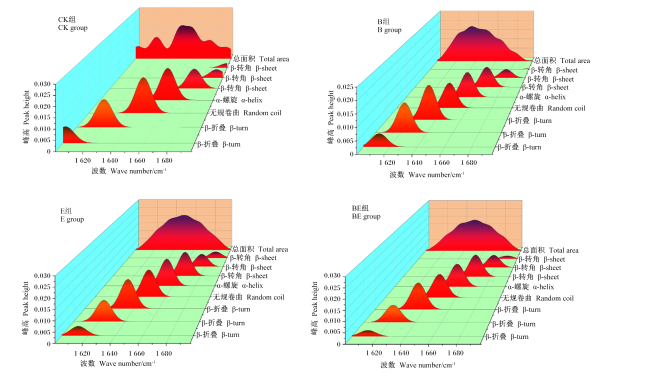
图3 蛋白质二级结构3D瀑布图

Fig.3 3D waterfall plot of protein secondary structure

2.5.2 蛋白质二级结构参数测定结果

表12可知,玉米-豆粕型饲粮发酵后蛋白质酰胺带和二级结构参数发生了明显变化。从蛋白质酰胺带看,BE组酰胺Ⅰ区峰面积显著高于其余3组(P<0.05);B组酰胺Ⅱ区峰面积和峰高显著高于其余3组(P<0.05);BE组酰胺Ⅰ区峰面积/酰胺Ⅱ区峰面积以及酰胺Ⅰ区峰高/酰胺Ⅱ区峰高显著高于其余3组(P<0.05)。从蛋白质二级结构分析,CK组无规卷曲峰面积显著高于BE组(P<0.05);BE组α-螺旋峰面积显著高于其余3组(P<0.05),且β-折叠峰面积/α-螺旋峰面积显著低于其余3组(P<0.05);各组之间的β-折叠峰面积无显著差异(P>0.05)。
表12 玉米-豆粕型饲粮蛋白质二级结构参数

Table 12 Parameters of protein secondary structure of corn-soybean meal diet

项目
Items
组别Groups SEM P
P-value
CK B E BE
酰胺Ⅰ区基线范围
Amide Ⅰ baseline range/cm-1
1 762.619~
1 579.414
1 710.550~
1 577.486
1 797.331~
1 567.844
1 801.188~
1 560.130
酰胺Ⅰ区峰面积
Amide Ⅰ peak area
1.08d 1.36c 1.92b 2.03a 0.12 <0.001
酰胺Ⅰ区中心
Amide Ⅰ centre/cm-1
1 646.85 1 643.47 1 644.34 1 630.61
酰胺Ⅰ区峰高
Amide Ⅰ peak height
0.016 2c 0.023 0b 0.029 0a 0.028 6a 0.00 <0.001
酰胺Ⅱ区基线范围
Amide Ⅱ baseline range
1 579.414~
1 486.848
1 577.486~
1 486.848
1 567.844~
1 486.488
1 560.130~
1 486.848
酰胺Ⅱ区峰面积
Amide Ⅱ peak area
0.222c 0.596a 0.265b 0.177d 0.05 <0.001
酰胺Ⅱ区中心
Amide Ⅱ centre/cm-1
1 536.82 1 543.18 1 543.52 1 542.83
酰胺Ⅱ区峰高
Amide Ⅱ peak height
0.004 2c 0.012 0a 0.005 0b 0.003 7d 0.00 <0.001
酰胺Ⅰ区峰面积/酰胺Ⅱ区峰面积
Amide Ⅰ peak area/amide
Ⅱ peak area
4.84c 2.28d 7.25b 11.51a 1.03 <0.001
酰胺Ⅰ区峰高/酰胺Ⅱ区峰高
Amide Ⅰ peak height/amide
Ⅱ peak height
3.86c 1.92d 5.80b 7.73a 0.64 <0.001
β-折叠峰面积
β-sheet peak area
0.38 0.46 0.44 0.43 0.02 0.425
β-折叠峰面积占比
β-sheet peak area ratio
0.35 0.37 0.23 0.22 0.03 0.106
无规卷曲峰面积
Random coil peak area
0.14c 0.16bc 0.21a 0.19ab 0.01 0.023
无规卷曲峰面积占比
Random coil peak area ratio
0.13a 0.12ab 0.11ab 0.09b 0.01 0.045
α-螺旋峰面积
α-helix peak area
0.13b 0.16a 0.22a 0.27a 0.02 0.027
α-螺旋峰面积占比
α-helix peak area ratio
0.12 0.16 0.11 0.14 0.01 0.363
β-转角峰面积
β-turn peak area
0.19b 0.20b 0.37a 0.37a 0.03 0.002
β-转角峰面积占比
β-turn peak area ratio
0.18ab 0.14b 0.19a 0.17ab 0.01 0.047
β-折叠峰面积/α-螺旋峰面积
β-sheet peak area/α-helix peak area
2.87a 2.24b 2.00c 1.58d 0.17 <0.001

2.5.3 蛋白质二级结构3D瀑布图

图3可知,各组β-折叠和β-转角峰面积占比均较高;CK组无规卷曲峰面积占比高于其余3组;B组β-折叠峰面积占比高于其余3组;E组中β-转角峰面积占比最高;BE组中β-折叠峰面积占比最高,但低于其余3组。蛋白质二级结构3D瀑布图与表12中结果一致,表明玉米-豆粕型饲粮经过发酵酶解后蛋白质二级结构发生了改变。

3 讨论

3.1 响应面法优化玉米-豆粕型饲粮的发酵工艺

由于玉米和豆粕的高能量、高蛋白质特性,成为了我国猪饲料配方中最常用的能量和蛋白质饲料原料[15-16]。但由于非淀粉多糖、大豆抗原蛋白等抗营养因子的存在,导致饲料利用率较低[17]。大量研究表明,饲料经过发酵酶解后可将蛋白质、脂肪和多糖等大分子物质降解或转化为可溶性多肽和有机酸等小分子物质,同时产生大量营养丰富的菌体蛋白及代谢产物,利于动物体对于饲料的消化吸收,并且可以改善饲料适口性,提高饲料利用率[18-19]。菌液接种量和酶添加量过低会导致饲料发酵酶解不充分,菌液接种量和酶添加量过高则会使成本升高,含水量高低会影响微生物的生长和营养成分过来[20],发酵时间与发酵温度直接影响固态发酵的效果[21]。蔗糖的添加可为罗伊氏乳杆菌提供快速增殖所需能量,增加发酵效率,因此本研究中对影响发酵工艺的6个主要因素菌液接种量、酶添加量、发酵温度、发酵时间、料水比和蔗糖添加量进行了考察。本研究发现,使用罗伊氏乳杆菌和复合酶制剂协同发酵饲料相比单一菌株发酵或单独酶制剂酶解饲料效果更优,但关键取决于发酵菌株、酶制剂种类以及发酵所采用的工艺。因此,研究菌酶协同对玉米-豆粕型饲粮的发酵效果及发酵工艺的优化可以对畜禽饲粮生产提供参考和借鉴。

3.2 发酵饲料的常规营养成分变化分析

在应用最佳发酵工艺将玉米-豆粕型饲粮发酵后,对其营养成分进行检测,发现其的营养成分发生了一些变化,菌酶协同发酵组(BE组)的中性洗涤纤维和酸性洗涤纤维含量有所减少,但和其余3组间无显著差异。在发酵过程中,微生物会分泌一些酶类,复合酶制剂的添加也起到酶解饲料的作用,协同作用下这些酶可以分解饲料中的纤维素和半纤维素。中性洗涤纤维和酸性洗涤纤维含量的减少意味着纤维结构被破坏,使得剩余纤维更容易被动物消化和利用,从而提高饲料的整体消化率。本试验中发酵饲料的常规营养成分只有粗蛋白质和酸溶蛋白含量发生了显著升高。提高饲料中粗蛋白质含量可提高饲料的营养价值[22]。酸溶蛋白含量反映了大分子蛋白质被分解的情况,生产中多用该指标评价小肽的含量,酸溶蛋白含量高说明小肽、氨基酸含量高,蛋白质的消化率高[23]。本研究中,B组、E组和BE组的粗蛋白质含量相较于发酵前分别提高了12.91%、13.42%和17.28%;B组、E组和BE组的酸溶蛋白含量从1.97%分别提升到3.28%、3.39%和3.83%,说明饲料经过发酵后不仅能够提高其营养价值,并且能够将大分子蛋白质分解为更容易被动物消化吸收的小分子蛋白质。Dai等[24]报道,豆粕经枯草芽孢杆菌发酵后,粗蛋白质含量从38.25%增加到44.82%。周爽等[25]研究发现,经菌酶协同发酵处理的豆粕样品,肽含量从原料豆粕的13.35 mg/g提高到199.65 mg/g,粗蛋白质含量从原料豆粕的47.12%提高到56.82%,与本试验中玉米-豆粕型饲粮发酵后粗蛋白质含量升高的结果一致。此现象可能是因为微生物能将饲料原料中的非蛋白氮、培养基中的无机氮及抗营养因子等各种物质分解利用合成自身高质量的菌体蛋白[26]

3.3 玉米-豆粕型饲粮发酵前后分子结构分析

饲料的营养价值不仅受到其化学成分的影响,其内在分子结构也起着很大作用[27]。所以本研究针对饲料营养价值的变化使用FTIR仪对玉米-豆粕型饲粮进行了分子结构的检测。酸胺Ⅰ区对蛋白质二级结构变化敏感,吸收强度大,所以酰胺Ⅰ区振动模式成为研究蛋白质二级结构的首选区域[28-29]。酰胺Ⅰ带的C=O伸缩振动及其与N-H弯曲振动、C-N伸缩振动的偶合,反映了蛋白质的二级结构。酰胺Ⅰ带的伸缩振动频率取决于C=O和N-H之间的氢键性质,即特征振动频率反映了蛋白质或多肽的特定二级结构[30-31]。本研究发现,玉米-豆粕型饲粮经发酵后酰胺Ⅰ区峰值位置向较短波长转移,这表明发酵饲料的蛋白质分子结构发生了变化。本研究还发现BE组中酰胺Ⅰ区面积最大,这可能与该组发酵饲料中粗蛋白质和酸溶蛋白含量较高有关。Yu[32]研究发现,α-螺旋和β-折叠这2种结构在蛋白质二级结构中的占比会影响蛋白质的营养价值、质量和消化。β-折叠含有大量的氢键,阻碍了蛋白酶对蛋白质的酶解作用,因而β-折叠含量高的蛋白质具有较低的消化率或营养价值[11]。本研究发现,BE组β-折叠峰面积占比最少,且饲料经过发酵酶解后酸溶蛋白和可溶性蛋白含量显著升高,说明玉米-豆粕型饲粮景发酵酶解后其中的蛋白质更容易被动物消化利用。此外,先前的研究报道了蛋白质的体外消化速率与β-折叠与α-螺旋的比例呈负相关[33-35]。本研究中,BE组β-折叠与α-螺旋的面积占比最小,并且BE组中酸溶蛋白和可溶性蛋白含量最高,说明了菌酶协同发酵玉米-豆粕型饲粮后其蛋白质的体外消化率可能更高。

4 结论

① 玉米-豆粕型饲粮的最佳发酵工艺为:菌液接种量6.0%,酶添加量0.036%,发酵温度33.0 ℃,发酵时间45.0 h,料水比1∶1,蔗糖添加量2.0%。
② 玉米-豆粕型饲粮在最佳发酵工艺下,其蛋白质二级结构与发酵前存在明显差异,菌酶协同发酵后酸溶蛋白和可溶性蛋白含量显著升高,说明玉米-豆粕型饲粮向更容易被畜禽消化的方向转变,并且菌酶协同发酵的效果优于单独菌株发酵或单独酶制剂酶解。
[1]
万里, 冯宇哲, 王磊, 等. 微生物发酵饲料的研究进展及其应用[J]. 饲料研究, 2021, 44(13):142-145.

WAN L, FENG Y Z, WANG L, et al. Research progress and application of microbial fermented feed[J]. Feed Research, 2021, 44(13):142-145. (in Chinese)

[2]
张爱忠, 许威, 赵芳芳, 等. 微生物发酵饲料在动物生产中应用的研究进展[J]. 动物营养学报, 2022, 34(10):6429-6435.

DOI

ZHANG A Z, XU W, ZHAO F F, et al. Research progress of microbial fermented feed in animal production[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6429-6435. (in Chinese)

DOI

[3]
MISSOTTEN J A, MICHIELS J, DEGROOTE J, et al. Fermented liquid feed for pigs:an ancient technique for the future[J]. Journal of Animal Science and Biotechnology, 2015, 6(1):4.

[4]
ZHU J J, GAO M X, SONG X J, et al. Changes in bacterial diversity and composition in the faeces and colon of weaned piglets after feeding fermented soybean meal[J]. Journal of Medical Microbiology, 2018, 67(8):1181-1190.

[5]
DA SILVA L C A, HONORATO T L, CAVALCANTE R S, et al. Effect of pH and temperature on enzyme activity of chitosanase produced under solid stated fermentation by Trichoderma spp[J]. Indian Journal of Microbiology, 2012, 52(1):60-65.

[6]
宋霄雪, 欧全宏, 郑钧文, 等. 人工老化油菜种子的红外光谱研究[J]. 种子, 2023, 42(11):149-156.

SONG X X, OU Q H, ZHENG J W, et al. Study of artificial aged rape seeds by infrared spectroscopy[J]. Seed, 2023, 42(11):149-156. (in Chinese)

[7]
周枫然, 韩桥, 张体强, 等. 傅里叶变换红外光谱技术的应用及进展[J]. 化学试剂, 2021, 43(8):1001-1009.

ZHOU F R, HAN Q, ZHANG T Q, et al. Application and progress of Fourier transform infrared spectroscopy technology[J]. Chemical Reagents, 2021, 43(8):1001-1009. (in Chinese)

[8]
顾旭鹏, 张迪, 张韶珂, 等. 傅里叶变换红外光谱技术对北柴胡中有效成分定量模型建立及含量测定[J/OL]. 中华中医药学刊:1-11(2024-04-21)[2024-05-01]. http://kns.cnki.net/kcms/detail/21.1546.R.20240419.1355.030.html.

GU X P, ZHANG D, ZHANG S K, et al. Quantitative modeling and content determination of active ingredients in Bupleurum chinense DC by Fourier transform infrared spectroscopy[J/OL]. Chinese Archives of Traditional Chinese Medicine:1-11(2024-04-21)[2024-05-01]. http://kns.cnki.net/kcms/detail/21.1546.R.20240419.1355.030.html. (in Chinese)

[9]
李姝洁, 刘杰, 邓子昂, 等. FTIR光谱结合曲线拟合研究萌发水稻种子[J]. 光谱学与光谱分析, 2022, 42(6):1832-1840.

LI S J, LIU J, DENG Z A, et al. Study of germinated rice seeds by FTIR spectroscopy combined with curve fitting[J]. Spectroscopy and Spectral Analysis, 2022, 42(6):1832-1840. (in Chinese)

[10]
GOLEA C M, CODINǍ G G, OROIAN M. Prediction of wheat flours composition using Fourier transform infrared spectrometry (FT-IR)[J]. Food Control, 2023,143:109318.

[11]
LI L, ZHANG Q N, YUAN X F, et al. Study of the molecular structure of proteins in fermented maize-soybean meal-based rations based on FTIR spectroscopy[J]. Food Chemistry, 2024,441:138310.

[12]
王晓帆, 张幸怡, 郝小燕, 等. 玉米青贮蛋白质组分与分子结构关系的研究[J]. 饲料工业, 2016, 37(7):49-53.

WANG X F, ZHANG X Y, HAO X Y, et al. Relationship between protein fractions and molecular structures of corn silages[J]. Feed Industry, 2016, 37(7):49-53. (in Chinese)

[13]
邓奕妮, 邓莉萍, 胡承镇, 等. 乳仔猪功能性生物发酵饲料的营养价值及应用研究[J]. 饲料研究, 2020, 43(9):60-63.

DENG Y N, DENG L P, HU C Z, et al. The nutritional value and application of functional fermented feed in suckling piglet[J]. Feed Research, 2020, 43(9):60-63. (in Chinese)

[14]
LICITRA G, HERNANDEZ T M, VAN SOEST P J. Standardization of procedures for nitrogen fractionation of ruminant feeds[J]. Animal Feed Science and Technology, 1996, 57(4):347-358.

[15]
CAO Y Z, LU J, CAI G L. Quality improvement of soybean meal by yeast fermentation:based on the degradation of anti-nutritional factors and accumulation of beneficial metabolites[J]. Journal of the Science of Food and Agriculture, 2024, 104(3):1441-1449.

[16]
郭妞, 苏莹莹, 刘旭乐, 等. 饲料原料玉米的猪营养价值评定研究进展[J]. 中国畜牧杂志, 2023, 59(1):47-56.

GUO N, SU Y Y, LIU X L, et al. Research progress in evaluating the nutritional value of corn as a feed ingredient for pigs[J]. Chinese Journal of Animal Science, 2023, 59(1):47-56. (in Chinese)

[17]
陈诗宇, 茶光辉, 李吉琴, 等. 固态发酵饲料工艺优化及抗营养因子降解效果研究[J]. 动物营养学报, 2023, 35(10):6787-6800.

DOI

CHEN S Y, CHA G H, LI J Q, et al. Study on optimization of solid-state fermentation feed process and degradation effects of anti-nutritional factor[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6787-6800. (in Chinese)

DOI

[18]
夹柔, 董丽, 喻怀礼. 生物发酵饲料在养猪生产中的应用[J]. 中国饲料, 2024(7):109-113.

GA R, DONG L, YU H L. The role of biological fermented feed in pig production[J]. China Feed, 2024(7):109-113. (in Chinese)

[19]
MUKHERJEE R, CHAKRABORTY R, DUTTA A. Role of fermentation in improving nutritional quality of soybean meal-a review[J]. Asian-Australasian Journal of Animal Sciences, 2016, 29(11):1523-1529.

[20]
赵华, 汤小朋, 汤加勇, 等. 复合生态菌固态发酵木薯渣工艺参数优化及混菌发酵对木薯渣营养品质的影响[J]. 中国畜牧杂志, 2016, 52(5):55-59,92.

ZHAO H, TANG X P, TANG J Y, et al. Solid-state fermentation parameters optimization and nutritional improvement of cassava residue with complex culture of microbial strains[J]. Chinese Journal of Animal Science, 2016, 52(5):55-59,92. (in Chinese)

[21]
李涛, 欧阳香, 李成舰, 等. 杏鲍菇菌糠饲料的发酵工艺及其在山羊日粮中的应用研究[J]. 邵阳学院学报(自然科学版), 2021, 18(6):71-77.

LI T, OU YANG X, LI C J, et al. Study on the fermentation process of Pleurotus eryngii residue and its application in goat feed[J]. Journal of Shaoyang University (Natural Science Edition), 2021, 18(6):71-77. (in Chinese)

[22]
姚逸安, 孙仁修, 胡情情, 等. 微生态制剂及在绵羊养殖中的应用研究进展[J]. 中国饲料, 2023(5):16-23.

YAO Y A, SUN R X, HU Q Q, et al. Research progress of microecological preparation and its application in sheep breeding[J]. China Feed, 2023(5):16-23. (in Chinese)

[23]
李旺, 何万领, 丁轲, 等. 不同处理方法对豆粕中抗原蛋白和酸溶蛋白的影响[J]. 西北农林科技大学学报(自然科学版), 2020, 48(1):25-32.

LI W, HE W L, DING K, et al. Effect of different treatment methods on antigen protein and acid soluble protein in soybean meal[J]. Journal of Northwest A&F University (Natural Science Edition), 2020, 48(1):25-32. (in Chinese)

[24]
DAI C H, MA H L, HE R H, et al. Improvement of nutritional value and bioactivity of soybean meal by solid-state fermentation with Bacillus subtilis[J]. LWT, 2017,86:1-7.

[25]
周爽, 张青, 齐晓芬, 等. 枯草芽孢杆菌和中性蛋白酶协同发酵豆粕方法的研究[J]. 食品工业, 2016, 37(9):163-168.

ZHOU S, ZHANG Q, QI X F, et al. Study on the method of the synergy Bacillus subtilis and neutral protease in soybean meal fermentation[J]. The Food Industry, 2016, 37(9):163-168. (in Chinese)

[26]
GAO L M, CHI Z M, SHENG J, et al. Single-cell protein production from Jerusalem artichoke extract by a recently isolated marine yeast Cryptococcus aureus G7a and its nutritive analysis[J]. Applied Microbiology and Biotechnology, 2007, 77(4):825-832.

[27]
YU P, CHRISTENSEN D A, MCKINNON J J, et al. Using chemical and biological approaches to predict energy values of selected forages affected by variety and maturity stage:comparison of three approaches[J]. Asian-Australasian Journal of Animal Sciences, 2004, 17(2):228-236.

[28]
MILLER L M, CARR G L, JACKSON M, et al. The impact of infrared synchrotron radiation on biology:past,present,and future[J]. Synchrotron Radiation News, 2000, 13(5):31-38.

[29]
MARINKOVIC N S, HUANG R, BROMBERG P, et al. Center for synchrotron biosciences’ U2B beamline:an international resource for biological infrared spectroscopy[J]. Journal of Synchrotron Radiation, 2002, 9(Pt 4):189-197.

[30]
YU P. Application of advanced synchrotron radiation-based Fourier transform infrared (SR-FTIR) microspectroscopy to animal nutrition and feed science:a novel approach[J]. The British Journal of Nutrition, 2004, 92(6):869-885.

[31]
YANG L, MCKINNON J J, CHRISTENSEN D A, et al. Characterizing the molecular structure features of newly developed hulless barley cultivars with altered carbohydrate traits (Hordeum vulgare L.) by globar-sourced infrared spectroscopy in relation to nutrient utilization and availability[J]. Journal of Cereal Science, 2014, 60(1):48-59.

[32]
YU P Q. Protein sedondary structures (α-helix and β-sheet) at a cellular level and protein fractions in relation to rumen degardation behaviours of protein:a new approach[J]. British Journal of Nutrition, 2005, 94(5):655-665.

[33]
张苏江, 艾买尔江·吾斯曼, 薛兴中, 等. 南疆玉米和不同糖分甜高粱的青贮品质分析[J]. 草业学报, 2014, 23(3):232-240.

ZHANG S J, WUSIMAN A, XUE X Z, et al. Quality analysis on different sweet sorghum silages in Southern Xinjiang compared with a corn silage[J]. Acta prataculturae Sinica, 2014, 23(3):232-240. (in Chinese)

[34]
白明昧, 孙泽威, 龙国徽, 等. 热处理对全脂大豆蛋白质分子结构特征、溶解度和体外消化率的影响[J]. 西北农林科技大学学报(自然科学版), 2016, 44(11):31-38.

BAI M M, SUN Z W, LONG G H, et al. Effect of heat-treatment on molecular structure characteristics,solubility and in vitro digestibility of full-fat soybean protein[J]. Journal of Northwest A&F University (Natural Science Edition), 2016, 44(11):31-38. (in Chinese)

[35]
胡虹, 张秀江, 权淑静, 等. 植物乳杆菌液体发酵仔猪全价饲料的试验研究[J]. 饲料研究, 2019, 42(8):55-59.

HU H, ZHANG X J, QUAN S J, et al. Research of fermenting liquid complete feed for piglets by Lactobacillus plantarum[J]. Feed Research, 2019, 42(8):55-59. (in Chinese)

文章导航

/