综述

肉牛补偿生长的作用机制及研究进展

  • 王佳琪 ,
  • 程龙 ,
  • 赵广永 ,
  • 李蒙蒙 , *
展开
  • 中国农业大学动物科学技术学院,畜禽营养与饲养全国重点实验室,北京 100193
*李蒙蒙,副教授,硕士生导师,E-mail:

王佳琪(1999—),女,河南南阳人,硕士研究生,研究方向为肉牛营养生理与代谢调控。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-06-09

  网络出版日期: 2024-12-12

基金资助

国家自然科学基金项目(32102573)

Advances and Mechanism of Compensatory Growth in Beef Cattle

  • WANG Jiaqi ,
  • CHENG Long ,
  • ZHAO Guangyong ,
  • LI Mengmeng , *
Expand
  • State Key Laboratory of Animal Nutrition and Feeding, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
*associate professor, E-mail:

Received date: 2024-06-09

  Online published: 2024-12-12

摘要

随着中国畜牧业的快速发展和饲料原料价格的大幅波动,提高肉牛生产效率和降低养殖成本已成为养牛业的迫切需求。中国的肉牛生产系统存在饲料利用效率低下的突出问题,而通过科学的饲养管理和营养调控,可以有效提高饲料利用率和生产性能。补偿生长作为一种特殊的生理现象,能够在营养恢复期通过快速生长弥补营养限制期的生长损失,提高肉牛的生产性能和饲料转化效率。肉牛的补偿生长机制复杂,受多种因素的影响,如营养限制的强度和时间、动物的年龄和品种等,这些都直接影响补偿生长的效率和实际应用效果。本文系统地总结了补偿生长的定义和类型、影响补偿生长的关键因素及其在肉牛生产中的应用,特别是如何通过营养调控和饲养管理来最大化补偿生长的效果,并对补偿生长的产生机制进行综述,以期为补偿生长在肉牛生产中的科学应用提供理论依据和技术参考。

本文引用格式

王佳琪 , 程龙 , 赵广永 , 李蒙蒙 . 肉牛补偿生长的作用机制及研究进展[J]. 动物营养学报, 2024 , 36(12) : 7544 -7552 . DOI: 10.12418/CJAN2024.642

Abstract

With the rapid development of livestock husbandry and significant increase in feed prices, improving production efficiency and reducing costs of beef cattle have become urgent issues for the cattle industry in China. Low feed utilization efficiency is a prominent challenge in beef production system of China, and feed utilization and production efficiency could be enhanced through scientific management and nutritional regulation. Compensatory growth, a special physiological phenomenon, can significantly improve the performance and feed utilization efficiency of beef cattle by compensating for growth losses caused by nutrient restriction through rapid growth during the nutrient re-alimentation period. The mechanism of compensatory growth in beef cattle is complex and can be influenced by various factors, including the degree and duration of nutritional restrictions, as well as age and genetics in beef cattle, these can directly affect the efficiency and practical application effect of compensatory growth. This article systematically summarized the definition of compensatory growth, its important influencing factors, and applications in beef cattle production. It particularly focused on maximizing the effect of compensatory growth through scientific management and nutritional regulation. Additionally, it summarized the underlying mechanisms of compensatory growth, which can provide a theoretical basis and technical reference for the scientific application of compensatory growth in beef cattle production.

作为全球经济中不可或缺的经济产业之一,畜牧业的生产用地占据了全球农业用地的77%,来自畜牧业的食品和蛋白质供应量分别占全球供应量的18%和37%[1],其中养牛业被认为是农业食品供应体系中至关重要的组成部分[2]。通过独特的消化生理结构,反刍动物能够有效地将人类不可食用的粗饲料转化为营养丰富的蛋白质产品[3]。这不仅确保了资源的可持续利用,而且对全球粮食安全具有深远的影响。牛肉中含有铁、锌、硒、钾、维生素和脂肪酸等对人类健康有益的必需营养物质[4]。牛肉已成为世界上仅次于猪肉和禽肉的第三大肉类消费产品[5]。随着中国经济和居民消费水平的提高,居民对牛肉的消费量逐年增长,至2023年牛肉类消费量已超过1 000万t,位居世界第二。牛肉进口量由2010年的2.36万t激增到2023年的274万t[6]。针对人口增长所导致的牛肉需求的不断增加,以及有限的可用资源等现状,提高牛肉生产系统的生产效率和可持续发展已经成为养牛业亟待解决的关键问题[7-8]
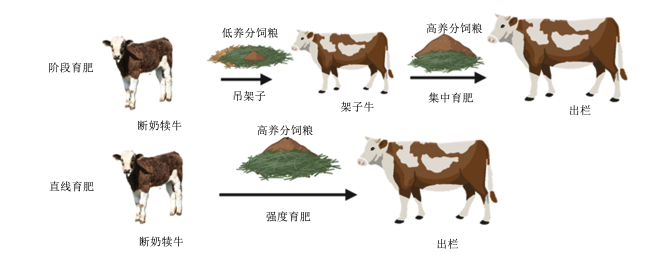
目前,在肉牛生产系统中有直线育肥和阶段育肥2种育肥策略(图1)。直线育肥又称强度育肥,指犊牛从断奶到屠宰前始终饲喂高营养水平饲粮。阶段育肥又称后期集中育肥,指在犊牛断奶后基于肉牛营养需求给予较低营养水平饲粮进行“吊架子”,在出栏前进行3~6个月的集中育肥,饲喂高营养水平饲粮使肉牛体重迅速恢复到正常水平[9]。阶段育肥通过对补偿生长效应的利用,能够在不损害胴体质量和最终体重的前提下减少育肥时长和饲料消耗[10-11]。利用补偿生长有助于将饲料从价格便宜的阶段(夏季)分配到饲料稀缺和昂贵时期(冬季),从而降低饲料成本[12]。同时,利用补偿生长能够提高牧区草畜季节性不平衡时的饲养管理。在集约化养殖条件下,肉牛养殖场采用后期集中育肥的饲养模式,可以利用补偿生长的优势提高肉牛的生长速度和饲料转化效率[13]
图1 阶段育肥和直线育肥策略

Fig.1 Strategies of programming fattening and straight-line fattening

1 补偿生长的概念和分类

补偿生长是指动物在生长阶段由于营养供应不足导致生长速度下降或生长受阻,但营养水平恢复正常后,生长速度明显加快的生理现象[14]。补偿生长是生物在进化过程中为适应环境和营养的变化经过自然选择的结果。作为一种普遍存在的生物现象,补偿生长现象在反刍动物、单胃动物和水产动物中均有报道[15-17]。Bohman[18]最早在1955年对肉牛的补偿生长进行了报道,认为当营养物质采食量不能满足生长或增重需要时,肉牛的生长速度会受到限制,生长潜力不能完全发挥,而当营养条件得到改善后,其生长速度明显加快。
限饲后补偿生长的程度可以使用“补偿指数(recovery index,RI)”进行量化。该指数的计算方法为限饲阶段对照组和限饲组的体重差与补偿阶段结束时2组动物体重差的差值除以限饲阶段对照组和限饲组的体重差[14],计算公式如下:
R I = ( A 1 - B 1   ) - ( A 2 - B 2   ) ( A 1 - B 1   )
式中:A1为正常饲喂模式下动物的体重;B1为与A1同期营养限制后动物的体重;A2为同期营养未受限动物的体重;B2为营养受限动物经过营养恢复后的体重。
图2所示,补偿生长依据RI可分为5种类型。若初始体重一致,补偿生长后超过正常体重的(RI>1)为“超补偿”,表明营养恢复后,限饲动物的体重超过未限饲动物的水平;追平正常体重的(RI=1)为“完全补偿”,即表明营养恢复后,限饲动物的体重达到未限饲动物的水平;平均日增重(average daily gain,ADG)高于正常水平但不能追平的(0<RI<1)为“部分补偿”;ADG恢复到正常水平的(RI=0)为“无补偿”,即恢复正常营养水平后动物的生长速度并未超过正常饲喂的动物;ADG仍然低于正常水平的(RI<0)为“负补偿”,说明限饲动物在补偿阶段的生长速度低于未限饲动物,出现了生长停滞的情况。
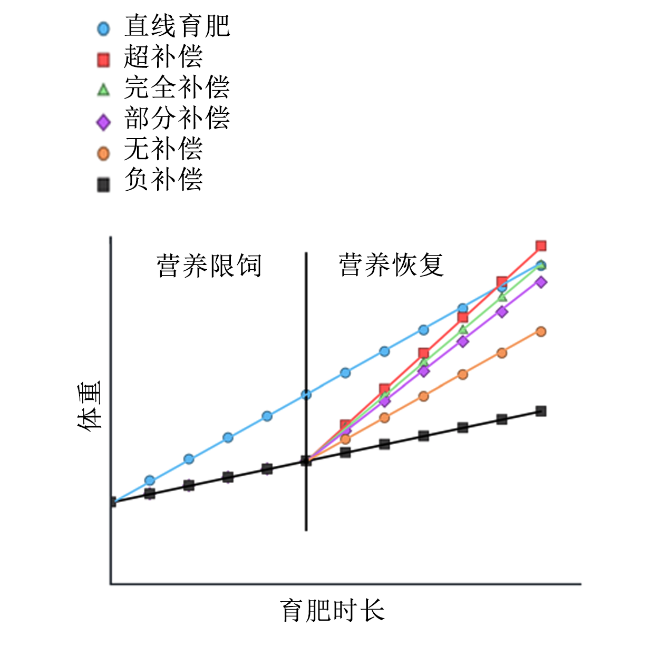
图2 补偿生长类型示例图

Fig.2 Diagram of compensatory growth types

2 影响肉牛补偿生长的关键因素

2.1 限饲方式对补偿生长的影响

引起补偿生长的限饲方式主要有采食量限饲和营养限饲2种方式,其中采食量限饲是实际生产中最常用的方式,即在不改变饲粮营养水平的条件下,按照自由采食量或目标ADG的比例来限制实际采食量,然后在限饲一定时间后恢复自由采食。Connor等[19]对8月龄公牛进行12周的60%~70%采食量限饲后恢复自由采食,自由采食2周后动物出现补偿生长现象(ADG:2.25 kg/d vs. 1.55 kg/d)。Brandstetter等[20]将9月龄阉牛分为采食量限饲组(ADG预设为0.8 kg/d)和自由采食组(ADG预设为1.3 kg/d),采食量限饲组进行3个月限饲后自由采食,肉牛出现了补偿生长现象(ADG:1.61 kg/d vs. 1.11 kg/d)。O’Shea等[21]将荷斯坦公牛分为限饲组和自由采食组,限饲组(ADG预设为0.6 kg/d)公牛限饲125 d,自由采食组(ADG预设为1.5 kg/d)全期自由采食,发现限饲组在营养恢复55 d后RI约为0.5。
另一种限饲方式是降低饲粮营养水平使动物在自由采食的条件下仍然处于营养不足的状态,在随后的补偿阶段将饲粮营养水平调整为正常水平并继续自由采食。在集约化养殖的模式下,采食量不是限制动物生长的主要原因,并且限制采食量容易导致牛群体重差异过大,单一营养素(如饲粮能量、蛋白质)限制可能是导致生长受限的原因。沈淳[22]将夏洛莱杂交公牛饲粮蛋白质水平限制至7%干物质占比后恢复到13%干物质占比,发现饲粮蛋白质限饲后恢复使肉牛产生了补偿生长效应,RI约为0.08,同时显著增加了生长期肉牛的氮利用效率(24.3% vs. 37.6%)。研究同时表明,饲粮蛋白质限饲后恢复主要是通过调节与氨基酸跨膜转运和哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路相关的功能基因来促进骨骼肌蛋白质的合成并减少蛋白质的分解。程龙[23]将西门塔尔杂交公牛分成限饲组和恢复组,在限饲期分别饲喂总可消化养分(total digestible nutrients,TDN)含量为61%和68%的饲粮,并在恢复期统一饲喂TDN含量为68%的饲粮,结果发现,能量限饲后恢复能够使肉牛产生约20%的补偿生长,同时氮沉积量(44.84 g/d vs. 50.04 g/d)和氮利用效率(27.70% vs. 30.64%)均有上升趋势。

2.2 限饲强度和时间对补偿生长的影响

在补偿生长的研究中,虽然限饲方法和补偿效果各不相同,但均认为动物在补偿阶段对于前期限制性饲喂的反应是高度可变的。营养水平限制的严重程度和持续时间、营养恢复阶段提供的饲粮类型以及动物个体因素如动物的年龄、发育阶段以及品种和性别等均会对补偿生长的效果产生影响[24-25]
Coleman等[26]分别对不同年龄的阉牛进行了采食量限制后恢复的处理,补偿结束后发现,秋季出生的年轻阉牛在补偿阶段将摄入的营养物质转化为增重的效率高于春季出生的年长阉牛。Morgan[27]将阉牛分成3组,第1组从出生到屠宰始终饲喂正常营养水平饲粮,第2组在16~32周龄进行维持水平的采食量限饲,第3组在出生至16周龄进行维持水平的采食量限饲,并将3组牛在体重约为363 kg时进行屠宰,结果发现,第3组在营养恢复后并未获得补偿生长,ADG仍然小于始终饲喂正常营养水平饲粮的对照组(1.72 kg/d vs. 2.14 kg/d),而第2组动物在营养恢复后出现了补偿生长现象(ADG:2.03 kg/d vs. 1.50 kg/d),表明年龄和发育阶段是反刍动物补偿生长的重要因素,过早的限饲可能对动物造成不可逆的长期影响。
在不影响动物生理健康的前提下,补偿阶段的生长强度与限饲期的强度成正比[28]。Neto等[29]将21月龄婆罗门牛分成3组,分别进行为期80 d的自由采食、80%采食量限制、60%采食量限制,随后进行50 d的营养恢复,恢复期间3组均自由采食,在营养恢复期观察到,60%采食量限制组的ADG要显著高于80%采食量限制组(0.918 kg/d vs. 0.707 kg/d),体重增长更多(45.90 kg vs. 35.35 kg),表明对肉牛的限制强度越大,其在营养恢复后产生的补偿生长效应越显著。Tolla等[30]将28~36月龄的瘤牛分成自由采食的对照组以及采食量限饲到维持水平的维持组、采食量限饲到体重减轻15%的-15%组、采食量饲到体重减轻20%的-20%组和采食量限饲到体重减轻25%的-25%组,限饲组在限饲91 d后自由采食105 d,研究结果显示,限饲强度的越大,补偿生长阶段的ADG越高(0.653 kg/d vs. 0.642 kg/d vs. 0.808 kg/d vs. 0.883 kg/d),表明限饲强度越大,恢复期肌肉补偿性生长越显著。Keogh等[31]的研究表明,肉牛在限制采食量125 d后恢复正常饲喂模式,55 d后RI达到0.48。Graham等[32]指出,更长的限饲时长(6个月vs. 4个月)会导致机体产生不可逆的损伤,并在采食量恢复后无补偿生长发生,表明较严重的限饲可能会引起较长的补偿时间,并且不一定总能产生预期的补偿效果。Vega等[33]的研究发现,荷斯坦牛在限制采食量145 d后恢复正常营养,在135 d后RI达到0.53。Ryan等[34]研究表明,对9~10月龄的海福特牛以损失16%初始体重的标准进行限饲,导致了长达330 d的补偿时间。Eckles等[35]对奶牛的研究表明,从营养不良时期产生的影响中恢复的趋势在动物生长发育过程中是普遍存在的,但如果营养限制程度过于严重可能会导致奶牛的成熟体型永久减小。

3 补偿生长产生的作用机制

补偿生长是一个复杂的生理变化过程,由多种因素共同作用,是生物对于外界刺激所作出的适应性改变和反馈。引起补偿生长的主要因素包括动物机体维持需要量的降低、代谢较强的内脏器官或组织重量的减少、补偿生长阶段采食量的大幅提高、饲料利用效率的改变、内分泌激素的调控、动物机体代谢状况的改变等。它们相互作用,相互影响,共同参与调控动物的补偿生长。

3.1 饲料转化效率、维持需要与内脏器官的变化

Keogh等[36]研究指出,与同阶段1.4 kg/d的正常生长速度相比,肉牛限饲后补偿生长阶段的生长速度提高到了2.5 kg/d。Deng等[37]报道,与正常饲喂肉牛0.93 kg/d的ADG相比,限饲肉牛在补偿生长阶段的ADG达到了1.15 kg/d。在50%和75%自由采食量的限饲程度下,限饲动物总是能够利用补偿效应赶上甚至超过正常饲喂动物的体重。补偿生长的优势不仅表现为生长速度的提高,还表现为饲料转化效率的提高。Keogh等[31]报道,与对照组9.98的料重比相比,补偿生长阶段肉牛的料重比下降到4.87,这表明补偿生长的饲喂模式显著提高了肉牛的饲料利用效率。Connor等[19]认为反刍动物补偿生长产生的机制与饲料转化效率的提高和基础能量需求的降低有关,其在对公牛进行60%采食量限饲后恢复时发现,前2周的饲料转化效率显著升高(29% vs. 19%)。对此,Connor等[19]认为这可能与内脏器官(如肝脏)重量减轻,基础代谢减少,线粒体电子传递改善,氧化应激减少有关。Keogh等[31]研究发现肝脏与体重之比在能量限饲后显著降低(0.96% vs. 1.47%),表明补偿生长的产生可能与肝脏重量的减轻以及维持代谢的降低有关。Yambayamba等[38]将肉牛分成维持组(ADG预设为0 kg/d)和自由采食组(ADG预设为1.5 kg/d),限饲92 d后恢复,结果显示,在恢复阶段的前2周限饲组ADG显著增加(2.8 kg/d vs. 1.5 kg/d),并于134 d后达到完全补偿;同时,限饲期间发现限饲组肝脏的绝对重量显著低于自由采食组。Shadnoush等[39]也认为营养限制减轻了动物内脏重量,降低了补偿阶段前期的维持需要,导致更高比例的能量和蛋白质在营养恢复阶段被用于生长,进而出现补偿生长现象。

3.2 营养物质和激素对补偿生长的调节

血液中营养物质或激素浓度的变化被认为是补偿生长产生的重要因素[25]。在肉牛由生长受限转变为补偿生长的过程中,血液中激素和营养物质浓度都发生了显著的变化[36]。在限饲阶段,限饲公牛的血液中葡萄糖和胰岛素浓度降低,甘油三酯、肌酐以及白蛋白和总蛋白浓度较高,机体脂肪和蛋白质组织的动员明显增加;此外,限饲组公牛的代谢率也比较低;当采食量恢复正常后,血液中激素和代谢物的浓度在限饲组和对照组之间没有显著差异,但限饲组公牛的心跳频率更高,表明新陈代谢率显著提高[36]。血液中胰岛素和葡萄糖浓度的变化与机体饲粮摄入量相关[25],而瘦素浓度与机体脂肪沉积存在正相关[40]。胰岛素样生长因子参与调节机体生长发育和靶组织的分化[41]。甲状腺激素参与组织的生长、代谢等活动[42]。Fox等[43]的研究显示,在维持水平上对海福特阉牛进行限饲,限饲阶段处理组的试验牛血液中甲状腺激素浓度较低,在采食量恢复初期虽然浓度仍然较低,但随后能够慢慢增加直至与对照组水平相当,表明恢复阶段的补偿效应足以弥补限饲产生的生长迟缓现象。Deng等[37]认为采食量限饲后恢复引起的胰岛素、胰岛素样生长因子、瘦素分泌的提高,导致更多的营养物质被用于生长活动。Keady等[44]将荷斯坦杂交公牛分成限饲组和对照组,分别进行精料限饲和自由采食,结果发现精料限饲降低了ADG(0.63 kg/d vs. 1.55 kg/d),而恢复后增加了ADG(1.74 kg/d vs. 1.26 kg/d);精料限饲降低了血浆中胰岛素样生长因子、瘦素、胰岛素、葡萄糖和β-羟基丁酸酯的浓度,这些代谢物的浓度在补偿生长阶段恢复到正常水平。Keogh等[36]将荷斯坦杂交公牛分成采食量限饲组(ADG预设为0.6 kg/d)和自由采食组(ADG预设为1.5 kg/d),进行125 d限饲后恢复,结果显示:限饲期限饲组的ADG为0.6 kg/d,远低于对照组的1.9 kg/d,而恢复期限饲组和对照组的ADG分别为2.5和1.4 kg/d;血浆中所有代谢激素和代谢物的浓度均存在处理和阶段间的交互作用,采食量限饲组公牛血浆中胰岛素样生长因子、胰岛素、瘦素和甲状腺激素浓度均低于自由采食组,补偿生长阶段均恢复到正常浓度。上述研究结果表明,采食量限饲与恢复主要通过动员机体组织和改变基础代谢率来影响机体的生理活动;采食量的减少与葡萄糖和胰岛素浓度的降低同时发生,导致限饲组的脂肪生成明显减少,基础代谢消耗降低,在营养恢复后机体将更多的能量分配到蛋白质沉积而不是维持消耗,进而产生补偿生长效应。

3.3 组织器官中基因表达的差异

随着高通量转录组测序和蛋白质组学技术的发展和应用,研究人员通过对下丘脑、瘤胃上皮、瘤胃微生物、肝脏和骨骼肌等组织中功能基因差异表达的研究,系统地分析了肉牛各个组织器官响应补偿生长的作用机制。Matthew等[45]的研究发现,采食量限制会对下丘脑中功能基因的表达产生显著影响,这些差异基因主要参与免疫反应相关的功能通路并能够影响机体的能量稳态。瘤胃上皮的转录组测序结果表明,限制采食量后再恢复显著影响了参与细胞运输、蛋白质折叠以及免疫反应等过程的基因[46]。对牦牛限制采食量后再恢复营养显著增加了瘤胃内产丙酸相关的细菌以及淀粉降解菌,与氨基酸和淀粉代谢相关的微生物代谢途径在限饲与恢复阶段发生了显著变化,这些变化促进了牦牛对限饲后营养恢复的适应性[47]。Keogh等[48]研究发现,在限饲结束后,限饲组的肝脏比对照组的轻4 kg,肝脏组织的RNA序列分析结果表明限饲组与营养物质转运和细胞分裂与增殖相关的基因表达下调;但当补偿阶段结束后,2组肝脏的重量差异不显著,限饲组肝脏组织中有关细胞增殖和生长的基因表达量增加,说明在补偿期内控制细胞周期和细胞增殖的基因表达量的增加与肝脏重量的恢复有关。Ryan等[34]认为补偿阶段消化道重量的增加主要是消化道内容物的增加,同时消化道重量的增加被认为是补偿初期动物体重恢复的主要原因。Lehnert等[49]对营养不良后恢复正常营养水平的肉牛背最长肌进行了分析,发现在114 d的限饲期肌肉结构蛋白和肌肉代谢酶相关的基因表达显著降低,而在恢复营养84 d后则基本恢复到与对照组相同的表达水平。

4 补偿生长对肉牛体成分和蛋白质沉积的影响

Coleman等[50]认为接近体成熟的肉牛更多的将营养物质用于脂肪的沉积,而生长期肉牛主要将营养物质用于肌肉中蛋白质的沉积。Gill等[51]认为生长期肉牛体重的增加与蛋白质的沉积量接近,而脂肪的沉积与饲粮中能量的浓度相关。通过屠宰试验对体成分的研究结果显示,补偿生长阶段肉牛胴体中蛋白质的沉积量高于对照组,而脂肪的沉积量低于对照组[52]。在肉牛补偿生长阶段,消化吸收的营养物质首先用于肌肉组织中蛋白质的合成与沉积,其次才是脂肪[25]。以上的研究结果表明,生长期肉牛补偿生长产生的主要原因为蛋白质的补偿沉积。此外,Amaral等[53]的研究表明,肉牛的ADG会随着饲粮蛋白质水平的增加而线性增加。同时,增加饲粮中的可代谢蛋白质水平不仅能提高犊牛的生长性能,还能增强犊牛的免疫机能[54]。这些研究均表明饲粮中蛋白质的水平能够对牛的体蛋白质沉积产生显著影响。
Eenaeme等[55]认为营养恢复期的增重主要来源于蛋白质的沉积,他们将16头10月龄比利时蓝牛分为先进行4~14个月的营养限制后自由采食的限饲组(ADG预设为0.5 kg/d)和全程自由采食的对照组(ADG预设为1.3 kg/d),结果发现限饲组肉牛在营养恢复后的氮沉积量要显著高于同期的对照组(68 g/d vs. 50 g/d),同时氮沉积效率也显著提高(50.1% vs. 33.7%)。曾少玉等[56]将3周岁牦牛分别进行正常饲喂7 d、采食量限饲7 d以及恢复采食28 d,研究发现,限饲后恢复提高了恢复饲喂期血清中总蛋白浓度(65.79 ng/mL vs. 24.23 ng/mL),这表明在恢复饲喂期蛋白质沉积是机体产生补偿生长效应的重要原因。
肌肉占肉牛体重的40%~50%,是蛋白质合成和沉积的主要场所。研究发现,补偿生长组肉牛背最长肌中蛋白质的含量高于对照组(89% vs. 85.6%)[57]。此外,Keogh等[36]的研究发现,在恢复正常采食后,限饲组肉牛的背最长肌生长速度超过了对照组。由于骨骼肌肌纤维的数量在胚胎发育时期就已经决定,出生后骨骼肌的生长主要依靠肌肉特异性蛋白的沉积和肌卫星细胞的增殖[58]。Lehnert等[49]的结果表明,限制采食上调了肉牛肌肉组织中肌源性分化、间充质干细胞维持、肌肉蛋白质降解调节等代谢通路中关键基因的表达;而在补偿生长阶段,肌肉结构蛋白、肌肉代谢相关酶、胞外基质等相关基因的表达均显著上调,这表明骨骼肌中蛋白质的合成能力在补偿生长阶段得到提升。在补偿生长阶段,营养物质转运载体和核糖体相关功能基因表达的上调增加了蛋白质的合成和肌肉的生长[59]。Mullins等[17]利用蛋白质组学技术研究发现,在肉牛的补偿生长阶段,肌肉组织中与细胞紧密连接、氧化磷酸化、线粒体功能相关蛋白和核苷酸合成通路中关键蛋白的表达显著上调。根据以上的研究结果可知,肌肉组织中肌卫星细胞分化、蛋白质合成代谢、线粒体氧化磷酸化等代谢通路中功能基因的差异化表达可能是蛋白质沉积效率在肉牛补偿生长阶段提高的原因。

5 小结

肉牛作为重要的肉类生产家畜,其饲料利用效率和生产性能的提升直接影响着中国养牛业的可持续发展。本文系统总结了肉牛补偿生长的概念、影响因素、产生机制及其对肉牛体成分和蛋白质沉积的影响,表明肉牛机体主要通过降低基础代谢率、优化能量分配、增加肌肉蛋白质合成、调节内分泌激素水平等机制提高肉牛的生长速度和饲料转化效率,进而产生补偿生长效应。尽管肉牛的补偿生长已展现出良好的应用前景,但对其深层机制的了解仍不完全,尤其是在不同生长阶段和营养状态下的调控网络。未来研究应着力探究单一营养素限制和恢复对肉牛补偿生长的作用机制,并研究如何通过营养调控和管理优化进一步激发肉牛的补偿生长潜能,以提高生产系统的整体效率和经济效益。
[1]
RITCHIE H, ROSADO P, ROSER M. Meat and dairy production[EB/OL]. [2024-06-01]. https://ourworldindata.org/meat-production

[2]
SPIEGAL S, VENDRAMINI J M B, BITTMAN S, et al. Recycling nutrients in the beef supply chain through circular manuresheds:data to assess tradeoffs[J]. Journal of Environmental Quality, 2022, 51(4):494-509.

[3]
FIRKINS J L, YU Z. Riminant nutrition symposium:how to use data on the rumen microbiome to improve our understanding of ruminant nutrition[J]. Journal of Animal Science, 2015, 93(4):1450-1470.

[4]
CASHMAN K D, HAYES A. Red meat’s role in addressing ‘nutrients of public health concern’[J]. Meat Science, 2017, 132:196-203.

[5]
OECD. Meat consumption[EB/OL]. [2024-06-01]. https://www.oecd-ilibrary.org/agriculture-and-food/meat-consumption/indicator/english_fa290fd0-en

[6]
国家统计局. 中国统计年鉴[M]. 北京: 中国统计出版社, 2023.

National Bureau of Statistics. Statistical yearbook of China[M]. Beijing: China Statistical Press, 2023. (in Chinese)

[7]
CAPPER J L, BAUMAN D E. The role of productivity in improving the environmental sustainability of ruminant production systems[J]. Annual Review of Animal Biosciences, 2013, 1:469-489.

DOI PMID

[8]
GREENWOOD P L. Review:an overview of beef production from pasture and feedlot globally,as demand for beef and the need for sustainable practices increase[J]. Animal, 2021, 15(Suppl.1):100295.

[9]
李晓蒙. 日粮能量和蛋白质水平对荷斯坦奶公牛直线育肥性能及肉品质的影响[D].硕士学位论文. 保定: 河北农业大学, 2015.

LI X M. Effects of dietary energy and protein levels on linear fattening performance and beef quality of Holstein bulls[D].Master's Thesis. Baoding: Agricultural University of Hebei, 2015. (in Chinese)

[10]
GALYEAM M L, HATFIELD E E, STANTON T L. Review:restricted and programmed feeding of beef cattle-definitions,application,and research results[J]. The Professional Animal Scientist, 1999, 15(1):1-6.

[11]
FABIAN J, CHIBA L I, FROBISH L T, et al. Compensatory growth and nitrogen balance in grower-finisher pigs[J]. Journal of Animal Science, 2004, 82(9):2579-2587.

PMID

[12]
FITZSIMONS C, MCGEE M, KEOGH K, et al. Molecular physiology of feed efficiency in beef cattle[M]//SCANES C G,HILL R A.Biology of domestic animals. Boca Raton: CRC Press, 2017.

[13]
曹兵海, 陈幼春, 许尚忠, 等. 我国的肉牛育肥技术模式与牛肉市场层次[J]. 中国畜牧杂志, 2007, 43(17):55-59.

CAO B H, CHEN Y C, XU S Z, et al. Finishing technology pattern and the beef market-classes in China[J]. Chinese Journal of Animal Science, 2007, 43(17):55-59. (in Chinese)

[14]
WILSON P N, OSBOURN D F. Compensatory growth after undernutrition in mammals and birds[J]. Biological Reviews, 1960, 35(3):324-361.

[15]
ZHUANG J Y, ZHOU T, BAI S C, et al. Effects of restricted feeding on growth performance,intestinal immunity,and skeletal muscle development in New Zealand rabbits[J]. Animals:an Open Access Journal from MDPI, 2022, 12(2):160.

[16]
WU X Y, CHEN Y Y, LAI J S, et al. Effects of starvation and refeeding on growth performance,appetite,growth hormone-insulin-like growth factor axis levels and digestive function of Acipenser dabryanus[J]. British Journal of Nutrition, 2021, 126(5):695-707.

[17]
MULLINS Y, KEOGH K, KENNY D A, et al. Label-free quantitative proteomic analysis of M. longissimus dorsi from cattle during dietary restriction and subsequent compensatory growth[J]. Scientific Reports, 2020, 10(1):2613.

[18]
BOHMAN V R. Compensatory growth of beef cattle-the effect of hay maturity[J]. Journal of Animal Science, 1955, 14(1):249-255.

[19]
CONNOR E E, KAHL S, ELSASSER T H, et al. Enhanced mitochondrial complex gene function and reduced liver size may mediate improved feed efficiency of beef cattle during compensatory growth[J]. Functional and Integrative Genomics, 2010, 10(1):39-51.

[20]
BRANDSTETTER A M, PFAFFL M W, HOCQUETTE J F, et al. Effects of muscle type,castration,age,and compensatory growth rate on androgen receptor mRNA expression in bovine skeletal muscle[J]. Journal of Animal Science, 2000, 78(3):629-637.

[21]
O’SHEA E, WATERS S M, KEOGH K, et al. Examination of the molecular control of ruminal epithelial function in response to dietary restriction and subsequent compensatory growth in cattle[J]. Journal of Animal Science and Biotechnology, 2016, 7(1):53.

[22]
沈淳. 日粮可代谢氨基酸对肉牛氮沉积和氮利用效率的影响[D].硕士学位论文. 北京: 中国农业大学, 2023.

SHEN C. Effects of dietary metabolizable amino acids on retained nitrogen and nitrogen utilization efficiency in beef cattle[D].Master's Thesis. Beijing: China Agricultural University, 2023. (in Chinese)

[23]
程龙. 日粮能量限饲与恢复对生长期肉牛补偿生长及氮代谢的影响[D].硕士学位论文. 北京: 中国农业大学, 2024.

CHENG L. Effects of energy restriction and re-alimentation on nitrogen metabolism and compensatory growth in beef cattle[D].Master's Thesis. Beijing: China Agricultural University, 2024. (in Chinese)

[24]
LAWRENCE T L J, FOWLER V R, NOVAKOFSKI J E. Growth of farm animals[M].3rd ed. Switzerland: CABI, 2012.

[25]
HORNICK J L, VAN EENAEME C, GÉRARD O, et al. Mechanisms of reduced and compensatory growth[J]. Domestic Animal Endocrinology, 2000, 19(2):121-132.

DOI PMID

[26]
COLEMAN S W, EVANS B C. Effect of nutrition,age and size on compensatory growth in two breeds of steers[J]. Journal of Animal Science, 1986, 63(6):1968-1982.

[27]
MORGAN J H L. Effect of plane of nutrition in early life on subsequent live-weight gain,carcass and muscle charaterists and eating quality of meat in cattle[J]. The Journal of Agricultural Science, 1972, 78(3):417-423.

[28]
HORTON G M J, HOLMES W. Compensatory growth by beef cattle at grassland or on an alfalfa-based diet[J]. Journal of Animal Science, 1978, 46(1):297-303.

[29]
NETO S G, BEZERRA L R, MEDEIROS A N, et al. Feed restriction and compensatory growth in guzerá females[J]. Asian-Australasian Journal of Animal Sciences, 2011, 24(6):791-799.

[30]
TOLLA N, MIRKENA T, YIMEGNUHAL A. Effect of feed restriction on compensatory growth of Arsi (Bos indicus) bulls[J]. Animal Feed Science and Technology, 2003, 103(1/2/3/4):29-39.

[31]
KEOGH K, WATERS S M, KELLY A K, et al. Feed restriction and subsequent realimentation in Holstein friesian bulls:Ⅰ.Effect on animal performance;muscle,fat,and linear body measurements;and slaughter characteristics[J]. Journal of Animal Science, 2015, 93(7):3578-3589.

[32]
GRAHAM N, SEARLE T W. Studies of weaner sheep during and after a period of weight stasis.1.Energy and nitrogen utilization[J]. Australian Journal of Agricultural Research 1975, 26(2):343-353.

[33]
VEGA R S A, LEE H G, HIDARI H, et al. Changes in plasma hormones and metabolites during compensatory growth in Holstein steers[J]. Philippine Journal of Veterinary and Animal Sciences, 2009, 35(1):1-18.

[34]
RYAN W J, WILLIAMS I H, MOIR R J. Compensatory growth in sheep and cattle:growth pattern and feed intake[J]. Australian Journal of Agricultural Research, 1993, 44(7):1609-1621.

[35]
ECKLES C H, SWETT W W. Some factors influencing the rate of growth and the size of dairy heifers at maturity[M]. Missouri: Agricultural and Food Sciences, 1918.

[36]
KEOGH K, WATERS S M, KELLY A K, et al. Feed restriction and realimentation in Holstein-Friesian bulls:Ⅱ.Effect on blood pressure and systemic concentrations of metabolites and metabolic hormones[J]. Journal of Animal Science, 2015, 93(7):3590-3601.

[37]
DENG T Y, LIANG M, DU L L, et al. Transcriptome analysis of compensatory growth and meat quality alteration after varied restricted feeding conditions in beef cattle[J]. International Journal of Molecular Sciences, 2024, 25(5):2704.

[38]
YAMBAYAMBA E S K, PRICE M A, JONES S D M. Compensatory growth of carcass tissues and visceral organs in beef heifers[J]. Livestock Production Science, 1996, 46(1):19-32.

[39]
SHADNOUSH G R, ALIKHANIL M, RAHMANI H R, et al. Effects of restricted feeding and re-feeding in growing lambs:intake,growth and body organs development[J]. Journal of Animal and Veterinary Advances, 2011, 10(3):280-285.

[40]
BERG E P, MCFADIN E L, MADDOCK R R, et al. Serum concentrations of leptin in six genetic lines of swine and relationship with growth and carcass characteristics[J]. Journal of Animal Science, 2003, 81(1):167-171.

PMID

[41]
DUAN C M, REN H X, GAO S. Insulin-like growth factors (IGFs),IGF receptors,and IGF-binding proteins:roles in skeletal muscle growth and differentiation[J]. General and Comparative Endocrinology, 2010, 167(3):344-351.

[42]
JORRITSMA R, WENSING T, KRUIP T A M, et al. Metabolic changes in early lactation and impaired reproductive performance in dairy cows[J]. Veterinary Research, 2003, 34(1):11-26.

DOI PMID

[43]
FOX D G, JOHNSON R R, PRESTON R L, et al. Protein and energy utilization during compensatory growth in beef cattle[J]. Journal of Animal Science, 1972, 34(2):310-318.

[44]
KEADY S M, KEANE M G, WATERS S M, et al. Effect of dietary restriction and compensatory growth on performance,carcass characteristics,and metabolic hormone concentrations in Angus and Belgian blue steers[J]. Animal, 2021, 15(6):100215.

[45]
MATTHEWS D, DISKIN M G, KENNY D A, et al. Effect of short term diet restriction on gene expression in the bovine hypothalamus using next generation RNA sequencing technology[J]. BMC Genomics, 2017, 18(1):857.

DOI PMID

[46]
KEOGH K, WATERS S M, CORMICAN P, et al. Effect of dietary restriction and subsequent re-alimentation on the transcriptional profile of bovine ruminal epithelium[J]. PLoS One, 2017, 12(5):e0177852.

[47]
ZOU H W, HU R, WANG Z S, et al. Effects of nutritional deprivation and re-alimentation on the feed efficiency,blood biochemistry,and rumen microflora in yaks (Bos grunniens)[J]. Animals:an Open Access Journal from MDPI, 2019, 9(10):807.

[48]
KEOGH K, KENNY D A, CORMICAN P, et al. Effect of dietary restriction and subsequent re-alimentation on the transcriptional profile of hepatic tissue in cattle[J]. BMC Genomics, 2016, 17(1):244.

[49]
LEHNERT S A, BYRNE K A, REVERTER A, et al. Gene expression profiling of bovine skeletal muscle in response to and during recovery from chronic and severe undernutrition[J]. Journal of Animal Science, 2006, 84(12):3239-3250.

PMID

[50]
COLEMAN S W, EVANS B C, GUENTHER J J. Body and carcass composition of Angus and Charolais steers as affected by age and nutrition[J]. Journal of Animal Science, 1993, 71(1):86-95.

PMID

[51]
GILL D R, OWENS F N, KING M C, et al. Body composition grazing of feedlot steers differing in age and background[J]. Animal Science Research Report, 1993:185-190.

[52]
CARSTENS G E, JOHNSON D E, ELLENBERGER M A, et al. Physical and chemical components of the empty body during compensatory growth in beef steers[J]. Journal of Animal Science, 1991, 69(8):3251-3264.

PMID

[53]
AMARAL P M, MARIZ L D S, ZANETTI D, et al. Effect of dietary protein content on performance,feed efficiency and carcass traits of feedlot nellore and Angus×Nellore cross cattle at different growth stages[J]. The Journal of Agricultural Science, 2018, 156(1):110-117.

[54]
MORIEL P, ARTIOLI L F A, POORE M H, et al. Increasing the metabolizable protein supply enhanced growth performance and led to variable results on innate and humoral immune response of preconditioning beef steers[J]. Journal of Animal Science, 2015, 93(9):4473-4485.

DOI PMID

[55]
EENAEME C V, EVRARD M, HORNICK J L, et al. Nitrogen balance and myofibrillar protein turnover in double muscled Belgian blue bulls in relation to compensatory growth after different periods of restricted feeding[J]. Canadian Journal of Animal Science, 1998, 78(4):549-559.

[56]
曾少玉, 王之盛, 彭全辉, 等. 饥饿及恢复饲喂对牦牛生长性能、营养物质表观消化率和血清指标的影响[J]. 动物营养学报, 2018, 30(12):4991-5001.

ZENG S Y, WANG Z S, PENG Q H, et al. Effects of starvation and refeeding on growth performance, nutrient apparent digestibility and serum indices of yaks[J]. Chinese Journal of Animal Nutrition, 2018, 30(12):4991-5001. (in Chinese)

[57]
HILL S R, KNOWLTON K F, JAMES R E, et al. Nitrogen and phosphorus retention and excretion in late-gestation dairy heifers[J]. Journal of Dairy Science, 2007, 90(12):5634-5642.

PMID

[58]
THORNTON K J. Triennial growth symposium:the nutrition of muscle growth:impacts of nutrition on the proliferation and differentiation of satellite cells in livestock species[J]. Journal of Animal Science, 2019, 97(5):2258-2269.

[59]
KEOGH K, WATERS S M, CORMICAN P, et al. Effect of dietary restriction and subsequent re-alimentation on the transcriptional profile of bovine skeletal muscle[J]. PLoS One, 2017, 12(5):e0177852.

文章导航

/