综述

植物提取物调节动物免疫功能机制的研究进展

  • 韩桂婷 , 1 ,
  • 包丽娜 2 ,
  • 吴树妍 1 ,
  • 李倜宇 , 1, *
展开
  • 1 内蒙古民族大学动物科技学院,通辽 028000
  • 2 沈阳农业大学植物保护学院,沈阳 110000
*李倜宇,讲师,硕士生导师,E-mail:

韩桂婷(2000—),女,山西大同人,硕士,从事动物环境与营养研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-05-29

  网络出版日期: 2024-12-12

基金资助

内蒙古自治区直属高校基本科研业务费项目(GXKY23Z003)

内蒙古自然科学基金项目(2021BS03016)

内蒙古民族大学博士科研启动项目(BS610)

Research Progress on Mechanisms of Plant Extracts in Modulating Animal Immune Functions

  • HAN Guiting , 1 ,
  • BAO Lina 2 ,
  • WU Shuyan 1 ,
  • LI Tiyu , 1, *
Expand
  • 1 College of Animal Science, Inner Mongolia Minzu University, Tongliao 028000, China
  • 2 College of Plant Protection, Shenyang Agricultural University, Shenyang 110000, China
*lecturer, E-mail:

Received date: 2024-05-29

  Online published: 2024-12-12

摘要

植物提取物是一类具有独特官能团的生物活性物质,通常包括多糖、多酚、生物碱、皂苷和醇类等,在免疫调节、抗癌、抗氧化、抗肿瘤、抗炎和抑菌等方面发挥重要作用。现有的研究表明,植物提取物的免疫调节机制主要涉及Toll样受体(TLRs)、花生四烯酸(AA)和磷脂酰肌醇3激酶(PI3K)介导的信号通路。然而,由于植物提取物成分和化学结构的多样性,其对畜禽的生物学作用存在显著差异。此外,各信号通路之间的相互作用和联系尚不明确,导致植物提取物调节动物免疫功能的机制较为复杂。因此,本文系统性地探讨了植物提取物调节动物免疫功能的作用机制,并综述了各信号通路之间的相互联系,为植物提取物在改善动物免疫功能、缓解免疫应激及预防和治疗免疫相关疾病中的应用提供参考。

本文引用格式

韩桂婷 , 包丽娜 , 吴树妍 , 李倜宇 . 植物提取物调节动物免疫功能机制的研究进展[J]. 动物营养学报, 2024 , 36(12) : 7613 -7625 . DOI: 10.12418/CJAN2024.649

Abstract

Plant extracts are bioactive substances with unique functional groups, typically including polysaccharides, polyphenolic compounds, alkaloids, saponins and alcohols. They play significant roles in immune modulation, anti-cancer, antioxidant, anti-tumor, anti-inflammatory and antibacterial activities. Current research indicates that the immune modulation mechanisms of plant extracts primarily involve signaling pathways mediated by Toll-like receptors (TLRs), arachidonic acid (AA) and phosphoinositide 3-kinase (PI3K). However, due to the diversity in the components and chemical structures of plant extracts, their biological effects on livestock and poultry exhibit substantial differences. Additionally, the interactions and connections between these signaling pathways remain unclear, making the mechanisms of plant extract-mediated immune regulation complex. Therefore, this paper systematically explores the mechanisms by which plant extracts modulate animal immune functions and reviews the interrelationships among different signaling pathways, providing scientific evidence and theoretical support for the application of plant extracts in enhancing animal immune function, alleviating immune stress and preventing and treating immune-related diseases.

在现代集约化饲养管理条件下,有时因养殖环境变化、饲养技术不匹配等问题,畜禽极易进入免疫应激状态,表现为厌食、代谢异常、生长减缓及抗病力下降,最终导致经济效益降低[1]。免疫应激广义上指动物在环境或者亚健康的情况下容易感染各种病原微生物,机体的免疫系统被激活,产生非特异性适应反应;狭义上指动物在接种抗原后产生免疫应答所引起的全身性非特异性适应反应[2]。脂多糖(lipopolysaccharide,LPS)是细菌细胞壁中的主要成分,是一种非特异性免疫原,当其进入动物体内时,能够激活机体的免疫系统[3]。因此,在动物试验中常用LPS构建应激模型,用来诱发畜禽的免疫应激症状。
近年来,在畜禽饲粮中添加植物提取物以改善动物免疫功能或减缓免疫应激已成为一种重要措施。植物提取物是具有独特官能团的生物活性物质,通常包括多糖、多酚、生物碱、皂苷、醇类等,各类植物提取物由于成分及其化学结构有较大差异,因此对畜禽的生物学作用也不尽相同[4]。植物提取物不仅来源广泛,具有低残留、无污染、可再生等特点,而且对动物机体具有免疫调节、降血脂、降血糖、抗癌、抗氧化、抗肿瘤、抗炎、抑菌等生物学功能[5-8]。相关研究表明,植物提取物能够通过调控炎性因子的相关信号通路,改善动物免疫功能或减缓动物的免疫应激[9]。目前,研究较多的与免疫相关的信号通路主要包括Toll样受体(Toll-like receptors,TLRs)、花生四烯酸(arachidonic acid,AA)和磷脂酰肌醇3激酶(phosphoinositide 3-kinase,PI3K)介导的相关信号通路。本文通过深入探讨TLRs、AA和PI3K信号通路在动物免疫方面的作用及研究进展,进一步揭示植物提取物在免疫调节中的潜在应用价值和机制,以期为植物提取物在动物健康领域的研究与应用提供参考。

1 植物提取物对畜禽免疫功能的影响

植物提取物能促进畜禽肠道中有益菌群的增殖,并抑制有害菌群的增殖。肠道微生物群与多种疾病密切相关,直接影响免疫系统的发育和功能[10]。Cui等[11]研究表明,饲粮中添加苦荞黄酮能够显著提高仔猪肠道中拟杆菌门的相对丰度,饲粮中联合添加苦荞黄酮与植物乳杆菌能够显著提高仔猪肠道光岗菌属的相对丰度。Meligy等[12]研究发现,饲粮中添加脂质体包封牛至油、肉桂油和丁香油显著增加了肉鸡肠道有益菌的相对丰度及其代谢物(戊酸、丁酸、丙酸、乙酸、总短链脂肪酸)的含量,降低了致病性菌的相对丰度。胡贵丽等[13]研究指出,饲粮中添加茶籽多糖和博落回生物碱均能够提高黄羽肉鸡空肠绒毛高度与隐窝深度的比值,改善空肠形态结构,提高空肠中乳酸杆菌的数量。
同时,植物提取物也能够通过提高巨噬细胞的吞噬能力、促进淋巴细胞的增殖和活化以及增强自然杀伤细胞的活性进而调节畜禽的免疫功能。Fan等[14]研究表明,给罗曼白鸡接种脂质体-淫羊藿多糖疫苗佐剂,能够有效促进其T淋巴细胞增殖,提高灭活禽流感和新城疫疫苗抗体效价及干扰素-γ(interferon-γ,IFN-γ)和白细胞介素(interleukin,IL)-6的含量,并且降低雄性罗曼白鸡的发病率和死亡率。Lv等[15]研究表明,在肉鸡饲粮中添加染料木黄酮不仅能够促进其巨噬细胞活化和B淋巴细胞、自然杀伤细胞、辅助T细胞增殖以及CD4+T淋巴细胞分化,而且能够增加免疫球蛋白M(immunoglobulin M,IgM)、免疫球蛋白G(immunoglobulin G,IgG)的含量和抗体效价及抗氧化能力。此外,植物提取物还能够通过调节机体细胞因子及模式受体的表达,进而发挥免疫调节作用[16]
Khumalo等[17]选用8种药用植物提取物,研究其对LPS刺激和未刺激的小鼠RAW 264.7巨噬细胞中促炎性细胞因子释放的抑制作用,结果显示,上述植物提取物均能有效调节应激状态下免疫抑制或炎症反应,有助于维持或恢复动物的免疫稳态。Ciliberti等[18]研究表明,小球藻提取物可以作为绵羊饲料添加剂,调节绵羊体外免疫应答,通过抑制外周血单个核细胞增殖,调节细胞因子分泌,减轻绵羊的炎症反应,恢复产后或热应激后的免疫能力。Erinle等[19]研究发现,在肉鸡饲粮中添加红叶茱萸提取物能够改善LPS导致的回肠隐窝深度增加,提高绒毛高度与隐窝深度的比值,并改善盲肠微生物群稳态,进而缓解LPS引起的免疫应激。

2 TLRs介导的相关信号通路

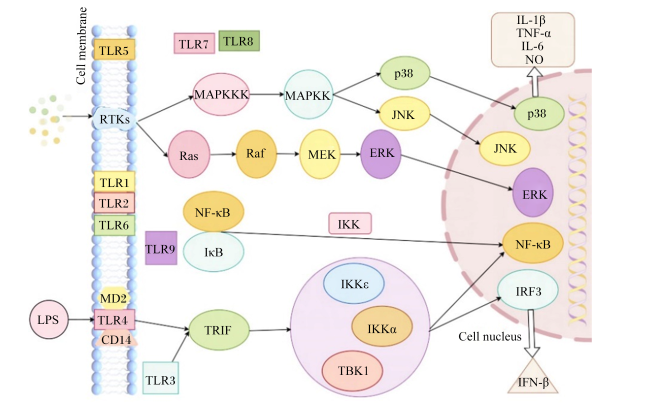
TLRs是一类位于宿主免疫细胞的膜受体,属于细胞内最大的模式识别受体(pattern recognition receptors,PRRs),可识别不同的病原体相关分子模式,同时也是微生物分子的先天免疫受体,在先天性免疫应答中扮演着不可或缺的角色[20]。当病原体入侵机体时,TLRs首先被激活,进而触发一系列的信号转导通路,引发炎症反应并增强免疫细胞活性,产生非特异或特异性免疫反应[21]。截至目前为止,已发现13个TLRs家族成员[22],TLR2与TLR1或TLR6结合形成异二聚体,能够识别微生物细胞壁上的脂蛋白[23];TLR3胞外域主要负责双链RNA的识别和突变[24];TLR4主要识别LPS,是缓解免疫应激的重要通路[25];TLR5可以特异性识别鞭毛蛋白[26];TLR7、TLR8和TLR9主要识别核酸,其中TLR7和TLR8识别单链RNA,TLR9识别细菌和病毒的DNA[27-28];TLR10可以与TLR2同二聚或异二聚来发挥其功能,具有抗炎特性[29];TLR11在人类机体中不表达,但在其他哺乳动物上,能够识别弓形虫和一些泌尿道感染的细菌,如尿路感染的致病因子[30];TLR12是一种内质体定位的受体,与UNC93B1蛋白相互作用,并且能与TLR11能够形成异二聚体复合物[31];TLR13在微生物感染的先天免疫反应中发挥作用[32]。TLRs激活后可通过多种下游信号通路传导信号,其中包括丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)、核因子-κB(nuclear factor-κB,NF-κB)和含有TIR结构域的衔接子诱导干扰素-β(TIR-domain-containing adapter-inducing interferon-β,TRIF)等信号通路(图1),上述通路在炎症反应和免疫调节中起着关键作用。以下将对各通路的具体机制和植物提取物的免疫调控作用进行详细探讨。
图1 TLR介导的相关信号通路图

TLR:Toll样受体 Toll-like receptor;MAPKKK:丝裂原活化蛋白激酶激酶激酶 mitogen-activated protein kinase kinase kinase;MAPKK:丝裂原活化蛋白激酶激酶 mitogen-activated protein kinase kinase;p38:p38丝裂原激活蛋白激酶 p38 mitogen-activated protein kinases;JNK:c-Jun氨基末端激酶 c-Jun N-terminal kinases;RTKs:受体酪氨酸激酶 receptor tyrosine kinase;Ras:Ras蛋白 Ras proteins;Raf:丝氨酸/苏氨酸蛋白激酶 Raf kinase;ERK:细胞外信号调节激酶 extracellular signal-regulated kinases;NF-κB:核因子-κB nuclear factor-κB;IκB:核因子-κB抑制蛋白 inhibitors of NF-κB;IKK:核因子-κB抑制蛋白激酶 IκB kinase;LPS:脂多糖 lipopolysaccharide;MD2:髓样分化蛋白2 myeloid differentiation protein 2;CD14:分化簇14 cluster of differentiation 14;IRF3:干扰素调节因子3 interferon regulatory factor 3;IL-1β:白细胞介素-1β interleukin-1β;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-6:白细胞介素-6 interleukin-6;NO:一氧化氮 nitric oxide;IFN-β:干扰素-β interferon-β;TBK1:TANK结合激酶1 TANK-binding kinase 1;TRIF:含有TIR结构域的衔接子诱导干扰素-β TIR-domain-containing adapter-inducing interferon-β;Cell membrane:细胞膜;Cell nucleus:细胞核。

Fig.1 Diagram of TLR mediated signaling pathways[33]

2.1 MAPK信号通路

MAPK信号通路广泛存在于真核细胞中,由细胞外信号调节激酶(extracellular signal-regulated kinases,ERK)、c-Jun氨基末端激酶(c-Jun N-terminal kinases,JNK)和p38丝裂原激活蛋白激酶(p38 mitogen-activated protein kinases,p38 MAPK)3个成员组成,参与调节细胞的生长、分化、凋亡和应激应答,并且是典型的三级激酶级联传递,是由一系列蛋白激酶磷酸化的级联反应[33]。一方面,当细胞受到外界刺激时,刺激因子与受体酪氨酸激酶(receptor tyrosine kinase,RTKs)在细胞膜上结合,Ras蛋白(Ras proteins,Ras)作为上游蛋白诱导并激活丝氨酸/苏氨酸蛋白激酶(Raf kinase,Raf),Raf磷酸化丝裂原活化蛋白激酶激酶(mitogen-activated protein kinase kinase,MEK/MAPKK),继而激活ERK,调节转录因子、细胞周期蛋白等的释放[34]。另一方面,当刺激因子与RTKs在细胞膜上结合时,依次磷酸化激活丝裂原活化蛋白激酶激酶激酶(mitogen-activated protein kinase kinase kinase,MAPKKK)、MAPKK,进而激活p38 MAPK和JNK,调控炎症因子和趋化因子的分泌[35]。Kang等[36]研究指出,p38 MAPK在LPS诱导的巨噬细胞信号传导中发挥重要作用。Yang等[37]研究表明,当机体发生炎症时,通过激活p38 MAPK促进巨噬细胞分泌多种炎性因子,如肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、IL-1β、IL-12、IL-8、IL-6等。
已有大量证据表明,植物提取物能够通过MAPK途径激活巨噬细胞分泌细胞因子,进而调节动物机体的免疫力。Zhao等[38]研究表明,前胡多糖通过影响TLR2/TLR4基因的表达,进而激活MAPK分子通路,不仅增强巨噬细胞吞噬活性,而且促进一氧化氮(nitric oxide,NO)、IL-1β、TNF-α等炎症因子的分泌,调节小鼠机体的免疫反应。另有研究发现,分别用白芨多糖和五味子提取物也得到类似的结果[39-40]。何燕飞[41]研究表明,番红花花瓣多糖A和B均可通过ERK、p38 MAPK、JNK通路激活RAW264.7细胞,促使RAW264.7细胞释放多种炎性因子和趋化因子;同时,用p38 MAPK和ERK抑制剂能够抑制番红花花瓣多糖A诱导的RAW264.7细胞IL-12和IL-10的分泌,而用JNK和ERK抑制剂能够抑制番红花花瓣多糖B诱导的IL-12和IL-10的分泌。另有研究表明,白术多糖能够降低LPS诱导的TLR4、p38 MAPK基因的表达,进而减少IL-1βIL-6和TNF-α的基因表达和分泌,保护雏鹅法氏囊免受损伤,维持其组织结构完整性,并提高免疫应答能力[42]
此外,植物提取物也能够通过激活MAPK途径促进巨噬细胞发生极化以适应不同的生理和病理状态。Li等[43]研究发现,灵芝多糖能够增加M1表型标志物CD86、NO和包括IL-12aIL-23aIL-27和TNF-α在内的促炎细胞因子的表达,通过减少CD206、精氨酸酶-1(arginase-1,Arg-1)以及包括IL-6和IL-10在内的炎症相关细胞因子的表达来抑制巨噬细胞向M2表型极化;机制上,灵芝多糖增加了MAPKK和ERK的磷酸化,试验结果揭示了灵芝多糖可以通过激活MAPK/NF-κB信号通路来调节M1极化。类似地,Yin等[44]研究发现,白头翁皂苷A3通过MAPK信号通路诱导M1巨噬细胞极化以抑制乳腺肿瘤发生。
综上所述,植物提取物通过调节MAPK信号通路中关键基因或蛋白的表达,促进巨噬细胞的活化或极化,从而影响炎性因子和趋化因子的分泌,发挥重要的免疫调节作用。然而,MAPK信号通路的调控机制十分复杂,不同家族的受体或调控因子在细胞信号传导中的相互作用,如TLRs与RTKs之间的关系仍未完全阐明。此外,当前的研究主要集中在特定植物提取物单一作用的研究上,对于不同剂量、不同给药途径下其效果的影响,以及在复杂的免疫环境中的具体调节机制,还需进行更深入的研究探讨。

2.2 NF-κB信号通路

NF-κB是一个转录因子家族,该家族由5个结构相关的成员组成,包括NF-κB1(p50)、NF-κB2(p52)、RelA(p65)、RelB和c-Rel[45]。NF-κB能够调控多种免疫相关基因的转录,包括免疫反应、细胞增殖、细胞凋亡和炎症相关基因。同时,NF-κB信号通路受到多种调控机制影响,包括核因子-κB抑制蛋白(inhibitors of NF-κB,IκB)的结合、泛素化降解途径以及其他共激活子和共抑制子的参与[46]。NF-κB信号通路可以被多个TLRs激活,其中包括TLR2、TLR3、TLR4、TLR5、TLR7/8和TLR9[47-51]。在非应激状态下,NF-κB与IκB在细胞质中结合在一起,形成NF-κB/IκB复合物。当机体受到应激时,核因子-κB抑制蛋白激酶(IκB kinase,IKK)被激活,IκB被泛素化并降解,导致NF-κB被释放并转移到细胞核中。在细胞核内,游离的NF-κB二聚体(p50/p65)结合到特定的DNA序列上,调控相关基因(如TNF-αIL-1β、细胞凋亡相关因子、免疫调节因子等)的转录过程[52]。此外,有研究发现,MAPK活化可能作用于NF-κB信号通路的上游[53]
研究显示,植物提取物能够借助TLRs介导的NF-κB信号通路来实现免疫调节。Wei等[54]和Dong等[55]研究发现,黄芪多糖通过抑制NF-κB信号通路,能够降低炎症细胞因子TNF-αIL-6、IL-1β的表达,从而发挥其抗炎效果。Chen等[56]研究表明,猕猴桃根茎多糖能够上调RAW264.7细胞中M1和M2特异性细胞因子和趋化因子的基因表达水平,而NF-κB抑制剂能够明显降低其诱导的RAW264.7细胞中IL-1β表达的上调,抑制RAW264.7细胞的过度活化。类似地,用当归和冬虫夏草提取物的研究均表明,TLRs介导的NF-κB信号通路能够发挥抗炎作用[57-58]。Xing等[59]在肉鸡饲粮中添加油蒿多糖,表明油蒿多糖可以通过降低TLR4、骨髓细胞分化原初反应蛋白88(myeloid differentiation primary response protein 88,MyD88)、NF-κB p65、IL-1βIL-6的基因和蛋白表达,减少由LPS诱导的肝脏中IL-1β和IL-6的过量产生,揭示了油蒿多糖可以通过调控NF-κB通路来缓解LPS诱导的应激。基于此,植物提取物不仅能直接作用于NF-κB信号通路,调节动物机体的免疫功能,还能通过影响NF-κB信号通路调控巨噬细胞的极化,抑制免疫细胞的过度活化,减少炎症因子的过度产生,从而维护机体的免疫平衡。此外,根据现有研究,NF-κB信号通路与其他信号通路之间存在复杂的相互作用和反馈调节机制。为了准确揭示植物提取物通过NF-κB信号通路调节免疫功能的具体机制,并探索这些调控机制之间的相互关系,需要开展更加深入的研究,全面理解植物提取物在免疫调节中的作用。

2.3 TRIF信号通路

TRIF信号通路是通过TLR3和TLR4的激活而诱导的免疫应答途径[60]。Zhu等[61]研究发现,木果多糖能够与RAW264.7细胞膜表面的TLR4结合,从而增强TLR4、TRIF和干扰素调节因子3(interferon regulatory factor 3,IRF3)的表达,促进TRIF信号通路的激活,而加入TLR4抑制剂后,TLR4/TRIF信号通路下游因子干扰素-β(interferon-β,IFN-β)含量减少,表明木果多糖能够通过TRIF信号通路发挥免疫调节作用。Fang等[62]在大鼠脑缺血耐受方面的研究发现,毛冬青根部提取物能够降低TNF-α、IL-6、单核细胞趋化蛋白-1(monocyte chemoattractant protein-1,MCP-1)和巨噬细胞炎症蛋白-1α(macrophage inflammatory protein-1α,MIP-1α)等炎性细胞因子的含量,并且能够提高IL-10和转化生长因子-β(transforming growth factor-β,TGF-β)等抗炎细胞因子的含量;同时,毛冬青根部提取物也能够抑制MyD88的基因表达以及NF-κB p65的蛋白表达,并且增强TRIF的基因和蛋白的表达,揭示了毛冬青根部提取物能够通过抑制MyD88下游蛋白或细胞因子的产生并激活TRIF依赖性抗炎途径来增强脑缺血耐受。
有证据表明,TRIF信号通路可以作为NF-κB信号通路的上游,调节细胞因子的表达。当细胞受到刺激时,会激活TLR3和TLR4信号通路,然后TRIF与TLR3或TLR4的胞浆结构域相结合,形成TLR3/TLR4-TRIF复合物,激活下游信号分子,包括IKKε、IKKα和TANK结合激酶1(TANK-binding kinase 1,TBK1),进一步激活转录因子IRF3和NF-κB,诱导IFN-β和炎症因子的产生,从而影响免疫调节反应[63]。Zhang等[64]用低硒饲粮饲喂肉鸡后发现,TLR4在调节硒缺乏时鸡脾脏中炎症性细胞因子的表达中起重要作用,硒缺乏可能通过TLR4/TRIF/NF-κB信号通路导致鸡脾脏的炎症损伤。需要指出的是,TRIF是一种适配器蛋白,与其他TLRs信号通路中常见的MyD88适配器蛋白不同,TRIF信号通路主要参与产生IFN-β,进而使机体抵御病毒的侵害[65]。Xu等[66]研究发现,TRIF能够抑制Marc-145细胞的猪繁殖与呼吸综合征病毒感染。总体而言,植物提取物通过激活TRIF信号通路影响免疫和抗炎细胞因子的合成与表达,有助于减轻免疫器官的炎症损伤,增强宿主对病毒侵害的防御能力。目前,有关植物提取物通过TRIF信号通路发挥免疫调节作用的相关研究较少,未来的研究应进一步探索植物提取物在TRIF信号通路中的具体作用和机制。

3 AA介导的信号通路

AA是一种在细胞生理过程中发挥重要功能的长链多不饱和脂肪酸,主要来源于哺乳动物代谢中的亚油酸和亚麻酸,其介导的信号通路在机体炎症反应和免疫调节中起着重要作用[67]。AA主要通过环氧合酶(cyclooxygenase,COX)和脂氧合酶(lipoxygenase,LOX)转化为多种代谢物,进而触发不同的炎症反应[68]

3.1 COX-2信号通路

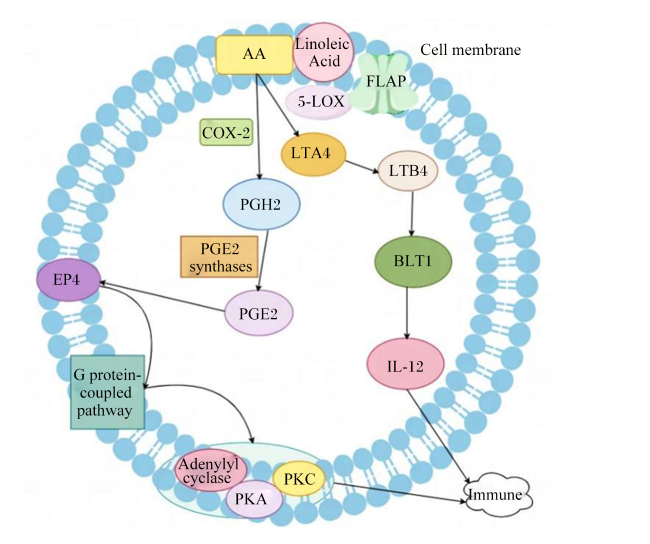
COX家族包括COX-1和COX-2,这2种酶在炎症期间均可加速前列腺素(prostaglandin,PG)的生物合成。COX-2是COX家族中的一种同工酶,在体内炎症过程中起着关键作用,属于可诱导型酶。由于COX-2在炎症反应中的关键作用,它已成为抗炎药物的重要治疗靶点[69]。前列腺素E2(PGE2)属于前列腺素家族的一员,是一种重要的生物活性物质,PGE2通过结合到特定的胞膜上受体来发挥作用,如前列腺素E2受体1(PGE2 receptor,EP)1、EP2、EP3和EP4。PGE2在免疫反应、炎症、疼痛感知、血管张力等方面具有重要调控作用[70]。EP4是PGE2的主要受体,属于G蛋白偶联受体家族,是一种七跨膜蛋白。EP4在激活后能够介导细胞内的多种信号传导途径,该受体在机体内分布广泛,功能复杂多样,尤其在炎症和免疫调节中发挥重要作用[71]。在COX-2的作用下,AA被转化为前列腺素H2(PGH2),随后PGH2在PGE2合成酶的作用下转化为PGE2。PGE2通过结合其主要受体EP4,激活G蛋白偶联的信号传导途径,进而导致细胞内二级信使如腺苷酸环化酶(adenylyl cyclase)、蛋白激酶A(protein kinase A,PKA)和蛋白激酶C(protein kinase C,PKC)的产生,从而引发一系列细胞反应[72]。Liu等[73]研究发现,当机体在免疫应激时,LPS诱导COX-2上调,增加PGE2的合成并与EP4结合,激活一系列信号传导途径,导致促炎细胞因子的分泌和下丘脑功能的改变,最终引发肉鸡的生长抑制;通过使用COX-2抑制剂,抑制COX-2的活性可以逆转这种肉鸡的生长抑制效应。
研究发现,一些植物提取物能够通过调节COX-2的表达和活性来发挥抗炎和免疫调节作用。Pang等[74]研究表明,琥珀叶提取物能够通过上调促炎细胞因子含量和COX-2的表达来促进巨噬细胞的免疫反应,进而增强机体先天免疫系统抵抗感染的能力;同时,琥珀叶提取物还能通过减少诱导型一氧化氮合酶(inducible nitric oxide synthase,iNOS)的表达和增加IL-10的含量来调节炎症的程度。Kim等[75]研究发现,油蒿通过抑制COX-2的表达减少PGE2的产生和积累,展现出强效的抗炎作用。Drif等[76]研究发现,洋甘菊次生代谢物通过抑制COX-2的表达发挥了显著的抗肿瘤效应,揭示了其作为癌症预防或治疗剂的潜力。

3.2 5-LOX信号通路

LOX信号通路是一种重要的脂质代谢途径,通过催化反应将AA转化为白三烯(leukotriene,LT),在免疫调节、炎症反应、细胞迁移和肿瘤发展等方面发挥着重要作用。研究发现,在LOX途径中至少有4种酶(5-LOX、8-LOX、12-LOX和15-LOX)参与AA的代谢,其中5-LOX与5-脂氧合酶激活蛋白(5-lipoxygenase-activating protein,FLAP)相互作用形成LTA4[77]。FLAP是将AA转化为LTA4所必需的,因为它是一种具有3个跨膜结构域的跨膜蛋白,LTA4是一种不稳定的中间LT,可以通过特定的下游酶转化为LTB4或半胱氨酸LT(LTC4、LTD4和LTE4)[78]。5-LOX信号通路通过FLAP将AA和亚油酸引导到细胞膜上,与5-LOX结合,形成LTA4。LTA4随后在特定酶的作用下转化为LTB4,LTB4通过与LTB4 1型受体(LTB4 receptor type 1,BLT1)结合,促进IL-12的释放,从而调节炎症反应和免疫应答等生理过程[79-80]
Cao等[81]研究发现,黄酮类化合物通过抑制5-LOX基因和蛋白的表达,并降低AA含量及LOX途径相关的代谢物含量来改善良性前列腺增生炎症。Li等[82]研究发现,LTB4抑制剂(U75302)以及黄芩苷、栀子苷及其复合物均能够减少TNF-α、IL-1β和NF-κB的释放,并在微胶质细胞中抑制了由氧糖剥夺再氧化诱导的NF-κB p65从细胞质向细胞核的转位。此外,黄芩苷、栀子苷及其复合物还能够降低5-LOX信号通路相关蛋白的表达,黄芩苷、栀子苷及其复合物能够通过调节5-LOX/LTB4信号通路减轻炎症反应,并抑制由氧糖剥夺再氧化诱导的BV2微胶质细胞极化。Tang等[83]研究表明,共轭亚油酸(conjugated linoleic acids,CLA)的治疗能够显著改善小鼠特异性皮炎的临床症状,有效抑制小鼠皮肤中的表皮增生以及肥大细胞和CD4+ T细胞的浸润;此外,CLA还能降低小鼠背侧皮肤的IgE水平以及Th1/Th2细胞因子和脂质介质的表达水平;进一步研究发现,CLA能够减少COX-2、5-LOXTLR4、MyD88、NF-κBTNF-α的表达。上述结果表明,CLA通过调节COX-2/5-LOX和TLR4/MyD88/NF-κB信号通路,发挥了显著的抗炎作用。CLA可作为一种具有潜在应用价值的抗炎饮食补充剂或药物,用于预防和控制小鼠特异性皮炎。综上所述,植物提取物通过干预COX-2和5-LOX信号通路(图2),调控通路中的关键基因或蛋白的表达,调节炎症介质的合成与释放,从而发挥广泛的抗炎和免疫调节作用。上述论点为植物提取物作为潜在的饲料添加剂或抗炎治疗药物提供了理论支持。
图2 AA介导的相关信号通路图

AA:花生四烯酸 arachidonic acid;COX-2:环氧合酶-2 cyclooxygenase-2;EP4:前列腺素E2受体4 PGE2 receptor 4;PGH2:前列腺素H2 prostaglandin H2;PGE2 synthases:PGE2合成酶;PGE2:前列腺素E2 prostaglandin E2;G protein-coupled pathway:G蛋白偶联;adenylyl cyclase:腺苷酸环化酶;PKA:蛋白激酶A protein kinase A;PKC:蛋白激酶C protein kinase C;5-LOX:脂氧合酶5 lipoxygenase 5;Linoleic Acid:亚油酸;FLAP:5-脂氧合酶激活蛋白 5-lipoxygenase-activating protein;LTB4:白三烯B4 leukotriene B4;BLT1:LTB4 1型受体 LTB4 receptor type 1;IL-12:白细胞介素-12 interleukin-12;Linoleic acid:亚油酸;Cell membrane:细胞膜;Immune:免疫。

Fig.2 Diagram of AA mediated signaling pathways[72,79]

4 PI3K介导的信号通路

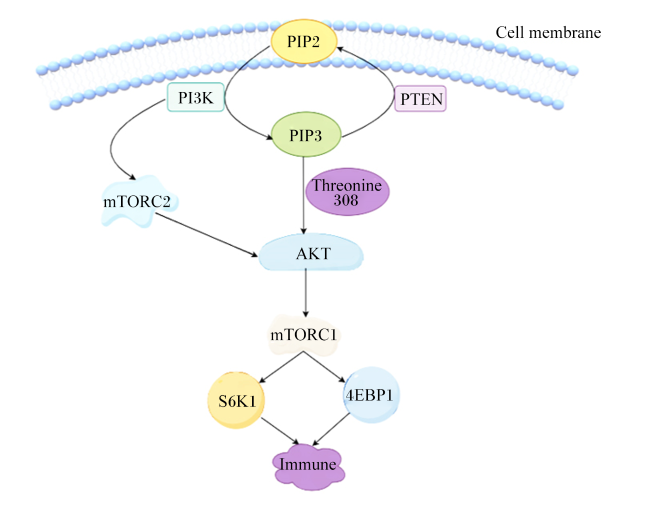
PI3K及其下游介质蛋白激酶B(protein kinase B,AKT)和哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)靶点构成PI3K/AKT/mTOR信号级联。PI3K是一个脂质激酶家族,根据序列同源性和底物特异性分为3类(Ⅰ、Ⅱ、Ⅲ),广泛存在于多种细胞类型中,参与调控细胞的多种生理过程,包括细胞增殖、生长、存活、代谢和运动,被广泛认为是细胞信号传导途径中的关键分子[84]。AKT既是一种重要的细胞信号传导蛋白,也是一种丝氨酸/苏氨酸激酶,该家族由3种亚型组成,即AKT1、AKT2和AKT3,在其磷酸化后能够调节多个下游靶蛋白,从而影响细胞的生长、存活、增殖和代谢等功能[85]。mTOR是一种重要的细胞信号传导蛋白,属于丝氨酸/苏氨酸激酶家族,主要通过mTORC1和mTORC2这2种复合物发挥作用。mTOR对外部刺激做出反应并调节不同的下游靶标,对于调节细胞生长、代谢及免疫至关重要[86]。具体机制如下:PI3K将磷脂酰肌醇二磷酸(phosphatidylinositol bisphosphate,PIP2)催化为磷脂酰肌醇三磷酸(phosphatidylinositol trisphosphate,PIP3),启动下游信号传导,在苏氨酸308(threonine 308)的作用下磷酸化AKT,同时PI3K也能直接激活mTORC2,进而直接激活AKT;激活的AKT能够调节下游靶蛋白mTORC1,mTORC1通过磷酸化底物蛋白核糖体蛋白S6激酶1(ribosomal protein S6 kinase 1,S6K1)和抑制性真核翻译起始因子4E结合蛋白(inhibitory eIF4E-binding protein,4EBP1)调控核糖体功能和翻译起始来促进蛋白质合成,进而调节细胞的生长和免疫[87-89](图3)。
图3 PI3K介导的相关信号通路图

PIP2:磷脂酰肌醇二磷酸 phosphatidylinositol bisphosphate;PIP3:磷脂酰肌醇三磷酸 phosphatidylinositol trisphosphate;PI3K:磷酸肌醇3-激酶 phosphoinositide 3-kinase;PTEN:磷酸酶和张力蛋白同系物 phosphatase and tensin homolog;mTORC1:哺乳动物雷帕霉素靶蛋白C1 mammalian target of rapamycin C1;mTORC2:哺乳动物雷帕霉素靶蛋白C2 mammalian target of rapamycin C2;threonine 308:苏氨酸308;AKT:蛋白激酶B protein kinase B;S6K1:底物蛋白核糖体蛋白S6激酶1 ribosomal protein S6 kinase 1;4EBP1:抑制性 eIF4E 结合蛋白 inhibitory eIF4E-binding protein;Cell membrane:细胞膜。

Fig.3 Diagram of PI3K mediated signaling pathways[87]

Borges等[90]研究发现,姜黄素以剂量依赖和选择性的方式减少了头颈癌细胞的活力,并能够通过改变关键基因和蛋白质的表达下调PI3K-AKT-mTOR信号通路,从而抑制头颈癌细胞的生长。Xie等[91]研究发现,枸杞多糖能够抑制TLR4的激活,进而抑制PI3K/AKT/mTOR信号通路,增强肾脏组织细胞自噬,减少肾脏组织凋亡,延缓铅所致肾脏损伤。Ren等[92]研究发现,蒲公英多糖对肝细胞癌中磷酸化PI3K、AKT和mTOR的水平有负调节作用,表明了蒲公英多糖通过抑制PI3K-AKT-mTOR信号通路来增强免疫反应。Li等[93]研究发现,槲皮素在体内外均能下调M1型标记物(CD86、iNOSTNF-αIL-1βIL-6)的表达,并上调M2型标记物(CD206、Arg-1、IL-10和TGF-β)的表达;此外,槲皮素能够提高PI3K和AKT的磷酸化水平,降低IκBα和NF-κB的磷酸化水平。然而,在离体由氧糖剥夺再氧化模型中,PI3K抑制剂(LY294002)逆转了槲皮素对初级微胶质细胞M2极化及PI3K/AKT/NF-κB信号通路关键蛋白表达的影响;结果表明,槲皮素通过调节PI3K/AKT/NF-κB信号通路,促进微胶质细胞和巨噬细胞的M2极化,为其在大鼠缺血/再灌注损伤治疗中的作用机制提供了新的见解。总的来说,植物提取物能够通过调节PI3K-AKT-mTOR信号传导途径中的关键基因和蛋白表达,影响微胶质细胞和巨噬细胞的极化状态,从而发挥抗肿瘤和免疫调节功能。

5 小结与展望

植物提取物通过促进肠道有益菌群增殖、增强肠道屏障功能、激活免疫细胞、调节细胞因子表达等多种途径,调节动物的免疫功能或缓解其免疫应激状态。当前研究表明,植物提取物主要通过TLRs、AA和PI3K介导的信号通路调控免疫功能。然而,明确植物提取物调控机体免疫功能的分子机制是一项复杂而关键的任务,各信号通路之间的具体相互作用仍需进一步阐明。因此,未来的研究需要进行更加系统和全面的探索,以深入揭示植物提取物对机体免疫功能的分子调控机制,并结合实际生产实践,为植物提取物作为绿色饲料添加剂替代抗生素提供更多可行的方案。
[1]
NIU X T, DING Y X, CHEN S W, et al. Effect of immune stress on growth performance and immune functions of livestock:mechanisms and prevention[J]. Animals, 2022, 12(7):909.

[2]
张彩云. 白藜芦醇对雏鸡免疫应激的调控及其机制研究[D].博士学位论文. 郑州: 河南农业大学, 2014.

ZHANG C Y. Study on regulation and mechanism of resveratrol on immunological stress in chickens[D].Ph.D.Thesis. Zhengzhou: Henan Agricultural University, 2014. (in Chinese)

[3]
李荣芳, 李晓文, 王吉, 等. 细菌脂多糖及其免疫应激研究进展[J]. 中兽医医药杂志, 2015, 34(4):19-22.

LI R F, LI X W, WANG J, et al. Advance in lipopolysaccharide and immunological stress[J]. Journal of Traditional Chinese Veterinary Medicine, 2015, 34(4):19-22. (in Chinese)

[4]
WINDISCH W, SCHEDLE K, PLITZNER C, et al. Use of phytogenic products as feed additives for swine and poultry[J]. Journal of Animal Science, 2008, 86(Suppl.14):E140-E148.

[5]
LUO D L, YANG N X, LIU Z H, et al. Effects of Astragalus polysaccharide on intestinal inflammatory damage in goslings infected with gosling plague[J]. British Poultry Science, 2020, 62(3):353-360.

[6]
AHMAD M M, CHATHA S A S, IQBAL Y, et al. Recent trends in extraction,purification,and antioxidant activity evaluation of plant leaf-extract polysaccharides[J]. Biofuels,Bioproducts and Biorefining, 2022, 16(6):1820-1848.

[7]
LONG L N, ZHANG H H, WANG F, et al. Research note:effects of polysaccharide-enriched Acanthopanax senticosus extract on growth performance,immune function,antioxidation,and ileal microbial populations in broiler chickens[J]. Poultry Science, 2021, 100(4):101028.

[8]
YARLEY O P N, KOJO A B, ZHOU C S, et al. Reviews on mechanisms of in vitro antioxidant,antibacterial and anticancer activities of water-soluble plant polysaccharides[J]. International Journal of Biological Macromolecules, 2021, 183:2262-2271.

[9]
PIAO M Y, TU Y, ZHANG N F, et al. Advances in the application of phytogenic extracts as antioxidants and their potential mechanisms in ruminants[J]. Antioxidants, 2023, 12(4):879.

[10]
MARIÑO E. The gut microbiota and immune-regulation:the fate of health and disease[J]. Clinical & Translational Immunology, 2016, 5(11):e107.

[11]
CUI K, WANG Q, WANG S Q, et al. The facilitating effect of Tartary buckwheat flavonoids and Lactobacillus plantarum on the growth performance,nutrient digestibility,antioxidant capacity,and fecal microbiota of weaned piglets[J]. Animals, 2019, 9(11):986.

[12]
MELIGY A M A, EL-HAMID M I A, YONIS A E, et al. Liposomal encapsulated oregano,cinnamon,and clove oils enhanced the performance,bacterial metabolites antioxidant potential,and intestinal microbiota of broiler chickens[J]. Poultry Science, 2023, 102(6):102683.

[13]
胡贵丽, 刘靖, 田莎, 等. 茶籽多糖和博落回生物碱对黄羽肉鸡肠道菌群的影响及博落回血根碱的抑菌活性[J]. 动物营养学报, 2018, 30(11):4619-4625.

HU G L, LIU J, TIAN S, et al. Effects of tea seed polysaccharide and macleaya cordata alkaloids on intestinal flora of yellow-feathered broilers and antimicrobial activity of Macleaya cordata sanguinarine[J]. Chinese Journal of Animal Nutrition, 2018, 30(11):4619-4625. (in Chinese)

[14]
FAN Y P, WANG D Y, LIU J G, et al. Adjuvanticity of epimedium polysaccharide-propolis flavone on inactivated vaccines against AI and ND virus[J]. International Journal of Biological Macromolecules, 2012, 51(5):1028-1032.

DOI PMID

[15]
LV Z P, FAN H, ZHANG B B, et al. Dietary genistein supplementation for breeders and their offspring improves the growth performance and immune function of broilers[J]. Scientific Reports, 2018, 8(1):5161.

DOI PMID

[16]
LIANG Y, LIU C H, YAN S X, et al. A novel polysaccharide from plant fermentation extracts and its immunomodulatory activity in macrophage RAW264.7 cells[J]. Food and Agricultural Immunology, 2021, 32(1):54-77.

[17]
KHUMALO G P, LOA-KUM-CHEUNG W, VAN WYK B E, et al. Leaf extracts of eight selected southern African medicinal plants modulate pro-inflammatory cytokine secretion in LPS-stimulated RAW 264.7 macrophages[J]. Inflammopharmacology, 2024, 32(2):1607-1620.

DOI PMID

[18]
CILIBERTI M G, ALBENZIO M, FRANCAVILLA M, et al. Extracts from microalga Chlorella sorokiniana exert an anti-proliferative effect and modulate cytokines in sheep peripheral blood mononuclear cells[J]. Animals, 2019, 9(2):45.

[19]
ERINLE T J, MACISAAC J, YANG C B, et al. Effect of red osier dogwood extract on growth performance,blood biochemical parameters,and gut functionality of broiler chickens challenged or unchallenged intraperitoneally with Salmonella enteritidis lipopolysaccharide[J]. Poultry Science, 2022, 101(7):101861.

[20]
SU L J, WANG Y, WANG J M, et al. Structural basis of TLR2/TLR1 activation by the synthetic agonist diprovocim[J]. Journal of Medicinal Chemistry, 2019, 62(6):2938-2949.

DOI PMID

[21]
ACHEK A, YESUDHAS D, CHOI S. Toll-like receptors:promising therapeutic targets for inflammatory diseases[J]. Archives of Pharmacal Research, 2016, 39(8):1032-1049.

[22]
SU Q Q, CHEN Y, HE H X. Molecular evolution of Toll-like receptors in rodents[J]. Integrative Zoology, 2024, 19(3):371-386.

[23]
CHOTEAU L, VANCRAEYNESTE H, LE ROY D, et al. Role of TLR1,TLR2 and TLR6 in the modulation of intestinal inflammation and Candida albicans elimination[J]. Gut Pathogens, 2017, 9:9.

[24]
GOSU V, SON S, SHIN D, et al. Insights into the dynamic nature of the dsRNA-bound TLR3 complex[J]. Scientific Reports, 2019, 9(1):3652.

DOI PMID

[25]
MURDOCK J L, NÚÑEZ G. TLR4:the winding road to the discovery of the LPS receptor[J]. Journal of Immunology (Baltimore,Md.:1950), 2016, 197(7):2561-2562.

[26]
FENG S Y, ZHANG C, CHEN S S, et al. TLR5 signaling in the regulation of intestinal mucosal immunity[J]. Journal of Inflammation Research, 2023, 16:2491-2501.

DOI PMID

[27]
NEVES F, MARQUES J P, AREAL H, et al. TLR7 and TLR8 evolution in lagomorphs:different patterns in the different lineages[J]. Immunogenetics, 2022, 74(5):475-485.

[28]
POHAR J, YAMAMOTO C, FUKUI R, et al. Selectivity of human TLR9 for double CpG motifs and implications for the recognition of genomic DNA[J]. Journal of Immunology (Baltimore,Md.:195), 20170, 198(5):2093-2104.

[29]
FORE F, INDRIPUTRI C, MAMUTSE J, et al. TLR10 and its unique anti-inflammatory properties and potential use as a target in therapeutics[J]. Immune Network, 2020, 20(3):e21.

[30]
LAUW F N, CAFFREY D R, GOLENBOCK D T. Of mice and man:TLR11 (finally) finds profilin[J]. Trends in Immunology, 2005, 26(10):509-511.

[31]
RAETZ M, KIBARDIN A, STURGE C R, et al. Cooperation of TLR12 and TLR11 in the IRF8-dependent IL-12 response to Toxoplasma gondii profilin[J]. Journal of Immunology (Baltimore,Md.:1950), 2013, 191(9):4818-4827.

[32]
SHI Z C, CAI Z Y, WEN S, et al. Transcriptional regulation of the novel Toll-like receptor Tlr13[J]. Journal of Biological Chemistry, 2009, 284(31):20540-20547.

DOI PMID

[33]
MARTÍNEZ-LIMÓN A, JOAQUIN M, CABALLERO M, et al. The p38 pathway:from biology to cancer therapy[J]. International Journal of Molecular Sciences, 2020, 21(6):1913.

[34]
GUO Y J, PAN W W, LIU S B, et al. ERK/MAPK signalling pathway and tumorigenesis[J]. Experimental and Therapeutic Medicine, 2020, 19(3):1997-2007.

[35]
PUA L J W, MAI C W, CHUNG F F L, et al. Functional roles of JNK and p38 MAPK signaling in nasopharyngeal carcinoma[J]. International Journal of Molecular Sciences, 2022, 23(3):1108.

[36]
KANG Y J, CHEN J M, OTSUKA M, et al. Macrophage deletion of p38alpha partially impairs lipopolysaccharide-induced cellular activation[J]. Journal of Immunology, 2008, 180(7):5075-5082.

PMID

[37]
YANG Y Y, KIM S C, YU T, et al. Functional roles of p38 mitogen-activated protein kinase in macrophage-mediated inflammatory responses[J]. Mediators of Inflammation, 2014, 2014:352371.

[38]
ZHAO M, HOU J, ZHENG S C, et al. Peucedanum praeruptorum Dunn polysaccharides regulate macrophage inflammatory response through TLR2/TLR4-mediated MAPK and NF-κB pathways[J]. Biomedicine & Pharmacotherapy, 2022, 152:113258.

[39]
NIU X F, YU J B, HUANG Q X, et al. Immunoenhancement activity of Bletilla striata polysaccharide through MAPK and NF-κB signaling pathways in vivo and in vitro[J]. Autoimmunity, 2022, 55(8):650-660.

[40]
HAN S J, LEE H, NAM J, et al. Schisandra extract ameliorates arthritis pathogenesis by suppressing the NF-κB and MAPK signaling pathways[J]. Journal of Cellular and Molecular Medicine, 2023, 27(14):2071-2081.

[41]
何燕飞. 番红花花瓣多糖的结构表征及免疫调节作用研究[D].博士学位论文. 杭州: 浙江大学, 2022.

HE Y F. Structural characterization and immunoregulatory effects of crocus sativus petal polysaccharides[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2020. (in Chinese)

[42]
张冰琪, 李冰心, 杨保和, 等. 白术多糖通过Toll样受体4/p38丝裂原活化蛋白激酶信号通路缓解脂多糖诱导的雏鹅法氏囊损伤[J]. 动物营养学报, 2022, 34(10):6737-6747.

DOI

ZHANG B Q, LI B X, YANG B H, et al. Polysaccharide of Atractylodes macrocephala koidz alleviates lipopolysaccharide induced bursa of Fabricius injury in goslings through Toll-like receptor 4/p38 mitogen activated protein kinase signaling pathway[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6737-6747. (in Chinese)

[43]
LI G L, TANG J F, TAN W L, et al. The anti-hepatocellular carcinoma effects of polysaccharides from Ganoderma lucidum by regulating macrophage polarization via the MAPK/NF-κB signaling pathway[J]. Food & Function, 2023, 14(7):3155-3168.

[44]
YIN L, FAN Z P, LIU P, et al. Anemoside a3 activates TLR4-dependent M1-phenotype macrophage polarization to represses breast tumor growth and angiogenesis[J]. Toxicology and Applied Pharmacology, 2021, 432:115755.

[45]
LIU T, ZHANG L Y, JOO D, et al. NF-κB signaling in inflammation[J]. Signal Transduction and Targeted Therapy, 2017, 2:17023.

[46]
OECKINGHAUS A, HAYDEN M S, GHOSH S. Crosstalk in NF-κB signaling pathways[J]. Nature Immunology, 2011, 12(8):695-708.

DOI PMID

[47]
WANG J X, LI X M, BELLO B K, et al. Activation of TLR2 heterodimers-mediated NF-κB,MAPK,AKT signaling pathways is responsible for vibrio alginolyticus triggered inflammatory response in vitro[J]. Microbial Pathogenesis, 2021, 162:105219.

[48]
KIM J Y, SHIN J H, KIM M J, et al. β-arrestin 2 negatively regulates lung cancer progression by inhibiting the TRAF6 signaling axis for NF-κB activation and autophagy induced by TLR3 and TLR4[J]. Cell Death & Disease, 2023, 14(7):422.

[49]
HWANG H S, KIM J W, OH S H, et al. TLR5 activation induces expression of the pro-inflammatory mediator urokinase plasminogen activator via NF-κB and MAPK signaling pathways in human dental pulp cells[J]. International Endodontic Journal, 2019, 52(10):1479-1488.

[50]
BENDER A T, TZVETKOV E, PEREIRA A, et al. TLR7 and TLR8 differentially activate the IRF and NF-κB pathways in specific cell types to promote inflammation[J]. ImmunoHorizons, 2020, 4(2):93-107.

DOI PMID

[51]
LUO Q T, ZENG L, TANG C T, et al. TLR9 induces colitis-associated colorectal carcinogenesis by regulating NF-κB expression levels[J]. Oncology Letters, 2020, 20(4):110.

DOI PMID

[52]
PRAMANIK K C, MAKENA M R, BHOWMICK K, et al. Advancement of NF-κB signaling pathway:a novel target in pancreatic cancer[J]. International Journal of Molecular Sciences, 2018, 19(12):3890.

[53]
JANG S I, KIM H J, KIM Y J, et al. Tanshinone IIA inhibits LPS-induced NF-kappaB activation in RAW 264.7 cells:possible involvement of the NIK-IKK,ERK1/2,p38 and JNK pathways[J]. European Journal of Pharmacology, 2006, 542(1/2/3):1-7.

[54]
WEI Y, QI M, LIU C, et al. Astragalus polysaccharide attenuates bleomycin-induced pulmonary fibrosis by inhibiting TLR4/NF-κB signaling pathway and regulating gut microbiota[J]. European Journal of Pharmacology, 2023, 944:175594.

[55]
DONG N, LI X R, XUE C Y, et al. Astragalus polysaccharides alleviates LPS-induced inflammation via the NF-κB/MAPK signaling pathway[J]. Journal of Cellular Physiology, 2020, 235(7/8):5525-5540.

[56]
CHEN X F, DU J, ZHU Y L, et al. Comprehensive analysis of lncRNA and mRNA expression profiles in macrophages activated by Actinidia eriantha polysaccharide[J]. International Journal of Biological Macromolecules, 2019, 136:980-993.

DOI PMID

[57]
ZOU Y F, LI C Y, FU Y P, et al. Angelica sinensis aboveground part polysaccharide and its metabolite 5-MT ameliorate colitis via modulating gut microbiota and TLR4/MyD88/NF-κB pathway[J]. International Journal of Biological Macromolecules, 2023, 242(Pt.1):124689.

[58]
SONG L Y, YANG J T, KONG W H, et al. Cordyceps militaris polysaccharide alleviates ovalbumin-induced allergic asthma through the Nrf2/HO-1 and NF-κB signaling pathways and regulates the gut microbiota[J]. International Journal of Biological Macromolecules, 2023, 238:124333.

[59]
XING Y Y, ZHENG Y K, YANG S, et al. Artemisia ordosica polysaccharide alleviated lipopolysaccharide-induced oxidative stress of broilers via Nrf2/Keap1 and TLR4/NF-κB pathway[J]. Ecotoxicology and Environmental Safety, 2021, 223:112566.

[60]
HWANG E H, KIM T H, OH S M, et al. Toll/IL-1 domain-containing adaptor inducing IFN-β (TRIF) mediates innate immune responses in murine peritoneal mesothelial cells through TLR3 and TLR4 stimulation[J]. Cytokine, 2016, 77:127-134.

[61]
ZHU L J, LI W, FAN Z Y, et al. Immunomodulatory activity of polysaccharide from Arca granosa linnaeus via TLR4/MyD88/NFκB and TLR4/TRIF signaling pathways[J]. Journal of Functional Foods, 2021, 84:104579.

[62]
FANG X Y, LI Y J, ZHENG Y, et al. Ethanol extracts from Ilex pubescens promotes cerebral ischemic tolerance via modulation of TLR4-MyD88/TRIF signaling pathway in rats[J]. Journal of Ethnopharmacology, 2020, 256:112680.

[63]
YAMAMOTO M, SATO S, HEMMI H, et al. Role of adaptor TRIF in the MyD88-independent Toll-like receptor signaling pathway[J]. Science, 2003, 301(5633):640-643.

DOI PMID

[64]
ZHANG R L, GUO R, LIU Q, et al. Selenium deficiency via the TLR4/TRIF/NF-κB signaling pathway leading to inflammatory injury in chicken spleen[J]. Biological Trace Element Research, 2021, 199(2):693-702.

[65]
XUE Q H, ZHOU Z, LEI X B, et al. TRIM38 negatively regulates TLR3-mediated IFN-β signaling by targeting TRIF for degradation[J]. PLoS One, 2012, 7(10):e46825.

[66]
XU Y L, YE M X, ZHANG Y W, et al. Screening of porcine innate immune adaptor signaling revealed several anti-PRRSV signaling pathways[J]. Vaccines, 2021, 9(10):1176.

[67]
XU C J, GU L, HU L P, et al. FADS1-arachidonic acid axis enhances arachidonic acid metabolism by altering intestinal microecology in colorectal cancer[J]. Nature Communications, 2023, 14(1):2042.

DOI PMID

[68]
DEY R, DEY S, SAMADDER A, et al. Natural inhibitors against potential targets of cyclooxygenase,lipoxygenase and leukotrienes[J]. Combinatorial Chemistry & High Throughput Screening, 2022, 25(14):2341-2357.

[69]
TALUKDER S, AHMED K S, HOSSAIN H, et al. Fimbristylis aestivalis Vahl:a potential source of cyclooxygenase-2 (COX-2) inhibitors[J]. Inflammopharmacology, 2022, 30(6):2301-2315.

[70]
BÖDDER J, KOK L M, FAUERBACH J A, et al. Tailored PGE2 immunomodulation of moDCs by nano-encapsulated EP2/EP4 antagonists[J]. International Journal of Molecular Sciences, 2023, 24(2):1392.

[71]
OSAWA K, UMEMURA M, NAKAKAJI R N, et al. Prostaglandin E2 receptor EP4 regulates cell migration through orai1[J]. Cancer Science, 2020, 111(1):160-174.

[72]
MAJUMDER M, NANDI P, OMAR A, et al. EP4 as a therapeutic target for aggressive human breast cancer[J]. International Journal of Molecular Sciences, 2018, 19(4):1019.

[73]
LIU K X, ZHEN W R, BAI D Y, et al. Lipopolysaccharide-induced immune stress negatively regulates broiler chicken growth via the COX-2-PGE2-EP4 signaling pathway[J]. Frontiers in Immunology, 2023, 14:1193798.

[74]
PANG K L, CHIN K Y, NIRWANA S I. Immunomodulatory effects of agarwood leaf extract on RAW264.7 murine macrophages[J]. Endocrine,Metabolic & Immune Disorders Drug Targets, 2023, 23(7):964-976.

[75]
KIM S M, VETRIVEL P, KIM H H, et al. Artemisia iwayomogi (Dowijigi) inhibits lipopolysaccharide-induced inflammation in RAW264.7 macrophages by suppressing the NF-κB signaling pathway[J]. Experimental and Therapeutic Medicine, 2020, 19(3):2161-2170.

[76]
DRIF A I, AVULA B, KHAN I A, et al. COX2-inhibitory and cytotoxic activities of phytoconstituents of Matricaria chamomilla L[J]. Applied Sciences, 2023, 13(15):1-25.

[77]
WANG T Q, FU X J, CHEN Q F, et al. Arachidonic acid metabolism and kidney inflammation[J]. International Journal of Molecular Sciences, 2019, 20(15):3683.

[78]
RÅDMARK O, WERZ O, STEINHILBER D, et al. 5-lipoxygenase,a key enzyme for leukotriene biosynthesis in health and disease[J]. Biochimica et Biophysica Acta, 2015, 1851(4):331-339.

[79]
THULASINGAM M, HAEGGSTRÖM J Z. Integral membrane enzymes in eicosanoid metabolism:structures,mechanisms and inhibitor design[J]. Journal of Molecular Biology, 2020, 432(18):4999-5022.

[80]
XIE S Y, QI X P, WU Q Q, et al. Inhibition of 5-lipoxygenase is associated with downregulation of the leukotriene B4 receptor 1/ Interleukin-12p35 pathway and ameliorates sepsis-induced myocardial injury[J]. Free Radical Biology & Medicine, 2021, 166:348-357.

[81]
CAO X T, YING S, WEIGUI K, et al. Flavonoids derived from anemarrhenae rhizoma ameliorate inflammation of benign prostatic hyperplasia via modulating COX/LOX pathways[J]. Journal of Ethnopharmacology, 2021, 284:114740.

[82]
LI H M, WANG Y, WANG B, et al. Baicalin and geniposide inhibit polarization and inflammatory injury of OGD/R-treated microglia by suppressing the 5-LOX/LTB4 pathway[J]. Neurochemical Research, 2021, 46(7):1844-1858.

[83]
TANG L, LI X L, DENG Z X, et al. Conjugated linoleic acid attenuates 2,4-dinitrofluorobenzene-induced atopic dermatitis in mice through dual inhibition of COX-2/5-LOX and TLR4/NF-κB signaling[J]. The Journal of Nutritional Biochemistry, 2020, 81:108379.

[84]
YU M M, CHEN J J, XU Z F, et al. Development and safety of PI3K inhibitors in cancer[J]. Archives of Toxicology, 2023, 97(3):635-650.

DOI PMID

[85]
ZHANG X L, ZHANG S W, YAMANE H, et al. Kinetic mechanism of AKT/PKB enzyme family[J]. Journal of Biological Chemistry, 2006, 281(20):13949-13956.

DOI PMID

[86]
LINDE-GARELLI K Y, ROGALA K B. Structural mechanisms of the mTOR pathway[J]. Current Opinion in Structural Biology, 2023, 82:102663.

[87]
MOTAHAREH M, FATEMEH M, MIRIAM M, et al. Prospects of targeting PI3K/AKT/mTOR pathway in pancreatic cancer[J]. Critical Reviews in Oncology/Hematology, 2022, 176:103749.

[88]
CAO J F, KONG W G, CHENG G F, et al. Role of mTORC1 signaling in regulating the immune function of granulocytes in teleost fish[J]. International Journal of Molecular Sciences, 2023, 24(18):13745.

[89]
LINKE M N A, FRITSCH S D, SUKHBAATAR N, et al. mTORC1 and mTORC2 as regulators of cell metabolism in immunity[J]. FEBS Letters, 2017, 591(19):3089-3103.

DOI PMID

[90]
BORGES G A, ELIAS S T, AMORIM B, et al. Curcumin downregulates the PI3K-AKT-mTOR pathway and inhibits growth and progression in head and neck cancer cells[J]. Phytotherapy Research:PTR, 2020, 34(12):3311-3324.

[91]
XIE W, CHEN H G, CHEN R H, et al. Intervention effect of Lycium barbarum polysaccharide on lead-induced kidney injury mice and its mechanism:a study based on the PI3K/Akt/mTOR signaling pathway[J]. Journal of Ethnopharmacology, 2024, 319(Pt 2):117197.

[92]
REN F, LI J, YUAN X, et al. Dandelion polysaccharides exert anticancer effect on hepatocellular carcinoma by inhibiting PI3K/AKT/mTOR pathway and enhancing immune response[J]. Journal of Functional Foods, 2019, 55:263-274.

[93]
LI L, JIANG W F, YU B J, et al. Quercetin improves cerebral ischemia/reperfusion injury by promoting microglia/macrophages M2 polarization via regulating PI3K/Akt/NF-κB signaling pathway[J]. Biomedicine & Pharmacotherapy, 2023, 168:115653.

文章导航

/