综述

生长素释放肽调控动物采食的研究进展

  • 刘亮 ,
  • 王宇轩 ,
  • 张永亮 ,
  • 陈婷 , *
展开
  • 华南农业大学动物科学学院,国家生猪种业工程技术研究中心,广东省动物营养调控重点实验室,广州 510642
*陈 婷,副教授,硕士生导师,E-mail:

刘 亮(1997—),男,湖北天门人,硕士研究生,从事动物分子营养研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-06-04

  网络出版日期: 2024-12-12

基金资助

国家重点研发计划(2022YFD1300401)

广东省自然科学基金面上项目(2021A1515011310)

广东省自然科学基金(2023A1515012127)

国家自然科学基金(32072812)

国家自然科学基金(32372958)

Research Progress of Ghrelin on Feeding Regulation of Animals

  • LIU Liang ,
  • WANG Yuxuan ,
  • ZHANG Yongliang ,
  • CHEN Ting , *
Expand
  • Guangdong Key Laboratory of Animal Nutrition Regulation, National Pig Breeding Engineering Technology Center, College of Animal Science, South China Agricultural University, Guangzhou 510642, China
*associate professor, E-mail:

Received date: 2024-06-04

  Online published: 2024-12-12

摘要

生长素释放肽是一种具有多种生理功能的胃部激素,在调节动物食欲及脂质和葡萄糖代谢方面起着重要作用。生长素释放肽的作用主要由中枢神经系统特异性调节,通过激活脑部区域的生长素释放肽受体,最终导致生长素释放肽调控机体物质代谢并产生食欲作用。随着研究的深入,在动物采食、饲料转化率以及厌食症的治疗方面,生长素释放肽也表现出重要功能。本文总结了生长素释放肽在采食调控方面的相关功能,为生长素释放肽功能探索、养殖业的发展以及相关药物的开发提供参考。

本文引用格式

刘亮 , 王宇轩 , 张永亮 , 陈婷 . 生长素释放肽调控动物采食的研究进展[J]. 动物营养学报, 2024 , 36(12) : 7635 -7646 . DOI: 10.12418/CJAN2024.651

Abstract

Ghrelin is a gastric hormone with multiple physiological functions that plays an important role in regulating appetite as well as lipid metabolism and glucose metabolism of animals. The effect of ghrelin is mainly regulated by the central nervous system, and it activates the ghrelin receptor in the brain area, which ultimately leads to the regulation of substance metabolism and appetite. With the deepening of research, ghrelin has also shown important functions in animal feeding, feed conversion rate and the treatment of anorexia. This review summarizes the related functions of ghrelin in feeding regulation, and provides reference for the future function exploration of ghrelin, the development of breeding industry and the research of related drugs.

食物摄入是动物维持生命活动的基本过程之一,该过程涉及到食欲调节、摄食行为和食物消化吸收等多个方面,多种胃肠道激素调节参与该调控过程。其中,食欲主要由2种具有相反生理功能的内源性激素调控:生长素释放肽(ghrelin)和瘦素(leptin),这2类激素分别发挥促进和抑制食欲的作用。生长素释放肽是由胃组织分泌的一种促食欲激素,该激素通过血液循环作用于脑垂体中的生长素释放肽受体,使大脑感知饥饿,进而发挥促食欲作用[1]。同时,生长素释放肽给药(中枢或外周)已被证明可以促进采食并减少能量消耗,导致小鼠体重增加[2]
近年来,随着畜牧业的发展,消费者对肉蛋奶产品需求越来越高。但是,自2020年来,饲料原料价格节节攀升,给养殖企业的生产成本带来巨大压力。以更少的饲料获得更多的肉,提高饲料转化率并增长体重是增加养殖场经济效益的最直接方式[3-5]。生长素释放肽作为一种促食欲激素,在能量平衡、脂质代谢、葡萄糖代谢等方面发挥着重要作用[6]。Xin等[7]研究表明,生产中使用液体发酵饲粮能促进断奶仔猪血清生长素释放肽的产生增加采食和体重,并提高饲料消化率,改善猪的生长性能。Yan等[8]研究发现,皮下注射生长素释放肽拮抗剂能显著降低仔猪生长性能,其平均日增重和饲料转化率显著下降,但采食量无明显变化。Gao等[9]在石斑鱼饲料中补充4 mg/kg的生长素释放肽时发现石斑鱼大脑神经肽Y(neuropeptide Y,NPY)mRNA的表达显著上调,其采食量和体重相比于对照组也显著增加。以上研究结果表明,生长素释放肽能促进动物采食和生长发育,提高生产效率,这在一定程度上能加快畜禽出栏时间,增加周转速度;在生产成本方面,生长素释放肽能提高动物的饲料转化率,减少饲料浪费,节约成本。因此,将生长素释放肽的作用应用到畜牧养殖中,研发出能提高饲料消化率、促进生长的饲料或添加剂是养殖企业提质增效、降低生产成本的有效途径。然而,查阅文献发现,现阶段对生长素释放肽的研究主要集中在糖尿病、肥胖、癌症等疾病方面,在畜牧养殖中的应用研究相对较少。本文结合当今生长素释放肽的研究热点以及其在能量稳态方面的作用,探讨生长素释放肽对动物采食以及能量代谢的影响,旨在为提高养殖场经济效益以及未来畜牧业的发展提供参考。

1 生长素释放肽的发现、合成和分泌

生长素释放肽,也称饥饿素或生长激素促分泌素,1999年由Kojima等[10]首次在小鼠胃组织中发现,是由28个氨基酸残基组成的生长激素释放酰化肽,其最初作为生长激素(growth hormone,GH)的促分泌剂而命名。生长素释放肽主要由啮齿动物泌酸胃腺的X/A样细胞和人类的P/D1样细胞合成和分泌[11],这些细胞占胃泌酸内分泌细胞的20%~30%[12]。随着研究的深入,在胎盘、胰腺、十二指肠、空肠和肺脏等组织器官中也陆续发现有生长素释放肽表达,但在胃中含量最高[13-14]
人生长素释放肽由位于染色体3p25-26上的4个外显子组成的生长素释放肽基因(GHRL)编码[15-16]。在细胞内,GHRL经翻译形成117个氨基酸残基的前体肽,即前孕素释放肽(preproghrelin),随后前孕素释放肽在内质网中被裂解为94个氨基酸残基的前生长素释放肽(proghrelin),后者经激素原转化酶1/3裂解为具有28个氨基酸残基的成熟生长素释放肽[17]。在不同物种中,生长素释放肽具有较高的保守性。大鼠生长素释放肽cDNA编码的前体肽与人类的相比具有83%的序列同源性,且成熟的大鼠生长素释放肽序列与人类的相差2个氨基酸残基[10]
生长素释放肽不会直接分泌到胃肠道中,而是分泌到血管中进行全身分布[13]。生长素释放肽的合成、分泌和降解决定了其在血液中的水平[18]。体内的生长素释放肽水平主要受食物的摄入量和生理疾病状况的影响[19],在空腹时血浆中生长素释放肽水平升高,在进食及餐后降低[16]。机体生长素释放肽的释放也受不同类型营养素的影响,如碳水化合物、脂质能直接作用于产生生长素释放肽的细胞来抑制生长素释放肽释放[20]。自主神经系统也是生长素释放肽的主要调节因子之一,控制肠道神经系统的胆碱能纤维和肾上腺素能纤维能调节生长素释放肽的分泌[21]。丁酰胆碱酯酶(butyrylcholinesterase,BChE)是一种非特异性丝氨酸水解酶,由肝脏合成后释放到血浆中,可催化体内酯的水解,人类生长素释放肽是其水解底物之一[22]。在血液循环中,部分酰基化生长素释放肽能被BChE去酰化,进而被血浆蛋白酶降解,并由尿液排出[23]。在机体环境下,酰基化生长素释放肽的半衰期在大鼠中为30 min左右,在人类中为240 min左右[24]

2 生长素释放肽的作用机制

成熟的生长素释放肽有2种形式:酰基生长素释放肽(acylated ghrelin,AG)和去酰基生长素释放肽(unacylated ghrelin,UAG)。在体循环中,大约22%的生长素释放肽是以酰基化形式存在,而78%以非酰基化形式存在[15,25]。生长素释放肽的酰基化对于其生理功能至关重要,在生长素释放肽O-酰基转移酶(ghrelin O-acyltransferase,GOAT)的催化下[18],使其N-辛酰基连接到氨基端第3位丝氨酸残基上,能够增加其亲脂性[10,16]。这种酰基化对生长素释放肽的生物活性是必不可少的,只有酰基化生长激素释放肽才能结合到激活的生长激素促分泌素受体-1a(growth hormone secretagogue receptor type-1a,GHSR-1a)上,从而发挥其调节内分泌、代谢和促食欲作用[26]。然而,一些研究表明,UAG也具有调节代谢作用,其能通过独立于GHSR-1a信号传导的机制影响肥胖和葡萄糖代谢等[27-28]。因此,通过调节生长素释放肽的酰基化或去酰基化可能影响机体的代谢或采食。
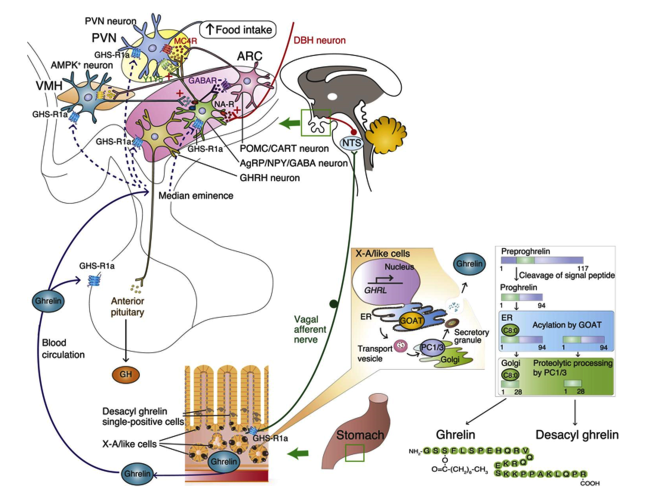
GHSR-1a是一种由366个氨基酸残基组成的G蛋白偶联受体(G-protein-coupled receptor,GPCR)[29],在中枢神经系统中高度表达,主要分布在不同的大脑区域,比如下丘脑、垂体腹侧被盖区(VTA)、裂核(RN)、海马体和黑质致密部(SNpc)等区域[30-31]。Colldén等[17]、McKee等[32]和Yokote等[33]均发现,除中枢神经系统外,在迷走神经细胞和胃肠道迷走神经末梢以及许多外周组织,如胃、小肠、胰腺、脾脏、肾脏和肾上腺等也有少量GHSR-1a表达。生长素释放肽信号通过血液循环和迷走神经2种形式传入到下丘脑和大脑的其他区域(图1)[6,34]。迷走神经为第10条颅神经,能在内脏和大脑之间传递信息,当胃肠黏膜内的传入神经末梢感受到肠内分泌细胞释放的生物活性物质时,其上的GHSR-1a能与胃中的生长素释放肽结合并抑制迷走神经的电信号,随后传入神经电信号经DBH神经元与下丘脑弓状核(arcuate nucleus,ARC)的NPY形成突触;此外,生长素释放肽还可经血液运输通过血脑屏障与毛细血管附近的神经元结合[6]。生长素释放肽与下丘脑神经元受体结合后可以激活生长激素分泌细胞中的蛋白激酶A(PKA)、蛋白激酶C(PKC)、丝裂原活化蛋白激酶(MAPK)以及Pit-1转录因子来刺激生长激素的合成和分泌[35],并激活ARC中的NPY/刺鼠相关肽(agouti-related peptide,AgRP)神经元,从而向室旁核(paraventricular nucleus,PVN)发出信号来增加食欲以及食物的摄入[36]
图1 生长素释放肽的合成及生长素释放肽信号传递到下丘脑的途径

Food intake:食物摄入;ARC:弓状核 arcuate nucleus;GABAR:γ-氨基丁酸受体 γ-aminobutyric acid receptor;NA-R:去甲肾上腺素受体 noradrenaline receptor;GHSR-1a:生长激素促分泌素受体-1a growth hormone secretagogue receptor-1a;Ghrelin:生长素释放肽;PVN:室旁核 nucleus paraventricularis;PVN neuron:PVN神经元;AMPK:腺苷单磷酸活化蛋白激酶 adenine monophosphate activated protein kinase;AMPK+ neuron:AMPK+神经元;VMH:下丘脑腹内侧核 ventral medial hypothalamus;Median eminence:正中隆起;Blood circulation:血液循环;Anterior pituitary:垂体前叶;GH:生长激素 growth hormone;Desacyl ghrelin single-positive cells:去酰基化生长素释放肽单阳性细胞;X-A/like cells:X-A/样细胞;POMC/CART neuron:前黑皮质素/可卡因-苯丙胺调节转录肽神经元pro-opiomelanocortin/cocaine and amphetamine-regulated transcript neuron;AgRP/NPY/GABA neuron:刺鼠相关蛋白/神经肽Y/γ-氨基丁酸神经元 agouti-related protein/neuropeptide Y/γ-aminobutyric acid neuron;GHRH neuron:生长激素释放激素神经元 growth hormone-releasing hormone neuron;DBH neuron:多巴胺β-羟化酶神经元 dopamine β-hydroxylase neuron;NTS:孤束核 nucleus tractus solitarius;Vagal afferent nerve:迷走神经;Nucleus:细胞核;GHRL:生长素释放肽基因 ghrelin gene;ER:内质网 endoplasmic reticulum;GOAT:生长素释放肽O-酰基转移酶 ghrelin O-acyltransferase;Transport vesicle:囊泡运输;PC1/3:激素原转化酶1/3 prohormone convertase 1/3;Golgi:高尔基体 Golgi body;Secretory granule:分泌颗粒;Preproghrelin:促生长素释放多肽原前体;Cleavage of signal peptide:信号肽的切割;proghrelin:促生长素释放多肽原;Acylation by GOAT:GOAT的酰化作用;Proteolytic processing by PC1/3:PC1/3的蛋白水解过程;Desacyl ghrelin:去酰基化生长素释放肽;Stomach:胃。

Fig.1 Synthesis of ghrelin and the pathway of ghrelin signal to hypothalamus[6]

3 生长素释放肽调控动物采食与能量稳态

随着研究的不断深入,生长素释放肽被认为是一种具有多种中枢和外周作用的多功能激素。生长素释放肽除最基本的促进生长激素分泌外,在采食方面,能刺激动物食欲、增强胃酸分泌和胃蠕动,促进消化吸收[37];在物质代谢方面,生长素释放肽能调节机体葡萄糖代谢和脂质代谢,维持机体能量稳态[17]。除此之外,生长素释放肽在免疫和炎症反应、压力以及记忆力方面也能发挥重要作用[38-39]。在畜牧业中,有关生长素释放肽的研究主要集中在促进食欲、胃排空以及能量稳态的调控。

3.1 生长素释放肽的促食欲功能

下丘脑是调节体重稳态的关键结构,具有多个神经元中心,其中位于下丘脑腹内侧核的饱中枢与腹外侧核的摄食中枢均与摄食调节有关。同时,PVN和ARC是调节食物摄入和能量消耗的部位[34]。ARC中存在2个不同的神经元群:厌食(抑制食欲)的前黑皮质素(pro-opiomelanocortin,POMC)神经元和促食欲的NPY/AgRP神经元[40]。POMC神经元和NPY/AgRP神经元均能接受来自中枢神经系统和外周器官的信号,包括食欲素、生长素释放肽、瘦素和胰岛素,在食欲调节中起重要生理作用[34]
生长素释放肽从胃黏膜释放后,经血液循环与下丘脑中的NPY/AgRP神经元上的受体结合,经过激活:腺苷单磷酸活化蛋白激酶(AMPK)通路,抑制POMC神经元并增加NPY/AgRP神经元的突触活性,释放NPY和AgRP这2种神经肽以刺激食欲和食物摄入[36]。一项针对健康志愿者的研究表明,静脉注射生长素释放肽能使食物摄入量显著增加。生长素释放肽的食欲增强作用与NPY/AgRP的mRNA表达量增加和POMC的mRNA表达量降低有关[34,41]。除此之外,ARC中的酪氨酸羟化酶(tyrosine hydroxylase,TH)神经元以及能表达生长抑素(somatostatin,SST)的SST-ARC神经元也被证明参与生长素释放肽信号传导和体重稳态调节[42-43]。Zhang等[44]研究发现,生长素释放肽能增加TH神经元的神经活性,并诱导其磷酸化,其轴突末梢释放的多巴胺和γ-氨基丁酸(gamma-aminobutyric acid,GABA)能刺激NPY/AgRP神经元并抑制POMC神经元,从而促进食欲。Brüning等[42]、Campbell等[45]对ARC的单细胞RNA测序分析结果显示,SST-ARC神经元与AgRP-ARC神经元具有非常相似的转录谱,下丘脑PVN神经元(饱腹感神经元)是AgRP神经元控制摄食行为的主要突触靶标,SST-ARC神经元能通过释放GABA抑制PVN神经元,从而促进采食。
促食欲功能是生长素释放肽最基本也是研究最为深入的功能,在现今的研究中,已经利用生长素释放肽的促食欲功能研发出多种治疗厌食症的药物,但其在畜牧业的动物采食方面的研究较少,是动物采食调控研究的新切入点。

3.2 生长素释放肽促进胃排空

在胃肠道中,食物的消化吸收离不开胃肠蠕动以及胃肠道激素和胰腺的分泌,胃肠运动能加快食物与消化酶的混合,促进营养物质的消化和吸收。胃动素(motilin,MTL)是一种由22个氨基酸组成的多肽,能与胃肠道中的胃动素受体以及中枢神经系统中的GPCR结合,从而促进胃蠕动和胃排空[46]。除MTL外,生长素释放肽也被发现具有促进胃蠕动和胃排空功能。
Levin等[47]通过对志愿者静脉注射生长素释放肽发现,与注射生理盐水的对照组相比,注射生长素释放肽的试验组的胃排空率明显加快,排空时间缩短,胆囊收缩素(cholecystokinin,CCK)和胰高血糖素样肽-1(glucagon-like peptide-1,GLP-1)的餐后血浆浓度峰值提前,并且浓度增高,但生长素释放肽对血浆MTL、酪酪肽(peptide YY,PYY)的浓度无显著影响,提示生长素释放肽对胃排空的影响作用似乎不是通过生长激素或胃动素介导的。由于胃肠道神经系统中分布有生长素释放肽的受体,且有研究表明,大鼠口服活性生长素释放肽激动剂后能激活中枢迷走神经和胃肠胆碱能通路以促进胃排空,当口服阿托品或切断双侧迷走神经时可消除这种效果,这表明生长素释放肽可能直接通过机体神经系统影响胃排空[37]。同时,生长素释放肽还可以通过激活ARC中的NPY/AgRP神经元来有效刺激进食行为并增加刺激胃蠕动和胃酸分泌,促进胃排空[48]。生长素释放肽的刺激胃蠕动作用增加了食物与消化液的混合速度,促进了消化,还能在一定程度上增加食欲,这对于动物采食调控的研究至关重要[48-49]

3.3 生长素释放肽对葡萄糖代谢的影响

在正常生理过程中,机体通过胰岛素和胰高血糖素的平衡来维持血糖水平和葡萄糖稳态。生长素释放肽能通过促进胰岛素抵抗控制葡萄糖代谢[50]。研究表明,生长素释放肽能够抑制胰岛素的分泌[51]。与野生型小鼠相比,在GHRLGHSR-1a敲除小鼠中,其胰岛素的分泌增加,血糖水平降低[52],并能改善高脂喂养小鼠的耐糖量以及胰岛素敏感性[53-54]
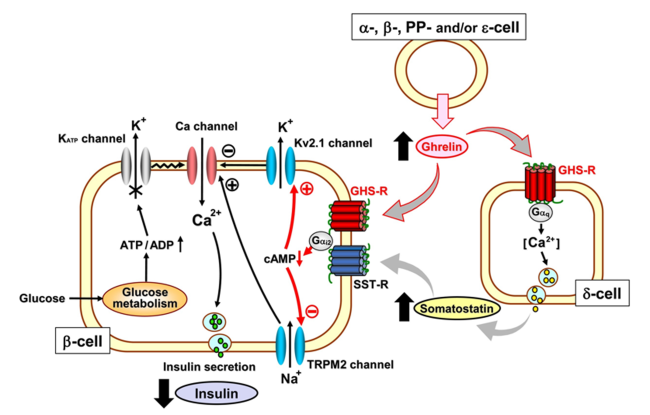
在胰腺中,胰腺ε细胞中也可产生生长素释放肽,并且其受体也在人类和啮齿动物的胰腺ε细胞中表达[55-56]。研究表明,生长素释放肽在影响葡萄糖代谢方面的作用除直接抑制葡萄糖刺激的胰岛素分泌外,还能通过刺激α细胞促进胰高血糖素的分泌[57]。生长素释放肽抑制胰岛素分泌归因于β细胞中由Ca2+介导的GHSR-1a信号传导[58],并且以旁分泌方式在胰岛内发挥抑制作用。餐后葡萄糖浓度上升使ATP/ADP比率增加,刺激ATP敏感性通道使膜去极化并增加胞质中Ca2+浓度,导致β细胞中胰岛素分泌。而生长素释放肽能与β细胞上形成的偶联三聚体[由百日咳毒素(PTX)、G蛋白Gαi2及GHSR-1a偶联形成]结合,从而减少环磷酸腺苷(cAMP)的产生,并减弱膜兴奋性,抑制Ca2+内流和胰岛素释放(图2)[56]。同时,后脑或AgRP神经元中的生长素释放肽-GHSR-1a轴可预防饥饿、厌食症、恶病质和其他负能量情况下的低血糖[6,59]。生长素释放肽作为能量稳态的调节剂,在禁食、脂肪消耗的条件下,能通过刺激肝脏自噬和随后的糖异生来维持血糖水平,并且在饥饿、脂肪耗尽的条件下维持生长激素水平[6]
图2 生长素释放肽通过直接和间接作用减弱胰岛β细胞中的胰岛素分泌

Glucose:葡萄糖;Glucose metabolism:葡萄糖代谢;Insulin:胰岛素;Insulin secretion:胰岛素分泌;β-cell:β细胞;ATP/ADP:三磷酸腺苷/二磷酸腺苷 adenosine triphosphate/adenosine diphosphate;KATP channel:ATP敏感钾离子通道 ATP-sensitive potassium channel;Kv2.1 channel:电压门控钾离子通道 voltage-gated potassium channel;TRPM2 channel:瞬时受体电位M2通道 transient receptor potential channel M2 channel;Ca channel:钙通道;cAMP:环磷酸腺苷 cyclic adenosine monophosphate;SST-R:生长抑素受体 somatostatin-receptor;Somatostatin:生长抑素;GHS-R;生长激素促分泌素受体 growth hormone secretagogue receptor;δ-cell:δ细胞;α-, β-, PP- and/or ε-cell:α细胞、β细胞、PP细胞和/或ε细胞。

Fig.2 Ghrelin reduces insulin secretion in pancreatic β-cells through direct and indirect effects[56]

3.4 生长素释放肽对脂质代谢的影响

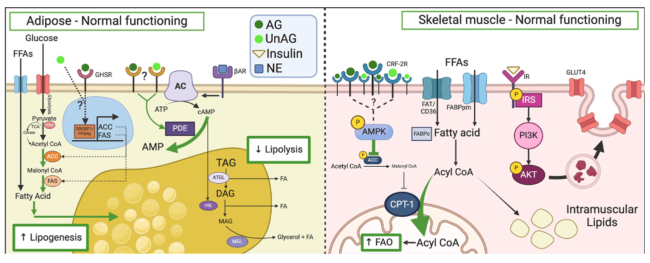
脂肪储存是能量稳态的重要组成部分,研究表明,生长素释放肽能通过促进脂肪沉积、抑制脂肪酸氧化以及减少能量消耗来诱导脂肪形式的能量储存(图3)[60-62]。生长素释放肽对脂质代谢的影响被认为是由脂肪合成相关酶的活性升高介导的:胃源性生长素释放肽通过血液循环和传入迷走神经运输到下丘脑与GHSR-1a结合后促进生长激素分泌。生长激素可以调节下游信号转导与转录活化因子5(STAT5)和MAPK信号通路并刺激肝脏分泌胰岛素样生长因子-1(IGF-1),IGF-1通过与其受体(IGF-1R)结合调控磷酸肌醇3-激酶(PI3K)/蛋白激酶B(AKT)/哺乳动物雷帕霉素靶蛋白(mTOR)信号通路,增加脂肪酸生成酶的表达,并抑制脂肪酸水解酶的表达[63-64]。Theander-Carrillo[65]的研究发现,通过向大鼠输注生长素释放肽能使其白色脂肪细胞中脂蛋白脂肪酶、乙酰辅酶A羧化酶(ACC)α、脂肪酸合成酶(FAS)等促进脂肪储存相关酶的mRNA、蛋白表达水平和活性显著增加,肝脏中肉碱棕榈酰转移酶1(carnitine palmitoyl transferase 1,CPT1)和丙二酰辅酶A(M-CoA)等参与脂肪酸降解酶的蛋白表达水平降低[66-67],这提示生长素释放肽可通过增强脂肪合成途径、抑制脂肪降解途径来促进脂肪沉积。而相反的研究表明,在人体和小鼠中,生长素释放肽与下丘脑GHSR-1a特异性结合后,通过Sirtuin1/p53信号通路激活AMPK信号通路,抑制mTOR信号通路,下调过氧化物酶体增殖物激活受体γ(PPARγ)和CCAAT/增强子结合蛋白α(C/EBPα)(可以协同激活和介导前脂肪细胞分化的2个重要转录因子)的水平来抑制小鼠和人脂肪细胞分化,从而减少脂肪生成酶ACCFASM-CoA的表达和脂质积累[63,68-69]。Basto-Silva等[70]的研究也发现,在金头鲷中,生长素释放肽能显著降低PPARγ2的基因表达,以减少脂肪沉积。Notaro等[62]、Hoecht等[71]对大鼠的研究发现,UAG在餐后2~3 h能持续刺激大鼠骨骼肌中的脂肪酸氧化,且与脂肪酸转运蛋白无关;在肥胖症中出现的UAG信号转导受损可能导致餐后骨骼肌脂肪酸代谢失调,这表明UAG可能在骨骼肌脂肪酸的餐后代谢中发挥重要作用,但明确的作用机制仍有待确定。由此可见,生长素释放肽在调节脂质稳态方面的功能作用产生了分歧,且在骨骼肌和脂肪组织中生长素释放肽诱导的脂肪酸氧化机制相对不明确,AG与UAG在脂肪酸代谢中具体发挥什么作用,是否通过已有研究中推测的AMPK、钙调蛋白依赖性蛋白激酶Ⅱ(calcium-calmodulin-dependent protein kinase Ⅱ,CAMKⅡ)及CPT1发挥作用,以及两者是否发挥协同或者拮抗作用[62,72],这需要更深一步的研究。
图3 生长素释放肽对脂质代谢的影响

Adipose-Normal functioning:脂肪-正常运行;Skeletal muscle-Normal functioning:骨骼肌-正常运行;Glucose:葡萄糖;FFAs:游离脂肪酸 free fatty acids;Fatty Acid/Fatty acid/FA:脂肪酸;Lipogenesis:脂质合成;Glycolysis:糖酵解;Pyruvate:丙酮酸;TCA:三羧酸循环 tricarboxylic acid cycle;citrate:柠檬酸盐;PDH:丙酮酸脱氢酶 pyruvate dehydrogenase;Acetyl CoA:乙酰辅酶A;ACC:乙酰辅酶A羧化酶 acetyl-CoA carboxylase;FAS:脂肪酸合酶 fatty acid synthase;Malonyl CoA:丙二酰辅酶A;SREBP1:固醇调节元件结合蛋白 sterol regulatory element binding proteins 1;PPARγ:过氧化物酶体增殖物激活受体 peroxisome proliferator-activated receptor γ;GHSR:生长激素促分泌素受体 growth hormone secretagogue receptor;AC:腺苷酸环化酶 adenylate cyclase;AMP:单磷酸腺苷 adenosine monophosphate;ATP:三磷酸腺苷 adenosine triphosphate;PDE:磷酸二酯酶 phosphodiesterase;cAMP:环磷酸腺苷 cyclic adenosine monophosphate;βAR:β-肾上腺素能受体 β-adrenergic receptor;AG:酰化生长素释放肽 acylated ghrelin;UnAG:未酰化生长素释放肽 unacylated ghrelin;Insulin:胰岛素;NE:去甲肾上腺素norepinephrine;Lipolysis:脂质分解;TAG:三酰基甘油 triacylglycerol;ATGL:脂肪甘油三酯脂肪酶 adipose triacylglyceride lipase;DAG:二酰基甘油 diacylglycerol;MAG:单甘油酯 monoglyceride;HSL:激素敏感性脂肪酶 hormone sensitive lipase;MGL:单酰甘油酯酶 monoacylglycerol lipase;Glycerol:甘油;CRF-2R:促皮质素释放因子2型受体 corticotropin releasing factor 2 receptor;AMPK:腺苷单磷酸活化蛋白激酶 adenine monophosphate activated protein kinase;CPT1:肉碱棕榈酰转移酶1 carnitine palmitoyl transferase 1;FAO:脂肪酸氧化 fatty acid oxidation;Acyl CoA:脂酰CoA合成酶;FAT/CD36:脂肪酸转位酶/分化簇36 fatty acid translocase/cluster of differentiation 36;FABPpm:质膜相关脂肪酸结合蛋白 plasma membrane-associated fatty acid-binding protein;FABPc:胞质相关脂肪酸结合蛋白 cytoplasm fatty acid binding protein;IR:胰岛素受体 insulin receptor;IRS:胰岛素受体底物 insulin receptor substrate;PI3K:磷酸肌醇3-激酶 phosphoinositide-3-kinase;AKT:蛋白激酶B protein kinase B;GLUT4:葡萄糖转运蛋白4 glucose transporter 4;Intramuscular Lipids:肌内脂质。

Fig.3 Effects of ghrelin on lipid metabolism[62]

4 生长素释放肽的应用

生长素释放肽主要与GHSR-1a结合发挥其生理功能,然而在应用研究中,由于生长素释放肽提取成本较高,半衰期短,且较难区分AG与UAG,这导致将生长素释放肽直接用作药物或者食欲激动剂的难度较大[73]。部分科研将目标转移到一种能激活GHSR-1a的小肽(生长素释放肽受体激动剂)上,以代替生长素释放肽的功能。
Bowers等[74]在1984年鉴定出的一种小肽GHRP-6,其能通过一种未知的机制在体内刺激生长激素的释放;随后被Smith[75]证明为生长素释放肽受体激动剂,用作开发可以刺激生长激素分泌的小分子化合物的结构模板,并可能用作治疗虚弱老年人生长激素水平下降的药物。随着研究的深入,生长素释放肽受体激动剂因其在哺乳动物物种中作为食欲兴奋剂的药理学用途而被广泛应用。例如,生长素释放肽激动剂卡普瑞林(Capromorelin)作为GHSR-1a的配体,在治疗哺乳动物厌食症、促进采食和调节能量代谢方面显示出积极的药理作用,已被美国食品及药物管理局(FDA)批准用于刺激犬的食欲[76]。Ceron-Romero等[77]的饲养试验表明,卡普瑞林可增加肉鸡的采食量和体重,与对照组相比,接受较高剂量[12 mg/(kg·d)]卡普瑞林的家禽平均可多消耗16.6%的饲粮,体重增加18.8%。
鉴于生长素释放肽的促进胃肠蠕动、加速转运,并可能改善消化动力障碍的胃动力学功能,现在市面上已经开始开发各种生长素释放肽受体激动剂,如瑞拉瑞林(Relamorelin)、HM01(一种穿过血脑屏障的口服活性生长素释放肽激动剂)[38]等以此来达到治疗糖尿病、胃轻瘫、胃排空延迟等疾病所引发的消化不良,这是一种新型治疗方法[78-81]
除治疗厌食症外,生长素释放肽受体拮抗剂和生长素释放肽受体反向激动剂被认为是治疗肥胖的一种有效手段[82-83]。抗菌肽2(LEAP-2)是由肝脏和胃肠道产生的GHSR-1a内源性拮抗剂和反向激动剂,可对抗生长素释放肽的生长激素分泌和促食欲作用[84]。在下丘脑中,LEAP-2竞争生长素释放肽结合位点,超极化NPY/AgRP以抑制神经元激活,从而削弱生长素释放肽的促食欲作用;LEAP-2还能抑制GHSR-1a的基础活性,阻断相关信号转导以抑制食欲[85-86]。抑制生长素释放肽的活性已显示能减少动物采食和体重[41],由此有研究认为增加LEAP-2与生长素释放肽比率可能是治疗肥胖症的重要突破口[87]。同时,一些小分子物质如PF-5190457(氮杂环丁烷-哌啶)、P衍生物、化合物33(2-烷基氨基烟酰胺类似物)等已被鉴定具有减少食物摄入和减轻体重的作用[82-83,88]。PF-5190457作为一种有效的GHSR-1a反向激动剂,具有高口服性和临床应用潜力,且证明其是安全可耐受的[89]。虽然已有多种物质证明可对肥胖及其他代谢疾病具有治疗效果,但还需更多的研究和数据以确保试验的安全可靠性。

5 小结与展望

生长素释放肽由于其在食欲调节、能量稳态调节、炎症调节以及神经调节等方面的生理功能越来越受到关注。特别是在代谢方面,生长素释放肽能影响脂肪酸合成相关酶的表达以及胰岛素的分泌,调节葡萄糖代谢和脂肪酸代谢。研究人员已经发现生长素释放肽在肥胖、糖尿病等疾病中的作用,由此研发出的一些治疗药物也相继问世,这是当今对肥胖及糖尿病治疗迈出的重大一步,但其高昂的价格以及引发的副作用令人担忧。在厌食症方面,开发出低成本的生长素释放肽受体激动剂是目前治疗动物厌食症的一种有效方法,这是对患有消化不良、胃轻瘫的动物乃至于人类的福音。在畜禽养殖中,促进采食并提高饲料转化率是提高养殖场经济效益的有效手段,但现阶段生长素释放肽在养殖业中应用研究较少,通过对其功能的深入探究,研发出能促进动物采食、体重增长及治疗消化不良的相关药物或试剂是今后的研究热点。需要注意的是,生长素释放肽在禽类中充当厌食信号,其对于脂质代谢的调节作用也与哺乳动物相反,这是今后研究中需要解释的问题之一。
此外,AG和UAG在机体中发挥不同的生理功能,现阶段的研究认为发挥生长素释放肽功能的主要为AG,UAG最初因为不能激活GHSR-1a而被认为是生长素释放肽的一种非活性形式。然而,进一步的研究表明,UAG对能量代谢有积极影响,包括抑制葡萄糖的产生和改善胰岛素抵抗。在未来,尝试了解UAG在饥饿感中的作用有助于我们更好地研究AG与UAG之间的功能关系。在生长素释放肽受体方面,对于AG而言,随着对GHSR-1a研究的深入,发现GHSR-1a所调节的信号传导是治疗大脑新陈代谢及胃排空障碍的一种有前途手段,可以通过研究其信号通路,研发出治疗脑部疾病以及代谢疾病的相关药物。而UAG的受体至今未被发现,这是今后研究所需要探索的方向之一。作为机体稳态的一部分,生长素释放肽与其他胃肠道激素共同发挥作用。有研究表明,生长素释放肽能调节餐后GLP-1和PYY的分泌,从而减弱自身对葡萄糖耐量的负面影响,从而使机体葡萄糖维持稳态。在今后的研究中,探究生长素释放肽与其他激素的共同作用有利于我们更全面地研究生长素释放肽的功能以及其在葡萄糖稳态调节中的作用。
[1]
WANG Y, GUO S M, ZHUANG Y W, et al. Molecular recognition of an acyl-peptide hormone and activation of ghrelin receptor[J]. Nature Communications, 2021, 12(1):5064.

DOI PMID

[2]
LÓPEZ M, NOGUEIRAS R. Ghrelin[J]. Current Biology, 2023, 33(21):R1133-R1135.

[3]
YI Z H, LI X, LUO W, et al. Feed conversion ratio,residual feed intake and cholecystokinin type A receptor gene polymorphisms are associated with feed intake and average daily gain in a Chinese local chicken population[J]. Journal of Animal Science and Biotechnology, 2018, 9:50.

[4]
DAVISON C, MICHIE C, TACHTATZIS C, et al. Feed conversion ratio (FCR) and performance group estimation based on predicted feed intake for the optimisation of beef production[J]. Sensors, 2023, 23(10):4621.

[5]
SINPRU P, RIOU C, KUBOTA S, et al. Jejunal transcriptomic profiling for differences in feed conversion ratio in slow-growing chickens[J]. Animals, 2021, 11(9):2606.

[6]
YANAGI S, SATO T, KANGAWA K, et al. The homeostatic force of ghrelin[J]. Cell Metabolism, 2018, 27(4):786-804.

DOI PMID

[7]
XIN H L, WANG M Y, XIA Z, et al. Fermented diet liquid feeding improves growth performance and intestinal function of pigs[J]. Animals, 2021, 11(5):1452.

[8]
YAN A A, ZHANG H, LIN A L, et al. Antagonization of ghrelin suppresses muscle protein deposition by altering gut microbiota and serum amino acid composition in a pig model[J]. Biology, 2022, 11(6):840.

[9]
GAO Y J, TIAN L X, YANG H J, et al. The influence of ghrelin and des-ghrelin on feed intake,growth performance and hypothalamic NPY mRNA expression of grouper Epinephelus coioides[J]. Aquaculture, 2012, 364/365:19-24.

[10]
KOJIMA M, HOSODA H, DATE Y, et al. Ghrelin is a growth-hormone-releasing acylated peptide from stomach[J]. Nature, 1999, 402(6762):656-660.

[11]
DATE Y, KOJIMA M, HOSODA H, et al. Ghrelin,a novel growth hormone-releasing acylated peptide,is synthesized in a distinct endocrine cell type in the gastrointestinal tracts of rats and humans[J]. Endocrinology, 2000, 141(11):4255-4261.

[12]
STENGEL A, TACHÉ Y. Ghrelin—a pleiotropic hormone secreted from endocrine X/A-like cells of the stomach[J]. Frontiers in Neuroscience, 2012, 6:24.

[13]
ARIYASU H, TAKAYA K, TAGAMI T, et al. Stomach is a major source of circulating ghrelin,and feeding state determines plasma ghrelin-like immunoreactivity levels in humans[J]. The Journal of Clinical Endocrinology and Metabolism, 2001, 86(10):4753-4758.

[14]
WIERUP N, SVENSSON H, MULDER H, et al. The ghrelin cell:a novel developmentally regulated islet cell in the human pancreas[J]. Regulatory Peptides, 2002, 107(1/3):63-69.

[15]
KOJIMA M, KANGAWA K J. Ghrelin:structure and function[J]. Physiological Reviews, 2005, 85(2):495-522.

[16]
CUI H X, LÓPEZ M, RAHMOUNI K. The cellular and molecular bases of leptin and ghrelin resistance in obesity[J]. Nature Reviews.Endocrinology, 2017, 13(6):338-351.

[17]
COLLDÉN G, TSCHÖP M H, MÜLLER T D. Therapeutic potential of targeting the ghrelin pathway[J]. International Journal of Molecular Sciences, 2017, 18(4):798.

[18]
AKALU Y, MOLLA M D, DESSIE G, et al. Physiological effect of ghrelin on body systems[J]. International Journal of Endocrinology, 2020, 2020:1385138.

[19]
YIN X F, LI Y, XU G Y, et al. Ghrelin fluctuation,what determines its production?[J]. Acta Biochimica et Biophysica Sinica, 2009, 41(3):188-197.

[20]
SAKATA I, PARK W M, WALKER A K, et al. Glucose-mediated control of ghrelin release from primary cultures of gastric mucosal cells[J]. American Journal of Physiology:Endocrinology and Metabolism, 2012, 302(10):E1300-E1310.

[21]
BROGLIO F, GOTTERO C, VAN KOETSVELD P, et al. Acetylcholine regulates ghrelin secretion in humans[J]. The Journal of Clinical Endocrinology and Metabolism, 2004, 89(5):2429-2433.

[22]
HA Z Y, MATHEW S, YEONG K Y. Butyrylcholinesterase:a multifaceted pharmacological target and tool[J]. Current Protein & Peptide Science, 2020, 21(1):99-109.

[23]
IBRAHIM ABDALLA M M. Ghrelin—physiological functions and regulation[J]. European Endocrinology, 2015, 11(2):90-95.

[24]
DE VRIESE C, GREGOIRE F, LEMA-KISOKA R, et al. Ghrelin degradation by serum and tissue homogenates:identification of the cleavage sites[J]. Endocrinology, 2004, 145(11):4997-5005.

[25]
ANDERSON K C, HASAN F, GRAMMER E E, et al. Endogenous ghrelin levels and perception of hunger:a systematic review and Meta-analysis[J]. Advances in Nutrition, 2023, 14(5):1226-1236.

[26]
DU G M, LUO B P, HU Z H, et al. The effect of ghrelin O-acyltransferase inhibitor on gastric H+-K+-ATPase activity and GOAT/ghrelin system in gastric mucosal cells in vitro[J]. General and Comparative Endocrinology, 2018, 267:167-171.

[27]
YUAN F, ZHANG Q Q, DONG H Y, et al. Effects of des-acyl ghrelin on insulin sensitivity and macrophage polarization in adipose tissue[J]. Journal of Translational Internal Medicine, 2021, 9(2):84-97.

DOI PMID

[28]
TOSHINAI K, YAMAGUCHI H, SUN Y X, et al. Des-acyl ghrelin induces food intake by a mechanism independent of the growth hormone secretagogue receptor[J]. Endocrinology, 2006, 147(5):2306-2314.

PMID

[29]
DAVENPORT A P, BONNER T I, FOORD S M, et al. International union of pharmacology.LⅥ.Ghrelin receptor nomenclature,distribution,and function[J]. Pharmacological Reviews, 2005, 57(4):541-546.

[30]
ZHANG R Y, YANG G L, WANG Q Y, et al. Acylated ghrelin protects hippocampal neurons in pilocarpine-induced seizures of immature rats by inhibiting cell apoptosis[J]. Molecular Biology Reports, 2013, 40(1):51-58.

DOI PMID

[31]
XIAO X, BI M X, JIAO Q, et al. A new understanding of GHSR1a—independent of ghrelin activation[J]. Ageing Research Reviews, 2020, 64:101187.

[32]
MCKEE K K, PALYHA O C, FEIGHNER S D, et al. Molecular analysis of rat pituitary and hypothalamic growth hormone secretagogue receptors[J]. Molecular Endocrinolog, 1997, 11(4):415-423.

[33]
YOKOTE R, SATO M, MATSUBARA S, et al. Molecular cloning and gene expression of growth hormone-releasing peptide receptor in rat tissues[J]. Peptides, 1998, 19(1):15-20.

PMID

[34]
LIU S L, WANG X Y, ZHENG Q, et al. Sleep deprivation and central appetite regulation[J]. Nutrients, 2022, 14(24):5196.

[35]
GARCIA A, ALVAREZ C V, SMITH R G, et al. Regulation of Pit-1 expression by ghrelin and GHRP-6 through the GH secretagogue receptor[J]. Molecular Endocrinolog, 2001, 15(9):1484-1495.

[36]
FAULCONBRIDGE L F, CUMMINGS D E, KAPLAN J M, et al. Hyperphagic effects of brainstem ghrelin administration[J]. Diabetes, 2003, 52(9):2260-2265.

DOI PMID

[37]
YUAN P Q, WU S V, WANG L X, et al. The ghrelin agonist,HM01 activates central vagal and enteric cholinergic neurons and reverses gastric inflammatory and ileus responses in rats[J]. Neurogastroenterology and Motility, 2023, 35(5):e14561.

[38]
BALIVADA S, PAWAR H N, MONTGOMERY S, et al. Effect of ghrelin on regulation of splenic sympathetic nerve discharge[J]. Autonomic Neuroscience, 2016, 201:68-71.

[39]
DIANO S, FARR S A, BENOIT S C, et al. Ghrelin controls hippocampal spine synapse density and memory performance[J]. Nature Neuroscience, 2006, 9(3):381-388.

DOI PMID

[40]
SOHN J W. Network of hypothalamic neurons that control appetite[J]. BMB Reports, 2015, 48(4):229-233.

[41]
CHEN D F, LI Y Z, WU H W, et al. Ghrelin-ghrelin receptor (GSHR) pathway via endocannabinoid signal affects the expression of NPY to promote the food intake of siberian sturgeon (Acipenser baerii)[J]. Hormones and Behavior, 2022, 143:105199.

[42]
BRÜNING J C, FENSELAU H. Integrative neurocircuits that control metabolism and food intake[J]. Science, 2023, 381(6665):eabl7398.

[43]
SKOV L J, RATNER C, HANSEN N W, et al. RhoA in tyrosine hydroxylase neurones regulates food intake and body weight via altered sensitivity to peripheral hormones[J]. Journal of Neuroendocrinology, 2019, 31(7):e12761.

[44]
ZHANG X B, VAN DEN POL A N. Hypothalamic arcuate nucleus tyrosine hydroxylase neurons play orexigenic role in energy homeostasis[J]. Nature Neuroscience, 2016, 19(10):1341-1347.

DOI PMID

[45]
CAMPBELL J N, MACOSKO E Z, FENSELAU H, et al. A molecular census of arcuate hypothalamus and median eminence cell types[J]. Nature Neuroscience, 2017, 20(3):484-496.

DOI PMID

[46]
YOU C Z, ZHANG Y M, XU Y W, et al. Structural basis for motilin and erythromycin recognition by motilin receptor[J]. Science Advances, 2023, 9(11):eade9020.

[47]
LEVIN F, EDHOLM T, SCHMIDT P T, et al. Ghrelin stimulates gastric emptying and hunger in normal-weight humans[J]. The Journal of Clinical Endocrinology and Metabolism, 2006, 91(9):3296-3302.

[48]
ZIGMAN J M, JONES J E, LEE C E, et al. Expression of ghrelin receptor mRNA in the rat and the mouse brain[J]. The Journal of Comparative Neurology, 2006, 494(3):528-548.

[49]
LIU Y Z, WANG W W, SONG N, et al. Ghrelin bridges DMV neuropathology and GI dysfunction in the early stages of parkinson’s disease[J]. Advanced Science, 2022, 9(30):e2203020.

[50]
BARAZZONI R, GORTAN CAPPELLARI G, ZANETTI M, et al. Higher unacylated ghrelin and insulin sensitivity following dietary restriction and weight loss in obese humans[J]. Clinical Nutrition, 2021, 40(2):638-644.

DOI PMID

[51]
EGIDO E M, RODRIGUEZ-GALLARDO J, SILVESTRE R A, et al. Inhibitory effect of ghrelin on insulin and pancreatic somatostatin secretion[J]. European Journal of Endocrinology, 2002, 146(2):241-244.

PMID

[52]
SUN Y X, BUTTE N F, GARCIA J M, et al. Characterization of adult ghrelin and ghrelin receptor knockout mice under positive and negative energy balance[J]. Endocrinology, 2008, 149(2):843-850.

DOI PMID

[53]
ZIGMAN J M, NAKANO Y, COPPARI R, et al. Mice lacking ghrelin receptors resist the development of diet-induced obesity[J]. Journal of Clinical Investigation, 2005, 115(12):3564-3572.

DOI PMID

[54]
GUPTA D, BURSTEIN A W, SCHWALBE D C, et al. Ghrelin deletion and conditional ghrelin cell ablation increase pancreatic islet size in mice[J]. Journal of Clinical Investigation, 2023, 133(24):e169349.

[55]
SALEHI A, DORNONVILLE DE LA COUR C, HÅKANSON R, et al. Effects of ghrelin on insulin and glucagon secretion:a study of isolated pancreatic islets and intact mice[J]. Regulatory Peptides, 2004, 118(3):143-150.

[56]
DEZAKI K, YADA T. Status of ghrelin as an islet hormone and paracrine/autocrine regulator of insulin secretion[J]. Peptides, 2022, 148:170681.

[57]
CHUANG J C, SAKATA I, KOHNO D, et al. Ghrelin directly stimulates glucagon secretion from pancreatic α-cells[J]. Molecular Endocrinology, 2011, 25(9):1600-1611.

[58]
DEZAKI K, KAKEI M, YADA T. Ghrelin uses Galphai2 and activates voltage-dependent K+ channels to attenuate glucose-induced Ca2+ signaling and insulin release in islet beta-cells:novel signal transduction of ghrelin[J]. Diabetes, 2007, 56(9):2319-2327.

[59]
GRAY S M, PAGE L C, TONG J. Ghrelin regulation of glucose metabolism[J]. Journal of Neuroendocrinology, 2019, 31(7):e12705.

[60]
SOVETKINA A, NADIR R, FUNG J N M, et al. The physiological role of ghrelin in the regulation of energy and glucose homeostasis[J]. Cureus, 2020, 12(5):e7941.

[61]
CHURM R, CAPLIN S, BARRY J, et al. Acyl-ghrelin mediated lipid retention and inflammation in obesity-related type 2 diabetes[J]. Molecular and Cellular Endocrinology, 2019, 481:8-13.

DOI PMID

[62]
NOTARO N M, DYCK D J. Regulation of peripheral tissue substrate metabolism by the gut-derived hormone ghrelin[J]. Metabolism Open, 2024, 21:100279.

[63]
ZHU J, ZHOU T F, MENGGEN M, et al. Ghrelin regulating liver activity and its potential effects on liver fibrosis and echinococcosis[J]. Frontiers in Cellular and Infection Microbiology, 2023, 13:1324134.

[64]
SHI L, JIANG Z Y, ZHANG L. Childhood obesity and central precocious puberty[J]. Frontiers in Endocrinology, 2022, 13:1056871.

[65]
THEANDER-CARRILLO C, WIEDMER P, CETTOUR-ROSE P, et al. Ghrelin action in the brain controls adipocyte metabolism[J]. The Journal of Clinical Investigation, 2006, 116(7):1983-1993.

[66]
SANGIAO-ALVARELLOS S, VÁZQUEZ M J, VARELA L, et al. Central ghrelin regulates peripheral lipid metabolism in a growth hormone-independent fashion[J]. Endocrinology, 2009, 150(10):4562-4574.

[67]
QUIÑONES M, FERNØ J, AL-MASSADI O. Ghrelin and liver disease[J]. Reviews in Endocrine & Metabolic Disorders, 2020, 21(1):45-56.

[68]
RASINENI K, KUBIK J L, KNIGHT K L, et al. Ghrelin regulates adipose tissue metabolism:role in hepatic steatosis[J]. Chemico-Biological Interactions, 2020, 322:109059.

[69]
MIAO H, PAN H, WANG L J, et al. Ghrelin promotes proliferation and inhibits differentiation of 3T3-L1 and human primary preadipocytes[J]. Frontiers in Physiology, 2019, 10:1296.

DOI PMID

[70]
BASTO-SILVA C, BALBUENA-PECINO S, OLIVA-TELES A, et al. Gilthead seabream (Sparus aurata) in vitro adipogenesis and its endocrine regulation by leptin,ghrelin,and insulin[J]. Comparative Biochemistry and Physiology-Part A:Molecular & Integrative Physiology, 2020, 249:110772.

[71]
HOECHT E M, BUDD J M, NOTARO N M, et al. Stimulation of fat oxidation in rat muscle by unacylated ghrelin persists for 2-3 hours,but is independent of fatty acid transporter translocation[J]. Physiological Reports, 2023, 11(18):e15815.

[72]
CERVONE D T, LOVELL A J, DYCK D J. Regulation of adipose tissue and skeletal muscle substrate metabolism by the stomach-derived hormone,ghrelin[J]. Current Opinion in Pharmacology, 2020, 52:25-32.

[73]
ZATORSKI H, MOSINSKA P, STORR M, et al. Relamorelin and other ghrelin receptor agonists - future options for gastroparesis,functional dyspepsia and proton pump inhibitors-resistant non-erosive reflux disease[J]. Journal of Physiology and Pharmacology, 2017, 68(6):797-805.

[74]
BOWERS C Y, MOMANY F A, REYNOLDS G A, et al. On the in vitro and in vivo activity of a new synthetic hexapeptide that acts on the pituitary to specifically release growth hormone[J]. Endocrinology, 1984, 114(5):1537-1545.

[75]
SMITH R G. Development of growth hormone secretagogues[J]. Endocrine Reviews, 2005, 26(3):346-360.

PMID

[76]
RHODES L, ZOLLERS B, WOFFORD J A, et al. Capromorelin:a ghrelin receptor agonist and novel therapy for stimulation of appetite in dogs[J]. Veterinary Medicine and Science, 2018, 4(1):3-16.

[77]
CERON-ROMERO N, TAOFEEK N, THOMAS A, et al. Capromorelin,a ghrelin receptor agonist,increases feed intake and body weight gain in broiler chickens (Gallus gallus domesticus)[J]. Poultry Science, 2021, 100(8):101204.

[78]
BHARUCHA A E, KUDVA Y C, PRICHARD D O. Diabetic gastroparesis[J]. Endocrine Reviews, 2019, 40(5):1318-1352.

DOI PMID

[79]
QIN J, CAI Y, XU Z, et al. Molecular mechanism of agonism and inverse agonism in ghrelin receptor[J]. Nature Communications, 2022, 13(1):300.

DOI PMID

[80]
PETERS E G, PATTAMATTA M, SMEETS B J J, et al. The clinical and economical impact of postoperative ileus in patients undergoing colorectal surgery[J]. Neurogastroenterology and Motility, 2020, 32(8):e13862.

[81]
GROSS J D, KIM D W, ZHOU Y, et al. Discovery of a functionally selective ghrelin receptor (GHSR1a) ligand for modulating brain dopamine[J]. Proceedings of the National Academy of Sciences of the United States of America, 2022, 119(10):e2112397119.

[82]
LÉKÓ A H, GREGORY-FLORES A, MARCHETTE R C N, et al. Genetic or pharmacological GHSR blockade has sexually dimorphic effects in rodents on a high-fat diet[J]. Communications Biology, 2024, 7(1):632.

DOI PMID

[83]
LIANG Y, YIN W Z, YIN Y, et al. Ghrelin based therapy of metabolic diseases[J]. Current Medicinal Chemistry, 2021, 28(13):2565-2576.

[84]
TEZENAS DU MONTCEL C, DURIEZ P, CAO J X, et al. The role of dysregulated ghrelin/LEAP-2 balance in anorexia nervosa[J]. iScience, 2023, 26(11):107996.

[85]
LU X H, HUANG L L, HUANG Z X, et al. LEAP-2:an emerging endogenous ghrelin receptor antagonist in the pathophysiology of obesity[J]. Frontiers in Endocrinology, 2021, 12:717544.

[86]
HAGEMANN C A, JENSEN M S, HOLM S, et al. LEAP2 reduces postprandial glucose excursions and ad libitum food intake in healthy men[J]. Cell Reports Medicine, 2022, 3(4):100582.

[87]
WALD H S, GHIDEWON M Y, HAYES M R, et al. Hindbrain ghrelin and liver-expressed antimicrobial peptide 2,ligands for growth hormone secretagogue receptor,bidirectionally control food intake[J]. American Journal of Physiology:Regulatory, Integrative and Comparative Physiology, 2023, 324(4):R547-R555.

[88]
RICHARDSON R S, SULIMA A, RICE K C, et al. Pharmacological GHSR (ghrelin receptor) blockade reduces alcohol binge-like drinking in male and female mice[J]. Neuropharmacology, 2023, 238:109643.

[89]
DESCHAINE S L, HEDEGAARD M A, PINCE C L, et al. Initial pharmacological characterization of a major hydroxy metabolite of PF-5190457:inverse agonist activity of PF-6870961 at the ghrelin receptor[J]. The Journal of Pharmacology and Experimental Therapeutics, 2023, 386(2):117-128.

文章导航

/