研究论文

基于代谢组学研究宣汉黄牛、西杂牛和犏牛的代谢差异

  • 廖宇鹏 ,
  • 胡瑞 ,
  • 蒲启建 ,
  • 彭全辉 ,
  • 邹华围 ,
  • 张翔飞 ,
  • 邵亚群 ,
  • 曾少玉 ,
  • 王泳杰 ,
  • 裴朝曦 ,
  • 唐毅平 ,
  • 王之盛 , *
展开
  • 四川农业大学动物营养研究所,四川省牛低碳养殖与安全生产高校重点实验室,成都 611130
*王之盛,教授,博士生导师,E-mail:

廖宇鹏(1991—),男,四川什邡人,硕士研究生,从事反刍动物营养研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-06-25

  网络出版日期: 2024-12-12

基金资助

国家重点研发计划“牛羊节本增效的精细化饲养关键技术研发”(2017YFD0502005)

国家现代农业(肉牛/牦牛)产业技术体系(CARS-37)

Study on Metabolic Differences of Xuanhan Yellow Cattle, Simmental Crossbred Cattle and Cattle-Yak Based on Metabolomics

  • LIAO Yupeng ,
  • HU Rui ,
  • PU Qijian ,
  • PENG Quanhui ,
  • ZOU Huawei ,
  • ZHANG Xiangfei ,
  • SHAO Yaqun ,
  • ZENG Shaoyu ,
  • WANG Yongjie ,
  • PEI Zhaoxi ,
  • TANG Yiping ,
  • WANG Zhisheng , *
Expand
  • Key Laboratory of Bovine Low-Carbon Farming and Safe Production, Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
*professor, E-mail:

Received date: 2024-06-25

  Online published: 2024-12-12

摘要

本试验旨在研究宣汉黄牛、西杂牛和犏牛的代谢差异。选用年龄一致(22月龄)、体况相近、健康无病的宣汉黄牛、西杂牛(西门塔尔牛×宣汉黄牛)、犏牛(娟姗牛×麦洼牦牛)去势公牛各8头作为试验对象,在相同饲粮条件下进行为期120 d的饲养试验,采集3种肉牛的血清,并收集24 h尿液,采用气相色谱-质谱(GC-MS)方法测定血清、尿液中的代谢物,通过主成分分析(PCA)和偏最小二乘判别分析(PLS-DA)模式识别并寻找血清、尿液中差异代谢物,最后通过KEGG数据库进行代谢通路分析。结果显示:1)西杂牛的干物质采食量和平均日增重显著高于宣汉黄牛和犏牛(P<0.05);犏牛的单位体重采食量显著高于西杂牛和宣汉黄牛(P<0.05),料重比显著高于西杂牛(P<0.05)。宣汉黄牛血清中谷胱甘肽过氧化物酶活性和总抗氧化能力显著高于西杂牛和犏牛(P<0.05)。2)犏牛血清中苏氨酸、蛋氨酸和尿素等的浓度显著高于西杂牛[变量重要性投影值(VIP)>1.0和P<0.05],血清中谷氨酰胺、2-氨基丁酸和尿素等的浓度显著高于宣汉黄牛(VIP>1.0和P<0.05),血清中花生酸、花生四烯酸和十九烷酸等的浓度显著高于西杂牛(VIP>1.0和P<0.05);此外,犏牛尿液中油酸、亚油酸和硬脂酸等的浓度显著高于宣汉黄牛(VIP>1.0和P<0.05)。宣汉黄牛血清中α-生育酚、γ-生育酚、富马酸和尿液中琥珀酸的浓度显著高于西杂牛和犏牛(VIP>1.0和P<0.05),尿液中尿酸的浓度显著高于犏牛(VIP>1.0和P<0.05);犏牛血清中柠檬酸和α-酮戊二酸的浓度显著高于西杂牛(VIP>1.0和P<0.05)。综上可知,犏牛氨基酸和脂质分解代谢强于宣汉黄牛和西杂牛,宣汉黄牛抗氧化能力以及嘌呤和维生素E代谢强于西杂牛和犏牛,三羧酸循环强弱顺序为宣汉黄牛>犏牛>西杂牛。

本文引用格式

廖宇鹏 , 胡瑞 , 蒲启建 , 彭全辉 , 邹华围 , 张翔飞 , 邵亚群 , 曾少玉 , 王泳杰 , 裴朝曦 , 唐毅平 , 王之盛 . 基于代谢组学研究宣汉黄牛、西杂牛和犏牛的代谢差异[J]. 动物营养学报, 2024 , 36(12) : 7840 -7853 . DOI: 10.12418/CJAN2024.669

Abstract

This study was to determine the metabolic differences of Xuanhan yellow cattle, Simmental crossbred cattle and cattle-yak. Eight castrated bulls with the same age (22 months of age), similar body condition and no disease, Xuanhan yellow cattle, Simmental crossbred cattle (Simmental×Xuanhan yellow cattle) and cattle-yak (Jersey×Maiwa yak) were selected as experimental subjects under the same diet conditions for 120 days. The serum and 24-hour urine of three types of beef cattle were collected, and the metabolites in serum and urine were determined by gas chromatography-mass spectrometry (GC-MS) method. The differential metabolites in serum and urine were obtained by principal component analysis (PCA) and partial least squares discriminant analysis (PLS-DA), and finally metabolic pathway analysis was performed by KEGG database. The results showed as follows: 1) the dry matter intake (DMI) and average daily gain (ADG) of Simmental crossbred cattle were significantly higher than those of Xuanhan yellow cattle and cattle-yak (P<0.05); the feed intake per unit of body weight of cattle-yak was significantly higher than that of Xuanhan yellow cattle and Simmental crossbred cattle (P<0.05), and the feed/gain ratio of cattle-yak was significantly higher than that of Simmental crossbred cattle (P<0.05).The glutathione peroxidase (GSH-Px) activity and total antioxidant capacity (T-AOC) in serum of Xuanhan yellow cattle were significantly higher than those of Simmental crossbred cattle and cattle-yak (P<0.05). 2) The concentrations of threonine, methionine, urea, etc. in serum of cattle-yak were significantly higher than those odf Simmental crossbred cattle [variable importance in the projection (VIP)>1.0 and P<0.05], the concentrations of glutamine, 2-amino-butyric acid, urea, etc. in serum of cattle-yak were significantly higher than those of Xuanhan yellow cattle (VIP>1.0 and P<0.05), and the concentrations of eicosanoic acid, arachidonic acid, nonadecanoic acid, etc. in serum of cattle-yak were significantly higher than those of Simmental crossbred cattle (VIP>1.0 and P<0.05); in addition, the concentrations of oleic acid, linoleic acid, octadecanoic acid, etc.in urine of cattle-yak were significantly higher than those of Xuanhan yellow cattle (VIP>1.0 and P<0.05). The concentrations of α-tocopherol, γ-tocophero, fumaric acid in serum and succinic acid in urine of Xuanhan yellow cattle were significantly higher than those of Simmental crossbred cattle and cattle-yak (VIP>1.0 and P<0.05), and the concentration of uric acid in urine of Xuanhan yellow cattle was significantly higher than that of Simmental crossbred cattle and cattle-yak (VIP>1.0 and P<0.05); the concentrations of citric acid and α-ketoglutaric acid of cattle-yak were significantly higher than those of Simmental crossbred cattle (VIP>1.0 and P<0.05). In conclusion, amino acid and lipid catabolisms are higher in the cattle-yak comparison with the Xuanhan yellow cattle and Simmental crossbred cattle, the antioxidant capacity and purine and vitamin E metabolism are higher in the Xuanhan yellow cattle comparison with the Simmental crossbred cattle and cattle-yak, and the order of the tricarboxylic acid cycle is: Xuanhan yellow cattle>cattle-yak>Simmental crossbred cattle.

根据国家肉牛牦牛体系发布《2023年度肉牛牦牛产业与技术发展报告》显示,我国牛肉产量为753万t,而牛肉消费量为1 108万t,我国牛肉自给率不足68%,牛肉进口量世界第一,而进口牛肉以冷冻牛肉为主,价格低廉,主要冲击国内低端牛肉市场。随着居民收入水平的升高和对肉类消费的转变,品质牛肉消费将愈发受到人们的青睐。牛肉品质受基因型(品种)影响较大,同时品种也是影响畜禽众多方面的一个自然因素[1-2],因此要利用我国丰富多样的牛种遗传资源进行差异化生产。宣汉黄牛是一种生活在我国南方海拔较低的丘陵地带的地方优良小型肉用品种,其具有单位能量消耗少、耐粗饲、适应性强等特点;西杂牛是我国广泛养殖的优良大型肉用杂交品系,其目的是为提高我国地方黄牛的生产性能,但饲养成本高,产品低端同质化,对进口牛肉抵御力差;犏牛则是牦牛与其他普通牛种杂交而来,其与牦牛一样能适应高原地区低温缺氧饥饿的生态环境。本课题前期研究了这3种肉牛产肉性能及牛肉品质的差异[3-4]。在长期进化过程中,每种牛为了适应当地地域环境都有其独特的代谢特性,因此,要开展差异化高效饲养就需要了解肉牛的基础代谢,而代谢组学是系统生物学中一种新兴的研究领域和分析方法,已经广泛用于研究肉牛营养调控与瘤胃液代谢、血液代谢、甲烷排放、牛肉品质等的相互关系[5-10]。目前有关宣汉黄牛、西杂牛和犏牛代谢差异的研究还未见报道,本试验拟通过代谢组学方法研究宣汉黄牛、西杂牛和犏牛血清、尿液中的代谢物,阐明不同肉牛为适应不同环境而具有的代谢差异,为我国不同地区合理选择牛源指导差异化育肥提供数据参考。

1 材料与方法

1.1 试验设计

本试验方案经四川农业大学实验动物福利与伦理委员会批准(编号:20220178)。试验选用年龄一致(22月龄)、体况相近、健康无病的宣汉黄牛(XHC)、西杂牛(西门塔尔牛×宣汉黄牛,SXC)、犏牛(娟姗牛×麦洼牦牛,JMY)去势公牛各8头作为试验对象,每头牛作为1个重复。试验共120 d,其中预试期30 d,正试期90 d。

1.2 基础饲粮

基础饲粮根据我国《肉牛饲养标准》(NY/T 815—2004)中450 kg体重、日增重1 kg肉牛营养推荐值配制,精粗比为6∶4。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 43.20
麦麸Wheat bran 7.20
豆粕Soybean meal 2.40
菜籽粕Rapeseed meal 4.38
白酒糟White distiller’s grains 20.00
稻草Rice straw 20.00
磷酸氢钙CaHPO4 0.06
碳酸钙CaCO3 0.18
小苏打NaHCO3 1.50
食盐NaCl 0.48
预混料Premix1) 0.60
合计Total 100.00
营养水平Nutrient levels2)
综合净能NEmf/(MJ/kg) 6.52
粗蛋白质CP 12.12
中性洗涤纤维NDF 37.69
酸性洗涤纤维ADF 26.32
钙Ca 0.55
总磷TP 0.34

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 5 500 IU,VD 687.5 IU,VE 150 IU,Fe 83.33 mg,Cu 16.67 mg,Mn 33.33 mg,Zn 50 mg,I 0.83 mg,Se 0.33 mg,Co 0.17 mg。

2)综合净能为计算值,其余指标为实测值。NEmf= DE×Kmf;Kmf=Km×Kf×1.5/(Kf+0.5×Km)。式中:NEmf为综合净能;Kmf为消化能转化为净能的效率;DE为饲粮的消化能;1.5为饲养水平值;Km为消化能转化为维持净能的效率;Kf为消化能转化为增重净能的效率,该计算公式参考《肉牛饲养标准》(NY/T 815—2004)。Comprehensive net energy was a calculated value, while the other nutrient levels were measured values. NEmf=DE×Kmf; Kmf=Km×Kf×1.5/(Kf+0.5×Km). In the formulas, NEmf was the comprehensive net energy; Kmf was the conversion efficiency of digestible energy to net energy; DE was the digestible energy of the diet; 1.5 was the feeding level value; Km was the conversion efficiency of digestible energy to the net energy for maintenance; Kf was the conversion efficiency of digestible energy to the net energy for gain. The calculation formula was based on the Chinese Feeding Standard of Beef Cattle (NY/T 815—2004).

1.3 饲养管理

饲养试验在四川农业大学试验场进行,试验牛单栏饲养,每天定时(08:00和16:00)饲喂2次,自由采食和饮水。试验前对各肉牛进行编号,免疫驱虫,并定时打扫牛舍卫生和消毒。

1.4 样品采集

正式试验第1天和第90天08:00,对肉牛进行空腹称重。
正式试验第90天晨饲前颈静脉采集血液,放在带有冰袋的泡沫盒中,静置30 min后,经离心机4 ℃、1 006.2×g离心10 min,吸取血清放入预冷的离心管,之后转入-80 ℃超低温冰箱保存待测。
尿液采集时间同血液,采用自制尿袋收集试验牛只一整天尿液,混匀,取20 mL经离心机4 ℃、1 788.8×g离心10 min,吸取上清液放入预冷的离心管,之后转入-80 ℃超低温冰箱保存待测。

1.5 测定指标和方法

1.5.1 生长性能及血清抗氧化指标测定

每天记录各试验牛精、粗料实际饲喂量,并换算成干物质采食量(DMI)和单位体重采食量,计算各组试验牛的平均日增重(ADG)和料重比(F/G)。参考AOAC(2002)[11]的方法,测定饲粮中粗蛋白质(CP)、粗脂肪(EE)、酸性洗涤纤维(ADF)、钙(Ca)及总磷(TP)含量;参考Van Soest等[12]的方法,采用Foss纤维仪(Fibertec 2010,丹麦)测定中性洗涤纤维(NDF)含量。
采用酶联免疫吸附试验(ELISA)法测定血清中超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性及丙二醛(MDA)含量、总抗氧化能力(T-AOC),试剂盒购于南京建成生物工程研究所。
用Excel 2013对以上指标所得测定数据进行初步处理,采用SPSS 16.0统计软件对数据进行单因素方差分析(one-way ANOVA),并用Duncan法进行多重比较,结果用平均值±标准差表示,P<0.05为差异显著。

1.5.2 血清、尿液代谢组学分析

1.5.2.1 血清、尿液预处理

血清和尿液样本的萃取和衍生化程序参照前人发表的文章[13-14]进行,从每个待测样本各取20 μL混合成质控样本(quality control,QC)[15],用剩余待测样本进行气相色谱-质谱(GC-MS)检测。

1.5.2.2 GC-MS分析(色谱和质谱条件)

气相色谱采用HP-5MS毛细管柱(5%苯/95%甲基聚硅氧烷,30 m×250 μm,0.25 μm,Agilent J & W Scientific,美国)以1 mL/min的恒流氦气来分离衍生化物质,1 μL样品以分流比20∶1的方式通过自动进样器注入。注射温度为280 ℃,接口设置为150 ℃,离子源调整到230 ℃。升温程序以60 ℃为初始温度,持续2 min,以10 ℃/min的速率上升到300 ℃,停留5 min。质谱采用的是质荷比(m/z)范围为35~750的全扫描方法。

1.5.2.3 数据预处理

将GC-MS分析得到各组血清、尿液的原始数据导入Agilent MSD ChemStation工作站转换成netCDF格式[16],利用R软件的XCMS程序包进行预处理,得到数据矩阵。结合AMDIS程序进行代谢物的注释,注释所用数据库为National Institute of Standards and Technology(NIST)商业数据库和Wiley Registry代谢组数据库,其中代谢物烷烃保留指数根据The Golm Metabolome Database(GMD)(http://gmd.mpimp-golm.mpg.de/)提供的保留指数用于进一步的物质定性,同时大部分物质由标准品进行进一步确认,导出数据至SIMCA-P 13.0软件包进行主成分分析(principal component analysis,PCA),为了实现各组样品的最大分离,采用偏最小二乘判别分析(partial least squares discriminant analysis,PLS-DA)方法进行有监督的数据分析,模型采用交叉验证(cross validation)来优化,并将得到的R2X(模型X变量的可解释度)、R2Y(模型Y变量的可解释度)和Q2(模型的可预测度)等参数对模型有效性进行评判。此外,每个模型都进行了100次的置换检验(permutation test)来检验模型的可信度。

1.5.2.4 差异代谢物的筛选与代谢途径分析

首先,利用PLS-DA模型来识别各组间的差异代谢物,变量重要性投影值(variable importance in the projection,VIP)大于1.0的变量被认为对模型分组贡献较大,予以保留,同时采用SPSS 16.0统计软件对上述变量进行t检验,进一步筛选出P<0.05的变量。只有同时满足VIP>1.0和P<0.05这2个条件才可认为是组间的差异代谢物。然后,将筛选的差异代谢物通过SPSS 16.0软件进行受试者工作特征(receiver operating characteristic,ROC)曲线分析,计算各差异代谢物的曲线下面积(area under the curve,AUC)面积。最后,将筛选的差异代谢物输入KEGG数据库(http://www.kegg.com)查询相关的代谢通路,并进行进一步分析。

2 结果与分析

2.1 宣汉黄牛、西杂牛和犏牛生长性能的差异

表2可知,西杂牛的DMI和ADG显著高于宣汉黄牛和犏牛(P<0.05),F/G显著低于犏牛(P<0.05);犏牛的单位体重采食量显著高于西杂牛和宣汉黄牛(P<0.05)。
表2 宣汉黄牛、西杂牛和犏牛生长性能的差异

Table 2 Differences on growth performance of XHC, SXC and JMY

项目Items 宣汉黄牛XHC 西杂牛SXC 犏牛JMY
干物质采食量DMI/kg 7.29±1.26b 9.46±0.86a 7.55±0.77b
单位体重采食量Feed intake per unit of BW/% 1.97±0.11b 2.02±0.12b 2.12±0.20a
平均日增重ADG/kg 0.75±0.12b 0.98±0.20a 0.77±0.04b
料重比F/G 9.72±1.87ab 9.65±0.93b 9.79±0.84a

同行数据无字母标注或标注相同小写字母表示差异不显著(P>0.05),标注不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no small letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 宣汉黄牛、西杂牛和犏牛血清抗氧化指标的差异

表3可知,宣汉黄牛血清GSH-Px活性和T-AOC显著高于西杂牛和犏牛(P<0.05)。
表3 宣汉黄牛、西杂牛和犏牛血清抗氧化指标的差异

Table 3 Differences on serum antioxidant indexes of XHC, SXC and JMY

项目Items 宣汉黄牛XHC 西杂牛SXC 犏牛JMY
丙二醛MDA/(nmol/mL) 13.59±4.16 14.46±2.72 14.24±3.45
超氧化物歧化酶SOD/(U/mL) 359.08±51.51 360.55±75.26 305.78±83.73
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 802.86±113.77a 676.22±63.23b 641.17±79.83b
总抗氧化能力T-AOC/(U/mL) 34.29±5.76a 25.99±2.12b 23.36±2.49b

2.3 GC-MS数据可靠性验证

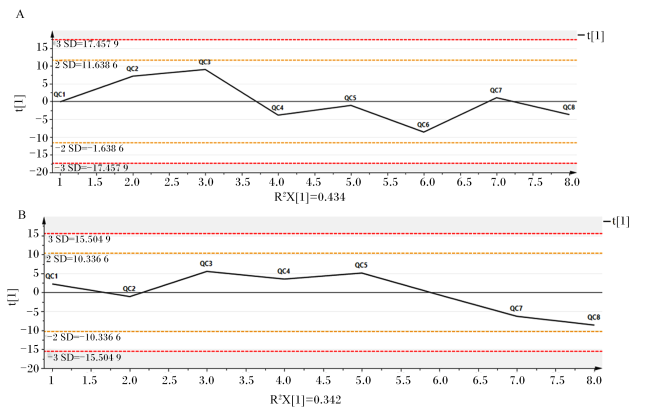
在进行基于GC-MS技术的代谢组学研究时,由于气谱柱平衡及质谱仪器的响应能力会波动,从而影响结果的可靠性,因此需要将分析误差控制在一定范围,为了获得可靠且高质量的代谢组学数据,需进行质量控制工作。本研究在正式检测前,首先连续进行5次QC样本的测定,使系统达到平衡,之后每隔8个样本进行1次QC样本的检测,血清、尿液样品分别完成了8次QC样本的GC-MS检测与分析。如图1所示,血清和尿液所有QC样本的GC-MS分析误差均控制在2倍标准差(2 SD)以内,表明GC-MS分析方法稳定性良好,检测时系统误差较小,所获得的GC-MS谱可靠[17]。血清、尿液样品检测后得到的数据经分析获得的差异主要来源于血清、尿液代谢产物的差异,而非GC-MS分析系统的误差。
图1 质控样本的主成分分析折线图(A:血清;B:尿液)

Fig.1 Broken-line plots of principal component analysis of QC samples (A: serum; B: urine)

2.4 宣汉黄牛、西杂牛和犏牛血清和尿液中差异代谢物分析结果

2.4.1 PCA、PLS-DA模式识别分析
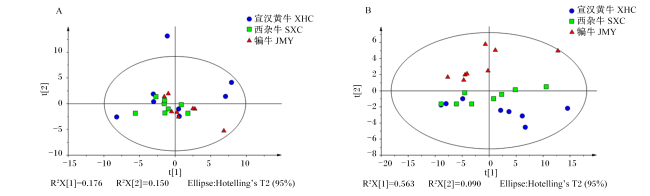
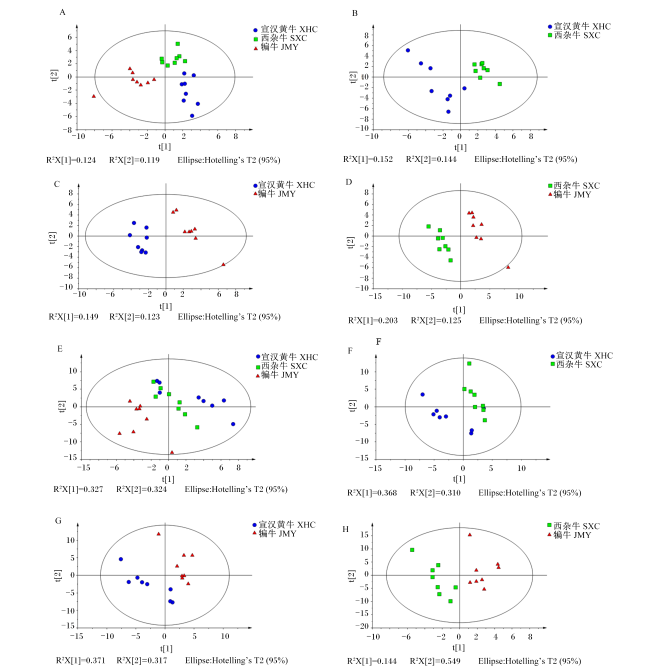
首先对血清GC-MS色谱数据矩阵进行PCA,在PCA图可以看到3种牛没有完全分开(图2-A),因此,对于血清样本我们主要集中于PLS-DA,通过PLS-DA,发现3种牛完全分离(图3-A),模型的质量参数为R2X=0.550、R2Y=0.935、Q2=0.617,由参数结果可知,该模型X变量(自变量)的可解释度为55.0%,模型Y变量(因变量)的可解释度为93.5%,模型的可预测度为61.7%,模型建立成功。PCA、PLS-DA多元统计结果表明宣汉黄牛、西杂牛、犏牛血清代谢轮廓显著不同。此外,为了更加全面地探讨宣汉黄牛、西杂牛和犏牛中任2种牛的代谢状态和差异代谢物,PLS-DA也运用于任2种牛的分析,3个比对组(宣汉黄牛vs.西杂牛、宣汉黄牛vs.犏牛、西杂牛vs.犏牛)中不同组别都完全分离(图3-B图3-C图3-D),其模型的质量参数分别为R2X=0.295、R2Y=0.922、Q2=0.563,R2X=0.296、R2Y=0.918、Q2=0.554,R2X=0.329、R2Y=0.968、Q2=0.839,这些质量参数表明模型较好。
图2 血清和尿液代谢轮廓的PCA得分图

A:宣汉黄牛、西杂牛和犏牛血清;B:宣汉黄牛、西杂牛和犏牛尿液。

Fig.2 PCA score plots based on serum and urine metabolic profilings

A: serum from XHC, SXC and JMY; B: urine from XHC, SXC and JMY.

图3 血清和尿液代谢轮廓的PLS-DA得分图

A:宣汉黄牛、西杂牛和犏牛血清;B:宣汉黄牛和西杂牛血清,C:宣汉黄牛和犏牛血清,D:西杂牛和犏牛血清,E:宣汉黄牛、西杂牛和犏牛尿液,F:宣汉黄牛和西杂牛尿液,G:宣汉黄牛和犏牛尿液,H:西杂牛和犏牛尿液。

Fig.3 PLS-DA score plots based on serum and urine metabolic profilings

A: serum from XHC, SXC and JMY; B: serum from XHC and SXC; C: serum from XHC and JMY; D: serum from SXC and JMY; E: urine from XHC, SXC and JMY; F: urine from XHC and SXC; G: urine from XHC and JMY; H: urine from SXC and JMY.

尿液样本的分析流程同血清样本,在PCA图(图2-B)中可以看到3种牛明显分离,进一步通过PLS-DA,同样发现3种牛明显分离(图3-E),其模型的质量参数为R2X=0.700、R2Y=0.739、Q2=0.471,表明模型建立成功。PCA、PLS-DA多元统计结果表明宣汉黄牛、西杂牛、犏牛尿液代谢轮廓显著不同。同样,PLS-DA也运用于宣汉黄牛、西杂牛和犏牛中任2种牛的分析,3个比对组(宣汉黄牛vs.西杂牛、宣汉黄牛vs.犏牛、西杂牛vs.犏牛)中不同组别都完全分离(图3-F图3-G图3-H),其模型的质量参数分别为R2X=0.678、R2Y=0.688、Q2=0.334,R2X=0.689、R2Y=0.853、Q2=0.710,R2X=0.693、R2Y=0.849、Q2=0.312,这些质量参数表明模型较好。

2.4.2 差异代谢物的筛选

通过进一步对PLS-DA的结果进行分析,结合VIP>1.0和P<0.05筛选各比对组的差异代谢物。由表4可知,在血清中共筛选出24个差异代谢物,以宣汉黄牛为对照,在西杂牛中筛选出了6种差异代谢物,在犏牛中筛选出了11种差异代谢物;以西杂牛为对照,在犏牛中筛选出了16种差异代谢物。由表5可知,在尿液中共筛选出10个差异代谢物,以宣汉黄牛为对照,在西杂牛中筛选出了2种差异代谢物,在犏牛中筛选出了7种差异代谢物;以西杂牛为对照,在犏牛中筛选出了8种差异代谢物。
表4 宣汉黄牛、西杂牛和犏牛血清差异代谢物的确定

Table 4 Identification of different metabolites in serum from XHC, SXC and JMY

代谢物
Metabolites
XHC vs. SXC XHC vs. JMY SXC vs. JMY 代谢途径
Metabolic pathway
VIP P FC VIP P FC VIP P FC
蛋氨酸Methionine 1.62 0.012 1.20 半胱氨酸和蛋氨酸代谢Cysteine and methionine metabolism
半胱氨酸Cysteine 1.63 0.011 1.27 半胱氨酸和蛋氨酸代谢Cysteine and methionine metabolism
谷氨酰胺Glutamine 1.79 0.013 1.62 谷氨酰胺和谷氨酸代谢
D-glutamine and D-glutamate metabolism
2-氨基丁酸2-amino-butyric acid 1.68 0.021 1.78 1.87 0.002 1.61 谷氨酸代谢Glutamate metabolism
苏氨酸Threonine 1.33 0.047 1.18 苯丙氨酸和酪氨酸代谢Phenylalanine and tyrosine metabolism
4-羟基脯氨酸4-hydroxyproline 1.86 0.022 1.37 1.80 0.012 1.52 精氨酸和脯氨酸代谢Arginine and proline metabolism
肌酐Creatinine 1.88 0.008 1.40 1.57 0.015 1.33 精氨酸和脯氨酸代谢Arginine and proline metabolism
尿素Urea 2.08 0.002 1.26 1.94 0.001 1.27 精氨酸和脯氨酸代谢Arginine and proline metabolism
花生四烯酸Arachidonic acid 2.15 <0.001 2.25 脂质代谢Fatty acid metabolism
十九烷酸Nonadecanoic acid 1.85 0.003 1.29 脂质代谢Fatty acid metabolism
花生酸Eicosanoic acid 1.47 0.025 1.50 脂质代谢Fatty acid metabolism
胆固醇Cholesterol 1.38 0.037 0.80 类固醇合成Steroid biosynthesis
硬脂醇Octadecanol 1.37 0.039 1.62 肌醇磷脂代谢Inositol phosphate metabolism
肌醇Myo-inositol 2.05 0.010 1.21 1.95 0.005 1.44 肌醇磷脂代谢Inositol phosphate metabolism
柠檬酸Citric acid 1.55 0.017 1.30 三羧酸循环TCA cycle
富马酸Fumaric acid 2.04 0.010 0.27 1.87 0.008 0.25 三羧酸循环TCA cycle
α-酮戊二酸α-ketoglutaric acid 1.44 0.030 1.25 三羧酸循环TCA cycle
γ-生育酚γ-tocopherol 2.88 <0.001 0.48 2.47 <0.001 0.53 维生素E代谢Vitamin E metabolism
α-生育酚α-tocopherol 1.67 0.044 0.70 1.81 0.012 0.61 维生素E代谢Vitamin E metabolism
尿苷Uridine 1.45 0.027 1.53 尿素代谢Uric acid metabolism
草酸Oxalic acid 1.65 0.010 1.44 其他Others
1-单十八碳烯酰酸甘油
1-monooctadecanoylglycerol
1.49 0.045 1.25 1.52 0.019 1.34 其他Others
2-羰基异己酸
2-oxoisocaproic acid
1.92 0.006 1.27 其他Others
单棕榈油甘油酯
1-monohexadecanoylglycerol
1.68 0.042 0.86 其他Others

XHC:宣汉黄牛 Xuanhan yellow cattle;SXC:西杂牛 Simmental crossbred cattle;JMY:犏牛cattle-yak;VIP:变量重要性投影值 variable importance in the projection;P:PP-value;FC:差异倍数 fold change。下表同 the same as below。

表5 宣汉黄牛、西杂牛和犏牛尿液差异代谢物的确定

Table 5 Identification of different metabolites in urine from XHC, SXC and JMY

代谢物
Metabolites
XHC vs. SXC XHC vs. JMY SXC vs. JMY 代谢途径
Metabolic pathway
VIP P FC VIP P FC VIP P FC
棕榈酸Palmitic acid 2.19 0.003 1.22 2.79 <0.001 1.27 脂质代谢Fatty acid metabolism
硬脂酸Octadecanoic acid 2.51 <0.001 1.76 2.77 <0.001 1.77 脂质代谢Fatty acid metabolism
油酸Oleic acid 2.38 <0.001 3.37 2.34 0.003 2.41 脂质代谢Fatty acid metabolism
亚油酸Linoleic acid 2.08 0.005 3.11 2.35 0.003 2.90 脂质代谢Fatty acid metabolism
琥珀酸Succinic acid 2.15 0.034 0.44 2.00 0.008 0.25 三羧酸循环TCA cycle
苯甲酸Benzoic acid 2.69 0.005 0.45 1.87 0.028 2.35 其他Others
烟酸Nicotinic acid 1.75 0.043 1.82 烟酸盐和烟酸胺代谢
Nicotinate and nicotinamide metabolism
尿酸Uric acid 1.78 0.021 0.53 2.39 0.003 0.58 嘌呤代谢Purine metabolism
1,3-二叔丁基苯
1,3-di-tert-butylbenzene
1.90 0.012 0.90 1.83 0.033 0.97 其他Others

2.4.3 ROC曲线评价各比对组差异代谢物的诊断价值

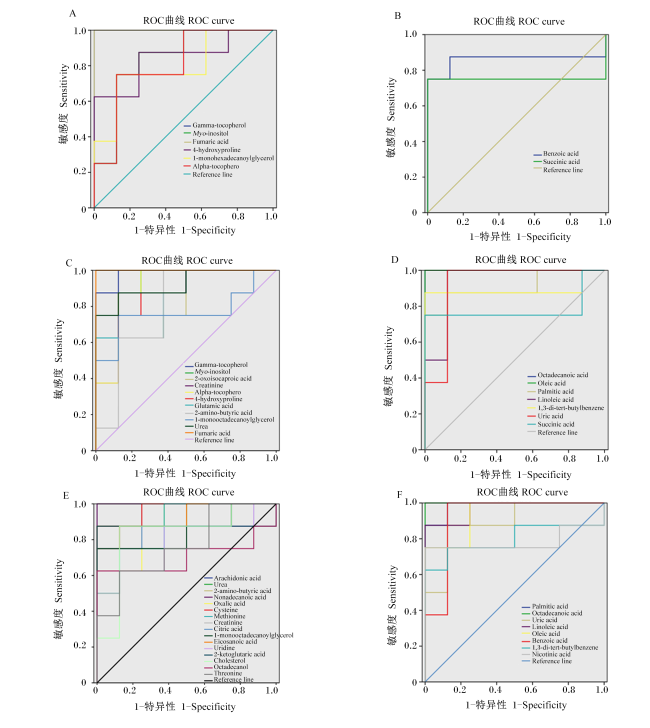
为了评价各比对组所筛选出差异代谢物的诊断能力,将各比对组所获得的差异代谢物进行ROC曲线分析。如图4所示,差异代谢物的AUC在0.70~1.00,展示了良好的诊断价值[18]
图4 宣汉黄牛、西杂牛和犏牛血清和尿液差异代谢物的ROC分析

A:宣汉黄牛vs.西杂牛的血清差异代谢物的ROC分析 ROC analysis of different metabolites in serum from XHC vs. SXC;B:宣汉黄牛vs.西杂牛的尿液差异代谢物的ROC分析 ROC analysis of different metabolites in urine from XHC vs. SXC;C:宣汉黄牛vs.犏牛的血清差异代谢物的ROC分析 ROC analysis of different metabolites in serum from XHC vs. JMY;D:宣汉黄牛vs.犏牛的尿液差异代谢物的ROC分析 ROC analysis of different metabolites in urine from XHC vs. JMY;E:西杂牛vs.犏牛的血清差异代谢物的ROC分析 ROC analysis of different metabolites in serum from SXC vs. JMY;F:西杂牛vs.犏牛尿液的差异代谢物的ROC分析 ROC analysis of different metabolites in urine from SXC vs. JMY。

Gamma-tocopherol:γ-生育酚;Myo-inositol:肌醇;Fumaric acid:富马酸;4-hydroxyproline:4-羟脯氨酸;1-monohexadecanoylglycerol:单棕榈油甘油酯;Alpha-tocopherol:α-生育酚;Benzoic acid:苯甲酸;Succinic acid:琥珀酸;2-oxoisocaproic acid:2-羰基异己酸;Creatinine:肌酐;Glutamic acid:谷氨酸;2-amino-butyric acid:2-氨基丁酸;1-monooctadecanoylglycerol:1-单十八碳烯酰酸甘油;Urea:尿素;Octadecanoic acid:硬脂酸;Oleic acid:油酸;Palmitic acid:棕榈酸;Linoleic acid:亚油酸;1,3-di-tert-butylbenzene:1,3-二叔丁基苯;Uric acid:尿酸;Arachidonic acid:花生四烯酸;Nonadecanoic acid:十九烷酸;Oxalic acid:草酸;Cysteine:半胱氨酸;Methionine:蛋氨酸;Citric acid:柠檬酸;Eicosanoic acid:花生酸;Uridine:尿苷;2-ketoglutaric acid:α-酮戊二酸;Cholesterol:胆固醇;Octadecanol:硬脂醇;Threonine:苏氨酸;Nicotinic acid:烟酸;Reference line:参考线。

Fig.4 ROC analysis of different metabolites in serum and urinefrom XHC, SXC and JMY

2.4.4 代谢途径的整合

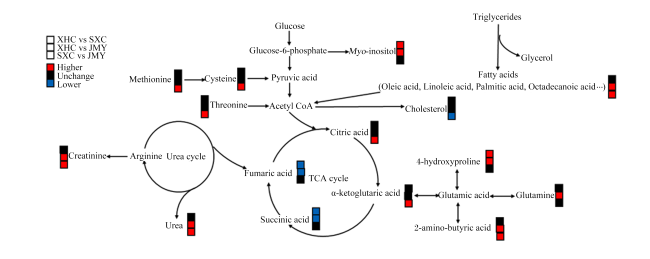
结合各比对组血清和尿液筛选的差异代谢物,并通过KEGG数据库和文献进行代谢通路分析。由表4表5可知,这些差异代谢物涉及到多种生物化学途径,如氨基酸代谢、脂肪酸代谢、磷酸肌醇代谢、维生素E代谢、嘧啶代谢、三羧酸循环等,为了更直观显示这些代谢物之间的相关性,最后将这些结果结合起来并绘制成代谢网络图(图5)。
图5 宣汉黄牛、西杂牛和犏牛的差异代谢途径

红色标记代表该代谢物浓度后一种牛显著高于前一种牛,黑色代表标记代表该代谢物浓度在2种牛间差异不显著,蓝色标记代表该代谢物浓度后一种牛显著低于前一牛。Red-colored symbols represent the concentration of this metabolite is significantly higher in latter cattle than in former cattle, black-colored symbols represent there was no significant difference in the concentration of this metabolite between the two cattle, while blue-colored symbols indicate the concentration of this metabolite is significantly lower in latter cattle than in former cattle.

Glucose:葡萄糖;Glucose-6-phosphate:6-磷酸葡萄糖;Myo-inositol:肌醇;Pyruvic acid:丙酮酸;Cysteine:半胱氨酸;Methionine:蛋氨酸;Acetyl CoA:乙酰辅酶A;Threonine:苏氨酸;Citric acid:柠檬酸;α-ketoglutaric acid:α-酮戊二酸;Succinic acid:琥珀酸;Fumaric acid:富马酸;Arginine:精氨酸;Urea:尿素;Triglycerides:甘油三酯;Glycerol:甘油;Fatty acids:脂肪酸;Oleic acid:油酸;Linoleic acid:亚油酸;Palmitic acid:棕榈酸;Octadecanoic acid:硬脂酸;Cholesterol:胆固醇;4-hydroxyproline:4-羟脯氨酸;Glutamic acid:谷氨酸;Glutamine:谷氨酰胺;2-amino-butyric acid:2-氨基丁酸;TCA cycle:三羧酸循环;Urea cycle:尿素循环。

Fig.5 Different metabolic pathways from XHC, SXC and JMY

3 讨论

3.1 宣汉黄牛、西杂牛和犏牛生长性能和抗氧化性能的差异

本试验中,西杂牛的DMI和ADG显著高于宣汉黄牛和犏牛,犏牛的单位体重采食量显著高于西杂牛和宣汉黄牛,这与蒲启建等[19]的研究结果一致。西杂牛体型较大,具有外源血缘,这可能是其生长性能较好的原因。同时,宣汉黄牛血清GSH-Px活性和T-AOC显著高于西杂牛和犏牛,宣汉黄牛血清α-生育酚(α-tocopherol)和γ-生育酚(γ-tocopherol)浓度显著高于西杂牛和犏牛。维生素E是一种脂溶性维生素,其水解产物为生育酚,是最主要的抗氧化剂之一。此外,本研究还发现宣汉黄牛尿液中尿酸(uric acid)浓度显著高于犏牛,与Wang等[20]研究发现的本地黄牛尿液中尿酸浓度高于牦牛的结果一致。尿酸是嘌呤代谢的产物,由次黄嘌呤、黄嘌呤在黄嘌呤氧化酶的作用下生成的,尿酸还具有抗氧化和降低细胞DNA损失的功能[21]。综上所述,宣汉黄牛机体抗氧化能力较西杂牛和犏牛强,推测这可能与地方品种适应性强有关。

3.2 宣汉黄牛、西杂牛和犏牛氨基酸代谢的差异

本研究发现,犏牛血清中苏氨酸(threonine)、蛋氨酸(methionine)、半胱氨酸(cysteine)、2-氨基丁酸(2-amino-butyric acid)、肌酐(creatinine)、尿素(urea)的浓度显著高于西杂牛。苏氨酸在动物体内的代谢途径和其他氨基酸不同,是唯一不经过脱氨基作用和转氨基作用,但可通过苏氨酸脱氢酶和苏氨酸醛羧酶代谢生成乙酰辅酶A,进入三羧酸循环[22]。蛋氨酸是动物的必需氨基酸,可生成半胱氨酸进而转变为丙酮酸[23]。本研究还发现,犏牛血清中谷氨酰胺(glutamine)、2-氨基丁酸(2-amino-butyric acid)、4-羟基脯氨酸(4-hydroxyproline)、肌酐(creatinine)、尿素(urea)的浓度显著高于宣汉黄牛。谷氨酰胺可降解为谷氨酸,从而代谢为α-酮戊二酸参与三羧酸循环,谷氨酰胺还可作为谷胱甘肽的前体参与氧化应激反应[24]。脯氨酸是胶原蛋白的重要组成部分,是由谷氨酸衍生而来[25]。4-羟基脯氨酸是由脯氨酸羟基化而来[26]。肌酐是磷酸肌酸的降解产物,犏牛更高浓度的肌酐可能暗示其骨骼肌磷酸肌酸利用和能量消耗更高[27]。尿素是大多数哺乳动物氨基酸或胺类物质分解代谢的主要终产物,犏牛血清中更高浓度的尿素表明其蛋白质周转率更快,氨基酸代谢更强。综上所述,犏牛蛋白质周转率及氨基酸代谢较宣汉黄牛和西杂牛强,其原因可能是犏牛带牦牛血统,牦牛主要通过自然放牧采食天然牧草获取营养物质,但高原独特气候导致牧草枯草期较长,牦牛长期处于营养缺乏状态,在长期的营养生态逆境选择压力下,牦牛对低温和饥饿可能形成了一种有效的适应机制,并通过生理和营养代谢加以调节[28]。大量研究表明,牦牛比本地黄牛和其他低海拔反刍家畜能够更有效地利用饲粮中的氮[29-30]。此外,Qiu等[31]利用基因组学手段,发现牦牛谷氨酰胺合成酶(Glul)基因表达量显著高于黄牛,通过KEGG数据库分析表明牦牛氨基酸代谢较黄牛强,这与本研究结果一致,作者推测这可能与牦牛较高的氮利用率有关。

3.3 宣汉黄牛、西杂牛和犏牛脂质代谢的差异

犏牛血清中花生酸(eicosanoic acid)、花生四烯酸(arachidonic acid)、十九烷酸(nonadecanoic acid)和尿液油酸(oleic acid)、亚油酸(linoleic acid)、硬脂酸(octadecanoic acid)、软脂酸(palmitic acid)的浓度显著高于西杂牛,同时,犏牛尿液中烟酸(nicotinic acid)的浓度显著高于西杂牛。烟酸是B族维生素成员之一,体内能转变为烟酸胺,烟酸胺是辅酶Ⅰ和辅酶Ⅱ的组成部分,主要参与体内脂质代谢过程[32]。此外,犏牛尿液中油酸(oleic acid)、亚油酸(linoleic acid)、硬脂酸(octadecanoic acid)、软脂酸(palmitic acid)的浓度显著高于宣汉黄牛,并且,犏牛血清中肌醇(myo-inositol)的浓度显著高于宣汉黄牛。肌醇即环己六醇,属于维生素类物质,能促进肝脏中的脂肪分解代谢[33],表明牦牛脂质代谢较宣汉黄牛和西杂牛强,这与Qiu等[31]研究发现的牦牛17-β-羟基类固醇脱氢酶12(Hsd17b12)基因表达显著高于黄牛,牦牛脂肪酸代谢比黄牛更强的结果一致。

3.4 宣汉黄牛、西杂牛和犏牛三羧酸循环的差异

三羧酸循环是糖类、脂类、氨基酸三大营养物质的最终代谢通路及互相联系的枢纽,机体主要通过该循环来获得能量,柠檬酸(citric acid)、富马酸(fumaric acid)、α-酮戊二酸(α-ketoglutaric acid)和琥珀酸(succinic acid)是三羧酸循环中间产物[34-35]。本研究发现,宣汉黄牛血清中富马酸和尿液中琥珀酸浓度显著高于西杂牛和犏牛,此外,犏牛血清中柠檬酸和α-酮戊二酸浓度显著高于西杂牛,表明宣汉黄牛三羧酸循环最强,犏牛次之,西杂牛最弱。

4 结论

① 犏牛氨基酸和脂质分解代谢强于宣汉黄牛和西杂牛。
② 宣汉黄牛抗氧化能力以及嘌呤和维生素E代谢强于西杂牛和犏牛。
③ 三羧酸循环强弱顺序为宣汉黄牛>犏牛>西杂牛。
[1]
VANN R C, HOLLOWAY J W, CARSTENS G E, et al. Influence of calf genotype on colostral immunoglobulins in Bos taurus and Bos indicus cows and serum immunoglobulins in their calves[J]. Journal of Animal Science, 1995, 73(10):3044-3050.

[2]
CARROLL J A, BURDICK N C, REUTER R R, et al. Differential acute phase immune responses by Angus and Romosinuano steers following an endotoxin challenge[J]. Domestic Animal Endocrinology, 2011, 41(4):163-173.

DOI PMID

[3]
WANG Y J, WANG Z S, HU R, et al. Comparison of carcass characteristics and meat quality between Simmental crossbred cattle, cattle-yaks and Xuanhan yellow cattle[J]. Journal of the Science of Food and Agriculture, 2021, 101(9):3927-3932.

[4]
杨玉能, 吴兴凤, 胡荣彬, 等. 不同比例茅台酒糟生物料对杂交牛屠宰性能及肌肉脂质代谢组学影响研究[J]. 中国饲料, 2023(9):162-168.

YANG Y N, WU X F, HU R B, et al. Effects of different proportions of Moutai distiller’s grains bio-material on slaughter performance and muscle lipid metabolomics in crossbred cattle[J]. China Feed, 2023(9):162-168. (in Chinese)

[5]
PHOEMCHALARD C, URIYAPONGSON S, TATHONG T, et al. 1H NMR metabolic profiling and meat quality in three beef cattle breeds from northeastern Thailand[J]. Foods, 2022, 11(23):3821.

[6]
BISCHOF G, WITTE F, TERJUNG N, et al. Effect of sampling position in fresh,dry-aged and wet-aged beef from M. longissimus dorsi of Simmental cattle analyzed by 1H NMR spectroscopy[J]. Food Research International, 2022, 156:111334.

[7]
LI H W, WANG X H, VINSKY M, et al. Analyses of plasma metabolites using a high performance four-channel CIL LC-MS method and identification of metabolites associated with enteric methane emissions in beef cattle[J]. PLoS One, 2024, 19(3):e0299268.

[8]
SEBASTIANELLI M, FORTE C, GALARINI R, et al. LC-MS/MS analyses of bile and histological analyses of thymus as diagnostic tools to detect low dose dexamethasone illicit treatment in beef cattle at slaughterhouse[J]. Steroids, 2020, 160:108671.

[9]
OGUNADE I, SCHWEICKART H, MCCOUN M, et al. Integrating 16S rRNA sequencing and LC-MS-based metabolomics to evaluate the effects of live yeast on rumen function in beef cattle[J]. Animals, 2019, 9(1):28-28.

[10]
杨游. 高精料饲粮引起肉牛机体代谢组的变化及其营养调控效果研究[D].博士学位论文. 重庆: 西南大学, 2018.

YANG Y. A study on the metabolomics profiling alterations assiciated with the high-concentrate diet in beef cattle and the effcets of nutritional modulations[D].Ph.D.Thesis. Chongqing: Southwest University, 2018. (in Chinese)

[11]
AOAC International. Official methods of analysis of AOAC International[S].17th ed. Gaithersburg: AOAC International, 2002.

[12]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber, neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[13]
DUNN W B, BROADHURST D, BEGLEY P, et al. Procedures for large-scale metabolic profiling of serum and plasma using gas chromatography and liquid chromatography coupled to mass spectrometry[J]. Nature Protocols, 2011, 6(7):1060-1083.

DOI PMID

[14]
CHAN E C Y, PASIKANTI K K, NICHOLSON J K. Global urinary metabolic profiling procedures using gas chromatography-mass spectrometry[J]. Nature Protocols, 2011, 6(10):1483-1499.

DOI PMID

[15]
SANGSTER, TIMOTHY. A pragmatic and readily implemented quality control strategy for HPLC-MS and GC-MS-based metabonomic analysis[J]. Analyst, 2006, 131(10):1075-1078.

DOI PMID

[16]
SMITH C A, WANT E J, O'MAILLE G, et al. XCMS:processing mass spectrometry data for metabolite profiling using nonlinear peak alignment,matching, and identification[J]. Analytical Chemistry, 2006, 78(3):779-787.

[17]
WANT E J, WILSON I D, GIKA H, et al. Global metabolic profiling procedures for urine using UPLC-MS[J]. Nature Protocols, 2010, 5(6):1005-1018.

DOI PMID

[18]
FERNIE A R, TRETHEWEY R N, KROTZKY A J, et al. Metabolite profiling:from diagnostics to systems biology[J]. Nature Reviews. Molecular Cell Biology, 2004, 5(9):763-769.

[19]
蒲启建, 王之盛, 彭全辉, 等. 热应激对不同品种(系)青年肉牛生产性能、营养物质表观消化率及血液生化指标的影响[J]. 动物营养学报, 2017, 29(9):3120-3131.

PU Q J, WANG Z S, PENG Q H, et al. Effects of heat stress on performance, nutrient apparent digestibility and blood biochemical indices of different breeds of young beef cattle[J]. Chinese Journal of Animal Nutrition, 2017, 29(9):3120-3131. (in Chinese)

[20]
WANG H C, LONG R J, ZHOU W L, et al. A comparative study on urinary purine derivative excretion of yak (Bos grunniens),cattle (Bos taurus),and crossbred (Bos taurus×Bos grunniens) in the Qinghai-Tibetan plateau,China[J]. Journal of Animal Science, 2009, 87:2355-2362.

[21]
ITAHANA Y, HAN R, BARBIER S, et al. The uric acid transporter SLC2A9 is a direct target gene of the tumor suppressor p53 contributing to antioxidant defense[J]. Oncogene, 2015, 34(14):1799-1810.

DOI PMID

[22]
张宜辉, 沈子亮, 胡立萍, 等. 不同乳脂率奶牛血浆和乳中代谢物差异分析[J]. 中国畜牧杂志, 2023, 59(11):158-165.

ZHANG Y H, SHEN Z L, HU L P, et al. Difference analysis of metabolites in plasma and milk of cows with different milk fat percentage[J]. Chinese Journal of Animal Science, 2023, 59(11):158-165. (in Chinese)

[23]
马丽琴, 王玲, 温万, 等. 蛋氨酸羟基类似物异丙酯对围产期奶牛瘤胃发酵及微生物区系的影响[J]. 动物营养学报, 2022, 34(7):4425-4437.

DOI

MA L Q, WANG L, WEN W, et al. Effects of 2-hydroxy-4-methionine isopropyl on ruminal fermentation and microflora of peripartum dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(7):4425-4437. (in Chinese)

DOI

[24]
LIU G, WU X J, JIA G, et al. Effects of glutamine against oxidative stress in the metabolome of rats—new insight[J]. RSC Advances, 2016, 6(78):74515-74524.

[25]
KIM D, YAMAGISHI N, UEKI A, et al. Changes in plasma bone metabolic markers in periparturient dairy cows[J]. Journal of Veterinary Medical Science, 2010, 72(6):773-776.

PMID

[26]
唐玉林, 张博, 任曼, 等. UPLC-MS/MS代谢组学评价归芪益母口服液对产后奶牛瘤胃的调节作用[J]. 中国农业科学, 2023, 56(2):368-378.

DOI

TANG Y L, ZHANG B, REN M, et al. Evaluation of regulatory effect of Guiqi Yimu oral liquid on rumen of postpartum dairy cows based on UPLC-MS/MS metabolomics technology[J]. Scientia Agricultura Sinica, 2023, 56(2):368-378. (in Chinese)

[27]
SERRANO C J I, GARCÍA P I, MELÉNDEZ C M E, et al. NMR-based metabonomic analysis of physiological responses to starvation and refeeding in the rat[J]. Journal of Proteome Research, 2016, 15(9):3241-3254.

[28]
董世魁, 龙瑞军, 胡自治. 不同采食水平下舍饲干奶牦牛能量转化、氮、钙、磷代谢的研究[J]. 草业学报, 2000, 9(2):32-37.

DONG S K, LONG R J, HU Z Z. A study on conversion of energy and metabolism of protein,calcium and phosphorus in dry yaks[J]. Acta Prataculturae Sinica, 2000, 9(2):32-37. (in Chinese)

[29]
LONG R J, DONG S K, HU Z Z, et al. Digestibility nutrient balance and urinary purine derivative excretion in dry yak cows fed oat hay at different levels of intake[J]. Livestock Production Science, 2004, 88(1/2):27-32.

[30]
LONG R J, DONG S K, WEI X H, et al. The effect of supplementary feeds on the bodyweight of yaks in cold season[J]. Livestock Production Science, 2005, 93(3):197-204.

[31]
QIU Q, ZHANG G J, MA T, et al. The yak genome and adaptation to life at high altitude[J]. Nature Genetics, 2012, 44(8):946-949.

DOI PMID

[32]
XU B, CHEN M J, JI X L, et al. Metabolomic profiles reveal key metabolic changes in heat stress-treated mouse Sertoli cells[J]. Toxicology in Vitro, 2015, 29(7):1745-1752.

DOI PMID

[33]
BELFQUIH M, FILALI-MALTOUF A, LE QUÉRÉ A. Analysis of ensifer aridi mutants affecting regulation of methionine,trehalose,and inositol metabolisms suggests a role in stress adaptation and symbiosis development[J]. Microorganisms, 2022, 10(2):298.

[34]
POSTIC C, DENTIN R, GIRARD J. Role of the liver in the control of carbohydrate and lipid homeostasis[J]. Diabetes & Metabolism, 2004, 30(5):398-408.

[35]
YAMASHINA S, IKEJIMA K, ENOMOTO N, et al. Glycine as a therapeutic immuno-nutrient for alcoholic liver disease[J]. Alcoholism,Clinical and Experimental Research, 2005, 29(Suppl.11):162S-165S.

文章导航

/