研究论文

低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼生长性能、肌肉氨基酸组成、血浆生化指标及肝脏氨基酸代谢相关基因表达的影响

  • 费树站 , 1 ,
  • 康茄敏 2 ,
  • 张军豪 3 ,
  • 刘海洋 1 ,
  • 罗青 1 ,
  • 张新铖 1 ,
  • 陈昆慈 1 ,
  • 欧密 , 1, * ,
  • 赵建 1, 2, 3
展开
  • 1 中国水产科学研究院珠江水产研究所,农业农村部热带亚热带水产资源利用与养殖重点实验室,广州 510380
  • 2 陕西师范大学生命科学学院,西安 710119
  • 3 上海海洋大学水产与生命学院,上海 201306
*欧 密,副研究员,E-mail:

费树站(1993—),男,仡佬族,贵州石阡人,博士,从事鱼类生理生态学研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-05-18

  网络出版日期: 2024-12-12

基金资助

财政部和农业农村部-国家现代农业产业技术体系资助(CARS-46)

中国水产科学研究院基本科研业务费专项(2023TD37)

中国水产科学研究院基本科研业务费专项(2023SJHX2)

中国水产科学研究院基本科研业务费专项(2024SJRC6)

广东省乡村振兴战略专项资金(2022-SPY-00-016)

2024年高水平广东省农业科技示范市建设资金市院合作项目

Influences of Low Protein Diet Supplemented with Essential Amino Acids on Growth Performance, Muscle Amino Acid Composition, Plasma Biochemical Indexes and Expression of Amino Acid Metabolism-Related Genes in Liver of Juvenile Blotched Snakehead (Channa maculata)

  • FEI Shuzhan , 1 ,
  • KANG Jiamin 2 ,
  • ZHANG Junhao 3 ,
  • LIU Haiyang 1 ,
  • LUO Qing 1 ,
  • ZHANG Xincheng 1 ,
  • CHEN Kunci 1 ,
  • OU Mi , 1, * ,
  • ZHAO Jian 1, 2, 3
Expand
  • 1 Key Laboratory of Tropical and Subtropical Fishery Resources Application and Cultivation, Ministry of Agriculture and Rural Affairs, Pearl River Fisheries Research Institute, Chinese Academy of Fishery Sciences, Guangzhou 510380, China
  • 2 College of Life Sciences, Shaanxi Normal University, Xi’an 710119, China
  • 3 College of Fisheries and Life Science, Shanghai Ocean University, Shanghai 201306, China
*associate professor, E-mail:

Received date: 2024-05-18

  Online published: 2024-12-12

摘要

本试验旨在探究低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼生长性能、肌肉氨基酸组成、血浆生化指标及肝脏氨基酸代谢相关基因表达的影响。试验随机选取540尾健康的斑鳢幼鱼,初始体重为(16.85±0.21) g,随机分为3个组,每组3个重复,每个重复60尾鱼。高蛋白质组(HP组,对照组)饲喂粗蛋白质水平为48%的高蛋白质饲料,低蛋白质组(LP组)饲喂粗蛋白质水平为42%的低蛋白质饲料,低蛋白质+必需氨基酸组(LP+EAA组)饲喂粗蛋白质水平为44%的低蛋白质+必需氨基酸(精氨酸、赖氨酸、蛋氨酸和苏氨酸)饲料。试验期8周。结果表明:1)HP组和LP+EAA组的增重率和特定生长率显著高于LP组(P<0.05),饲料系数显著低于LP组(P<0.05)。LP组和LP+EAA组的氮沉积率显著高于HP组(P<0.05)。2)LP组的鱼体粗脂肪和干物质含量显著低于HP组和LP+EAA组(P<0.05)。LP+EAA组的肌肉缬氨酸、蛋氨酸、异亮氨酸、亮氨酸、赖氨酸、组氨酸、总必需氨基酸和总氨基酸含量显著高于HP组和LP组(P<0.05),肌肉酪氨酸和甘氨酸含量显著高于HP组(P<0.05)。3)LP+EAA组的血浆尿素氮含量显著低于HP组(P<0.05),LP组的血浆高密度脂蛋白含量显著低于HP组和LP+EAA组(P<0.05),LP组的血浆谷草转氨酶和谷丙转氨酶活性显著高于LP+EAA组(P<0.05)。4)LP组的肝脏中y+L型氨基酸转运体(y+LAT2)、雷帕霉素靶蛋白(TOR)、核糖体蛋白S6激酶1(S6K1)、小肽转运体1(PepT1)和增强结合蛋白同源蛋白(CHOP)的mRNA相对表达量显著低于HP组(P<0.05),肝脏中真核起始因子4E结合蛋白1(4EBP1)和发育和DNA损伤反应调节蛋白1(REDD1)的mRNA相对表达量显著高于HP组(P<0.05);LP+EAA组的肝脏中PepT1和CHOP的mRNA相对表达量显著低于HP组(P<0.05)。5)肝脏组织学观察发现,LP组肝脏空泡化严重,而LP+EAA组肝脏形态正常。综上所述,饲料粗蛋白质水平从48%降低到42%并补充必需氨基酸,不影响斑鳢幼鱼的生长性能和饲料利用率,提高了肌肉必需氨基酸含量,维持了肝脏健康。

本文引用格式

费树站 , 康茄敏 , 张军豪 , 刘海洋 , 罗青 , 张新铖 , 陈昆慈 , 欧密 , 赵建 . 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼生长性能、肌肉氨基酸组成、血浆生化指标及肝脏氨基酸代谢相关基因表达的影响[J]. 动物营养学报, 2024 , 36(12) : 7930 -7942 . DOI: 10.12418/CJAN2024.676

Abstract

The objective of this experiment was to study the influences of low protein diet supplemented with essential amino acids on growth performance, muscle amino acid composition, plasma biochemical indexes and expression of amino acid metabolism-related genes in liver of juvenile blotched snakehead (Channa maculata). A total of 540 health juvenile blotched snakehead with initial body weight of (16.85±0.21) g were randomly divided into 3 groups with 3 replicates per group and 60 fish per replicate. The high protein group (HP group, control group) was fed a high protein diet with the crude protein level of 48%, the low protein group (LP group) was fed a low protein diet with the crude protein level of 42%, and the low protein group+essential amino acids (LP+EAA group) was fed a low protein+essential amino acids (arginine, lysine, methionine and threonine) diet with the crude protein level of 44%. The experiment lasted for 8 weeks. The results showed as follows: 1) the weight gain rate and specific growth rate of HP group and LP+EAA group were significantly higher than those of LP group (P<0.05), and the feed conversion ratio was significantly lower than that of LP group (P<0.05). The nitrogen retention efficiency of LP group and LP+EAA group was significantly higher than that of HP group (P<0.05). 2) The contents of ether extract and dry matter in fish body of LP group were significantly lower than those of HP group and LP+EAA group (P<0.05). The contents of valine, methionine, isoleucine, leucine, lysine, histidine, total essential amino acid and total amino acid in muscle of LP+EAA group were significantly higher than those of HP group and LP group (P<0.05), and the contents of tyrosine and glycine in muscle were significantly higher than those of HP group (P<0.05). 3) The plasma urea nitrogen content of LP+EAA group was significantly lower than that of HP group (P<0.05), the plasma high-density lipoprotein content of LP group was significantly lower than that of HP group and LP+EAA group (P<0.05), and the activities of glutamic oxaloacetic transaminase and glutamic pyruvic transaminase in plasma of LP group were significantly higher than those of LP+EAA group (P<0.05). 4) The mRNA relative expression levels of y+L-type amino acid transporter 2 (y+LAT2), target of rapamycin (TOR), ribosomal protein S6 kinase 1 (S6K1), peptide transporter 1 (PepT1) and enhance binding protein homology protein (CHOP) in liver of LP group were significantly lower than those of HP group (P<0.05), and the mRNA relative expression levels of eukaryotic initiation factor 4E binding protein 1 (4EBP1) and regulated in development and DNA damage responses 1 (REDD1) in liver were significantly higher than those of HP group (P<0.05); the mRNA relative expression levels of PepT1 and CHOP in liver of LP+EAA group were significantly lower than those of HP group (P<0.05). 5) The liver histological examination showed that the severe liver vacuolization in LP group, whereas the normal liver morphology in LP+EAA group. In conclusion, reducing dietary crude protein level from 48% to 44% and supplemented with essential amino acids do not affect the growth performance and feed utilization rate of juvenile blotched snakehead, improve the muscle essential amino acid contents, and maintain the liver health.

蛋白质具有许多重要的营养和生物学功能,不仅为机体内源性蛋白质合成提供氨基酸,还参与调节动物的采食量、脂质和葡萄糖的代谢以及消化酶和激素的分泌,对维持机体正常的生长、发育和繁殖至关重要[1]。饲料蛋白质水平过高和氨基酸组成不平衡都将导致蛋白质利用效率降低和氮排泄量增加,不仅增加了饲料成本,而且过量的氮排放易污染水体,抑制鱼类生长[2-3]。然而饲料蛋白质水平过低,蛋白质无法满足鱼类生长,而是作为能量代谢维持基本生存需求[4]。因此,研发一种高效环保的低蛋白质饲料且不影响鱼类的生长,对水产养殖业可持续发展具有重要意义。
鱼类对蛋白质的利用本质上是对氨基酸的吸收,而氨基酸尤其是必需氨基酸(EAA)的平衡及含量直接影响到鱼类生长、肌肉蛋白质沉积、蛋白质利用效率及养殖水环境氮排放[5]。因此,向低蛋白质饲料中补充适宜种类和数量的必需氨基酸是降低饲料蛋白质水平的有效手段。有研究表明,在畜禽生产中按理想氨基酸模式配制饲料,蛋白质水平可降低2%~4%,氮排出量可减少20%~50%,且不影响动物生长性能,能够维持正常的蛋白质代谢[6-8]。此外,随着合成氨基酸生产技术的成熟和成本的降低,为低蛋白质氨基酸平衡饲料在水产养殖中的广泛应用提供了可能。
斑鳢(Channa maculata),属鲈形目(Perciformes)、鳢科(Channidae)、鳢属(Channa),是我国重要的淡水经济鱼类,其生长速度快,耐低氧能力强,适宜高密度养殖,2023年全国斑鳢的养殖产量已达到55万t[9]。斑鳢的出肉率高,味道鲜美,具有去瘀生新、生肌补血的药用价值,可作为日常滋补调养和手术或创伤后的食疗材料[10]。斑鳢作为肉食性鱼类,对饲料蛋白质需求高达45%~50%[11-13],较高的饲料蛋白质水平不仅导致斑鳢的养殖成本增高,而且过量的氮排放易加剧水体污染,降低养殖效益。现已有斑鳢的各种必需氨基酸需求量的研究报道[14-15]。因此,本研究以斑鳢的必需氨基酸需求为基础,探究在低蛋白质饲料中补充精氨酸、赖氨酸、蛋氨酸和苏氨酸等4种晶体氨基酸对斑鳢幼鱼生长性能、肌肉氨基酸组成、血浆生化指标及肝脏氨基酸代谢相关基因表达的影响,为研发低成本、高效益的低蛋白质饲料提供理论基础。

1 材料与方法

本试验所采用的试验鱼和试验程序均获得中国水产科学研究院珠江水产研究所试验动物伦理委员会的伦理审查批准(批准编号:LAEC-PRFRI-2022-08-106)。

1.1 试验设计和饲料制备

试验随机选取540尾健康、规格一致的斑鳢幼鱼,初始体重为(16.85±0.21) g,随机分为3个组,每组3个重复,每个重复60尾鱼。高蛋白质组(HP组,对照组)饲喂粗蛋白质水平为48%的高蛋白质饲料,低蛋白质组(LP组)饲喂粗蛋白质水平为42%的低蛋白质饲料,低蛋白质+必需氨基酸组(LP+EAA组)饲喂粗蛋白质水平为44%的低蛋白质+必需氨基酸饲料。试验期8周。
试验制备了3种等脂饲料(粗脂肪含量为9%),以鱼粉、豆粕、玉米蛋白粉为主要蛋白质源,以木薯淀粉为碳水化合物源,以鱼油和豆油(1∶1)作为主要脂肪源。以满足斑鳢生长需要的高蛋白质饲料为对照,配制低蛋白质饲料以及在低蛋白质饲料中补充必需氨基酸的低蛋白质+必需氨基酸饲料。为消除必需氨基酸不足的影响,分别在HP组和LP+EAA组中补充精氨酸、赖氨酸、蛋氨酸和苏氨酸以满足斑鳢对必需氨基酸的需求。所有原料粉碎后按配方比例充分混匀,混合后的原料过80目筛,加水搅拌调制后用制粒机制备成3.0 mm粒径的膨化颗粒饲料,于80 ℃恒温烘箱烘干至水分接近8%后于4 ℃冰箱中密封保存备用。试验饲料组成及营养水平见表1,试验饲料必需氨基酸组成见表2
表1 试验饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis) %

项目
Items
组别Groups
HP LP LP+EAA
原料Ingredients
鱼粉Fish meal 35.00 31.00 31.00
玉米蛋白粉Corn gluten meal 12.00 10.00 10.00
豆粕Soybean meal 22.00 20.00 20.00
高筋面粉Gluten flour 11.00 12.00 11.00
木薯淀粉Cassava starch 7.10 13.00 12.30
鱼油Fish oil 3.00 3.00 3.00
豆油Soybean oil 3.00 3.00 3.00
预混料Vitamin premix1) 5.39 5.39 5.39
维生素C Vitamin C 0.50 0.50 0.50
赖氨酸Lysine 0.20 0.80
蛋氨酸Methionine 0.20 0.60
精氨酸Arginine 0.20 1.50
苏氨酸Threonine 0.30 0.80
氯化胆碱Choline chloride 0.11 0.11 0.11
合计Total 100.00 100.00 100.00
营养水平Nutrient levels2)
粗蛋白质Crude protein 48.66 42.54 44.44
粗脂肪Crude lipid 9.19 9.17 9.37
粗灰分Ash 7.61 7.14 7.63

1)预混料为每千克饲料提供 The premix provided the following per kg of diets:VB1 20 mg,VB2 20 mg,VB6 20 mg,VB12 0.02 mg,叶酸 folic acid 5 mg,泛酸 pantothenic acid 50 mg,肌醇 inositol 100 mg,烟酸 nicotinic acid 100 mg,生物素 biotin 0.1 mg,VA 11 mg,VD 2 mg,VE 100 mg,VK 10 mg,纤维素 cellulose 3 461.88 mg,NaCl 500.0 mg,MgSO4·7H2O 8 155.6 mg,NaH2PO4·2H2O 12 500.0 mg,KH2PO4 16 000.0 mg,CaHPO4·2H2O 7 650.6 mg,FeSO4·7H2O 2 286.2 mg,C6H10CaO6·5H2O 1 750.0 mg,ZnSO4·7H2O 178.0 mg,MnSO4·H2O 61.4 mg,CuSO4·5H2O 15.5 mg,CoSO4·7H2O 0.9 mg,KI 1.5 mg,Na2SeO3 0.6 mg。

2)营养水平为实测值。Nutrient levels were measured values.

表2 试验饲料必需氨基酸组成(干物质基础)

Table 2 EAA composition of experimental diets (DM basis) %

项目
Items
组别Groups 需求量
Requirement
HP LP LP+EAA
组氨酸His 0.89 0.87 0.88 0.76[14]
异亮氨酸Ile 1.69 1.65 1.67 1.39[14]
赖氨酸Lys 2.81 2.42 2.95 2.78[14]
蛋氨酸Met 0.87 0.49 0.83 0.79[14]
精氨酸Arg 2.96 1.86 3.02 2.65[15]
苏氨酸Thr 2.11 1.99 2.47 1.96[15]
苯丙氨酸Phe 1.85 1.45 1.70 1.72[15]
亮氨酸Leu 3.94 3.78 3.81 3.51[15]
缬氨酸Val 2.24 2.17 2.07 1.99[15]
总氨基酸TAA 44.43 41.62 43.24

实测值,色氨酸被水解而未检测到。

Measured values, Try was not detected due to hydrolysis.

1.2 饲养管理

试验鱼来自中国水产科学研究院珠江水产研究所芳村试验基地自繁的同一批斑鳢幼鱼,试验在珠江水产研究所试验基地的网箱养殖系统(1.0 m×1.0 m×1.5 m)中进行。将所有鱼在同一网箱中驯养4周,以确保试验鱼适应养殖环境。正式试验开始前所有鱼禁食24 h。随机选取540尾健康、规格一致的幼鱼,分别放入9个网箱,每个网箱60尾鱼。试验期间,每天定时在08:00和17:00进行表观饱食投喂,持续投喂8周。根据天气变化开关增氧机,每周进行水质监测,整个试验期间池塘水温为28~33 ℃,水体溶氧浓度>5 mg/L,氨氮浓度<0.01 mg/L。

1.3 样品采集

养殖试验结束后,将所有鱼禁食24 h,将每个网箱的试验鱼全部捞起计数并称总重。从每个网箱中随机选取7尾鱼,取其中3尾鱼测量体长和体重,随后采用肝素钠(浓度0.2%)抗凝剂润洗过的注射器进行尾部静脉采血,采用冷冻离心机于4 ℃下离心10 min,取上层血浆用于常规生化分析。然后将抽完血的3尾鱼解剖,取出肝脏和内脏团称重,用于计算形体指标;随后取一小块肝脏置于4%的多聚甲醛固定液中,用于组织切片制作。再选取2尾鱼于冰上解刨,取肝脏和肌肉组织,置于液氮中速冻然后放于-80 ℃冰箱保存备用。最后将余下的2尾鱼抹干后称重作为样本,用于测定全鱼营养成分。

1.4 指标测定

1.4.1 生长性能和形体指标

增重率(WGR)、特定生长率(SGR)、饲料系数(FCR)、氮沉积率(NRE)、肥满度(CF)、脏体比(VSI)和肝体比(HSI)等指标计算公式如下:
增重率(%)=100×(终末体重-初始体重)/初始体重;
特定生长率(%/d)=100×[ln(终末体重)-ln(初始体重)]/试验天数;
饲料系数=摄食量/鱼体总增重;
氮沉积率(%)=100×鱼体氮储积量/氮摄入量;
肥满度(g/cm3)=100×体重/体长3;
脏体比(%)=100×内脏团重/体重;
肝体比(%)=100×肝脏重/体重。

1.4.2 饲料、全鱼营养成分及肌肉氨基酸含量

采用国标法测定饲料和鱼体的粗蛋白质(GB/T 6432—2018)、粗脂肪(GB/T 6433—2006)、干物质(GB/T 6435—2014)和粗灰分(GB/T 6438—2007)含量,粗蛋白质含量采用全自动凯氏定氮仪测定,粗脂肪含量采用索氏抽提仪通过乙醚萃取测定,干物质含量通过在105 ℃烘箱中烘干至恒重后测定,粗灰分含量是在马弗炉中550 ℃下煅烧3 h后测定。肌肉样品在冷冻干燥机中冻干至恒重后,采用GB 5009.124—2016的方法测定氨基酸含量。

1.4.3 血浆生化指标

血浆白蛋白(ALB)、总胆固醇(TCHO)、葡萄糖(GLU)、甘油三酯(TG)、高密度脂蛋白(HDL)、低密度脂蛋白(LDL)、尿素氮(UN)含量及谷草转氨酶(GOT)、谷丙转氨酶(GPT)、胰蛋白酶活性均采用商品试剂盒测定,试剂盒购自南京建成生物工程研究所。

1.4.4 肝脏形态

采用4%的多聚甲醛固定后的肝脏组织经不同梯度的乙醇脱水、二甲苯透明和石蜡包埋(56~58 ℃)后,用石蜡切片机切成6 μm厚的薄片,用苏木精-伊红(HE)染色,在光学显微镜下观察肝脏组织切片并拍照。

1.4.5 氨基酸代谢相关基因表达

用TRIzol试剂(美国Invitrogen公司)提取肝脏总RNA,分别使用1.0%琼脂糖凝胶电泳和微孔分光光度计(美国Thermo Fisher Scientific公司)检测总RNA的完整性和纯度。以RNA为模板,用ReverTra Ace qPCR RT Master Mix with gDNA Remover(日本Toyobo公司)反转录合成获得cDNA。用StepOnePlus Real-Time PCR System(美国ABI公司)进行实时荧光定量PCR。反应体系(20 μL):2×SYBRGreen Realtime PCR Master Mix(日本Toyobo公司)10 μL,正、反向引物(10 μmol/L)各0.8 μL,cDNA模板0.5 μL,无菌水7.9 μL。反应条件:95 ℃预变性2 min;95 ℃ 15 s,60 ℃ 15 s,72 ℃ 30 s,39个循环。试验中每个样品设置3个重复,选用β-肌动蛋白(β-actin)和延伸因子1α(EF1α)作为内参基因,采用2-ΔΔCt[16]计算目的基因的相对表达量,目的基因包括的氨基酸转运[y+L型氨基酸转运体(y+LAT2)和小肽转运体1(PepT1)]、雷帕霉素靶蛋白(TOR)信号通路[TOR、核糖体蛋白S6激酶1(S6K1)、蛋白激酶B1(AKT1)和真核起始因子4E结合蛋白1(4EBP1)]及氨基酸应答信号通路[真核起始因子2α(EIF2α)、发育和DNA损伤反应调节蛋白1(REDD1)和增强结合蛋白同源蛋白(CHOP)]相关基因。实时荧光定量PCR引物序列见表3
表3 实时荧光定量PCR引物序列

Table 3 Primer sequences in real-time quantitative PCR

基因
Genes
正向引物
Forward primer (5'—3' )
反向引物
Reverse primer (5'—3')
参考文献
Reference
y+LAT2 TACAGCGACACGGTCAACTC GGTAGATAGACGCCCAAGAAG Sheng等[38]
PepT1 TTTATGGTTTCAGGGCTTCC CATGGGCACTAATCCAGTCA Sheng等[38]
TOR TGTGGAGTTTGAGGTGAAGAGG TGCTGAAAGAAGAAGGTTGGTG Sheng等[38]
AKT1 GGGGTGGTGATGTATGAGATG CTCTGCATTGGGTCTTTCTTG Sheng等[38]
S6K1 GCACCCGTCAGGTATCAGT AGGGAAGAGGCAGAGGAAT Sheng等[38]
4EBP1 GTTGTTGTTCACCAGTTCACCA TCATCTACGACCGAAAGTTCCT Sheng等[38]
EIF2α GATGAGAAATACAAGCGTCCTG GAGTAAGTCGCCTGTTGATGTTA Sheng等[38]
CHOP TGGTGGTGTTGATGGTGGTAA AGACGTGGGGTGAGGGTGTTC Sheng等[38]
REDD1 CTTCTGGAGCACATTGGACAG TGAAAGGTTGGGACAAGGTAG Sheng等[37]
EF1α GGAAAGGAAAAGACCCACAT GGAAAGGAAAAGACCCACAT 自行设计
β-actin AGCAAGCAGGAGTATGATGA AGCAAGCAGGAGTATGATGA KT719372.1

y+LAT2:y+L型氨基酸转运体2 y+L-type amino acid transporter 2;PepT1:小肽转运体1 peptide transporter 1;TOR:雷帕霉素靶蛋白 target of rapamycin;AKT1:蛋白激酶B1 protein kinase B1;S6K1:核糖体蛋白S6激酶1 ribosomal protein S6 kinase 1;4EBP1:真核起始因子4E结合蛋白1 eukaryotic initiation factor 4E binding protein 1;EIF2α:真核起始因子2α eukaryotic initiation factor 2α;CHOP:增强结合蛋白同源蛋白 enhance binding protein homology protein;REDD1:发育和DNA损伤反应调节蛋白1 regulated in development and DNA damage responses 1;EF1α:延伸因子1α elongation factor 1α;β-actin:β-肌动蛋白。

1.5 数据处理

所有试验数据使用SPSS 23.0统计软件进行数据处理,经方差齐性检验后,进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较分析。所有数据均以平均值±标准误(SE)表示,P<0.05代表有显著差异。

2 结果

2.1 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼生长性能和形体指标的影响

表4所示,HP组和LP+EAA组的增重率和特定生长率显著高于LP组(P<0.05),饲料系数显著低于LP组(P<0.05)。LP组和LP+EAA组的氮沉积率显著高于HP组(P<0.05)。各组之间肥满度、肝体比和脏体比无显著差异(P>0.05)。
表4 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼生长性能和形体指标的影响

Table 4 Influences of low protein diet supplemented with EAA on growth performance and physical indexes of juvenile blotched snakehead

项目
Items
组别Groups
HP LP LP+EAA
增重率WGR/% 227.07±5.66b 165.36±1.16a 221.47±4.57b
特定生长率SGR/(%/d) 2.11±0.03b 1.74±0.08a 2.08±0.02b
饲料系数FCR 1.11±0.02a 1.52±0.08b 1.20±0.05a
氮沉积率NRE/% 40.28±0.24a 45.44±0.33b 46.04±0.86b
肥满度CF/(g/cm3) 1.27±0.08 1.23±0.12 1.31±0.11
脏体比VSI/% 6.42±0.40 7.05±0.30 6.94±0.28
肝体比HSI/% 2.01±0.27 2.14±0.19 2.69±0.31

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼体成分和肌肉氨基酸组成的影响

表5所示,各组之间鱼体粗蛋白质和粗灰分含量无显著差异(P>0.05),LP组的鱼体粗脂肪和干物质含量显著低于HP组和LP+EAA组(P<0.05)。LP+EAA组的肌肉缬氨酸、蛋氨酸、异亮氨酸、亮氨酸、赖氨酸和组氨酸含量显著高于HP组和LP组(P<0.05),LP+EAA组的肌肉酪氨酸和甘氨酸含量显著高于HP组(P<0.05)。LP+EAA组的肌肉总必需氨基酸和总氨基酸含量显著高于HP组和LP组(P<0.05),各组之间肌肉总非必需氨基酸含量无显著差异(P>0.05)。
表5 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼体成分和肌肉氨基酸组成的影响

Table 5 Influences of low protein diet supplemented with EAA on body composition and muscle amino acid composition of juvenile blotched snakehead %

项目
Items
组别Groups
HP LP LP+EAA
体成分(鲜重) Body composition (fresh weight)
粗蛋白质CP 17.72±0.11 17.04±0.32 17.72±0.22
粗脂肪EE 3.00±0.34b 1.64±0.17a 2.60±0.35b
粗灰分Ash 2.55±0.11 2.46±0.10 2.67±0.15
干物质DM 27.33±0.33b 25.00±0.57a 27.67±0.33b
肌肉氨基酸组成(干重) Muscle amino acid composition (dry weight)
缬氨酸Val 3.91±0.01a 3.91±0.02a 3.99±0.02b
蛋氨酸Met 2.35±0.01a 2.31±0.03a 2.45±0.01b
异亮氨酸Ile 3.76±0.01a 3.77±0.02a 3.88±0.02b
亮氨酸Leu 7.18±0.01a 7.20±0.05a 7.34±0.03b
苯丙氨酸Phe 3.66±0.04 3.65±0.01 3.79±0.06
赖氨酸Lys 9.16±0.01a 9.10±0.03a 9.39±0.01b
组氨酸His 1.98±0.02a 1.95±0.01a 2.07±0.01b
精氨酸Arg 4.82±0.01 4.85±0.04 4.92±0.02
苏氨酸Thr 3.89±0.02 3.88±0.02 3.93±0.01
色氨酸Trp
总必需氨基酸Total EAA 40.73±0.03a 40.64±0.25a 41.80±0.11b
天冬氨酸Asp 9.14±0.02 9.14±0.06 9.25±0.02
酪氨酸Tyr 2.94±0.01a 2.91±0.02a 3.03±0.02b
丝氨酸Ser 3.59±0.04 3.68±0.03 3.55±0.04
谷氨酸Glu 15.01±0.09 15.16±0.12 15.03±0.06
脯氨酸Pro 2.76±0.03 2.81±0.02 2.73±0.04
甘氨酸Gly 4.10±0.03a 4.20±0.03ab 4.32±0.04b
丙氨酸Ala 5.01±0.01 5.07±0.06 5.08±0.01
总非必需氨基酸Total NEAA 42.55±0.21 42.99±0.26 43.01±0.10
总氨基酸Total AA 83.28±0.22a 83.63±0.50a 84.81±0.07b

色氨酸被水解而未检测到。

Try was not detected due to hydrolysis.

2.3 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼血浆生化指标的影响

表6所示,LP+EAA组的血浆尿素氮含量显著低于HP组(P<0.05),LP组的血浆高密度脂蛋白含量显著低于HP组和LP+EAA组(P<0.05),LP组的血浆谷草转氨酶活性显著高于HP组和LP+EAA组(P<0.05),LP组的血浆谷丙转氨酶活性显著高于LP+EAA组(P<0.05),LP组的血浆胰蛋白酶活性显著高于HP组(P<0.05)。各组之间血浆白蛋白、总胆固醇、低密度脂蛋白、甘油三酯和葡萄糖含量无显著差异(P>0.05)。
表6 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼血浆生化指标的影响

Table 6 Influences of low protein diet supplemented with EAA on plasma biochemical indexes of juvenile blotched snakehead

项目
Items
组别Groups
HP LP LP+EAA
尿素氮UN/(mmol/L) 13.64±1.05b 12.25±0.71ab 10.84±0.17a
白蛋白ALB/(g/L) 2.43±0.20 2.39±0.15 2.88±0.24
总胆固醇TCHO/(mmol/L) 14.66±1.16 13.93±1.23 15.79±1.53
高密度脂蛋白HDL/(mmol/L) 4.52±0.40b 3.03±0.39a 4.75±0.55b
低密度脂蛋白LDL/(mmol/L) 3.52±0.19 3.01±0.30 4.06±0.31
甘油三酯TG/(mmol/L) 1.47±0.25 1.46±0.26 1.23±0.14
葡萄糖GLU/(mmol/L) 7.39±0.73 6.18±0.64 6.22±0.46
谷草转氨酶GOT/(U/L) 91.96±14.29a 259.69±42.51b 72.95±21.63a
谷丙转氨酶GPT/(U/L) 1.71±0.45ab 2.79±0.71b 0.81±0.18a
胰蛋白酶Trypsin/(U/L) 307.34±57.93a 680.97±71.54b 474.64±122.5ab

2.4 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼肝脏组织结构的影响

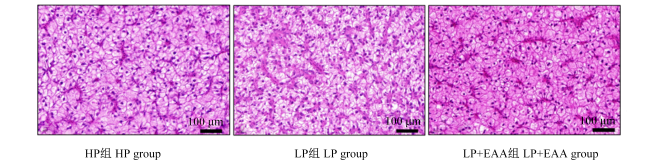
图1可见,HP组和LP+EAA组斑鳢幼鱼的肝细胞形态呈椭圆形且排列较为整齐,细胞界限较为明显,细胞核清晰可见且位于肝细胞中间;而LP组斑鳢幼鱼的肝细胞形态不规则,类似脂滴的空泡化现象严重,细胞轮廓较为模糊,细胞核朝质膜位移。
图1 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼肝脏组织结构的影响

Fig.1 Influences of low protein diet supplemented with EAA on liver tissue structure of juvenile blotched snakehead (60×)

2.5 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼肝脏中氨基酸代谢相关基因表达的影响
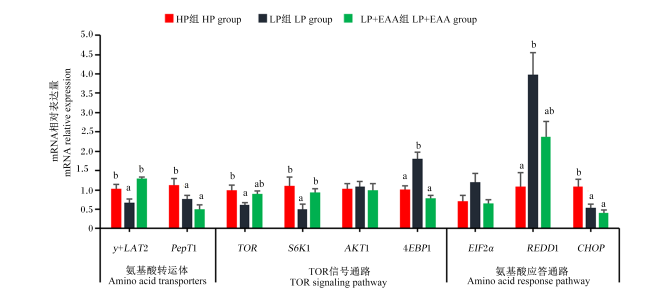
图2所示,LP组的肝脏中y+LAT2和S6K1的mRNA相对表达量显著低于HP组和LP+EAA组(P<0.05),LP组和LP+EAA组的肝脏中PepT1和CHOP的mRNA相对表达量显著低于HP组(P<0.05),LP组的肝脏中TOR的mRNA相对表达量显著低于HP组(P<0.05),LP组的肝脏中4EBP1的mRNA相对表达量显著高于HP组和LP+EAA组(P<0.05),LP组的肝脏中REDD1的mRNA相对表达量显著高于HP组(P<0.05)。各组之间肝脏中AKT1和EIF2α的mRNA相对表达量无显著差异(P>0.05)。
图2 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼肝脏中氨基酸代谢相关基因表达的影响

y+LAT2:y+L型氨基酸转运体2 y+L-type amino acid transporter 2;PepT1:小肽转运体1 peptide transporter 1;TOR:雷帕霉素靶蛋白 target of rapamycin;AKT1:蛋白激酶B1 protein kinase B1;S6K1:核糖体蛋白S6激酶1 ribosomal protein S6 kinase 1;4EBP1:真核起始因子4E结合蛋白1 eukaryotic initiation factor 4E binding protein 1;EIF2α:真核起始因子2α eukaryotic initiation factor 2α;CHOP:增强结合蛋白同源蛋白 enhance binding protein homology protein;REDD1:发育和DNA损伤反应调节蛋白1 regulated in development and DNA damage responses 1。

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

Fig.2 Influences of low protein diet supplemented with EAA on expression of amino acid metabolism-related genes in liver of juvenile blotched snakehead

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05).

3 讨论

3.1 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼生长性能和形体指标的影响

本研究中,当饲料粗蛋白质水平从48%降低到42%,会导致斑鳢幼鱼的生长性能和饲料利用率降低,相似的结果在异齿裂腹鱼(Schizothorax oconnori)[17]和黑脊倒刺鲃(Spinibarbus caldwelli)[18]的研究中也有报道。而在低蛋白质饲料中补充精氨酸、赖氨酸、蛋氨酸和苏氨酸4种必需氨基酸可提高鳢的生长性能和饲料利用率,且达到与饲喂高蛋白质饲料相近的生长效果,这与杂交黄颡鱼(Pelteobagrus fulvidraco♀×Pelteobagrus vachelli )[19]、异育银鲫(Carassius gibelio var. CASV)[20]和大口黑鲈(Micropterus salmoides)[21]的研究结果较为相似。Gaylord等[22]在虹鳟(Oncorhynchus mykiss)的研究中证实,当饲料粗蛋白质水平从46%降至41.5%时,通过向低蛋白质饲料中补充赖氨酸、蛋氨酸和苏氨酸,不会降低虹鳟的生长性能。然而,当饲料中粗蛋白质水平下降并仅补充限制性氨基酸时,其他氨基酸的缺乏会导致鱼类生长性能难以维持。陈乃松等[23]对大口黑鲈的研究表明,尽管在低蛋白质(30.6%)饲料中补充了必需氨基酸,但大口黑鲈的生长性能仍明显低于高蛋白质(45.0%)饲料组。本研究中,在低蛋白质饲料中补足必需氨基酸不影响斑鳢幼鱼的生长,且提高了鱼体氮沉积率,这表明斑鳢可有效利用晶体氨基酸。此外,氮沉积率与饲料原料的蛋白质消化率有关,饲料中过高的豆粕添加比例将导致饲料利用率降低[24]

3.2 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼体成分和肌肉氨基酸组成的影响

鱼体成分的变化是营养物质经过消化吸收并在体内代谢、转化沉积的结果,不仅反映了鱼体生长发育和代谢的结果,也体现出鱼体对营养需求的差异。本研究中,鱼体粗蛋白质含量未受到饲料粗蛋白质水平的影响,而LP组全鱼粗脂肪含量显著的低于其他组,表明低蛋白质饲料中补充必需氨基酸可提高蛋白质的利用,促进脂肪在鱼体的沉积,而饲料粗蛋白质水平过低导致鱼体脂肪被用于氧化供能,这一结果与湘云鲫鱼(Carassius auratus)[24]的研究结果相似。在本试验中,除了精氨酸和苏氨酸,低蛋白质饲料中补充必需氨基酸促进了肌肉必需氨基酸的沉积,而对肌肉中总非必需氨基酸的沉积无显著影响,表明在低蛋白质饲粮中补充必需氨基酸可以提高鱼肉的营养价值。大量的研究证实,随着饲料蛋白质水平的提高,肌肉中必需氨基酸和总氨基酸含量升高,改善了鱼体风味和营养价值[25-26]。因此,本研究结果表明,低蛋白质饲料中补充必需氨基酸可通过提高鱼体脂肪和必需氨基酸沉积来改善鱼肉营养价值和风味。

3.3 低蛋白质饲料中补充必需氨基酸对斑鳢幼鱼肝脏健康及氨基酸代谢的影响

肝脏是鱼类重要的中间代谢器官,谷丙转氨酶和谷草转氨酶是广泛存在于肝细胞内的2种转氨酶,当肝细胞坏死时,大量谷丙转氨酶和谷草转氨酶释放到血液循环中,导致血浆中转氨酶活性升高,在机体蛋白质和脂肪代谢中发挥着重要的作用[27-28]。本研究中,与HP组相比,LP组的血浆谷草转氨酶和谷丙转氨酶活性升高;而LP+EAA组的血浆谷草转氨酶和谷丙转氨酶活性最低,表明低蛋白质饲料补充必需氨基酸可减轻肝脏代谢负担,减少肝细胞损伤,清晰的肝细胞结构和少量的空泡化也证实了这一结果。这与杂交黄颡鱼[19]和红鳍东方鲀(Takifugu rubripes)[29]中的研究结果类似,即在低蛋白质饲料中补充赖氨酸和蛋氨酸可以降低血清谷丙转氨酶活性。高密度脂蛋白能将非肝细胞中的胆固醇转运至肝脏和类固醇合成器官,用于合成脂蛋白、胆汁酸、维生素D和类固醇激素,具有多种抗动脉粥样硬化的能力[30-31]。本试验中,低蛋白质饲料中补充必需氨基酸显著提高了血浆高密度脂蛋白含量,而对血浆低密度脂蛋白含量没有显著影响。本研究结果说明,饲料中过低的粗蛋白质水平可能会由于营养供给不足导致斑鳢肝脏代谢异常,造成肝脏损伤,低蛋白质饲料中补充4种必需氨基酸可以避免肝脏代谢异常,促进肝脏健康。
TOR和氨基酸应答信号通路是细胞营养感知的2种互补机制,它们共同调节蛋白质合成和下游代谢[32-33]。PepT1和y+LAT2是2种重要的氨基酸转运蛋白,PepT1主要在肠道中表达,可以运输肠道中所有的潜在二肽和三肽[34];y+LAT2是一种钠依赖性阳离子氨基酸转运蛋白,可转运赖氨酸、组氨酸和精氨酸等阳离子氨基酸[35]。本研究中,低蛋白质饲料中补充必需氨基酸提高了肝脏y+LAT2的mRNA相对表达量,降低了PepT1的mRNA相对表达量,这表明满足鱼体必需氨基酸需求在一定程度上可促进氨基酸的转运吸收。通常鱼类处于营养不良状态时,TOR信号通路会被抑制,导致鱼体蛋白质合成受阻。本试验中,LP组的肝脏中TOR的mRNA相对表达量最低,而低蛋白质饲料补充必需氨基酸上调了肝脏中TOR的mRNA相对表达量,同时上调了TOR信号通路的下游靶点S6K1的mRNA相对表达量,但抑制了4EBP1的表达,表明低蛋白质饲料补充必需氨基酸可以通过刺激TOR/S6K1信号通路,从而促进斑鳢肝脏蛋白质合成与沉积。研究表明,4EBP1是TOR信号通路的下游靶点,TOR信号通路的激活可抑制4EBP1的表达,从而调节蛋白质合成[36]。在乌鳢(Channa argus)[37]和大口黑鲈[38]的研究中有相似的结论,即饲料中补充蛋白质水解物可激活肌肉TOR信号通路,通过抑制下游靶点4EBP1的表达,从而促进蛋白质合成。在哺乳动物中,REDD1被认为是TOR信号通路的负调控因子,REDD1表达下调的部分原因是TOR信号通路的激活[39-40]。本研究中,低蛋白质饲料上调了斑鳢幼鱼肝脏中REDD1的表达,而低蛋白质饲料中补充必需氨基酸又下调了肝脏中REDD1的表达,表明低蛋白质饲料中补充必需氨基酸可激活TOR信号通路,下调氨基酸应答相关基因的转录,这在一定程度上促进了蛋白质合成和鱼体生长。

4 结论

将斑鳢幼鱼饲料粗蛋白质水平由48%降低至42%,并补充精氨酸、赖氨酸、蛋氨酸和苏氨酸4种必需氨基酸以满足鱼体必需氨基酸需求,能够提高斑鳢幼鱼的生长性能和饲料利用率,促进氨基酸转运,激活TOR信号通路,抑制氨基酸应答相关基因表达,进而促进蛋白质合成,提高肌肉必需氨基酸含量。
[1]
NRC. Nutrient requirements of fish and shrimp[S]. Washington,D.C.: The National Academies Pres, 2011.

[2]
TELES A O, COUTO A, ENES P, et al. Dietary protein requirements of fish—a Meta-analysis[J]. Reviews in Aquaculture, 2020, 12(3):1445-1477.

[3]
WANG J T, JIANG Y D, LI X Y, et al. Dietary protein requirement of juvenile red spotted grouper (Epinephelus akaara)[J]. Aquaculture, 2016, 450:289-294.

[4]
李诗洋, 胡俊茹, 黄燕华, 等. 肉食性仔稚鱼的营养需要与饲料开发的研究进展[J]. 饲料工业, 2023, 44(3):97-103.

LI S Y, HU J R, HUANG Y H, et al. Research progress on nutritional requirement and feed development of carnivorous larvae and juveniles[J]. Feed Industry, 2023, 44(3):97-103. (in Chinese)

[5]
WILSON R P. 3-amino acids and proteins[M]//HALVER J E, HARDY R W.Fish nutrition.3th ed. Amsterdam: Elsevier Inc., 2003:143-179.

[6]
LI R, HOU G F, JIANG X D, et al. Different dietary protein sources in low protein diets regulate colonic microbiota and barrier function in a piglet model[J]. Food & Function, 2019, 10(10):6417-6428.

[7]
WANG Y M, ZHOU J Y, WANG G, et al. Advances in low-protein diets for swine[J]. Journal of Animal Science and Biotechnology, 2018, 9:60.

DOI PMID

[8]
BREGENDAHL K, SELL J L, ZIMMERMAN D R. Effect of low-protein diets on growth performance and body composition of broiler chicks[J]. Poultry Science, 2002, 81(8):1156-1167.

DOI PMID

[9]
农业农村部渔业渔政管理局, 全国水产技术推广总站, 中国水产学会. 2024中国渔业统计年鉴[M]. 北京: 中国农业出版社, 2024.

Fishery and Fishery Administration Bureau of the Ministry of Agriculture and Rural Affairs, National Aquaculture Technology Promotion Station, Chinese Fisheries Society. 2024 China fishery statistical yearbook[M]. Beijing: China Agriculture Press, 2024. (in Chinese)

[10]
罗青, 陈昆慈, 赵建, 等. 乌鳢、斑鳢及其杂交F1代肌肉营养成分和含肉率的比较分析[J]. 大连海洋大学学报, 2015, 30(2):175-180.

LUO Q, CHEN K C, ZHAO J, et al. Dressed rates and muscular nutrients in northern snakehead Channa argus,Taiwan snakehead C. maculata and their hybrids[J]. Journal of Dalian Ocean University, 2015, 30(2):175-180. (in Chinese)

[11]
ALIYU-PAIKO M. HASHIM R, SHU-CHIEN A C. Influence of dietary lipid/protein ratio on survival,growth,body indices and digestive lipase activity in snakehead (Channa striatus,Bloch 1793) fry reared in re-circulating water system[J]. Aquaculture Nutrition, 2010, 16(5):466-474.

[12]
SAGADA G, CHEN J M, SHEN B Q, et al. Optimizing protein and lipid levels in practical diet for juvenile northern snakehead fish (Channa argus)[J]. Animal Nutrition, 2017, 3(2):156-163.

[13]
ZHANG Y F, SUN Z Z, WANG A L, et al. Effects of dietary protein and lipid levels on growth, body and plasma biochemical composition and selective gene expression in liver of hybrid snakehead (Channa maculata♀×Channa argus ) fingerlings[J]. Aquaculture, 2017, 468(Part 1):1-9.

[14]
姜大丽, 李治国, 姜永杰, 等. 乌鳢营养需求研究进展[J]. 饲料工业, 2021, 42(4):29-35.

JIANG D L, LI Z G, JIANG Y J, et al. Research advances in nutritional requirement of Channa argus[J]. Feed Industry, 2021, 42(4):29-35. (in Chinese)

[15]
聂国兴, 李学军, 乔志刚, 等. 乌鳢营养需要的初步研究[J]. 水利渔业, 2002, 22(1):8-9,11.

NIE G X, LI X J, QIAO Z G, et al. Studies on the nutritional requirements of the Chinese snakehead Channa argus[J]. Reservoir Fisheries, 2002(1):8-9,11. (in Chinese)

[16]
LIVAK K J, SCHMITTGEN T D. Analysis of relative gene expression data using real-time quantitative PCR and the 2-ΔΔCT method[J]. Methods, 2001, 25(4):402-408.

[17]
王纤纤, 曾本和, 刘乐乐, 等. 饲料蛋白质水平对异齿裂腹鱼生长、消化酶活性、非特异性免疫及蛋白质代谢反应的影响[J]. 水生生物学报, 2020, 44(4):693-706.

WANG Q Q, ZENG B H, LIU L L, et al. Effects of feed protein levels on growth,digestive enzyme activities,non-specific immunity and protein metabolism of Schizothorax oconnori[J]. Acta Hydrobiologica Sinica, 2020, 44(4):693-706. (in Chinese)

[18]
秦志清, 梁萍, 林建斌, 等. 饲料蛋白质水平对黑脊倒刺鲃幼鱼生长性能、消化酶活性、蛋白质代谢及肠道形态的影响[J]. 动物营养学报, 2023, 35(2):1134-1146.

DOI

QIN Z Q, LIANG P, LIN J B, et al. Effects of dietary protein levels on growth performance,digestive enzyme activities,protein metabolism and intestinal morphology of juvenile Spinibarbus caldwelli[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1134-1146. (in Chinese)

[19]
杨贺舒, 孙俊霄, 杨慧君, 等. 低蛋白质饲料对杂交黄颡鱼幼鱼生长性能、体组成、转氨酶活性和抗氧化能力的影响[J]. 水生生物学报, 2022, 46(1):79-87.

YANG H S, SUN J X, YANG H J, et al. Effects of low-protein diet on growth performance,body composition,transaminase activity and antioxidant capacity of yellow catfish hybrid[J]. Acta Hydrobiologica Sinica, 2022, 46(1):79-87. (in Chinese)

[20]
何林岳, 刘昊昆, 韩冬, 等. 低蛋白质饲料中补充必需氨基酸对异育银鲫生长、氨基酸转运和mTOR信号通路相关基因的影响[J]. 水生生物学报, 2024, 48(1):1-9.

HE L Y, LIU H K, HAN D, et al. Low-protein diets supplemented with essential amino acids on growth,amino acid transporters and gene expression of the mTOR signaling pathway in gibel carp (Carassius gibelio)[J]. Acta Hydrobiologica Sinica, 2024, 48(1):1-9. (in Chinese)

[21]
桂聪, 邓琦琦, 杨慧君, 等. 低蛋白质饲料添加蛋氨酸和赖氨酸对大口黑鲈生长性能和抗氧化能力的影响[J]. 华中农业大学学报, 2022, 41(6):184-191.

GUI C, DENG Q Q, YANG H J, et al. Effects of methionine and lysine supplementation in low protein diets on growth performance,body composition,antioxidant capacity and immune enzymes of largemouth bass (Micropterus salmoides)[J]. Journal of Huazhong Agricultural University, 2019, 42(6):1158-1166. (in Chinese)

[22]
GAYLORD T G, BARROWS F T. Multiple amino acid supplementations to reduce dietary protein in plant-based rainbow trout,Oncorhynchus mykiss,feeds[J]. Aquaculture, 2009, 287(1/2):180-184.

[23]
陈乃松, 梁勤朗, 肖温温, 等. 在低蛋白质饲料中补充必需氨基酸对大口黑鲈生长、体组成和免疫指标的影响[J]. 水生生物学报, 2014(2):262-271.

CHEN N S, LIANG Q L, XIAO W W, et al. Effects of supplementing EAA to lower protein diets on growth,body composition and immunological index of largemouth bass (Micropterus salmoides)[J]. Acta Hydrobiologica Sinica, 2014(2):262-271. (in Chinese)

[24]
徐田田, 许丹, 刘兴旺. 杂交鳢营养生理研究进展[J]. 饲料研究, 2021, 44(15):136-139.

XU T T, XU D, LIU X W. Recent advances in nutrition physiology of hybrid snakehead (Channa maculata♀×Channa argus )[J]. Feed Research, 2021, 44(15):136-139. (in Chinese)

[25]
席庆凯, 徐杭忠, 冯麒凤, 等. 低蛋白质饲料对湘云鲫幼鱼生长性能及肠道、肝脏健康的影响[J]. 动物营养学报, 2023, 35(6):3867-3877.

DOI

XI Q K, XU H Z, FENG Q F, et al. Effects of low protein diets on growth performance and intestinal and liver health of juvenile triploid crucian carp[J]. Chinese Journal of Animal Nutrition, 2023, 35(6):3867-3877. (in Chinese)

DOI

[26]
卓立应. 饲料蛋白能量比对黑鲷幼鱼生长和体组成的影响[D].硕士学位论文. 杭州: 浙江大学, 2006.

ZHUO L Y. Effect of dietary protein to energy ratios on growth andbody composition of juvenile black seabream (Sparus macrocephalus)[D].Master's Thesis. Hangzhou: Zhejiang University, 2006. (in Chinese)

[27]
曾本和, 刘海平, 王建, 等. 饲料蛋白质水平对拉萨裸裂尻鱼幼鱼肌肉氨基酸及蛋白质代谢的影响[J]. 中国水产科学, 2019, 26(6):1153-1163.

ZENG B H, LIU H P, WANG J, et al. Effects of dietary protein levels on muscular amino acids and proteinmetabolism of Schizopygopsis younghusbandi young husbandi regan[J]. Journal of Fishery Sciences of China, 2019, 26(6):1153-1163. (in Chinese)

[28]
GÓMEZ-REQUENI P, MINGARRO M, CALDUCH-GINER J A, et al. Protein growth performance,amino acid utilization and somatotropic axis responsiveness to fish meal replacement by plant protein sources in gilthead sea bream (Sparus aurata)[J]. Aquaculture, 2004, 232(1/2/3/4):493-510.

[29]
GEURDEN I, KAUSHIK S, CORRAZE G. Dietary phosphatidylcholine affects postprandial plasma levels and digestibility of lipid in common carp (Cyprinus carpio)[J]. British Journal of Nutrition, 2008, 100(3):512-517.

[30]
张庆功, 王建学, 卫育良, 等. 红鳍东方鲀幼鱼赖氨酸需求量的研究[J]. 动物营养学报, 2020, 32(2):847-855.

DOI

ZHANG Q G, WANG J X, WEI Y L, et al. Requirement of lysine in juvenile tiger puffer (Takifugu rubripes)[J]. Chinese Journal of Animal Nutrition, 2020, 32(2):847-855. (in Chinese)

[31]
VON ECKARDSTEIN A, NOFER J R, ASSMANN G. High density lipoproteins and arteriosclerosis.Role of cholesterol efflux and reverse cholesterol transport[J]. Arteriosclerosis,Thrombosis,and Vascular Biology, 2001, 21(1):13-27.

[32]
VON ECKARDSTEIN A, ASSMANN G. Prevention of coronary heart disease by raising high-density lipoprotein cholesterol?[J]. Current Opinion in Lipidology, 2000, 11(6):627-637.

DOI PMID

[33]
WULLSCHLEGER S, LOEWITH R, HALL M N. TOR signaling in growth and metabolism[J]. Cell, 2006, 124(3):471-484.

DOI PMID

[34]
KIM J, GUAN K L. mTOR as a central hub of nutrient signalling and cell growth[J]. Nature Cell Biology, 2019, 21(1):63-71.

[35]
ROMANO A, BARCA A, STORELLI C, et al. Teleost fish models in membrane transport research: the PepT1(SLC15A1) H+-oligopeptide transporter as a case study[J]. The Journal of Physiology, 2014, 592(5):881-897.

DOI PMID

[36]
WEI Y L, LIANG M Q, XU H G. Fish protein hydrolysate affected amino acid absorption and related gene expressions of IGF-1/AKT pathways in turbot (Scophthalmus maximus)[J]. Aquaculture Nutrition, 2020, 26(1):145-155.

[37]
GLASS D J. Skeletal muscle hypertrophy and atrophy signaling pathways[J]. The International Journal of Biochemistry & Cell Biology, 2005, 37(10):1974-1984.

[38]
SHENG Z Y, XU J M, ZHANG Y, et al. Dietary protein hydrolysate effects on growth,digestive enzymes activity,and expression of genes related to amino acid transport and metabolism of larval snakehead (Channa argus)[J]. Aquaculture, 2023, 563(Part 1):738896.

[39]
DAI M, LI S L, FU C F, et al. The potential role of marine protein hydrolyzates in elevating nutritive values of diets for largemouth bass,Micropterus salmoides[J]. Frontiers in Marine Science, 2020, 7:197.

[40]
JIN H O, SEO S K, WOO S H, et al. SP600125 negatively regulates the mammalian target of rapamycin via ATF4-induced Redd1 expression[J]. FEBS Letters, 2009, 583(1):123-127.

文章导航

/