研究论文

白藜芦醇对非酯化脂肪酸诱导奶牛肝细胞线粒体损伤、氧化应激、炎性损伤及细胞凋亡的影响

  • 安彦昊 , 1, 2, 3 ,
  • 马学虎 1 ,
  • 户春丽 1 ,
  • 王德志 2, 3 ,
  • 马燕芬 , 1, *
展开
  • 1 宁夏大学动物科技院,银川 750021
  • 2 宁夏反刍种性研究科技有限公司,银川 750001
  • 3 宁夏博瑞科技有限公司,银川 750001
*马燕芬,研究员,博士生导师,E-mail:

安彦昊(1997—),男,宁夏西吉人,硕士研究生,研究方向为动物营养与免疫。E-mail:

Copy editor: 武海龙

收稿日期: 2024-05-24

  网络出版日期: 2024-12-12

基金资助

宁夏自然科学基金项目(2023AAC03042)

宁夏留学回国人员创新创业项目(2023)

宁夏反刍动物营养科技创新团队(2024CXTD008)

银川市科技人才项目(2024KJRC008)

银川市奶牛高效健康养殖科研创新团队(2023CXTD32)

Effects of Resveratrol on Mitochondrial Damage, Oxidative Stress, Inflammatory Damage and Cell Apoptosis of Hepatocytes Induced by Non-Esterified Fatty Acids of Dairy Cows

  • AN Yanhao , 1, 2, 3 ,
  • MA Xuehu 1 ,
  • HU Chunli 1 ,
  • WANG Dezhi 2, 3 ,
  • MA Yanfen , 1, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Ningxia Ruminant Seed Research Technology Co., Ltd., Yinchuan 750001, China
  • 3 Ningxia Bo Rui Technology Co., Ltd., Yinchuan 750001, China
*professor, E-mail:

Received date: 2024-05-24

  Online published: 2024-12-12

摘要

本试验旨在研究白藜芦醇(RES)对非酯化脂肪酸(NEFA)诱导的奶牛肝细胞损伤的保护作用。试验设4组,分别为对照组(CON组,用饥饿培养基孵育肝细胞12 h)、NEFA组(用含1.2 mmol/L NEFA配制的饥饿培养基孵育肝细胞12 h)、RES组(用含20 μmol/L RES配制的饥饿培养基孵育肝细胞12 h)和RES+NEFA组(用含1.2 mmol/L NEFA+20 μmol/L RES共同配制的饥饿培养基孵育肝细胞12 h)。结果表明:NEFA组肝细胞中过氧化物酶体增殖激活受体γ共激活因子-1α(PGC-1α)、线粒体转录因子A(TFAM)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)和B淋巴细胞瘤-2(Bcl-2)的mRNA相对表达量显著或极显著低于CON组(P<0.05或P<0.01),肝细胞中核苷酸结合寡聚化结构域样受体蛋白3(NLRP3)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、天冬氨酸蛋白水解酶-3(Caspase-3)和天冬氨酸蛋白水解酶-9(Caspase-9)的mRNA相对表达量及活性氧(ROS)水平、肝细胞凋亡率极显著高于CON组(P<0.01);而添加RES则可显著或极显著逆转上述反应(P<0.05或P<0.01)。综上所述,添加RES可以缓解奶牛肝细胞线粒体功能损伤、细胞氧化应激、炎性反应和细胞凋亡。

本文引用格式

安彦昊 , 马学虎 , 户春丽 , 王德志 , 马燕芬 . 白藜芦醇对非酯化脂肪酸诱导奶牛肝细胞线粒体损伤、氧化应激、炎性损伤及细胞凋亡的影响[J]. 动物营养学报, 2024 , 36(12) : 8062 -8071 . DOI: 10.12418/CJAN2024.688

Abstract

The aim of this study was to investigate the protective effects of resveratrol (RES) on hepatocyte damage induced by non-esterified fatty acids (NEFA) of dairy cows. There were four experimental groups, namely the control group (CON group, incubated hepatocytes with starvation medium for 12 hours), NEFA group (incubated hepatocytes with starvation medium contained 1.2 mmol/L NEFA for 12 hours), RES group (incubated hepatocytes with starvation medium contained 20 μmol/L RES for 12 hours) and RES+NEFA group (incubated hepatocytes with starvation medium contained 1.2 mmol/L NEFA+20 μmol/L RES for 12 hours), respectively. The results showed as follows: the mRNA relative expression levels of peroxisome proliferator-activated receptor γ coactivator-1α (PGC-1α), mitochondrial transcription factor A (TFAM), superoxide dismutase (SOD), glutathione peroxidase (GSH-Px) and B-cell lymphoma-2 (Bcl-2) in hepatocytes of NEFA groups were significantly lower than those of CON group (P<0.05 or P<0.01), and the mRNA relative expression levels of nucleotide-binding oligomerization domain-like receptor protein 3 (NLRP3), interleukin-6 (IL-6), interleukin-8 (IL-8), cysteinyl aspartate specific proteinase-3 (Caspase-3) and cysteinyl aspartate specific proteinase-9 (Caspase-9), reactive oxygen species (ROS) and cell apoptosis rate in hepatocytes were significantly higher than those of CON group (P<0.01); and adding RES could significantly reversed the above responses (P<0.05 or P<0.01). In conclusion, the addition of RES can alleviate mitochondrial function damage, cellular oxidative stress, inflammatory response and cell apoptosis of hepatocytes of daily cows.

奶牛酮病是主要的产后营养代谢病,美国围产后期奶牛临床酮病的发病率为43%[1-2]。奶牛酮病的发病机制复杂,尤其是亚临床酮症,由于缺乏明显的病理变化和临床症状,酮病的诊断和预防相对困难[3-4]。目前,非酯化脂肪酸(non-esterified fatty acids,NEFA)是引起奶牛发生酮病的主要物质,其主要机理是当围产期奶牛发生能量负平衡(negative energy balance,NEB)时,机体会动员脂质产生甘油和脂肪酸,以弥补葡萄糖的不足[5-6],而大量动员脂质会增加NEFA的产生,过量NEFA会刺激酮体生成,引发奶牛酮病的发生[7]。生酮氨基酸也会通过丙酮酸氧化脱羧产生大量乙酰辅酶A积累在肝脏中[8],然后在酶的作用下生成丙酮,进一步生成酮体[9]。此外,肝脏从血浆中吸收的多余脂肪酸也可在肝细胞内代谢为酮体,从而诱发奶牛酮病[1,10]
高浓度的NEFA是发生奶牛酮病的主要特征,细胞中过量的NEFA会导致奶牛酮病的发生[1]。此外,围产期奶牛体内过量的NEFA被用作外周组织的能量底物时,会在β-氧化过程中增强活性氧(reactive oxygen species,ROS)的产生,进而引起氧化应激的发生[11]。研究发现,酮病奶牛肝脏丙二醛(malondialdehyde,MDA)含量显著增加,但超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)和过氧化氢酶(catalase,CAT)活性显著降低,表明酮病奶牛表现出严重的肝脏氧化应激,进而导致脂质过氧化、DNA损伤、线粒体功能障碍,并最终诱导细胞凋亡和组织损伤[12]。此外,氧化应激还会促进脂肪分解,从而导致血液或细胞中NEFA浓度升高,进入恶性循环[11]。NEFA浓度升高也会触发丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)和核因子-κB(nuclear factor kappa-B,NF-κB)信号通路,参与ROS诱导的奶牛原代肝细胞凋亡和炎性损伤的发生[13]。白藜芦醇(resveratrol,RES)作为一种非黄酮多酚化合物,具有抗炎、抗氧化、抗衰老和缓解细胞凋亡等功能[14-16]。研究表明,RES可通过增强抗氧化酶活性,抑制炎性因子分泌,缓解脂多糖(lipopolysaccharides,LPS)[17]和黄曲霉毒素B1[18]诱导的牛乳腺上皮细胞(bovine mammary epithelial cells,BMECs)的氧化应激和炎性反应[17]。但RES是否能缓解NEFA诱导的奶牛肝细胞损伤作用尚不清楚。基于上述分析,本试验采用NEFA构建奶牛肝细胞损伤模型,探讨RES作为抗氧化剂对NEFA诱导的奶牛肝细胞损伤的保护作用。

1 材料与方法

1.1 试验材料

1.1.1 试验样品

本试验所用奶牛原代肝细胞购自上海青旗细胞库。

1.1.2 主要试剂

主要试剂包括DMEM/F12培养基(上海雅酶生物医药科技有限公司)、胎牛血清(以色列BI公司)、磷酸盐缓冲液(PBS,北京索莱宝科技有限公司)、PrimeScriptTM RT reagent Kit with gDNA Eraser(北京宝日医生物技术有限公司)、细胞增殖及毒性检测试剂盒(大连美仑生物技术有限公司)、ROS检测试剂盒(上海碧云天生物技术有限公司)、线粒体膜电位检测试剂盒(上海碧云天生物技术有限公司)、膜联蛋白V-荧光素异硫氰酸酯(Annexin V-fluorescein isothiocyanate,Annexin V-FITC)细胞凋亡检测试剂盒(上海碧云天生物技术有限公司)、4%多聚甲醛固定液(美国Sigma公司)。
NEFA标准溶液配制:0.152 4 mL亚油酸,0.150 7 mL棕榈油酸,0.409 7 g硬脂酸,1.375 2 mL油酸,0.818 0 g棕榈酸。将其与113 mL 0.1 mol/L的氢氧化钾溶液在60 ℃水浴锅中搅拌溶解;加入7.5 mL 1 mol/L的盐酸和67.8 mL二馏水混合均匀,0.22 μm滤器无菌条件下过滤,分装,于-20 ℃冰箱保存。

1.2 试验方法

1.2.1 细胞培养和试验设计

将水浴锅解冻后的奶牛肝细胞接种在含有10%胎牛血清的DMEM/F12培养液中,37 ℃、5% CO2培养箱中培养。待细胞融合密度达80%~90%时,将肝细胞接种于6孔板中培养至细胞密度达60%~70%,将细胞分为对照组(CON组,用饥饿培养基孵育细胞12 h)、NEFA组(用含1.2 mmol/L NEFA配制的饥饿培养基孵育细胞12 h)、RES组(用含20 μmol/L RES配制的饥饿培养基孵育细胞12 h)和RES+NEFA组(用含1.2 mmol/L NEFA+20 μmol/L RES共同配制的饥饿培养基孵育细胞12 h)。

1.2.2 细胞活力检测

采用CCK-8试剂盒检测RES和NEFA对奶牛肝细胞活力的影响。将细胞种植到96孔板中,每孔1×10⁴个细胞,然后用不同浓度的RES(0、20、40、60、80、100 μmol/L)和NEFA(0、0.6、1.2、1.8 mmol/L)处理细胞12 h。每孔加入10 μL的CCK-8,37 ℃孵育1 h。酶标仪450 nm处测量吸光度(OD)值。

1.2.3 RNA提取和实时荧光定量PCR(qRT-PCR)测定

采用Trizol裂解法提取总RNA,并用多功能酶标仪检测RNA浓度。根据逆转录试剂盒说明书合成cDNA,并置于-20 ℃保存备用。PCR反应程序如下:95 ℃、3 min预变性,95 ℃、10 s变性,60 ℃、20 s退火温度,72 ℃、30 s延伸,循环40次。引物由通用生物系统(安徽)有限公司合成,引物序列见表1。以β-肌动蛋白(β-actin)为内参,测定天冬氨酸蛋白水解酶-3(cysteinyl aspartate specific proteinase-3,Caspase-3)、天冬氨酸蛋白水解酶-9(cysteinyl aspartate specific proteinase-9,Caspase-9)、B淋巴细胞瘤-2(B-cell lymphoma-2,Bcl-2)、核苷酸结合寡聚化结构域样受体蛋白3(nucleotide-binding oligomerization domain-like receptor protein 3,NLRP3)、白细胞介素-6(interleukin-6,IL-6)、白细胞介素-8(interleukin-8,IL-8)、SODGSH-Px、线粒体转录因子A(mitochondrial transcription factor A,TFAM)和过氧化物酶体增殖激活受体γ共激活因子-1α(peroxisome proliferator-activated receptor γ coactivator-1α,PGC-1α)表达量,采用2-ΔΔCt方法计算目的基因mRNA相对表达量。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
产物长度
Product size/bp
天冬氨酸蛋白水解酶-3
Caspase-3
F:AAGATTTAGTGCCGATGC
R:GACCACCAAGTTCTAGGATA
175
天冬氨酸蛋白水解酶-9
Caspase-9
F:TGGTGGTCATCCTGTCTC
R:CATCCATCTGTGCCATAAAC
76
B淋巴细胞瘤-2
Bcl-2
F:ATGACCGAGTACCTGAAC
R:CATACAGCTCCACAAAGG
79
核苷酸结合寡聚化结构域样受体蛋白3
NLRP3
F:TCTGCCATTCAGGTGTGGAC
R:TTCACCAAGCAGAAGGACCA
127
白细胞介素-6
IL-6
F:TGTGAAAGCAGCAAGGAG
R:TGAACCCAGATTGGAAGC
88
白细胞介素-8
IL-8
F:ACACATTCCACACCTTTCCAC
R:ACCTTCTGCACCCACTTTTC
149
超氧化物歧化酶
SOD
F:GACAAATCTGAGCCCTAA
R:AAGCAGCAATCTGTAAGC
185
谷胱甘肽过氧化物酶
GSH-Px
F:TGCGAGGTGAATGGCGAGAA
R:GGGACCAGGTGATGAACTTAGGG
118
线粒体转录因子A
TFAM
F:GTTCCTCCCAAGATTTCA
R:TGGCACATCACAGGTAAA
137
过氧化物酶体增殖激活受体γ共激活因子-1α
PGC-1α
F:GGATGGCACGCAGTCCTATT
R:GAACGAGAGCGCATCCTTTG
132
β-肌动蛋白
β-actin
F:CTGTCCCTGTATGCCTCTGG
R:GTGGTGGTGAAGCTGTAGCC
191

1.2.4 ROS水平检测

采用荧光探针2',7'-二氯荧光黄双乙酸盐(DCFH-DA)检测肝细胞中ROS水平。每孔加入1 mL稀释后的DCFH-DA,按照ROS检测试剂盒的操作说明,用PBS洗涤细胞1~2次,充分混合,在37 ℃、5% CO2培养箱中培养20 min。弃掉DCFH-DA后,每孔加入2 mL无抗体无血清培养基,洗涤3次,在显微镜下观察。使用Image J软件对细胞荧光进行定量分析。

1.2.5 线粒体膜电位(mitochondrial membrane potential,MMP)水平检测

按照MMP试剂盒检测说明,用PBS清洗细胞1~2次。然后每孔加入1 mL培养基和1 mL的JC-1染色液,充分混合,在37 ℃、5% CO2培养箱中孵育20 min;每孔加入预冷JC-1染色缓冲液2 mL,清洗2次;每孔加入2 mL培养基,显微镜下观察荧光变化情况;使用Image J软件对细胞荧光进行定量分析。

1.2.6 细胞凋亡率检测

采用Annexin V-FITC/碘化丙啶(propidium iodide,PI)双染色细胞凋亡检测试剂盒,根据说明书进行操作,用Annexin V-FITC和PI染色细胞,采用流式细胞仪和FlowJo-v10.6.2软件检测和计算细胞凋亡率。

1.3 数据分析

每个测试确保3个独立的技术重复,利用GraphPad Prism 8软件进行单因素方差分析,数据采用平均值±标准误表示。P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 RES和NEFA适宜剂量筛选

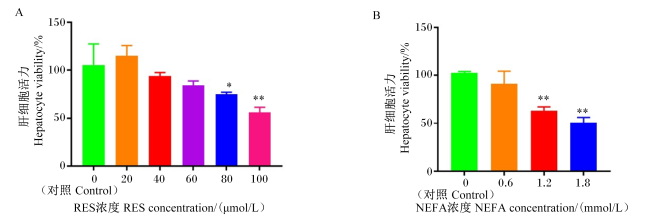
为了确定RES和NEFA的适宜剂量,采用CCK-8法分别评估RES和NEFA对奶牛肝细胞的潜在细胞毒性作用。由图1可见,随着RES浓度(0、20、40、60、80、100 μmol/L)的增加,肝细胞活力逐渐降低,当RES浓度为80和100 μmol/L时,肝细胞活力显著或极显著低于RES浓度为0 μmol/L时(P<0.05或P<0.01),且当RES浓度为20 μmol/L时肝细胞活力最高。随着NEFA浓度(0、0.6、1.2、1.8 mmol/L)的增加,肝细胞活力逐渐降低,当NEFA浓度为1.2和1.8 mmol/L时,肝细胞活力极显著低于NEFA浓度为0 mmol/L时(P<0.01),且当NEFA浓度为1.8 mmol/L时,肝细胞活力低于50%以上。基于以上分析,本试验选择20 μmol/L的RES和1.2 mmol/L的NEFA作为适宜剂量进行后续试验。
图1 不同浓度RES和NEFA对奶牛肝细胞活力的影响

*表示与对照组相比差异显著(P<0.05),**表示与对照组相比差异极显著(P<0.01)。

Fig.1 Effects of different concentrations of RES and NEFA on hepatocyte viability of dairy cows

* mean significant difference compared to the control group (P<0.05), ** mean extremely significant difference compared to the control group (P<0.01).

2.2 RES缓解NEFA诱导的奶牛肝细胞线粒体损伤

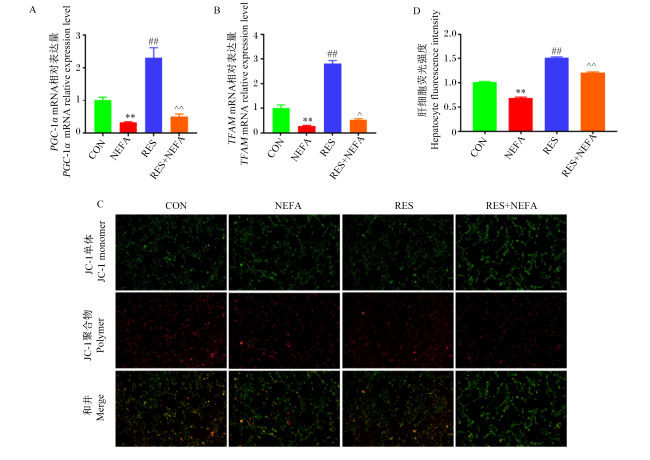
图2可见,NEFA组的肝细胞中PGC-1αTFAM的mRNA相对表达量极显著低于CON组(P<0.01),RES组和RES+NEFA组的肝细胞中PGC-1αTFAM的mRNA相对表达量显著或极显著高于NEFA组(P<0.05或P<0.01)。NEFA组的肝细胞荧光强度极显著低于CON组(P<0.01),RES组和RES+NEFA组的肝细胞荧光强度极显著高于NEFA组(P<0.01)。上述结果表明,NEFA诱导可下调肝细胞线粒体因子的表达,而RES则可缓解肝细胞线粒体因子表达的下调,表明RES可以减轻NEFA诱导的肝细胞线粒体损伤。
图2 RES对NEFA诱导的奶牛肝细胞线粒体损伤的影响

CON:对照组;NEFA:NEFA组;RES:RES组;RES+NEFA:RES+NEFA组。*表示与CON组相比差异显著(P<0.05),**表示与CON组相比差异极显著(P<0.01);#表示与NEFA组相比差异显著(P<0.05),##表示与NEFA组相比差异极显著(P<0.01);^表示与NEFA组相比差异显著(P<0.05),^^表示与NEFA组相比差异极显著(P<0.01)。下图同。

Fig.2 Effects of RES on NEFA-induced hepatocyte mitochondrial damage of dairy cows (100×)

CON: control group; NEFA: NEFA group; RES: RES group; RES+NEFA: RES+NEFA group. * mean significant difference compared to the CON group (P<0.05), ** mean extremely significant difference compared to the CON group (P<0.01); # mean significant difference compared to the NEFA group (P<0.05), ## mean extremely significant difference compared to the NEFA group (P<0.01); ^ mean significant difference compared to the NEFA group (P<0.05), ^^ mean extremely significant difference compared to the NEFA group (P<0.01). The same as below.

2.3 RES缓解NEFA诱导的奶牛肝细胞氧化应激

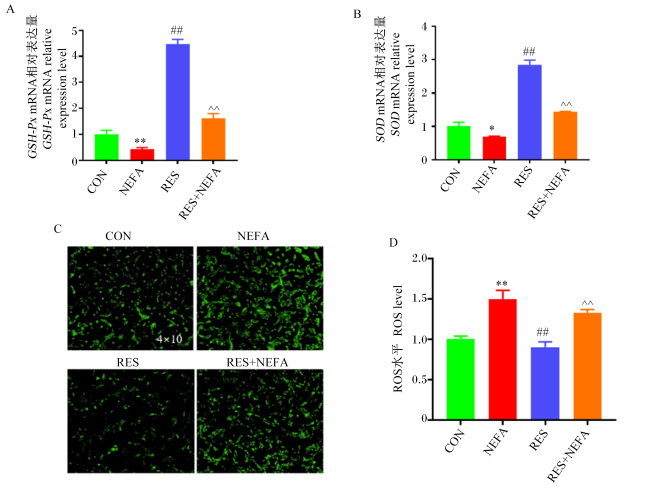
图3可见,NEFA组的肝细胞中GSH-PxSOD的mRNA相对表达量显著或极显著低于CON组(P<0.05或P<0.01),RES组和RES+NEFA组的肝细胞中GSH-PxSOD的mRNA相对表达量极显著高于NEFA组(P<0.01)。NEFA组的肝细胞中ROS水平极显著高于CON组(P<0.01),RES组和RES+NEFA组的肝细胞中ROS水平极显著低于NEFA组(P<0.01)。上述结果表明,RES可减轻NEFA诱导的奶牛肝细胞产生的氧化应激。
图3 RES对NEFA诱导的奶牛肝细胞氧化应激的影响

Fig.3 Effects of RES on NEFA-induced hepatocyte oxidative stress of dairy cows (40×)

2.4 RES缓解NEFA诱导的奶牛肝细胞炎性反应和细胞凋亡

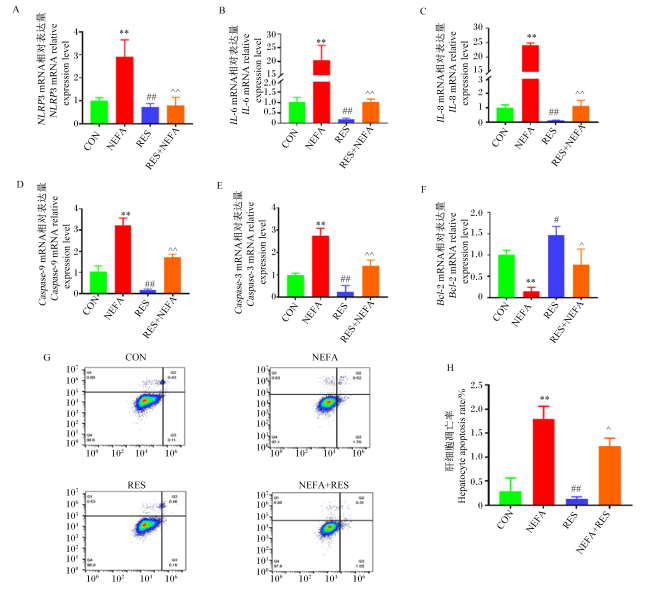
图4可见,NEFA组的肝细胞中NLRP3、IL-6、IL-8、Caspase-3和Caspase-9的mRNA相对表达量极显著高于CON组(P<0.01),Bcl-2的mRNA相对表达量极显著低于CON组(P<0.01);RES组和RES+NEFA组的肝细胞中NLRP3、IL-6、IL-8、Caspase-3和Caspase-9的mRNA相对表达量极显著低于NEFA组(P<0.01),Bcl-2的mRNA相对表达量显著高于NEFA组(P<0.05)。NEFA组的肝细胞凋亡率极显著高于CON组(P<0.01),RES组和RES+NEFA组的肝细胞凋亡率显著或极显著低于NEFA组(P<0.05或P<0.01)。上述结果表明,RES可减轻NEFA诱导的奶牛肝细胞炎性反应和细胞凋亡。
图4 RES对NEFA诱导的奶牛肝细胞炎性反应及凋亡的影响

Fig.4 Effects of RES on NEFA-induced hepatocyte inflammation and apoptosis of dairy cows

3 讨论

酮病作为高产奶牛围产期极度易发、危害性极大的一种营养代谢性疾病,会对奶牛健康、生产性能和繁殖性能产生负面影响,给养殖业造成了严重的经济损失和危害。虽然酮病的发病机理尚未完全阐明,但长期以来NEB被认为是酮病致病的关键因素,使得进入肝脏的NEFA不完全氧化生成大量酮体,最终导致奶牛酮病的发生。NEFA作为能量物质,可以在线粒体中被氧化产生ATP来提供机体能量所需[19],但奶牛围产后期产生大量的NEFA进入肝脏后不能被完全氧化时,可引起肝细胞发生氧化应激,从而产生过量的ROS[20]。ROS是细胞氧化损伤的中间介质,过量的ROS可以造成细胞线粒体损伤,诱导细胞发生炎性损伤,最终导致细胞发生凋亡[21-22]。氧化应激在机体发生炎性反应以及其他炎性损伤过程中起到关键作用,当产生的ROS超过机体抗氧化能力时,就会发生氧化应激,最终导致细胞中大分子的氧化损伤和功能障碍。ROS和MDA作为氧化应激评定的指标,在酮病奶牛中NEFA可以诱导机体产生大量的ROS和MDA[23],并且可以显著损伤线粒体功能[24]。此外,核因子红细胞系2相关因子2(nuclear factor erythroid 2 related factor 2,Nrf2)作为抗氧化与炎性反应的关键转录因子,可以被RES激活后增加细胞内抗氧化酶GSH-Px和SOD的活性,发挥抗氧化作用[25]。本试验发现,NEFA可降低肝细胞抗氧化酶SODGSH-Px的mRNA相对表达量,增加ROS水平,而添加RES则可显著逆转这种现象,通过提高SOD和GSH-Px的活性,降低ROS水平来缓解氧化应激的发生,进而防止氧化应激引起的肝细胞炎性损伤和凋亡。
核转录辅助激活因子PGC-1α被认为是线粒体生物功能发挥的主要调节因子[23],在调节线粒体功能和能量稳态方面发挥着重要的调节作用[26]。PGC-1α可通过调节Nrf2激活TFAM,进而调节线粒体生物发生过程。Kim等[27]的研究发现,RES可通过一氧化碳增加环磷酸鸟苷(cyclic guanosine monophosphate c,GMP)和PGC-1α含量来诱导线粒体的生物发生。本研究发现,添加RES可抑制NEFA诱导的肝细胞中PGC-1α表达的下调,进而诱导线粒体生物发生,缓解肝细胞线粒体损伤。此外,Zhou等[18]的研究发现,RES可以降低黄曲霉毒素B1诱导的细胞毒性,恢复奶牛乳腺上皮细胞系中MMP水平,并提高TFAM的mRNA相对表达量。本研究结果也发现,添加RES可缓解NEFA诱导的线粒体因子TFAM的mRNA相对表达量下降,恢复MMP水平,进一步表明RES可通过增强线粒体生物发生缓解肝细胞线粒体损伤。
NF-κB信号通路在免疫、炎性反应和代谢性疾病中发挥重要作用[28-29]。NF-κB靶基因表达有助于生理条件下的细胞存活,但当发生炎性损伤时,NF-κB亚单位p65与核因子-κB抑制蛋白(nuclear factor-κB inhibitor protein,IκB)分离并移位到细胞核中,启动多个下游信号通路,释放促炎因子肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、IL-8和IL-6,诱发炎性反应。NF-κB的活化不仅上调了许多炎性细胞因子和细胞因子前体的表达,还会诱导NLRP3的转录,其对炎症小体的激活至关重要[30-31]。此前的研究认为,LPS刺激细胞外Toll样受体4(Toll-like receptor 4,TLR4)受体,并通过NF-κB信号通路引起炎症[32]。NF-κB/NLRP3信号通路在酮病奶牛中被激活后可显著提高乳腺组织中促炎因子IL-8、TNF-αIL-6的mRNA相对表达量,进一步诱导乳腺发生炎性损伤[33]。越来越多的证据表明,NF-κB信号通路和NLRP3炎症小体的激活会导致肝损伤和代谢功能障碍[34]。本试验用NEFA诱导肝细胞发现,NLRP3、IL-8和IL-6的mRNA相对表达量显著升高;而当加入RES后,NLRP3、IL-8和IL-6的mRNA相对表达量显著下降,有效缓解了肝细胞的炎性反应。
细胞凋亡可以受到很多因素的影响,如线粒体功能障碍[35]、DNA损伤[36]、内质网应激[37]等。半胱天冬酶家族和Bcl-2家族作为细胞凋亡的主要调节因子,在细胞凋亡过程中发挥着重要的作用[38-39]。本试验发现,NEFA诱导上调了肝细胞凋亡的主要调节因子Caspase-3和Bcl-2的mRNA相对表达量,而当加入RES后则可通过抑制Caspase-3和Bcl-2的mRNA相对表达量的上调来抑制细胞凋亡。研究表明,线粒体功能发生障碍可以使细胞色素C释放到细胞质中与Caspase-9和凋亡酶激活因子-1(apoptotic protease activating factor-1,Apaf-1)结合,形成细胞凋亡体从而启动细胞凋亡程序,最终导致细胞凋亡[40]。本试验发现,NEFA诱导奶牛肝细胞发生损伤后,Caspase-9的mRNA相对表达量显著增加,导致细胞凋亡程序启动,而添加RES则可抑制Caspase-9的mRNA相对表达量的增加,抑制细胞凋亡程序启动,从而缓解NEFA诱导产生的肝细胞凋亡。

4 结论

① NEFA诱导奶牛肝细胞损伤的适宜剂量为1.2 mmol/L,RES缓解奶牛肝细胞损伤的适宜剂量为20 μmol/L。
② NEFA通过上调炎性因子、氧化因子、促凋亡因子的mRNA表达,下调抗氧化酶、线粒体基因、抑凋亡因子的mRNA表达,导致奶牛肝细胞发生氧化应激、炎性反应、线粒体损伤和细胞凋亡;添加RES则可逆转这些损伤,进而缓解肝细胞线粒体损伤、氧化应激、炎性反应和细胞凋亡。
[1]
WHITE H M. The role of TCA cycle anaplerosis in ketosis and fatty liver in periparturient dairy cows[J]. Animals, 2015, 5(3):793-802.

DOI PMID

[2]
MCART J A A, NYDAM D V, OSPINA P A, et al. A field trial on the effect of propylene glycol on milk yield and resolution of ketosis in fresh cows diagnosed with subclinical ketosis[J]. Journal of Dairy Science, 2011, 94(12):6011-6020.

DOI PMID

[3]
GRUMMER R R, MASHEK D G, HAYIRLI A. Dry matter intake and energy balance in the transition period[J]. The Veterinary Clinics of North America:Food Animal Practice, 2004, 20(3):447-470.

[4]
ZHANG G S, AMETAJ B N. Ketosis an old story under a new approach[J]. Dairy, 2020, 1(1):42-60.

[5]
GROSS J J, SCHWARZ F J, EDER K, et al. Liver fat content and lipid metabolism in dairy cows during early lactation and during a mid-lactation feed restriction[J]. Journal of Dairy Science, 2013, 96(8):5008-5017.

DOI PMID

[6]
FARID A S, HONKAWA K, FATH E M, et al. Serum paraoxonase-1 as biomarker for improved diagnosis of fatty liver in dairy cows[J]. BMC Veterinary Research, 2013, 9:73.

DOI PMID

[7]
WU Z L, CHEN S Y, HU S Q, et al. Metabolomic and proteomic profiles associated with ketosis in dairy cows[J]. Frontiers in Genetics, 2020, 11:551587.

[8]
GERICH J E, MEYER C, WOERLE H J, et al. Renal gluconeogenesis:its importance in human glucose homeostasis[J]. Diabetes Care, 2001, 24(2):382-391.

[9]
SUNDRUM A. Metabolic disorders in the transition period indicate that the dairy cows’ ability to adapt is overstressed[J]. Animals, 2015, 5(4):978-1020.

[10]
OSPINA P A, NYDAM D V, STOKOL T, et al. Associations of elevated nonesterified fatty acids and beta-hydroxybutyrate concentrations with early lactation reproductive performance and milk production in transition dairy cattle in the northeastern United States[J]. Journal of Dairy Science, 2010, 93(4):1596-1603.

DOI PMID

[11]
ABUELO A, HERNÁNDEZ J, BENEDITO J L, et al. The importance of the oxidative status of dairy cattle in the periparturient period: revisiting antioxidant supplementation[J]. Journal of Animal Physiology and Animal Nutrition, 2015, 99(6):1003-1016.

DOI PMID

[12]
DU X L, CHEN L, HUANG D, et al. Elevated apoptosis in the liver of dairy cows with ketosis[J]. Cellular Physiology and Biochemistry:International Journal of Experimental Cellular Physiology,Biochemistry,and Pharmacology, 2017, 43(2):568-578.

[13]
SHI Z, LI X B, PENG Z C, et al. Berberine protects against NEFA-induced impairment of mitochondrial respiratory chain function and insulin signaling in bovine hepatocytes[J]. International Journal of Molecular Sciences, 2018, 19(6):1691.

[14]
CHEN L B, MUSA A E. Boosting immune system against cancer by resveratrol[J]. Phytotherapy Research:PTR, 2021, 35(10):5514-5526.

[15]
JEYARAMAN M M, AL-YOUSIF N S H, SINGH MANN A, et al. Resveratrol for adults with type 2 diabetes mellitus[J]. The Cochrane Database of Systematic Reviews, 2020, 1(1):CD011919.

[16]
GLIGORIJEVIĆ N, STANIĆ-VUČINIĆ D, RADOMIROVIĆ M, et al. Role of resveratrol in prevention and control of cardiovascular disorders and cardiovascular complications related to COVID-19 disease: mode of action and approaches explored to increase its bioavailability[J]. Molecules, 2021, 26(10):2834.

[17]
LI R H, FANG H T, SHEN J L, et al. Curcumin alleviates LPS-induced oxidative stress,inflammation and apoptosis in bovine mammary epithelial cells via the NFE2L2 signaling pathway[J]. Toxins, 2021, 13(3):208.

[18]
ZHOU Y F, JIN Y C, YU H, et al. Resveratrol inhibits aflatoxin B1-induced oxidative stress and apoptosis in bovine mammary epithelial cells and is involved the Nrf2 signaling pathway[J]. Toxicon, 2019, 164:10-15.

DOI PMID

[19]
STICH V, BERLAN M. Physiological regulation of NEFA availability: lipolysis pathway[J]. The Proceedings of the Nutrition Society, 2004, 63(2):369-374.

[20]
WANG Y R, LI C M, LI J L, et al. Non-esterified fatty acid-induced reactive oxygen species mediated granulosa cells apoptosis is regulated by Nrf2/p53 signaling pathway[J]. Antioxidants(Basel,Switzerland), 2020, 9(6):523.

[21]
LIU M L, WU X, CUI Y L, et al. Mitophagy and apoptosis mediated by ROS participate in AlCl3-induced MC3T3-E1 cell dysfunction[J]. Food and Chemical Toxicology:an International Journal Published for the British Industrial Biological Research Association, 2021, 155:112388.

[22]
ZENG H C, ZHU B Q, WANG Y Q, et al. ROS-triggered autophagy is involved in PFOS-induced apoptosis of human embryo liver L-02 cells[J]. BioMed Research International, 2021, 2021:6625952.

[23]
LI Y, DING H Y, WANG X C, et al. An association between the level of oxidative stress and the concentrations of NEFA and BHBA in the plasma of ketotic dairy cows[J]. Journal of Animal Physiology and Animal Nutrition, 2016, 100(5):844-851.

DOI PMID

[24]
GAO W W, DU X L, LEI L, et al. NEFA-induced ROS impaired insulin signalling through the JNK and p38MAPK pathways in non-alcoholic steatohepatitis[J]. Journal of Cellular and Molecular Medicine, 2018, 22(7):3408-3422.

DOI PMID

[25]
RUBIOLO J A, MITHIEUX G, VEGA F V. Resveratrol protects primary rat hepatocytes against oxidative stress damage:activation of the Nrf2 transcription factor and augmented activities of antioxidant enzymes[J]. European Journal of Pharmacology, 2008, 591(1/2/3):66-72.

[26]
ZHANG X N, LI X, JIA H T, et al. The m6A methyltransferase METTL3 modifies PGC-1α mRNA promoting mitochondrial dysfunction and oxLDL-induced inflammation in monocytes[J]. Journal of Biological Chemistry, 2021, 297(3):101058.

[27]
KIM S K, JOE Y, ZHENG M, et al. Resveratrol induces hepatic mitochondrial biogenesis through the sequential activation of nitric oxide and carbon monoxide production[J]. Antioxidants & Redox Signaling, 2014, 20(16):2589-2605.

[28]
JOBE F, SIMPSON J, HAWES P, et al. Respiratory syncytial virus sequesters NF-κB subunit p65 to cytoplasmic inclusion bodies to inhibit innate immune signaling[J]. Journal of Virology, 2020, 94(22):10.1128/jvi.01380-20.

[29]
LI A L, YANG J J, ZHANG C, et al. Lactobacillus acidophilus KLDS 1.0738 inhibits TLR4/NF-kappaB inflammatory pathway in beta-lactoglobulin-induced macrophages via modulating miR-146a[J]. Journal of Food Biochemistry, 2021, 45(10):e13662.

[30]
MA M R, PEI Y F, WANG X X, et al. LncRNA XIST mediates bovine mammary epithelial cell inflammatory response via NF-κB/NLRP3 inflammasome pathway[J]. Cell Proliferation, 2019, 52(1):e12525.

[31]
LAMKANFI M, DIXIT V M. Mechanisms and functions of inflammasomes[J]. Cell, 2014, 157(5):1013-1022.

DOI PMID

[32]
MA X Y, LI Y J, SHEN W X, et al. LPS mediates bovine endometrial epithelial cell pyroptosis directly through both NLRP3 classical and non-classical inflammasome pathways[J]. Frontiers in Immunology, 2021, 12:676088.

[33]
SUN X D, TANG Y, JIANG C H, et al. Oxidative stress,NF-κB signaling NLRP3 inflammasome,and caspase apoptotic pathways are activated in mammary gland of ketotic Holstein cows[J]. Journal of Dairy Science, 2021, 104(1):849-861.

[34]
WREE A, EGUCHI A, MCGEOUGH M D, et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis,liver inflammation,and fibrosis in mice[J]. Hepatology, 2014, 59(3):898-910.

[35]
KIM S H, KIM H. Inhibitory effect of astaxanthin on oxidative stress-induced mitochondrial dysfunction-a mini-review[J]. Nutrients, 2018, 10(9):1137.

[36]
BENT E H, MILLÁN-BAREA L R, ZHUANG I, et al. Microenvironmental IL-6 inhibits anti-cancer immune responses generated by cytotoxic chemotherapy[J]. Nature Communications, 2021, 12(1):6218.

DOI PMID

[37]
LI F H, YANG Y, YANG L L, et al. Resveratrol alleviates FFA and CCl4 induced apoptosis in HepG2 cells via restoring endoplasmic reticulum stress[J]. Oncotarget, 2017, 8(27):43799-43809.

[38]
JENDROSSEK V. The intrinsic apoptosis pathways as a target in anticancer therapy[J]. Current Pharmaceutical Biotechnology, 2012, 13(8):1426-1438.

PMID

[39]
BRENTNALL M, RODRIGUEZ-MENOCAL L, DE GUEVARA R L, et al. Caspase-9,caspase-3 and caspase-7 have distinct roles during intrinsic apoptosis[J]. BMC Cell Biology, 2013, 14:32.

[40]
ESKES R, DESAGHER S, ANTONSSON B, et al. Bid induces the oligomerization and insertion of Bax into the outer mitochondrial membrane[J]. Molecular and Cellular Biology, 2000, 20(3):929-935.

DOI PMID

文章导航

/