研究论文

高产纤维素降解菌筛选、诱变选育及其秸秆降解效果研究

  • 陈欢 , 1 ,
  • 史子浩 1 ,
  • 吴春会 1 ,
  • 李秋凤 1 ,
  • 徐领 1 ,
  • 贾海阔 1 ,
  • 刘震灵 1 ,
  • 高艳霞 1, 2 ,
  • 王明亚 , 1, 2, * ,
  • 刘振宇 , 3, * ,
  • 刘忠宽 3
展开
  • 1 河北农业大学动物科技学院,保定 071000
  • 2 农业农村部奶牛健康养殖重点实验室(省部共建),保定 071000
  • 3 河北省农林科学院农业资源环境研究所,石家庄 050051
*王明亚,副教授,硕士生导师,E-mail: ;
刘振宇,副研究员,E-mail:

陈 欢(1999—),男,河北承德人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-06-11

  网络出版日期: 2024-12-12

基金资助

河北省现代农业产业技术体系建设专项资金(HBCT2023160205)

国家奶牛产业技术体系(CARS-36-20)

河北农业大学引进人才科研专项(YJ201826)

Screening, Mutation Breeding and Straw Degradation Effects of High-Yield Cellulase Strains

  • CHEN Huan , 1 ,
  • SHI Zihao 1 ,
  • WU Chunhui 1 ,
  • LI Qiufeng 1 ,
  • XU Ling 1 ,
  • JIA Haikuo 1 ,
  • LIU Zhenling 1 ,
  • GAO Yanxia 1, 2 ,
  • WANG Mingya , 1, 2, * ,
  • LIU Zhenyu , 3, * ,
  • LIU Zhongkuan 3
Expand
  • 1 College of Animal Science and Technology, Hebei Agricultural University, Baoding 071000, China
  • 2 Key Laboratory of Healthy Breeding in Dairy Cattle, Ministry of Agriculture and Rural Affairs (Co-Construction by Ministry and Province), Baoding 071000, China
  • 3 Institute of Agricultural Resources and Environment, Hebei Academy of Agriculture and Forestry Sciences, Shijiazhuang 050051, China
*WANG Mingya, associate professor, E-mail: ;
LIU Zhenyu, associate professor, E-mail:

Received date: 2024-06-11

  Online published: 2024-12-12

摘要

本研究旨在选育高产纤维素降解菌,以提高纤维素降解效率。试验从肉牛瘤胃液中通过刚果红染色法筛选出纤维素降解菌,然后经常压室温等离子体(ARTP)诱变后筛选出高效纤维素降解菌株,并对其秸秆降解效果进行研究。结果表明:1)从肉牛瘤胃液中筛选得到初始菌株纤维素降解菌C8,其全酶(FPA)、外切葡聚糖酶(C1)、内切葡聚糖酶(CMC)和β-葡萄糖苷酶(β-Gase)活力分别为3.96、1.08、2.21和0.51 U/mL,其秸秆干物质降解率为35.79%,经生物学鉴定为枯草芽孢杆菌(Bacillus subtilis),命名为枯草芽孢杆菌C8。2)以枯草芽孢杆菌C8为初始菌株通过ARTP进行诱变,筛选得到突变菌株AC83,其FPA、C1、CMC和β-Gase活力分别为6.31、1.18、3.63和1.05 U/mL,相较初始菌株分别提高了59.34%、9.26%、64.25%和105.88%;秸秆干物质降解率为43.64%,较初始菌株提高了21.93%。3)突变菌株AC83经过连续6代培养,具有良好的遗传稳定性。本研究筛选得到突变菌株AC83具有较强的纤维素降解能力,为提高饲料转化率提供了更多可能。

本文引用格式

陈欢 , 史子浩 , 吴春会 , 李秋凤 , 徐领 , 贾海阔 , 刘震灵 , 高艳霞 , 王明亚 , 刘振宇 , 刘忠宽 . 高产纤维素降解菌筛选、诱变选育及其秸秆降解效果研究[J]. 动物营养学报, 2024 , 36(12) : 8126 -8136 . DOI: 10.12418/CJAN2024.693

Abstract

The aim of this study was to breed high-yield cellulose degrading bacteria to improve the efficiency of cellulose degradation. Cellulose degrading bacteria were screened from rumen fluid of beef cattle by Congo-Red staining method, and then high cellulose degrading bacteria were screened after (atmospheric room temperature plasma) ARTP mutagenesis, and the degradation effects of straw were studied. The results show as follows: 1) the initial cellulose-degrading strain C8 was screened from rumen fluid of beef cattle. The holoenzyme (FPA), exoglucanase (C1), endoglucanase (CMC) and β-glucosidase (β-Gase) activities of strain C8 were 3.96, 1.08, 2.21 and 0.51 U/mL, respectively, and the dry matter degradation rate of straw was 35.79%. It was biologically identified as Bacillus subtilis and named Bacillus subtilis C8. 2) Using Bacillus subtilis C8 as the initial strain, the mutant strain AC83 was selected by ARTP mutagenesis, and its FPA, C1, CMC and β-Gase activities were 6.31, 1.18, 3.63 and 1.05 U/mL, respectively. Compared with the original strain, they increased by 59.34%, 9.26%, 64.25% and 105.88%, respectively. The dry matter degradation rate of straw was 43.64%, which was 21.93% higher than that of the initial strain. 3) The mutant strain AC83 had good genetic stability after 6 successive generations of culture. In this study, the mutant strain AC83 is screened to have strong cellulose degradation ability, which provides more possibilities for improving feed conversion rate.

纤维素是由D-葡萄糖通过β-1,4-糖苷键结合形成的一种多糖,构成了植物干物质的35%~50%[1]。秸秆直接饲喂家畜,水溶性碳水化合物含量低,粗纤维含量高,营养价值低,不易采食,其有效进食能量远不能满足家畜的需要[2]。反刍动物瘤胃虽然能分泌纤维素酶,但产量有限,生产中添加外源性纤维素酶对牧草进行青贮,或者在体外预处理秸秆能够有效改善营养物质含量及在瘤胃的降解率[3-4]。但作为蛋白质,外源性纤维素酶存在稳定性低、酶系不完整以及生产成本高等问题,限制了其应用范围[5]。纤维素降解菌能分泌纤维素酶,且酶系完整、经济实惠,在提高饲草和秸秆消化率方面有较大的潜能[6]。近年来,纤维素降解菌的分离筛选成为了研究热点,研究者持续进行纤维素降解菌株的筛选[7-8],分离出的菌株虽具有一定的产酶能力,但存在纤维素分解能力不足等问题,如对秸秆的降解率仅为7.3%左右[9]。因此,不断分离选育高产纤维素酶菌株,对提高粗饲料利用率具有重要意义。
常压室温等离子体(atmospheric room temperature plasma,ARTP)是一种强大的新型物理微生物诱变工具,可用于创建微生物突变文库[10]。ARTP的等离子体发生器不需要复杂的真空系统,能够在室温下灵活操作,避免了对热敏感的微生物可能造成的热损伤[11]。ARTP的主要成分是高密度的活性化学物质,它可以破坏细胞壁和细胞膜,以及损伤DNA和蛋白质,从而产生突变并破坏细胞基因组[12]。与其他突变方法相比,ARTP具有气体温度低且可控、化学活性物种丰富、突变快以及安全性和操作灵活性高等优点[13]。该技术已在细菌、真菌和微藻等100多种微生物上进行诱变育种[14]。国内外采用ARTP技术改造纤维素分解菌的研究较少,且未经过诱变得到的菌株纤维素酶活力低,因此迫切需要进行遗传改造,来提高产酶能力。因此,本研究从肉牛瘤胃液中筛选纤维素降解菌,利用ARTP诱变育种筛选出高效纤维素降解菌,并分析突变菌株对玉米秸秆的降解能力,以获得稳定高效的纤维素降解菌株,为高效纤维素降解菌株的选育奠定基础。

1 材料与方法

所有动物使用和试验程序均由河北农业大学动物保健委员会批准(批准号:JGL202102)。

1.1 样品来源

西门塔尔牛瘤胃液采集于保定市定兴县燕园肉牛饲养有限公司,经4层纱布过滤后存放在保温瓶中,带回实验室与无菌水1∶9(体积比)混合后放入锥形瓶中,37 ℃振荡20 min,制得悬浮液。
羧甲基纤维素钠(CMC-Na)、3,5-二硝基水杨酸(DNS)、无淀粉滤纸、脱脂棉及水杨苷等购自北京索莱宝科技有限公司。

1.2 试验所用培养基

牛肉膏蛋白胨培养基:牛肉膏3 g/L、蛋白胨10 g/L、NaCl 5 g/L,pH 7.0。CMC-Na液体培养基:CMC-Na 10 g/L,K2HPO4 1.0 g/L,NH4NO3 1.0 g/L,CaCl2 0.02 g/L,MgSO4·7H2O 0.2 g/L,FeCl3·6H2O 0.05 g/L,pH 7.0,固体培养基加琼脂15 g/L。赫奇逊液体培养基:KH2PO4 1.0 g/L,MgSO4·7H2O 0.3 g/L,NaCl 0.1 g/L,NaNO3 2.5 g/L,FeCl3 0.01 g/L,CaCl2 0.1 g/L。刚果红染色液:称取0.1 g分析纯刚果红溶于100 mL蒸馏水中。氯化钠溶液:称取5.85 g氯化钠粉末溶于100 mL蒸馏水中。产酶培养基:(NH4)2SO4 2.0 g/L,KH2PO4 3.0 g/L,CoCl2 3.0 g/L,FeSO4 7.5 g/L,MnSO4·H2O 2.5 g/L,ZnSO4·7H2O 2.0 g/L,MnSO4·7H2O 0.5 g/L,CaCl2 0.5 g/L。葡萄糖标准溶液:将10 g葡萄糖烘干至恒重,用1% CMC-Na的0.05 mL盐缓冲液溶解并定容至100 mL,4 ℃保存。

1.3 试验方法

1.3.1 纤维素降解菌株的筛选

取10 mL悬浮液按1∶9的比例加入牛肉膏蛋白胨液体培养基中。在恒温振荡培养箱(HZQ-X100)中进行37 ℃、150 r/min、24 h的培养。将富集培养后的菌液做标准液按10倍级数稀释,吸取各稀释倍数的菌液50 μL涂于CMC-Na固体培养基上,在37 ℃条件下进行24 h的细菌培养,每个稀释倍数3次重复。
将纯化的菌株通过接种环分离出单个菌落,放置在CMC-Na固体平板上,置于37 ℃的恒温培养箱(LRH-150)中,进行倒置培养。待细菌生长2 d后,用刚果红染色30 min,之后用1 mol/L NaCl溶液脱色30 min[15]。当出现一个清晰透明圈,测量透明圈直径与菌落直径,计算透明圈直径/菌落直径(D/d)值并选择平均值比较大的菌株。
将所获得菌液以2%的添加量置于液体培养基中,于37 ℃、150 r/min下培养10 d,每组3个平行,根据滤纸崩解情况判断其降解纤维素能力。

1.3.2 纤维素酶活力测定

分别吸取1 mg/mL的葡萄糖标准溶液0、0.2、0.4、0.6、0.8、1.0、1.2、1.4 mL于试管中,添加蒸馏水至2 mL,加入DNS显色剂2 mL混匀,沸水浴5 min后冷却至室温,再次加蒸馏水至20 mL混匀,随后在波长540 nm下,以未加入葡萄糖标准溶液作为对照调0点,测定其他溶液的光密度(optical density,OD)值并记录结果。
采用DNS显色法,测定全酶(FPA)、外切葡聚糖酶(C1)、内切葡聚糖酶(CMC)和β-葡萄糖苷酶(β-Gase)活力[16],酶活力单位为U/mL,定义为1 mL粗酶液每分钟催化底物水解生成1 μg葡萄糖需要的酶量[17]。酶活力计算公式如下:
酶活力(U/mL)=(葡萄糖含量×酶液定容总体积×5.56)/(酶液加入量×样品重×时间)。
式中:5.56为1 mg葡萄糖的μmol数(1 000/180≈5.56)。

1.3.3 秸秆降解试验

将玉米秸秆50 ℃烘干至恒重,切短至1 cm,将2%的菌液接种于赫奇逊培养基上,同时以等体积的无菌水代替菌液作为对照,于37 ℃下以150 r/min进行30 d的培养,每个处理设3次重复。培养结束后,采用纱布过滤,反复洗涤至无菌,65 ℃烘干至恒重,采用失重法计算秸秆干物质降解率。计算公式为:
秸秆干物质降解率(%)=[(W0-Wt)/W0]×100。
式中:W0为初始秸秆干重;Wt为培养t天后秸秆干重。

1.3.4 纤维素降解菌株的鉴定

选取纤维素降解效果优良的菌株,提取DNA并进行PCR扩增,产物委托北京智胜伟业生物科技有限公司对其16S rRNA进行测序,并用NCBI数据库(www.ncbi.nlm.nih.gov)对其进行同源比对。

1.3.5 ARTP诱变

菌悬液制备:挑取初始菌株单菌落转接至5 mL CMC-Na培养基中,37 ℃、220 r/min条件下培养6 h至菌体对数生长期,每1 mL菌液离心5 min,离心力为2 450×g,再用无菌水冲洗2次,最后重新悬浮在无菌水及5%甘油中,调节菌浓度在106~108个/mL,以备诱变使用。
ARTP诱变:提前将载片进行高压蒸汽灭菌并烘干冷却,取20 μL以对数期菌悬液均匀涂在ARTP专用载片上。打开仪器开关、冷凝水开关和氦气阀门,并开启紫外灯,照射30 min。ARTP诱变条件设置为:工作功率为120 W,空气流量10 L/min,处理间距2 mm,循环冷却水温度20 ℃;处理时间分别为0、60、90和120 s。处理后,将所有样品置于含有1 mL无菌水的EP管中。完成诱变后,将所有样品振荡洗脱1 min,并稀释至适当梯度,吸取100 μL涂于CMC-Na固体平板上,37 ℃进行传代,计算其致死率,并绘制致死率曲线。致死率计算公式如下:
致死率(%)=[(A-B)/B]×100。
式中:A为未经诱变处理的平板上生长的菌落数;B为经过诱变处理的平板上生长的菌落数。

1.3.6 突变菌株的筛选

方法同1.3.1、1.3.2和1.3.3,从而筛选得到纤维素酶提高的突变菌株。

1.3.7 遗传稳定性检验

将筛选得到的突变菌株在产酶培养基中连续6次传代培养,测定每一代的酶活,以此来检验突变菌株酶活的稳定性能否遗传给下一代。

1.4 数据统计与分析

采用Excel 2019对试验数据进行初步整理,然后采用SPSS 23.0软件进行单因素方差分析,再用Duncan氏法对数据进行多重比较,P<0.05表示差异显著;采用GraphPad Prism 9.5软件对试验数据进行图表绘制,结果数据用“平均值±标准差”表示。

2 结果与分析

2.1 纤维素降解菌株的筛选

以西门塔尔牛瘤胃液为样品,使用刚果红染色法对CMC-Na固体平板进行染色,获得7株纤维素降解菌,对7个菌株的菌落直径、透明圈直径和滤纸崩解结果进行分析,其D/d平均值为1.61~7.18(表1),其中菌株C8的D/d平均值显著高于其他菌株(P<0.05),滤纸崩解成糊状。
表1 筛选出的7个菌株透明圈直径、菌落直径及滤纸崩解测量结果

Table 1 Measuring results of transparent circle diameter, colony diameter and filter paper disintegration of seven screened strains

菌株编号
Strain No.
透明圈直径
Transparent circle
diameter/cm
菌落直径
Colony diameter/cm
透明圈直径/
菌落直径
D/d
滤纸崩解
Filter paper
disintegration
C8 1.87±0.42 0.26±0.10 7.18±0.13a ++++
C13 1.45±0.31 0.29±0.01 4.93±0.14b ++
C2 0.78±0.59 0.48±0.04 1.61±0.14e +
C9 0.61±0.71 0.30±0.02 1.98±0.13de +
C6 0.45±0.20 0.22±0.02 2.01±0.05de ++
D2 0.92±0.20 0.40±0.02 2.28±0.04d ++
D1 0.45±0.81 0.16±0.06 3.00±0.58c +++

同列数据肩标不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。下表同。In the same column, values with different letter superscripts mean significant difference (P<0.05), while with the same letter or no letter superscripts mean no significant difference (P>0.05). The same as below.

“+”表示滤纸边缘出现毛边;“++”表示滤纸弯曲,不成糊状;“+++”表示滤纸不定形,近似糊状;“++++”表示滤纸成糊状。“+” mean that the edge of the filter paper appeared rough; “++” mean that the filter paper was bent and not mushy; “+++” mean that the filter paper was amorphous and approximately mushy; “++++” mean that the filter paper was mushy.

2.2 纤维素酶活力

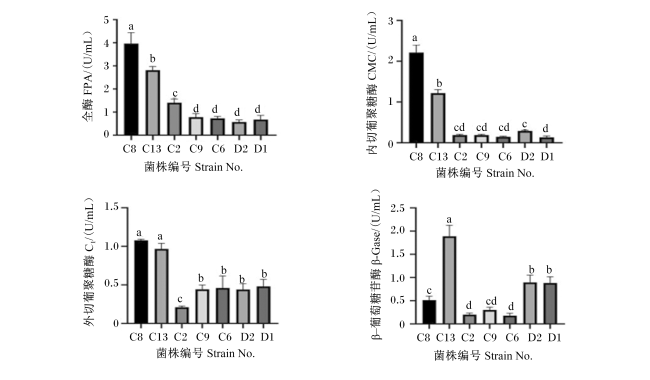
对筛选出的7株纤维素降解菌进行纤维素酶活力测定,结果如图1所示。菌株C8、C13和C2的FPA活力显著高于其他菌株(P<0.05),其他菌株之间的FPA活力均无显著差异(P<0.05);菌株C8、C13和C2之间的FPA活力差异显著(P<0.05),酶活力由高到低依次为C8>C13>C2。菌株C8和C13的C1活力显著高于其他菌株(P<0.05),菌株C8和C13之间的C1活力无显著差异(P>0.05)。菌株C8的CMC活力显著高于其他菌株(P<0.05),菌株C13的CMC活力显著高于菌株C2、C9、C6、D2和D1(P<0.05)。菌株C13的β-Gase活力显著高于其他菌株(P<0.05),菌株D1和D2的β-Gase活力显著高于菌株C8、C2、C9和C6(P<0.05),菌株C8的β-Gase活力显著高于菌株C2和C6(P<0.05)。由此可见,菌株C8的纤维素酶活力较高,其FPA、C1、CMC和β-Gase活力分别为3.96、1.08、2.21和0.51 U/mL。
图1 不同菌株的纤维素酶活力

数据柱标注不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。图2图5图6同。

Fig.1 Cellulase activity of different strains

Value columns with different letters mean significant difference (P<0.05), while with the same letter or no letters mean no significant difference (P>0.05). The same as Fig.2, Fig.5 and Fig.6.

2.3 秸秆干物质降解率

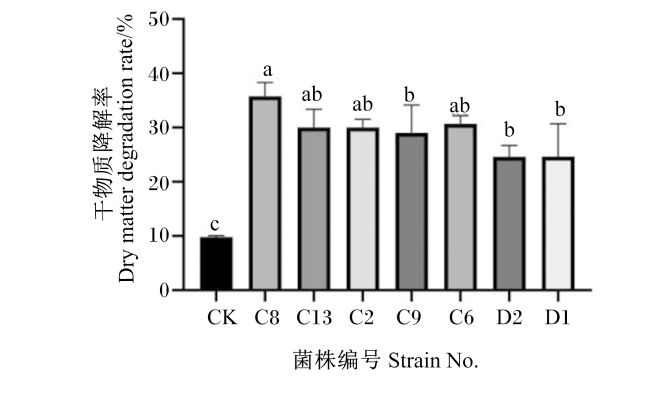
图2所示,菌株C8的秸秆干物质降解率最高,为35.79%,显著高于菌株C9、D2和D1(P<0.05)。综合上述结果,选定菌株C8作为后期ARTP诱变试验菌株。
图2 不同菌株的秸秆干物质降解率

Fig.2 Dry matter degradation rate of straw of different strains

2.4 分子生物学鉴定

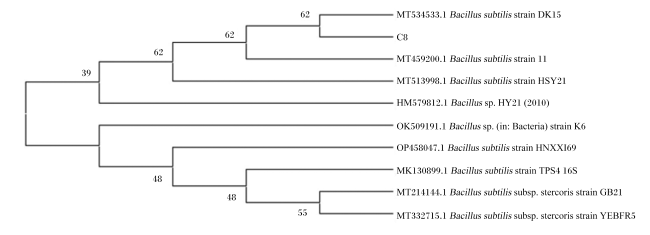
对筛选得到的菌株C8进行16S rRNA鉴定,将PCR产物测序序列进行BLAST序列比对(https://blast.ncbi.nlm.nih.gov/)并构建系统发育树(图3),结果发现该菌株与枯草芽孢杆菌(Bacillus subtilis)DK15(MT534533.1)有较高的同源性。综合上述结果,鉴定该菌株为枯草芽孢杆菌,命名为枯草芽孢杆菌C8。
图3 菌株C8基于16S rDNA序列同源性构建的系统发育树

Bacillus subtilis:枯草芽孢杆菌;Bacillus:芽孢杆菌属。

Fig.3 Phylogenetic tree of strain C8 based on 16S rDNA sequence homology

2.5 ARTP诱变致死率

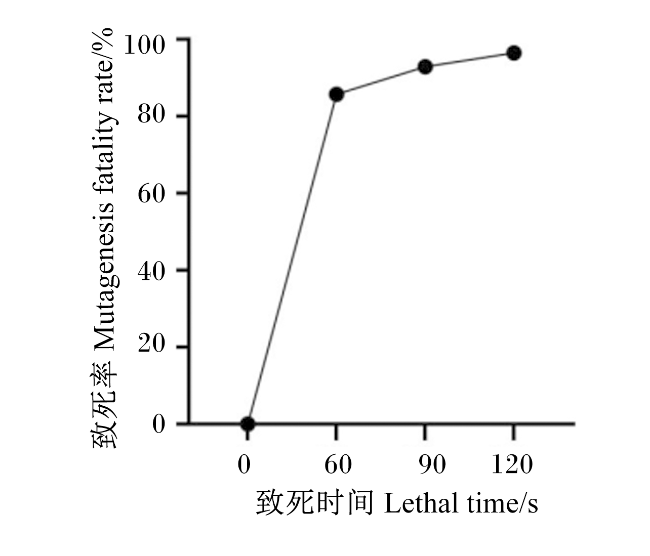
对枯草芽孢杆菌C8进行ARTP诱变处理,诱变结果如图4所示,在诱变60 s时,致死率为85.71%,60 s后致死率增长幅度减小;在诱变90 s时,致死率达到92.85%,超过90 s后,菌株致死率接近100%。高致死率可能是由于活性离子注入细胞内造成的DNA和蛋白质损伤所致,这与菌株的突变率密切相关。考虑到菌株的正突变率,因此选用90 s作为菌株的最适诱变时间。
图4 枯草芽孢杆菌C8诱变致死率曲线

Fig.4 Mutagenesis fatality rate curve of Bacillus subtilis C8

2.6 突变菌株的筛选

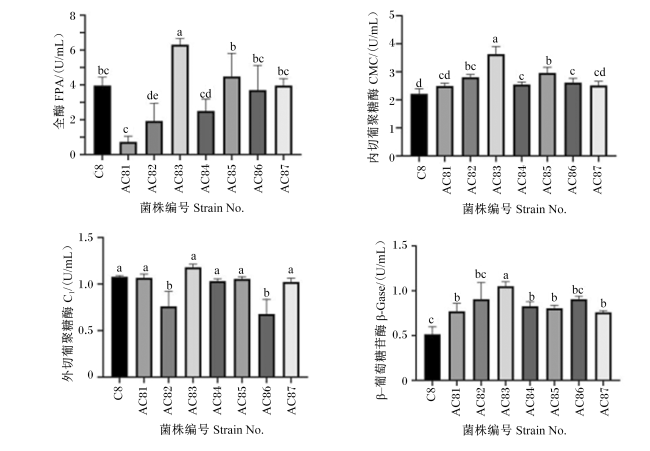
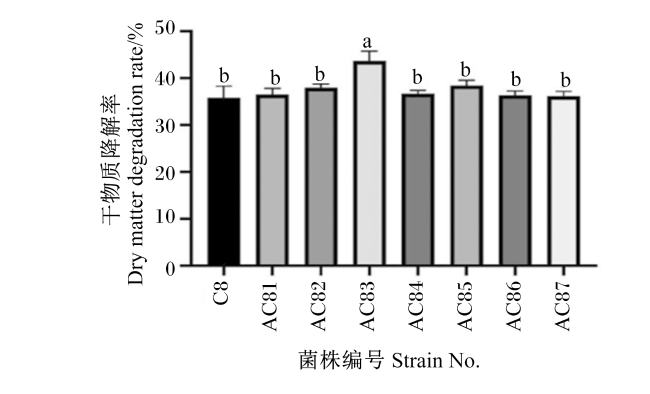
表2可知,采用ARTP诱变技术将处理90 s后的枯草芽孢杆菌C8菌悬液稀释涂布于CMC-Na固体平板上,经过反复分离后得到7株正突变菌株,以初始菌株C8的D/d值作为对照,突变菌株AC83的D/d值显著高于其他菌株(P<0.05),相比初始菌株C8提高了58.91%。如图5所示,突变菌株AC83的FPA、CMC和β-Gase活力分别为6.31、3.63和1.05 U/mL,均显著高于初始菌株C8(P<0.05);而突变菌株AC83的C1活力与初始菌株C8无显著差异(P>0.05)。如图6所示,突变菌株AC83秸秆干物质降解率显著高于其他菌株(P<0.05),比初始菌株C8的秸秆干物质降解率提高了21.93%。
表2 诱变后不同菌株的透明圈直径和菌落直径

Table 2 Transparent circle diameter and colony diameter of strains after mutagenesis

菌株编号
Strain No.
透明圈直径
Transparent circle diameter/cm
菌落直径
Colony diameter/cm
透明圈直径/菌落直径
D/d
C8 1.87±0.42 0.26±0.01 7.18±0.13d
AC81 2.91±0.02 0.30±0.01 9.71±0.24b
AC82 3.08±0.11 0.31±0.02 9.99±0.24b
AC83 3.31±0.03 0.29±0.01 11.41±0.29a
AC84 2.72±0.07 0.28±0.01 9.71±0.14b
AC85 2.77±0.20 0.29±0.01 9.45±0.42bc
AC86 2.67±0.03 0.29±0.02 9.24±0.53bc
AC87 2.72±0.30 0.31±0.03 8.79±0.70c
图5 诱变后不同菌株的纤维素酶活力

Fig.5 Cellulase activity of different strains after mutagenesis

图6 诱变后不同菌株的秸秆干物质降解率

Fig.6 Dry matter degradation rate of straw of different strains after mutagenesis

2.7 遗传稳定性

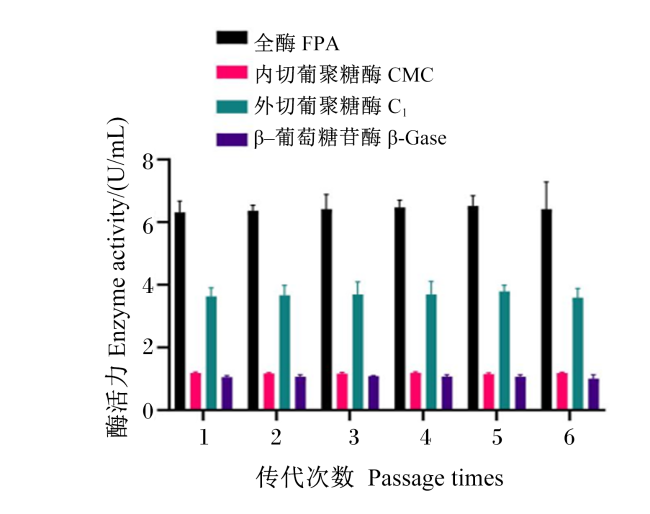
为了检测突变菌株AC83产酶能力稳定性,对其进行连续6代划线培养,并测定菌株酶活力,结果如图7所示,突变菌株AC83不同传代次数之间酶活力无显著差异(P>0.05),表明突变菌株AC83具有良好的产酶稳定性。
图7 突变菌株AC83遗传稳定性

相同纤维素酶不同传代次数之间无字母表示差异不显著(P>0.05)。

Fig.7 Genetic stability of mutant strain AC83

The absence of letters between different passage times of the same cellulase indicated no significant difference (P>0.05).

3 讨论

纤维素降解菌来源广泛,在反刍动物瘤胃、植食性昆虫后肠道以及其他来源(土壤、废纸浆、温泉等)均有所发现。这3种来源的纤维素降解菌各有不同,其他来源(土壤、废纸浆、温泉等)的纤维素降解菌安全性存在问题,不便直接运用于饲料加工及饲喂。植食性昆虫后肠道来源的纤维素降解菌虽相对安全,但相比于瘤胃来源的纤维素降解菌,其对纤维素的降解能力较弱[18]。反刍动物主要以粗纤维饲料为食,瘤胃是自然界中天然的发酵罐,是探究多种不同纤维素降解菌的重要场所,瘤胃中纤维素降解菌的主要作用是利用瘤胃中的微生物将植物纤维素类物质分解为葡萄糖等为宿主提供能量[19]。瘤胃微生物是驱动宿主代谢的主要因素,它们以共生的方式发挥多种功能,包括通过营养消化产生能量、提高饲料利用率、提高宿主免疫力以及防止病原体入侵等[20]。瘤胃微生物由细菌、真菌及原虫等组成[21],其中,细菌数量最多,超过1010个/mL[22]。因此,瘤胃微生物可看作纤维素降解菌的资源库。截至目前,已从多种反刍动物的瘤胃中筛选出纤维素降解菌[23]。王炳晓等[24]从奶牛瘤胃液中分离出纤维素降解细菌,如苏云金芽孢杆菌(Bacillus thuringiensis)、巨大芽孢杆菌(Bacillus megaterium)及蜡状芽孢杆菌(Bacillus cereus)等。樊川等[25]在牛瘤胃中分离出5株纤维素降解菌,分别为溶纤维丁酸弧菌(Butyrivibrio fibrisolvens)、黄色瘤胃球菌(Ruminococcus flavefaciens)、胃八叠球菌(Sarcina ventriculi)、产琥珀酸拟杆菌(Fibrobacter succinogenes)和多聚糖分解梭菌等。刘占英[26]从内蒙古地区绵羊瘤胃中分离出23株纤维素降解菌,均属于丁酸弧菌属(Butyrivibrio)、瘤胃球菌属(Ruminococcus)、丝状杆菌属(Fibriobacter)、梭菌属(Clostridium)和肠球菌属(Enterococcus)。本研究同样以西门塔尔肉牛瘤胃液为筛选材料,不仅保证了高效纤维素降解菌的来源,同时也保证了未来将其用于饲料生产可能会比非同源的菌株具有更明显的益生优势。但自然筛选的纤维素降解菌的降解能力不高,无法满足当前的生产需要,不断对分离出的纤维素降解菌作进一步选育研究仍是现在研究的热点。
ARTP是一种利用常压氦射频放电等离子体辐照技术建立的一种新型的全细胞突变技术,可以有效地引起DNA的多样性破坏,从而增加变异的速率,且不会产生有毒有害物质,比传统的紫外线辐射或化学诱变剂具有更大的优势[27]。不同种属的微生物最适的ARTP诱变时间有所不同,孢子乳杆菌(Sporolacto bacillus)以90 s作为突变的最佳时间来提高乳酸的表达量,此时的突变致死率为90%~95%[28];酿酒酵母采用的诱变暴露时间为120 s时,致死率为96.3%,可获得理想和适宜的酿酒酵母突变体[29]。菌体突变率会随着诱导时间的增加而提高,当致死率为90%~95%时,正突变率较高[30]。正突变也是影响菌株诱变效果的决定性因素[31]。与相关研究结果相似,本研究发现随着处理时间的不断增加,枯草芽孢杆菌C8的致死率越来越高,在诱变90 s时致死率达到92.85%,此时获得高产纤维素酶阳性突变菌,这与活性离子注入细胞内造成的DNA和蛋白质损伤所致。枯草芽孢杆菌繁殖力强,营养水平要求低,能产生抗逆芽孢,在恶劣坏境中具有很强的抗逆性,能产生消化酶等多种酶类和代谢产物,以分解有机物和参与机体代谢,是一种不含毒素且不产毒素的安全微生物[32-33]。高双喜等[34]从瘤胃中分离的暹罗芽孢杆菌(Bacillus siamensis)株系H-7,CMC活力最高为0.18 U/mL,FPA活力最高为0.44 U/mL。Srivastava等[35]从骆驼瘤胃中筛选得到枯草芽孢杆菌CRN 1,CMC活力为0.4 U/mL,并有助于促进短链脂肪酸通过瘤胃上皮细胞被吸收。Crespo-Piazuelo等[36]研究发现,在猪饲粮中使用枯草芽孢杆菌可以为猪提供酶的来源,有助于营养消化和对饲粮的利用,从而提高生长效率。本研究以瘤胃液中枯草芽孢杆菌C8为初始菌株通过ARTP技术进行诱变选育,突变菌株AC83较原始菌株在酶活力和秸秆干物质降解率上均得到提升。不过,虽然高产纤维素降解菌的选育可为饲料添加剂的研发提供新的资源,但ARTP诱变导致菌株酶活力提高的机制仍需进一步探究。

4 结论

本研究从西门塔尔肉牛瘤胃液中筛选得到一株高产纤维素降解菌C8,经分子生物学鉴定为枯草芽孢杆菌,以枯草芽孢杆菌C8为初始菌株采用ARTP进行诱变,筛选得到了突变菌株AC83,其纤维降解酶活和秸秆干物质降解率显著提高,且遗传稳定性强。
[1]
LYND L R, WEIMER P J, VAN ZYL W H, et al. Microbial cellulose utilization:fundamentals and biotechnology[J]. Microbiology and Molecular Biology Reviews, 2002, 66(3):506-577.

[2]
宫福臣, 杨琼, 李杰. 不同秸秆处理技术及在反刍动物中的应用研究进展[J]. 中国饲料, 2011(19):28-30,44.

GONG F C, YANG Q, LI J. Application of straw processed by different technic on ruminant animal[J]. China Feed, 2011(19):28-30,44. (in Chinese)

[3]
BAI B C, QIU R, WANG Z J, et al. Effects of cellulase and lactic acid bacteria on ensiling performance and bacterial community of Caragana korshinskii silage[J]. Microorganisms, 2023, 11(2):337.

[4]
王国秀, 马东方, 黄永亮, 等. 纤维素酶和木聚糖酶处理大麦秸秆和玉米秸秆的绵羊瘤胃降解特性[J]. 动物营养学报, 2023, 35(3):1781-1790.

DOI

WANG G X, MA D F, HUANG Y L, et al. Degradation characteristics of cellulase and xylanase treated barley straw and corn straw in sheep rumen[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1781-1790. (in Chinese)

DOI

[5]
赵鑫, 张红, 门中华, 等. 纤维素酶的研究与应用进展[J]. 化学与生物工程, 2023, 40(9):1-9.

ZHAO X, ZHANG H, MEN Z H, et al. Research and application progress in cellulase[J]. Chemistry & Bioengineering, 2023, 40(9):1-9. (in Chinese)

[6]
张根, 陈宝锐, 陈涛, 等. 农作物秸秆木质纤维素生物降解酶及降解菌的研究进展[J]. 农学学报, 2023, 13(2):24-32.

DOI

ZHANG G, CHEN B R, CHEN T, et al. Research progress on enzymes and microorganisms for biodegradation of lignocelluloses from crop straw[J]. Journal of Agriculture, 2023, 13(2):24-32. (in Chinese)

DOI

[7]
宫秀杰, 钱春荣, 于洋, 等. 近年纤维素降解菌株筛选研究进展[J]. 纤维素科学与技术, 2021, 29(2):68-77.

GONG X J, QIAN C R, YU Y, et al. Progress on screening of cellulose degrading strains in recent years[J]. Journal of Cellulose Science and Technology, 2021, 29(2):68-77. (in Chinese)

[8]
高星, 李永丽, 燕亚平, 等. 瘤胃纤维素降解细菌的研究进展[J]. 微生物学杂志, 2023, 43(5):107-114.

GAO X, LI Y L, YAN Y P, et al. Advances in rumen cellulose-degradable bacteria[J]. Journal of Microbiology, 2023, 43(5):107-114. (in Chinese)

[9]
陈昭, 王敬红, 邓常宇, 等. 低温纤维素降解细菌Duganella sp.的分离及降解能力解析[J]. 微生物学通报, 2024, 51(6):2158-2169.

CHEN Z, WANG J H, DENG C Y, et al. Isolation of a Duganella sp. of degrading cellulose bacterium at low temperatures and analysis of its degradation capacity[J]. Microbiology China, 2024, 51(6):2158-2169. (in Chinese)

[10]
MA L L, LU Y Y, YAN H, et al. Screening of cellulolytic bacteria from rotten wood of Qinling (China) for biomass degradation and cloning of cellulases from Bacillus methylotrophicus[J]. BMC Biotechnology, 2020, 20(1):2.

[11]
LI D A, SHEN J, DING Q, et al. Recent progress of atmospheric and room-temperature plasma as a new and promising mutagenesis technology[J]. Cell Biochemistry and Function, 2024, 42(3):e3991.

DOI PMID

[12]
王丰园, 金海炎, 张征田, 等. ARTP-DES复合诱变选育高产纤维素酶突变菌株[J]. 饲料研究, 2021, 44(21):92-97.

WANG F Y, JIN H Y, ZHANG Z T, et al. Breeding of mutant strains with high cellulase production by ARTP-DES compound mutagenesis[J]. Feed Research, 2021, 44(21):92-97. (in Chinese)

[13]
葛青, 章亭洲, 王腾浩, 等. 高产纤维素酶里氏木霉菌株诱变选育及其发酵条件优化[J]. 饲料博览, 2019(6):1-5.

GE Q, ZHANG T Z, WANG T H, et al. Mutagenesis breeding and fermentation condition optimization of high yield cellulase enzyme of Trichoderma reesei[J]. Feed Review, 2019(6):1-5. (in Chinese)

[14]
GU C K, WANG G Y, MAI S, et al. ARTP mutation and genome shuffling of ABE fermentation symbiotic system for improvement of butanol production[J]. Applied Microbiology and Biotechnology, 2017, 101(5):2189-2199.

DOI PMID

[15]
SHARMA P, PAJNI S, DHILLON N, et al. Limitations of the Congo-Red staining techniques for the detection of cellulolytic activities[J]. Biotechnology Letters, 1986, 8(8):579-580.

[16]
SOMOGYI M. Notes on sugar determination[J]. Journal of Biological Chemistry, 1952, 195(1):19-23.

PMID

[17]
刘洁, 李宪臻, 高培基. 纤维素酶活力测定方法评述[J]. 工业微生物, 1994, 24(4):27-32.

LIU J, LI X Z, GAO P J, et al. Review of methods for the determination of cellulase activity[J]. Industrial Microbiology, 1994, 24(4):27-32. (in Chinese)

[18]
陈欢, 史子浩, 吴春会, 等. 不同来源纤维素降解菌的筛选、鉴定及产酶能力的比较[J]. 草地学报, 2024, 32(4):1252-1258.

DOI

CHEN H, SHI Z H, WU C H, et al. Screening,identification and comparison of enzyme production capacity of cellulose-degrading bacteria from different sources[J]. Acta Agrestia Sinica, 2024, 32(4):1252-1258. (in Chinese)

DOI

[19]
马晨, 张和平, 刘彩虹, 等. 牛瘤胃与肠道微生物多样性的研究进展[J]. 动物营养学报, 2014, 26(4):852-862.

DOI

MA C, ZHANG H P, LIU C H, et al. Research advance in ruminal and intestinal microbes diversity in cattle[J]. Chinese Journal of Animal Nutrition, 2014, 26(4):852-862. (in Chinese)

[20]
HALL A B, TOLONEN A C, XAVIER R J. Human genetic variation and the gut microbiome in disease[J]. Nature Reviews Genetics, 2017, 18(11):690-699.

DOI PMID

[21]
冯肖然, 刁其玉, 屠焰. 瘤胃微生物移植在反刍动物生产中的应用及作用机制[J]. 动物营养学报, 2023, 35(12):7561-7570.

DOI

FENG X R, DIAO Q Y, TU Y. Application and mechanism of rumen microbiota transplantation in ruminant production[J]. Chinese Journal of Animal Nutrition, 2023, 35(12):7561-7570. (in Chinese)

DOI

[22]
WRIGHT A D G, KLIEVE A V. Does the complexity of the rumen microbial ecology preclude methane mitigation?[J]. Animal Feed Science and Technology, 2011, 166/167:248-253.

[23]
THAPA S, MISHRA J, ARORA N, et al. Microbial cellulolytic enzymes:diversity and biotechnology with reference to lignocellulosic biomass degradation[J]. Reviews in Environmental Science and Bio/Technology, 2020, 19(3):621-648.

[24]
王炳晓, 柴同杰, 苏鹏程, 等. 奶牛瘤胃兼性厌氧纤维素分解菌的分离鉴定[J]. 西北农林科技大学学报(自然科学版), 2009, 37(3):35-42.

WANG B X, CHAI T J, SU P C, et al. Isolation and identification of cow ruminal facultatively anaerobic cellulolytic bacteria[J]. Journal of Northwest A&F University (Natural Science Edition), 2009, 37(3):35-42. (in Chinese)

[25]
樊川, 杨旭升, 张欣, 等. 牛瘤胃中纤维素降解菌类微生物资源的分离及鉴定[J]. 黑龙江科技信息, 2009(36):213.

FAN C, YANG X S, ZHANG X, et al. Microbial resources of cellulose-degrading bacteria in the bovine rumen:isolation and identification[J]. Heilongjiang Science and Technology Information, 2009(36):213. (in Chinese)

[26]
刘占英. 绵羊瘤胃主要纤维降解细菌的分离鉴定及不同氮源对其纤维降解能力的影响[D].博士学位论文. 呼和浩特: 内蒙古农业大学, 2009.

LIU Z Y. Isolation and identification of major cellulolytic bacteria in rumen of sheep and effects of nitrogen sources on their cellulolytic activities[D].Ph.D. Thesis. Hohhot: Inner Mongolia Agricultural University, 2009. (in Chinese)

[27]
徐欢欢, 张红兵, 李会宣, 等. 常压室温等离子体技术在微生物诱变中的应用进展[J]. 生物技术进展, 2020, 10(4):358-362.

DOI

XU H H, ZHANG H B, LI H X, et al. Application progress of atmospheric and room temperature plasma technology in microbial mutagenesis[J]. Current Biotechnology, 2020, 10(4):358-362. (in Chinese)

DOI

[28]
SUN J D, WANG Y, WU B, et al. Enhanced production of D-lactic acid by Sporolacto bacillus sp. Y2-8 mutant generated by atmospheric and room temperature plasma[J]. Biotechnology and Applied Biochemistry, 2015, 62(2):287-292.

[29]
LIANG M H, LIANG Y J, CHAI J Y, et al. Reduction of methanol in brewed wine by the use of atmospheric and room-temperature plasma method and the combination optimization of malt with different adjuncts[J]. Journal of Food Science, 2014, 79(11):M2308-M2314.

[30]
许鹏飞, 郭金玲, 吕育财, 等. 常压室温等离子体诱变选育高产油脂皮状丝孢酵母的研究[J]. 中国油脂, 2019, 44(3):123-127.

XU P F, GUO J L, LV Y C, et al. Screening of Trichosporon cutaneum with high-producing oil through atmospheric room temperature plasmas mutagenesis[J]. China Oils and Fats, 2019, 44(3):123-127. (in Chinese)

[31]
WANG L Y, HUANG Z L, LI G, et al. Novel mutation breeding method for Streptomyces avermitilis using an atmospheric pressure glow discharge plasma[J]. Journal of Applied Microbiology, 2010, 108(3):851-858.

[32]
王杰, 王晨, 杜燕, 等. 枯草芽孢杆菌表达和分泌异源蛋白的研究进展[J]. 微生物学通报, 2021, 48(8):2815-2826.

WANG J, WANG C, DU Y, et al. Advances in heterologous protein expression and secretion of Bacillus subtilis[J]. Microbiology China, 2021, 48(8):2815-2826. (in Chinese)

[33]
班博, 戴维, 田科雄. 枯草芽孢杆菌的生理功能及其在动物生产中的应用[J]. 湖南饲料, 2020(2):42-45.

BAN B, DAI W, TIAN K X, et al. Physiological functions of Bacillus subtilis and its application in animal production[J]. Hunan Feed, 2020(2):42-45. (in Chinese)

[34]
高双喜, 王萱, 任菁, 等. 羊源芽孢纤维素降解菌的筛选与H-7菌株鉴定[J]. 饲料工业, 2019, 40(14):52-57.

GAO S X, WANG X, REN J, et al. Screening and identification of the degradation cellulose Bacillus strain H-7[J]. Feed Industry, 2019, 40(14):52-57. (in Chinese)

[35]
SRIVASTAVA S, BOMBAWALA S, JAKHESARA S J, et al. Potential of camel rumen derived Bacillus subtilis and Bacillus velezensis strains for application in plant biomass hydrolysis[J]. Molecular Genetics and Genomics, 2023, 298(2):361-374.

[36]
CRESPO-PIAZUELO D, GARDINER G E, RANJITKAR S, et al. Maternal supplementation with Bacillus altitudinis spores improves porcine offspring growth performance and carcass weight[J]. British Journal of Nutrition, 2022, 127(3):403-420.

文章导航

/