特约稿

饲用氨基酸的生物合成与产业化应用

  • 姚斌 , 1 ,
  • 徐欣欣 2 ,
  • 张杰 1 ,
  • 罗会颖 1
展开
  • 1 中国农业科学院北京畜牧兽医研究所,北京 100193
  • 2 中国农业科学院生物技术研究所,北京 100081

姚 斌(1967—),男,广西北海人,研究员,博士,主要从事微生物与酶工程研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-12-02

  网络出版日期: 2025-01-10

基金资助

国家重点研发计划项目(2023YFD1302200)

中国农业科学院重大科技任务(CAAS-ZDRW202304)

Biosynthesis and Industrial Application of Feed Amino Acids

  • YAO Bin , 1 ,
  • XU Xinxin 2 ,
  • ZHANG Jie 1 ,
  • LUO Huiying 1
Expand
  • 1 Institute of Animal Sciences, Chinese Academy of Agricultural Sciences, Beijing 100193, China
  • 2 Biotechnology Research Institute, Chinese Academy of Agricultural Sciences, Beijing 100081, China

YAO Bin, professor, E-mail:

Received date: 2024-12-02

  Online published: 2025-01-10

摘要

饲用氨基酸在低蛋白质饲粮配合技术中的应用既能保障动物的营养需求,又能提高养殖经济效益,同时还具有显著的环境保护效应,在现代集约化养殖中具有广阔的应用前景。生物技术的进步推动了氨基酸生产效率的提升和成本的降低,使得合成氨基酸在饲料行业的应用更加广泛和可行。本文介绍了当前在饲料行业中已广泛应用的饲用合成氨基酸种类及功能研究进展,综述了重要饲用氨基酸(赖氨酸、苏氨酸、色氨酸、异亮氨酸、缬氨酸和亮氨酸)在大肠杆菌或谷氨酸棒杆菌中的生物合成途径,详细阐述了重要饲用氨基酸生产菌株遗传改良的代谢工程策略,并在展望中提出了未来饲用氨基酸生产菌株工程化改造的方向。

本文引用格式

姚斌 , 徐欣欣 , 张杰 , 罗会颖 . 饲用氨基酸的生物合成与产业化应用[J]. 动物营养学报, 2025 , 37(1) : 1 -14 . DOI: 10.12418/CJAN2025.001

Abstract

The application of feed amino acids in low-protein diet formulation technology not only ensures the nutritional needs of animals and enhances the economic benefits of breeding, but also has significant environmental protection effects. It holds broad application prospects in modern intensive breeding. Advances in biotechnology have enhanced the efficiency of amino acid production and reduced costs, making the application of amino acids in the feed industry more widespread and feasible. This paper introduces the types and functional research progress of feed amino acids that are currently widely used in the feed industry. It reviews the biosynthetic pathways of important feed amino acids (lysine, threonine, tryptophan, isoleucine, valine and leucine) in Escherichia coli or Corynebacterium glutamicum cells, elaborates on the metabolic engineering strategies for genetic improvement of feed amino acid-producing strains, and discusses future directions for the engineering and modification of feed amino acid production strains.

编者按:姚斌,男,中国工程院院士,著名微生物与酶工程专家,长期从事饲用酶的创制与产业研发工作,面向国家重大需求,聚焦产业技术难题,带领团队创建了酶蛋白基因规模化挖掘、构效机理与性能改良以及高效表达与生产完整的理论和技术体系,引领了我国饲料酶产业的发展方向。这项工作使我国饲料酶产业发展成为极具国际竞争力和社会经济生态效益显著的高新技术产业,极大地推动了我国饲料工业的科技进步。姚斌院士是国家杰出青年科学基金获得者、中国农业科学院北京畜牧兽医研究所饲用酶工程科技创新团队首席科学家,以第一完成人获国家科技进步二等奖2项、北京市科技奖励一等奖1项、大北农科技奖励特等奖1项;获得中华农业英才奖,中国发明专利优秀奖4项;获得授权发明专利200余项,其中技术转让/专利许可80余项;领导的饲用酶工程创新团队入选全国农业科研杰出人才及其创新团队和科技部重点领域创新团队。
随着我国畜牧业的快速发展,饲料蛋白质供给缺口问题日益突出。当前我国饲料蛋白质原料进口依存度较高,2023年我国进口粮食16 196万t,其中进口大豆9 941万t,同比增长11.4%。这种高度依赖进口的模式面临着国际贸易争端、运输成本上涨以及全球气候变化等不确定因素,严重影响我国蛋白质饲料资源供给安全。
为保障粮食安全和重要农产品的稳定供给,2023年农业农村部印发《饲用豆粕减量替代三年行动方案》,引导饲料和养殖行业减少豆粕用量,促进饲料粮节约降耗。其中,建议的首条技术路径是推广应用低蛋白质、低豆粕饲粮技术。低蛋白质、低豆粕饲粮技术采用饲料精准配方和精细加工工艺,通过添加合成氨基酸、酶制剂等高效饲料添加剂,降低猪禽等饲粮中的蛋白质原料添加量,有利于缓解我国饲用蛋白质原料短缺的严峻形势[1-3]
动物对蛋白质的需求,归根到底是对氨基酸,特别是必需氨基酸的需求。在我国蛋白质饲料资源短缺的情况下,对饲用合成氨基酸,尤其是对必需氨基酸的需求将不断增加。饲用氨基酸的生物制造是指利用合成生物学技术,构建微生物细胞工厂,大规模工业化生产饲用氨基酸,可逐步降低对进口蛋白质资源的依赖,缓解我国饲料蛋白质资源短缺问题。

1 饲用合成氨基酸在低蛋白质饲粮中的应用

低蛋白质饲粮会降低饲粮中粗蛋白质的含量,可能导致必需氨基酸的不足,以致动物生长性能下降。通过补充饲用合成氨基酸,可以精确满足动物对氨基酸的需求,从而优化饲粮的营养价值。低蛋白质饲粮结合氨基酸补充有助于减少蛋白质浪费,降低过量蛋白质分解产生的能量消耗,从而提高饲料转化率和动物生产性能[1-2,4-5];同时,还可以显著减少动物粪便中氮的排放,减轻环境污染,符合可持续发展的要求。
动物体内不能自行合成或合成量不足,需要通过饲粮供给的氨基酸称为必需氨基酸。不同种类的畜禽或水产动物对必需氨基酸的需求略有差异。根据动物营养学理论与实践,赖氨酸、蛋氨酸、苏氨酸、色氨酸、缬氨酸、亮氨酸、异亮氨酸和苯丙氨酸这8种氨基酸通常被认为是所有单胃动物(如猪、鸡、鱼)的必需氨基酸。目前,已在低蛋白质饲粮中广泛应用的氨基酸主要是赖氨酸、蛋氨酸、苏氨酸、色氨酸、缬氨酸和异亮氨酸。随着低蛋白质饲粮技术的进一步发展,由于上述限制性氨基酸的用量会持续加大,未来可能使得其他氨基酸如苯丙氨酸、组氨酸和精氨酸等成为新的限制性氨基酸而需要额外添加[6]
赖氨酸支持动物的蛋白质合成和肌肉生长,饲粮中添加适量赖氨酸能够改善动物的生长性能、养分消化率、机体免疫功能和肠道健康等[7-9]。赖氨酸在谷物类饲料中含量较低,对猪而言通常为第一限制性氨基酸,需额外补充[10]。蛋氨酸是含硫氨基酸,提供硫基团参与生物分子合成,在动物体内的DNA和蛋白质合成、甲基化反应以及抗氧化活动等过程中发挥着不可或缺的作用,并支持羽毛生长和脂肪代谢。蛋氨酸在豆类或玉米饲料中含量较低,尤其对家禽而言是第一限制性氨基酸。研究表明,饲粮中添加适量蛋氨酸可以缓解家禽的氧化应激,促进肠道发育和损伤修复,对骨骼形成、生长和重塑至关重要,并影响家禽免疫反应和肠道微生物组[11]。苏氨酸是动物生长所必需的氨基酸,在调整饲粮氨基酸平衡、提高猪采食量和生长速度以及维持肠道健康中具有重要功能,能够促进肠道中黏蛋白的产生;此外,苏氨酸还作为一种营养调节剂,通过复杂的信号网络影响肠道免疫系统[12-13]。色氨酸是神经递质(如5-羟色胺)的前体,在玉米类饲料中严重缺乏,在饲粮中添加适量色氨酸可以提高动物采食量,并提高动物对蛋白质的消化利用率,同时增加动物的泌乳量,改善动物的生长性能和免疫功能[14]。包括亮氨酸、异亮氨酸和缬氨酸在内的支链氨基酸具有调控动物机体糖和脂代谢、蛋白质合成以及免疫力等多种生物学功能。在低蛋白质饲粮中添加支链氨基酸可显著影响畜禽生长性能、蛋白质消化利用率、免疫功能以及肉品质[15]。缬氨酸参与肌肉蛋白质的合成和能量代谢,是家禽、猪和奶牛的限制性氨基酸[16-17]。在低蛋白质饲粮中补充赖氨酸+苏氨酸+蛋氨酸后,再补充缬氨酸可有效提高育肥后备母猪的采食量和日增重[18]。异亮氨酸与能量代谢和肌肉蛋白质合成相关,在动物生长阶段需求量较高。饲粮中添加异亮氨酸可调整饲粮的氨基酸平衡,降低饲粮蛋白质水平,促进低蛋白质饲粮的应用[19]。饲粮中标准回肠可消化异亮氨酸与标准回肠可消化赖氨酸的适当配比可显著提高育肥猪的日增重,同时提高其采食量[20]。亮氨酸能够促进骨骼肌修复和蛋白质合成,在大多数谷物饲料中含量充足,但需与其他氨基酸平衡。苯丙氨酸用于合成酪氨酸,参与激素和黑色素的生成。
此外,不同动物种类可能对某些氨基酸有特殊需求。如家禽不能合成足量精氨酸,因此精氨酸也被认为是家禽(鸡、鸭)的必需氨基酸;反刍动物依赖瘤胃微生物合成大部分氨基酸,但对高产性能的奶牛和肉牛来说,赖氨酸和蛋氨酸可能是限制性氨基酸;某些氨基酸在特定条件下可能变为必需氨基酸,如精氨酸在幼畜或幼禽阶段需求高;组氨酸为新生动物血红蛋白合成所需;当苯丙氨酸不足时,酪氨酸成为必需氨基酸。

2 饲用氨基酸的生物合成

目前,氨基酸的工业生产方法主要包括微生物发酵法、化学合成法和酶促生物合成法。其中,传统的化学合成法和酶促生物合成法受到原料价格昂贵、反应条件恶劣以及环境污染等的限制。微生物发酵法作为一种环保且高产的替代方法,通过微生物自身的酶和代谢过程,在细胞代谢过程中将简单的营养物质转化为高度专一的氨基酸产物,转化率和纯度高。目前,微生物发酵法已经成为赖氨酸、苏氨酸、色氨酸和异亮氨酸等氨基酸品种的主要生产方式。由于蛋氨酸生物合成途径存在复杂的反应及多级调控机制,目前尚未实现大规模的发酵生产,化学合成法仍是蛋氨酸工业生产的主流方法。随着基因工程技术和生物技术的进步,微生物发酵法生产氨基酸的产率和经济性将会进一步提升。

2.1 L-赖氨酸的生物合成

2.1.1 L-赖氨酸的生物合成途径

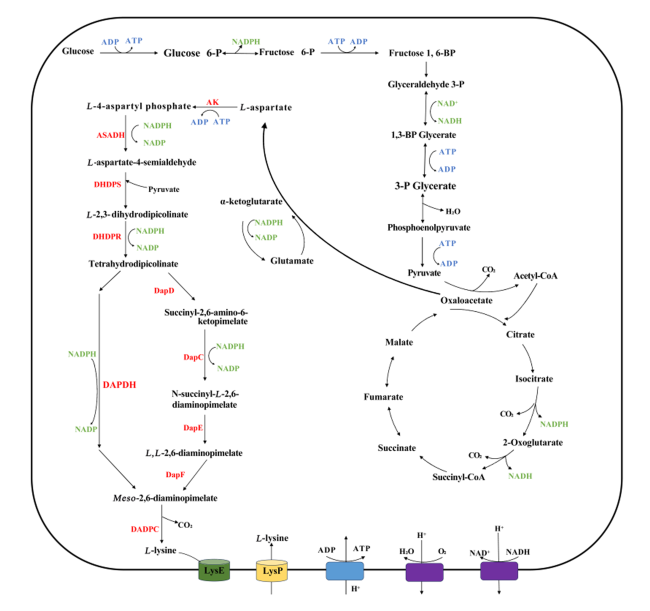
赖氨酸通常应用通过突变或工程化的谷氨酸棒杆菌(Corynebacterium glutamicum)和大肠杆菌(Escherichia coli)生产,因为它们易于生长且便于基因操作。除了在大规模培养中表现出强大的适应性外,谷氨酸棒杆菌通常被认为是安全的[美国食品药品监督管理局(FDA)一般认为安全(GRAS)认证生物]。因此,谷氨酸棒杆菌是用于工业生产L-赖氨酸的优异菌种[9,21]L-赖氨酸在谷氨酸棒杆菌中的生物合成途径如图1所示[21],其由糖酵解途径生成的L-天冬氨酸作为底物,最终合成L-赖氨酸。在谷氨酸棒杆菌中,有10种酶参与了L-赖氨酸的生物合成,这些酶包括:天冬氨酸激酶(aspartate kinase,AK,由lysC基因编码)、天冬氨酸半醛脱氢酶(aspartate-semialdehyde dehydrogenase,ASADH,由asd基因编码)、二氢二吡啶酸合成酶(dihydrodipicolinate synthase,DHDPS,由dapA基因编码)、二氢二吡啶酸还原酶(dihydrodipicolinate reductase,DHDPR,由dapB基因编码)、2,3,4,5-四氢吡啶-2,6-二羧酸N-琥珀酰转移酶(2,3,4,5-tetrahydropyridine-2,6-dicarboxylate N-succinyltransferase,DapD,由dapD基因编码)、琥珀酰-二氨基庚二酸转氨酶(succinyl-diaminopimelate transaminase,DapC,由dapC基因编码)、琥珀酰-二氨基庚二酸脱琥珀酰酶(succinyl-diaminopimelate desuccinylase,DapE,由dapE基因编码)、二氨基庚二酸外消旋酶(diaminopimelate racemase,DapF,由dapF基因编码)、二氨基庚二酸脱氢酶(diaminopimelate dehydrogenase,DAPDH,由ddh基因编码)以及二氨基庚二酸脱羧酶(diaminopimelate decarboxylase,DAPDC,由lysA基因编码)。首先,AK将L-天冬氨酸转化为L-4-天冬氨酰磷酸,然后在ASADH的催化下,L-4-天冬氨酰磷酸进一步转化为L-天冬氨酸-4-半醛;随后,DHDPS催化L-天冬氨酸-4-半醛与丙酮酸反应生成L-2,3-二氢二吡啶酸;接着,L-2,3-二氢二吡啶酸在DHDPR的催化下转化为四氢二吡啶酸,四氢二吡啶酸经过4步连续反应,或在DAPDH的帮助下直接转化为间-2,6-二氨基庚二酸;最后,间-2,6-二氨基庚二酸在DAPDC的作用下脱羧生成L-赖氨酸。
图1 L-赖氨酸在谷氨酸棒杆菌中的生物合成途径

Glucose:葡萄糖;ADP:二磷酸腺苷 adenosine diphosphate;ATP:三磷酸腺苷 adenosine triphosphate;Glucose 6-P:葡萄糖6-磷酸 glucose 6-phosphate;Fructose 6-P:果糖6-磷酸 fructose 6-phosphate;Fructose 1,6-BP:果糖1,6-二磷酸 fructose 1,6-bisphosphate:Glyceraldehyde 3-P:甘油醛3-磷酸 glyceraldehyde 3-phosphate;NAD+:氧化型烟酰胺腺嘌呤二核苷酸 oxidized nicotinamide adenine dinucleotide;NADH:还原型烟酰胺腺嘌呤二核苷酸 reduced nicotinamide adenine dinucleotide;1,3-BP Glycerate:1,3-二磷酸甘油酸 1,3-bisphosphoglycerate;3-P Glycerate:3-磷酸甘油酸 3-phosphoglycerate;Phosphoenolpyruvate:磷酸烯醇式丙酮酸;Pyruvate:丙酮酸;Acetyl-CoA:乙酰辅酶A;Citrate:柠檬酸;Isocitrate:异柠檬酸;NADPH:还原型烟酰胺腺嘌呤二核苷酸磷酸 reduced nicotinamide adenine dinucleotide phosphate;2-Oxoglutarate:2-氧戊二酸;Succinyl-CoA:琥珀酰辅酶A;Succinate:琥珀酸;Fumarate:延胡索酸;Malate:苹果酸;Oxaloacetate:草酰乙酸;α-ketoglutarate:α-酮戊二酸;NADP:烟酰胺腺嘌呤二核苷酸磷酸 nicotinamide adenine dinucleotide phosphate;Glutamate:谷氨酸;L-aspartate:L-天冬氨酸;AK:天冬氨酸激酶 aspartate kinase;L-4-aspartyl phosphate:L-4-天冬氨酰磷酸;ASADH:天冬氨酸半醛脱氢酶 aspartate-semialdehyde dehydrogenase;L-aspartate-4-semialdehyde:L-天冬氨酸-4-半醛;DHDPS:二氢二吡啶酸合成酶 dihydrodipicolinate synthase;L-2,3-dihydrodipicolinate:L-2,3-二氢二吡啶酸;DHDPR:二氢二吡啶酸还原酶 dihydrodipicolinate reductase;Tetrahydrodipicolinate:四氢二吡啶酸;DAPDH:二氨基庚二酸脱氢酶 diaminopimelate dehydrogenase;DapD:2,3,4,5-四氢吡啶-2,6-二羧酸N-琥珀酰转移酶 2,3,4,5-tetrahydropyridine-2,6-dicarboxylate N-succinyltransferase;Succinyl-2,6-amino-6-ketopimelate:琥珀酰-2,6-氨基-6-酮庚二酸;DapC:琥珀酰-二氨基庚二酸转氨酶 succinyl-diaminopimelate transaminase;N-succinyl-L-2,6-diaminopimelate:N-琥珀酰-L-2,6-二氨基庚二酸;DapE:琥珀酰-二氨基庚二酸脱琥珀酰酶 succinyl-diaminopimelate desuccinylase;L,L-2,6-diaminopimelate:L,L-2,6-二氨基庚二酸;DapF:二氨基庚二酸外消旋酶 diaminopimelate racemase;Meso-2,6-diaminopimelate:间-2,6-二氨基庚二酸;DAPDC:二氨基庚二酸脱羧酶 diaminopimelate decarboxylase;L-lysine:L-赖氨酸。

Fig.1 Biosynthetic pathway of L-lysine in Corynebacterium glutamicum[21]

2.1.2 L-赖氨酸生产菌株的遗传改良

为提高L-赖氨酸的生产效率和产量,降低生产成本,L-赖氨酸生产菌株需要经过不断的迭代进化改良。常用的改良方法包括诱变育种和基于理性设计的菌株代谢工程改造。传统的诱变技术将细胞暴露于诱变剂中,导致DNA发生遗传损伤,然后在特定培养基上筛选具有目标表型的存活细胞,以提高L-赖氨酸的生产能力[22]。例如,在诱变后筛选对L-赖氨酸结构类似物S-(2-氨基乙基)-L-半胱氨酸(AEC)耐受的突变菌株,可以有效缓解L-赖氨酸和L-苏氨酸对AK的协同抑制作用[23]
长期以来,工业菌株的育种经验积累推动了基因组育种技术的发展,以构建更高效且更稳健的生产菌株,因为这种方法可以避免传统诱变导致的随机不良突变。具体而言,通过比较工业生产菌株与野生型菌株的基因组,分析L-赖氨酸高效生产的机制,识别对L-赖氨酸生产有益的突变,并将这些突变引入野生型菌株[23]。例如,针对L-赖氨酸工业生产中的谷氨酸棒杆菌B-6,对其整个代谢途径中的突变进行分析,确定了导致L-赖氨酸高效生产的关键突变[24]。随后,在野生型菌株ATCC13032中合理组合了一系列有益突变,获得了最小化的突变菌株;重新设计的谷氨酸棒杆菌,如AGM-5和AHP-3,具有更高的生长速率和耐受性,从而缩短了发酵周期并显著提高了生产效率[25-26]。基因组育种技术消除了传统诱变菌株的不良突变,同时保持了野生型菌株的稳健性,有助于提高生产能力并降低生产成本。
代谢工程旨在对谷氨酸棒杆菌的代谢网络进行理性设计,是构建L-赖氨酸高效生产菌株的一种有效策略[9,21]。早期的代谢工程主要集中在增强L-赖氨酸生物合成途径和增加前体物质草酰乙酸的供应,如通过过表达关键酶(如AK、DHDPS、DapC和DapF)编码基因来增强核心合成途径,通过阻断竞争途径(如L-丙氨酸、L-乳酸、醋酸、琥珀酸和苹果酸)来增加合成L-赖氨酸的代谢通量,通过代谢途径改造增加还原型烟酰胺腺嘌呤二核苷酸磷酸(NADPH)的供应,通过将碳从糖酵解途径转移到磷酸戊糖途径,以及改变酶的辅因子偏好,将谷氨酸棒杆菌的内源gapA基因替换为变异链球菌(Streptococcus mutans)的gapN基因,实现从烟酰胺腺嘌呤二核苷酸(NAD)到烟酰胺腺嘌呤二核苷酸磷酸(NADP)的辅酶依赖性转换[27]

2.2 L-苏氨酸的生物合成

2.2.1 L-苏氨酸的生物合成途径

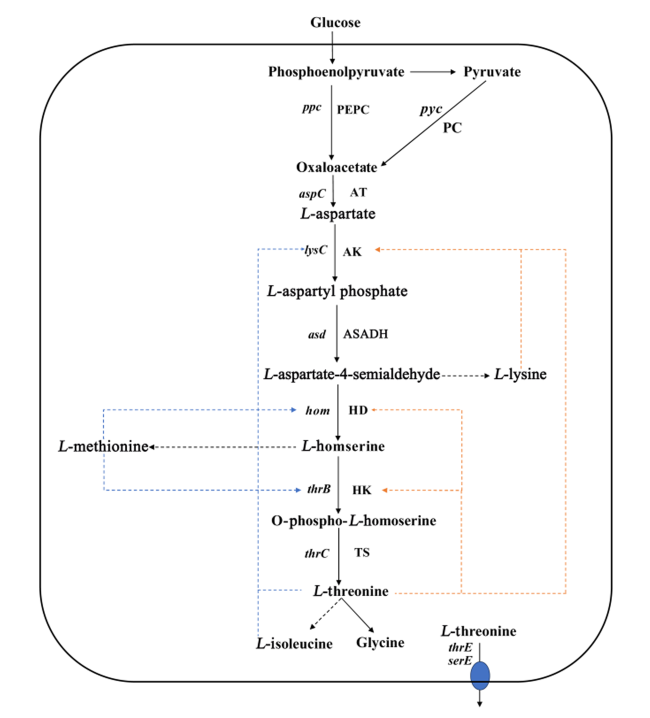
L-苏氨酸的生物合成途径可以大致分为以下3个部分:糖酵解途径、三羧酸(TCA)循环和天冬氨酸家族氨基酸代谢途径。首先,谷氨酸棒杆菌吸收的葡萄糖通过糖酵解途径分解,生成磷酸烯醇式丙酮酸和丙酮酸等一系列代谢产物。随后,这些代谢产物进入TCA循环,并通过以下2条途径之一转化为中间代谢物草酰乙酸:1)磷酸烯醇式丙酮酸羧化酶(phosphoenolpyruvate carboxylase,PEPC,由ppc基因编码)催化磷酸烯醇式丙酮酸转化为草酰乙酸;2)丙酮酸羧化酶(pyruvate carboxylase,PC,由pyc基因编码)催化丙酮酸转化为草酰乙酸。草酰乙酸进入天冬氨酸家族氨基酸的代谢途径,生成L-苏氨酸。在此过程中,天冬氨酸转氨酶(aspartate transaminase,AT,由aspC基因编码)催化草酰乙酸生成L-天冬氨酸,然后由AK催化L-天冬氨酸生成L-天冬氨酰磷酸,这一产物进一步被ASADH催化生成L-天冬氨酸-4-半醛;接着,L-天冬氨酸-4-半醛通过同型丝氨酸脱氢酶(homoserine dehydrogenase,HD,由hom基因编码)和同型丝氨酸激酶(homoserine kinase,HK,由thrB基因编码)的逐步作用,生成磷酸同型丝氨酸;最后,苏氨酸合成酶(threonine synthetase,TS,由thrC基因编码)催化磷酸同型丝氨酸生成L-苏氨酸[28]L-苏氨酸在谷氨酸棒杆菌中的生物合成途径如图2所示[28]
图2 L-苏氨酸在谷氨酸棒杆菌中的生物合成途径

Glucose:葡萄糖;Phosphoenolpyruvate:磷酸烯醇式丙酮酸;Pyruvate:丙酮酸;PEPC:磷酸烯醇式丙酮酸羧化酶 phosphoenolpyruvate carboxylase;PC:丙酮酸羧化酶 pyruvate carboxylase;Oxaloacetate:草酰乙酸;AT:天冬氨酸转氨酶 aspartate transaminase;L-aspartate:L-天冬氨酸;AK:天冬氨酸激酶 aspartate kinase;L-aspartyl phosphate:L-天冬氨酰磷酸;ASADH:天冬氨酸半醛脱氢酶 aspartate-semialdehyde dehydrogenase;L-aspartate-4-semialdehyde:L-天冬氨酸-4-半醛;L-lysine:L-赖氨酸;HD:同型丝氨酸脱氢酶 homoserine dehydrogenase;L-methionine:L-蛋氨酸;L-homoserine:L-同型丝氨酸;HK:同型丝氨酸激酶 homoserine kinase;O-phospho-L-homoserine:O-磷酸L-同型丝氨酸;TS:苏氨酸合成酶 threonine synthetase;L-threonine:L-苏氨酸;L-isoleucine:L-异亮氨酸;Glycine:甘氨酸。

蓝色虚线表示反馈阻遏,橙色虚线表示反馈抑制。Blue dashed line represented feedback deterrence, and orange dashed line represented feedback inhibition.

Fig.2 Biosynthetic pathway of L-threonine in Corynebacterium glutamicum[28]

2.2.2 L-苏氨酸生产菌株的遗传改良

代谢工程已越来越多地应用于L-苏氨酸生产菌株的遗传改良。目前,针对L-苏氨酸代谢途径的改造策略主要集中在以下几个方面:1)增强L-苏氨酸的合成途径;2)加强L-苏氨酸的转运;3)降低L-苏氨酸的细胞内代谢;4)削弱与L-苏氨酸合成竞争的碳流途径;5)系统代谢工程[28]。通过增强编码L-苏氨酸合成途径中关键酶的目标基因表达以及提高前体物质的供应,可以提高L-苏氨酸的产量。在基因组或质粒上过表达L-苏氨酸合成途径中的关键基因,例如lysCasdhomthrB,通常可以提高L-苏氨酸的产量。此外,通过对编码关键酶的基因进行改造以缓解反馈抑制,从而促进更多的碳流进入L-苏氨酸合成途径,也可以进一步提高L-苏氨酸的产量。Wei等[29]利用基于启动子库的模块组合(PLMC)过表达了5个L-苏氨酸合成相关的基因,即lysCasdhomthrBthrC,成功将碳流从L-赖氨酸分支重定向到L-苏氨酸分支,使L-苏氨酸产量达到了12.8 g/L;此外,通过进一步提高代谢途径中thrB的表达水平,使其高于hom的表达水平,以避免中间产物L-同型丝氨酸的积累。黄勤勤等[30]对编码关键限速酶的基因lysC进行了定向突变,获得了A297T突变体,通过串联过表达lysC-asd基因,摇瓶发酵中L-苏氨酸的产量达到了7.2 g/L,比原始菌株提高了27.8%。在谷氨酸棒杆菌中,过高的细胞内L-苏氨酸浓度不仅会影响细菌的生长,还会增强对关键酶的反馈抑制作用。因此,增强L-苏氨酸的胞外分泌不仅可以提高其产量,还能减少L-苏氨酸的降解。Simic等[31]以谷氨酸棒杆菌DR-17作为底盘细胞,过表达质粒上编码转运蛋白ThrE的基因,促进细胞内产生的L-苏氨酸向胞外转运,从而使L-苏氨酸产量从5.8 g/L提高到8.0 g/L。L-苏氨酸可以作为底物,通过酶催化作用被细胞利用,生成甘氨酸或L-异亮氨酸。其中,丝氨酸羟甲基转移酶(由glyA基因编码)利用L-苏氨酸进入甘氨酸合成途径。Simic等[31]通过在质粒中使用诱导型启动子Ptac降低了glyA基因的表达,将L-苏氨酸产量从0.9 g/L提高到1.3 g/L。此外,L-苏氨酸还可被苏氨酸脱氨酶(由ilvA基因编码)降解生成α-酮丁酸,随后进入L-异亮氨酸合成途径。Diesveld等[32]在谷氨酸棒杆菌DM1800-T菌株的染色体上对ilvA基因进行了失活突变(G96D),降低了苏氨酸脱氨酶活性,使L-苏氨酸产量从2.5 g/L提高到4.0 g/L。Ishida等[33]利用具有L-异亮氨酸营养缺陷的谷氨酸棒杆菌生产L-苏氨酸,在100 h的补料分批培养中,L-苏氨酸的产量达到了57.7 g/L。

2.3 L-色氨酸的生物合成

2.3.1 L-色氨酸的生物合成途径

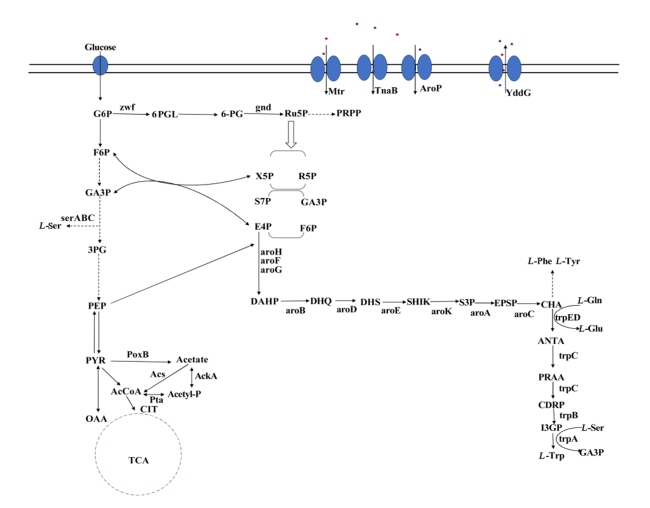
酿酒酵母(Saccharomyces cerevisiae)和大肠杆菌细胞中共同参与L-色氨酸合成的3条代谢途径包括中心代谢途径、莽草酸途径和分支酸(chorismic acid,CHA)途径[34-35]L-色氨酸在大肠杆菌中的合成途径是一条与芳香族氨基酸代谢相耦合的复杂代谢途径。在富氧条件下,糖酵解途径将部分葡萄糖转化为磷酸烯醇式丙酮酸,而TCA循环则消耗另一部分葡萄糖。然后,通过己糖单磷酸途径和赤藓糖-4-磷酸(erythrose-4-phosphate,E4P)的作用,继续生成3-脱氧-D-阿拉伯庚糖酮酸-7-磷酸(3-deoxy-D-arabino-heptulosonate-7-phosphate,DAHP)。莽草酸途径从DAHP开始,先后生成3-脱氢莽草酸(3-dehydroshikimic acid,DHS)和莽草酸-3-磷酸(shikimate-3-phosphate,S3P),随后转化为5-烯丙氧基莽草酸-3-磷酸(5-enolpyruvylshikimate-3-phosphate,EPSP)。在CHA途径中,首先生成邻氨基苯甲酸(anthranilate,ANTA)和苯丙酮酸,进而生成L-谷氨酸。其中,ANTA被转化为吲哚-3-甘油磷酸(indol-3-glycerol phosphate,I3GP),随后I3GP与L-丝氨酸共同合成L-色氨酸。分支酸途径中共生成了3种芳香族氨基酸,分别为:L-苯丙氨酸、L-酪氨酸和L-色氨酸。然而,其他2种芳香族氨基酸(L-苯丙氨酸和L-酪氨酸)会对L-色氨酸的合成产生负面影响。L-色氨酸在大肠杆菌中的生物合成途径如图3所示[34]
图3 L-色氨酸在大肠杆菌中的生物合成途径

Glucose:葡萄糖;G6P:葡萄糖-6-磷酸 glucose-6-phosphate;6PGL:6-磷酸葡糖酸内酯 6-phosphogluconolactone:6-PG:6-磷酸葡糖酸 6-phosphogluconate;Ru5P:核酮糖-5-磷酸 ribulose-5-phosphate;PRPP:磷酸核糖焦磷酸 phosphoribosyl pyrophosphate;F6P:果糖-6-磷酸 fructose-6-phosphate;GA3P:甘油醛-3-磷酸 glyceraldehyde-3-phosphate;L-Ser:L-色氨酸 L-serine;3PG:3-磷酸甘油酸 3-phosophoglycerate;PEP:磷酸烯醇式丙酮酸 phosphoenolpyruvate;PYR:丙酮酸 pyruvate;OAA:草酰乙酸 oxaloacetate;PoxB:丙酮酸氧化酶 pyruvic oxidase;Acetate:乙酸;AckA:乙酸激酶 acetate kinase;Acs:乙酰辅酶A合成酶 acetyl-CoA synthetase;AcCoA:乙酰辅酶A acetyl-CoA;Pta:磷酸转乙酰酶 phosphotransacetylase;Acetyl-P:乙酰磷酸 acetyl phosphate;CIT:柠檬酸 citric acid;TCA:三羧酸 tricarboxylic acid;X5P:木酮糖-5-磷酸 xylulose-5-phosphate;R5P:核糖-5-磷酸 ribose-5-phosphate;S7P:景天庚酮糖-7-磷酸 sedoheptulose-7-phosphate;E4P:赤藓糖-4-磷酸 erythrose-4-phosphate;DAHP:3-脱氧-D-阿拉伯庚糖酮酸-7-磷酸 3-deoxy-D-arabino-heptulosonate-7-phosphate;DHQ:3-脱氢奎尼酸 3-dehydroquinic acid;DHS:3-脱氢莽草酸 3-dehydroshikimic acid;SHIK:莽草酸 shikimic acid;S3P:莽草酸-3-磷酸 shikimate-3-phosphate;EPSP:5-烯丙氧基莽草酸-3-磷酸 5-enolpyruvylshikimate-3-phosphate;L-Phe:L-苯丙氨酸 L-phenylalanine;L-Tyr:L-酪氨酸 L-tyrosine;CHA:分支酸 chorismic acid;L-Gln:L-谷氨酰胺 L-glutamine;L-Glu:L-谷氨酸 L-glutamate;ANTA:邻氨基苯甲酸 anthranilate;PRAA:磷酸核糖邻氨基苯甲酸 phosphoribosyl anthranilate;CDRP:烯醇-1-O-羧苯氨基-1-脱氧核酮糖磷酸 enol-1-O-carboxyphenylamino-1-deoxy-ribulose phosphate;I3GP:吲哚-3-甘油磷酸 indol-3-glycerol phosphate;L-Trp:L-色氨酸 L-tryptophan。

Fig.3 Biosynthetic pathway of L-tryptophan in Escherichia coli[34]

2.3.2 L-色氨酸生产菌株的遗传改良

通过研究L-色氨酸生物合成的潜在代谢调控网络,并对其进行改造,可以提高L-色氨酸的工业产量。例如,研究表明,通过敲除或过表达关键酶基因(如trpAtrpBtrpCtrpDtrpEaroH)和调控代谢通量,可以实现L-色氨酸产量的大幅提升;工业菌株大肠杆菌TS-1通过过表达icdgdhA基因,添加prs基因,重新表达突变的serAthrA基因以增加L-丝氨酸前体的供应,最终过表达syhApntApntB,在摇瓶中发酵48 h后生产出了1.710 g/L的L-色氨酸[36]。在大肠杆菌TRTH0709/pMEL03中,通过过表达yddG并抑制磷酸乙酰转移酶和高亲和力色氨酸转运蛋白的表达,在30 L发酵罐中发酵48 h后进行分批发酵,L-色氨酸的产量达到48.68 g/L[37]。研究报道,聚羟基丁酸(polyhydroxybutyrate,PHB)可以通过引入包含phaCAB调控基因的PHB生物合成途径,促进L-色氨酸调控因子的转录,从而提升L-色氨酸产量[35]。在培养基中添加木糖作为辅助底物以增加PHB生物合成的前体供应,通过补料分批发酵,大肠杆菌GPT2000菌株在过表达抗反馈抑制的aroFtrpED基因、删除L-色氨酸阻遏子并阻止L-苯丙氨酸和L-酪氨酸的合成后,L-色氨酸产量达到14.4 g/L[38]。在补料分批发酵55 h后,由于敲低了磷酸乙酰转移酶的表达,大肠杆菌FB-04的最终L-色氨酸产量达到44.0 g/L[39]。通过在PacnB启动子的控制下共表达acnBAicd基因,大肠杆菌TRP07在5 L生物反应器中发酵36 h后收集到49 g/L的L-色氨酸[40]。在大肠杆菌S092菌株中表达来源于黑曲霉的邻氨基苯甲酸激活型TrpC,使L-色氨酸产量在42 h内从19 g/L提高到29 g/L[41]

2.4 支链氨基酸的生物合成

2.4.1 支链氨基酸的生物合成途径

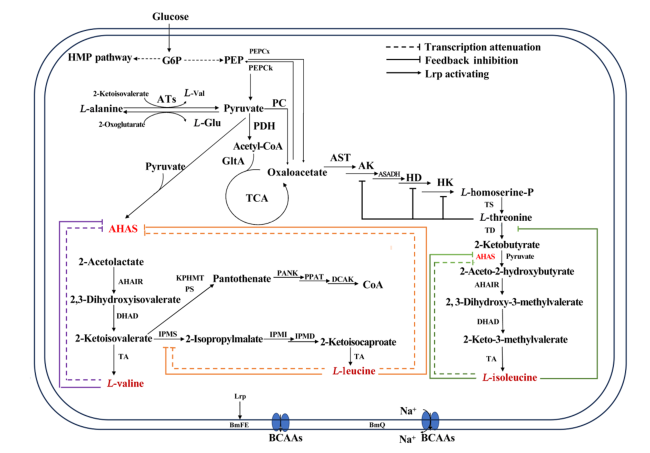
L-缬氨酸、L-亮氨酸和L-异亮氨酸均来源于中心代谢产物丙酮酸,它们的合成途径共享关键酶,如乙酰羟酸合酶(acetohydroxy acid synthase,AHAS)、乙酰羟酸异构还原酶(acetohydroxy acid isomeroreductase,AHAIR)、二羟酸脱水酶(dihydroxy acid dehydratase,DHAD)和氨基转移酶(transaminase,TA)。在该途径中,2分子丙酮酸在AHAS的催化下生成2-乙酰乳酸,随后在AHAIR和DHAD的依次催化下转化为2-酮异戊酸(2-ketoisovalerate,2-KIV);TA进一步将2-KIV催化生成L-缬氨酸。异丙基苹果酸合酶(isopropylmalate synthase,IPMS)与TA竞争2-KIV,催化其生成2-异丙基苹果酸,随后通过α-异丙基苹果酸异构酶(α-isopropylmalate isomerase,IPMI)和α-异丙基苹果酸脱氢酶(α-isopropylmalate dehydrogenase,IPMD)的依次催化,生成2-酮异己酸(2-ketoisocaproate,2-KIC);2-KIC在TA的作用下转化为L-亮氨酸。此外,由磷酸烯醇式丙酮酸或丙酮酸衍生的草酰乙酸经过多步酶催化生成L-苏氨酸,而L-苏氨酸在苏氨酸脱水酶(threonine dehydratase,TD)的作用下转化为2-酮丁酸,2-酮丁酸与丙酮酸一起在AHAS的催化下生成2-乙酰-2-羟基丁酸,再经过AHAIR、DHAD和TA的连续催化,最终生成L-异亮氨酸[42]。不过,L-缬氨酸、L-亮氨酸或L-异亮氨酸的积累会反馈抑制AHAS的活性[43]。此外,L-异亮氨酸的积累还会通过反馈抑制TD的活性[44],IPMS的活性和表达分别受到亮氨酸反馈抑制[45],转运蛋白BrnFE和BrnQ分别负责将支链氨基酸从细胞内运输到胞外和从胞外运输回细胞内,BrnFE的表达受到全局转录因子亮氨酸响应蛋白(leucine-responsive protein,Lrp)的正向调控[42]。支链氨基酸在谷氨酸棒杆菌中的生物合成途径如图4所示[42]
图4 支链氨基酸在谷氨酸棒杆菌中的生物合成途径

Glucose:葡萄糖;HMP pathway:己糖单磷酸途径 hexose monophosphate pathway;G6P:葡萄糖-6-磷酸 glucose-6-phosphate;PEP:磷酸烯醇式丙酮酸 phosphoenolpyruvate;PEPCx:磷酸烯醇式丙酮酸羧化酶 phosphoenolpyruvate carboxylase;PEPCk:磷酸烯醇式丙酮酸羧激酶 phosphoenolpyruvate carboxykinase;2-Ketoisovalerate:2-酮异戊酸;L-alanine:L-丙氨酸;2-Oxoglutarate:2-氧戊二酸;ATs:氨基转移酶 aminotransferases;L-Val:L-缬氨酸 L-valine;L-Glu:L-谷氨酸 L-glutamate;Pyruvate:丙酮酸;PC:丙酮酸羧化酶 pyruvate carboxylase;PDH:丙酮酸脱氢酶 pyruvate dehydrogenase;Acetyl-CoA:乙酰辅酶A;GltA:柠檬酸合酶 citrate synthase;TCA:三羧酸 tricarboxylic acid;Oxaloacetate:草酰乙酸;AST:天冬氨酸氨基转移酶 aspartate transaminase;AK:天冬氨酸激酶 aspartate kinase;ASADH:天冬氨酸半醛脱氢酶 aspartate-semialdehyde dehydrogenase;HD:同型丝氨酸脱氢酶 homoserine dehydrogenase;HK:同型丝氨酸激酶 homoserine kinase;L-homoserine-P:L-同型丝氨酸磷酸 L-homoserine phosphate;TS:苏氨酸合成酶 threonine synthetase;L-threonine:L-苏氨酸;TD:苏氨酸脱水酶 threonine dehydratase;2-Ketobutyrate:2-酮丁酸;AHAS:乙酰羟酸合酶 acetohydroxy acid synthase;2-Aceto-2-hydroxybutyrate:2-乙酰-2-羟基丁酸;AHAIR:乙酰羟酸异构还原酶 acetohydroxy acid isomeroreductase;2,3-Dihydroxy-3-methylvalerate:2,3-二羟基-3-甲基戊酸;DHAD:二羟酸脱水酶 dihydroxy acid dehydratase;2-Keto-3-methylvalerate:2-酮基-3-甲基戊酸;TA:支链氨基酸氨基转移酶 branched-chain amino acid aminotransferase;L-isoleucine:L-异亮氨酸;2-Acetolactate:2-乙酰乳酸;2,3-Dihydroxyisovalerate:2,3-二羟基异戊酸;L-valine:L-缬氨酸;PS:泛酸合成酶 pantothenate synthetase;KPHMT:酮戊酸羟甲基转移酶 ketovalerate hydroxymethyltransferase;Pantothenate:泛酸;PANK:泛酸激酶 pantothenate kinase;PPAT:磷酸泛酰巯基乙胺腺苷转移酶 phosphopantetheine adenylyltransferase;DACK:脱磷酸辅酶A激酶 dephospho-CoA kinase;CoA:辅酶A coenzyme A;IPMS:异丙基苹果酸合酶 isopropylmalate synthase;2-Isopropylmalate:2-异丙基苹果酸;IPMI:α-异丙基苹果酸异构酶 α-isopropylmalate isomerase;IPMD:α-异丙基苹果酸脱氢酶 α-isopropylmalate dehydrogenase;2-Ketoisocaproate:2-酮异己酸;L-leucine:L-亮氨酸;BCAAs:支链氨基酸 branched-chain amino acids;Transcription attenuation:转录衰减;Feedback inhibition:反馈抑制;Lrp activating:Lrp激活;Lrp:亮氨酸响应蛋白 leucine-responsive protein。

Fig.4 Biosynthetic pathways of branched chain amino acids in Corynebacterium glutamicum[42]

2.4.2 支链氨基酸生产菌株的遗传改良

基于基因编辑和代谢工程技术对支链氨基酸生产菌株进行理性设计,改良方法主要包括改造关键合成酶以减轻反馈抑制、增强支链氨基酸生物合成途径、调节中心碳代谢、改善辅酶供应以及调节支链氨基酸转运蛋白等[42]。上述措施的结合使用,旨在提高工业规模支链氨基酸的生产性能,提高生产效率和产量,降低生产成本,并提高工业生产的可持续性。
AHAS是支链氨基酸合成途径中的关键催化酶[46],为一个四聚体,由2个大的催化亚基和2个小的调节亚基组成,并分别由ilvBilvN基因编码[47]。通过工程化改造AHAS以减轻或弱化其对反馈抑制的敏感性,可提升支链氨基酸的合成效率,将其调节亚基ilvN在第20、21和22位的氨基酸从G-I-I突变为D-D-F,生成M13突变体,该突变体在1.17 g/L的L-缬氨酸、L-异亮氨酸或L-亮氨酸存在下能够抵抗反馈抑制[48]。随后,将M13突变体引入谷氨酸棒杆菌,使L-亮氨酸产量从3.46 g/L提高到7.21 g/L[49]。对ilvN保守区域进行定点突变(如A42V、A89V或K136E)也可以增强AHAS对支链氨基酸的抗性,A42V/A89V双突变体在1.27 g/L支链氨基酸存在下维持了高于93%的酶活性,将该突变体整合到支链氨基酸生物合成途径中,使L-缬氨酸产量从1.95 g/L提高到10.1 g/L[50]。除了对调控亚基引入突变,还可通过对其催化亚基ilvB进行改造,以降低支链氨基酸对AHAS的反馈抑制。研究表明,携带W503Q突变的ilvB使L-亮氨酸的产量提高到3.40 g/L,比野生型ilvB提高了1.1倍;进一步在ilvB上引入W503Q和T96S双突变后,L-缬氨酸产量比野生型提高了1.2倍[51]
为了高效地提高支链氨基酸合成的代谢通量并进一步增强其产量,已采用多种措施将碳源导向支链氨基酸的生产途径中。在谷氨酸棒杆菌中,糖酵解途径生成的丙酮酸是支持细胞生长的重要中间体,也是支链氨基酸生物合成的必需前体。因此,调控丙酮酸的积累可以将碳源重新分配至支链氨基酸的生物合成。丙酮酸的积累量取决于与丙酮酸代谢相关酶的表达调控。敲除编码丙酮酸脱氢酶(pyruvate dehydrogenase,PDH,该酶将丙酮酸转化为TCA循环前体乙酰辅酶A)的aceE基因,可以增强丙酮酸的积累,并增加碳通量用于L-缬氨酸的生产[52]。在敲除aceE基因的谷氨酸棒杆菌株中进一步敲除编码丙酮酸/醌氧化还原酶(该酶催化丙酮酸向乙酸的转化)的编码基因pqo,使菌株在24 h内积累了26.4 g/L的L-缬氨酸[53]。在谷氨酸棒杆菌中敲除pyc基因以减少丙酮酸进入TCA循环的通量,使L-缬氨酸和L-亮氨酸的产量分别从5.93、15.7 g/L提高到6.74、16.9 g/L[54]。谷氨酸棒杆菌中的柠檬酸合酶催化乙酰辅酶A进入TCA循环,用弱启动子PdapA-L1替换gltA原始启动子,柠檬酸合酶活性降低了16%,并将L-亮氨酸产量提高到6.82 g/L[49]
增强支链氨基酸的转运分泌是缓解产物反馈抑制、提高菌株发酵产量的重要措施。谷氨酸棒杆菌中的BrnFE与其在大肠杆菌中的同源蛋白YgaZH是一种双组分渗透酶,可以实现支链氨基酸的外泌功能[55]ygaZHbrnFE基因的表达均受到全局性调控蛋白Lrp的正向调控[56]。谷氨酸棒杆菌中lrp基因的过表达可将缬氨酸的产量提高16倍,进一步对brnFElrpilvBNC进行突变与过表达后,缬氨酸的发酵产量最高达到51.2 g/L[57]。过表达大肠杆菌ygaZH基因可有效提升异亮氨酸的发酵水平[58]。BrnQ和LivJ这2个蛋白负责支链氨基酸的跨膜转入[59-60],敲除brnQ基因对大肠杆菌支链氨基酸的产量具有显著的促进效果[61]
在支链氨基酸生物合成途径中,NADPH是多种关键酶(如ASADH、HD、AHAIR和TA)的必需辅因子。然而,谷氨酸棒杆菌缺乏烟酰胺核苷酸转氢酶,还原型烟酰胺腺嘌呤二核苷酸(NADH)向NADPH的可逆转化受到限制,导致NADPH供应不足,进而影响支链氨基酸的生产[62]。因此,增加NADPH的供应以强化关键酶反应是提高支链氨基酸生产的关键步骤。在谷氨酸棒杆菌中,过表达NAD激酶ppnk的菌株将L-异亮氨酸的产量提高到了32.3 g/L[63-64],进一步将ppnk与葡萄糖-6-磷酸脱氢酶(G6PD)共表达,L-异亮氨酸的产量提高了85.9%[65]

3 小结与展望

氨基酸是动物生长发育所必需的营养成分,在饲粮中添加氨基酸可以提高饲粮的营养价值,促进动物健康生长。随着全球养殖业的发展,行业对高质量饲料的需求不断增加,加之我国低蛋白质饲粮技术的推广应用,氨基酸作为饲料添加剂的市场需求也将持续增长。饲用氨基酸的生物制造在饲料行业具有广阔的应用前景,将为畜牧业的发展提供有力支持。然而,目前我国氨基酸生物制造行业缺乏自主的高性能工业生产菌种,自主菌种的生产水平距国际大公司菌种仍存在一定差距。提升饲用氨基酸的生产技术水平,应加强基因编辑和合成生物学技术的应用,深入研究氨基酸生产菌株的代谢网络和调控机制,探索氨基酸合成代谢流的全局优化。同时,开发更高效、更稳定的生产菌种,提高氨基酸生产菌株的鲁棒性,增强生产菌株对外界环境的胁迫耐受能力,同时结合人工智能技术优化发酵工艺,实现智能化生产,可以提升饲用氨基酸生产菌种的发酵性能,简化发酵过程控制,降低饲用氨基酸的生产成本。另外,依托生物技术,利用秸秆等工农业副产物或一碳化合物生产饲用氨基酸,也将是未来缓解粮食安全问题,实现农业可持续发展的重要解决方案。
[1]
ABDULLAH B J, ALBADDY M A K. Reinforcement of low-protein diets with some essential amino acids and their effect on the characteristics of a carcass and some blood characteristics of broilers[J]. IOP Conference Series:Earth and Environmental Science, 2022,1060:012061.

[2]
JOSEPH B C, JAYANAIK, CHACKO B, et al. Effect of low crude protein breeder diets with balanced limiting amino acids on progeny chick quality and juvenile growth performance in Swarnadhara birds[J]. Indian Journal of Animal Sciences, 2023, 93(6):598-601.

[3]
黄保续. 持续深入推进饲用豆粕减量替代[J]. 猪业观察, 2024(2):16-18.

HUANG B X. Continuously promote the reduction and substitution of feed soybean meal[J]. Swine Industry Outlook, 2024(2):16-18. (in Chinese)

[4]
OLUWABIYI C T, SONG Z G. Branched-chain amino acids supplementation in low-protein broiler diets:a review[J]. Animal Feed Science and Technology, 2024,318:116114.

[5]
许安其, 范志勇, 王丽, 等. 提升猪饲料氨基酸消化率的加工工艺研究进展[J]. 动物营养学报, 2024, 36(4):2091-2103.

DOI

XU A Q, FAN Z Y, WANG L, et al. Research progress in processing techniques for improving amino acids digestibility of pig feed[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2091-2103. (in Chinese)

DOI

[6]
谯仕彦, 周俊言, 李晟铠, 等. 低蛋白质低豆粕多元化饲粮是养猪节粮增效的关键技术[J]. 动物营养学报, 2024, 36(6):3401-3412.

DOI

QIAO S Y, ZHOU J Y, LI S K, et al. Diversified diet with low protein and low soybean meal is a key technology for pigs industry to save feed and improve efficiency[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3401-3412. (in Chinese)

DOI

[7]
韩冰清, 刘红云. 赖氨酸影响奶牛乳蛋白合成的分子机制[J]. 动物营养学报, 2023, 35(11):6880-6887.

DOI

HAN B Q, LIU H Y. Molecular mechanism of lysine affecting milk protein synthesis in dairy cows[J]. Chinese Journal of Animal Nutrition, 2023, 35(11):6880-6887. (in Chinese)

DOI

[8]
姚康, 曹舒婷, 蒋宗勇, 等. 猪赖氨酸的应用及其需要量的研究进展[J]. 中国畜牧兽医, 2023, 50(4):1364-1374.

DOI

YAO K, CAO S T, JIANG Z Y. The research progress of lysine application and requirement in pigs[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(4):1364-1374. (in Chinese)

[9]
LI M H, LI H, ZHANG X, et al. Metabolic engineering of Corynebacterium glutamicum:unlocking its potential as a key cell factory platform for organic acid production[J]. Biotechnology Advances, 2024, 77(108475):108475.

[10]
NRC. Nutrient requirements of swine[S]. 11th Rev. ed.Washington D.C.:The National Academies Press, 2012.

[11]
LIU G C, KIM W K. The Functional roles of methionine and arginine in intestinal and bone health of poultry:review[J]. Animals, 2023, 13(18):2949.

[12]
TANG Q, TAN P, MA N, et al. Physiological functions of threonine in animals:beyond nutrition metabolism[J]. Nutrients, 2021, 13(8):2592.

[13]
张海泽, 胡冰艳, 庞卫军. 苏氨酸对猪生理作用的研究进展[J]. 动物营养学报, 2023, 35(2):708-717.

DOI

ZHANG H Z, HU B Y, PANG W J. Research progress on physiological effects of threonine in pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):708-717. (in Chinese)

DOI

[14]
臧珊珊, 林涛, 郭兴, 等. L-色氨酸的系统代谢网络调控研究进展[J]. 生物技术, 2022, 32(1):99-106.

ZANG S S, LIN T, GUO X, et al. Research progress on the regulation of L-tryptophan system metabolic network[J]. Biotechnology2022, 32(1):99-106. (in Chinese)

[15]
简华锋, 章旭春, 董信阳, 等. 支链氨基酸在畜禽低蛋白质饲粮体系中的应用[J]. 动物营养学报, 2021, 33(8):4285-4293.

DOI

JIAN H F, ZHANG X C, DONG X Y, et al. Application of branched-chain amino acids in low-protein diet system for livestock and poultry[J]. Chinese Journal of Animal Nutrition, 2021, 33(8):4285-4293. (in Chinese)

[16]
DOZIER W A, CORZO A, KIDD M T, et al. Determination of the fourth and fifth limiting amino acids in broilers fed on diets containing maize,soybean meal and poultry by-product meal from 28 to 42 d of age[J]. British Poultry Science, 2010, 52(2):238-244.

[17]
KORHONEN M, VANHATALO A, HUHTANEN P. Evaluation of isoleucine,leucine,and valine as a second-limiting amino acid for milk production in dairy cows fed grass silage diet[J]. Journal of Dairy Science, 2002, 85(6):1533-1545.

[18]
JIAO X, MA W F, CHEN Y R, et al. Effects of amino acids supplementation in low crude protein diets on growth performance,carcass traits and serum parameters in finishing gilts[J]. Animal Science Journal, 2016, 87(10):1252-1257.

[19]
卢麒, 杨雪芬, 王丽, 等. 异亮氨酸的营养生理作用及其在猪生产中的应用研究进展[J]. 中国畜牧兽医, 2023, 50(12):4886-4898.

DOI

LU Q, YANG X F, WANG L, et al. Research progress on nutritional physiological effects of isoleucine and its application in pig production[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(12):4886-4898. (in Chinese)

[20]
WILTAFSKY M K, BARTELT J, RELANDEAU C, et al. Estimation of the optimum ratio of standardized ileal digestible isoleucine to lysine for eight- to twenty-five-kilogram pigs in diets containing spray-dried blood cells or corn gluten feed as a protein source[J]. Journal of Animal Science, 2009, 87(8):2554-2564.

DOI PMID

[21]
LIU J, XU J Z, RAO Z M, et al. Industrial production of L-lysine in Corynebacterium glutamicum:progress and prospects[J]. Microbiological Research, 2022,262:127101.

[22]
FÉLIX F K D C, LETTI L A J, PEREIRA G V D M, et al. L-lysine production improvement:a review of the state of the art and patent landscape focusing on strain development and fermentation technologies[J]. Critical Reviews in Biotechnology, 2019, 39(8):1031-1055.

[23]
IKEDA M. Lysine fermentation:history and genome breeding[M]//YOKOTA A,IKEDA M.Amino acid fermentation. Tokyo:Springer,2016:73-102.

[24]
HAYASHI M, OHNISHI J, MITSUHASHI S, et al. Transcriptome analysis reveals global expression changes in an industrial L-lysine producer of Corynebacterium glutamicum[J]. Bioscience,Biotechnology,and Biochemistry, 2006, 70(2):546-550.

[25]
IKEDA M, OHNISHI J, HAYASHI M, et al. A genome-based approach to create a minimally mutated Corynebacterium glutamicum strain for efficient L-lysine production[J]. Journal of Industrial Microbiology & Biotechnology, 2006, 33(7):610-615.

[26]
OHNISHI J, MITSUHASHI S, HAYASHI M, et al. A novel methodology employing Corynebacterium glutamicum genome information to generate a new L-lysine-producing mutant[J]. Applied Microbiology and Biotechnology, 2002, 58(2):217-223

[27]
TAKENO S, HORI K, OHTANI S, et al. L-lysine production independent of the oxidative pentose phosphate pathway by Corynebacterium glutamicum with the Streptococcus mutans gapN gene[J]. Metabolic Engineering, 2016,37:1-10.

[28]
DUAN M, CHEN S, LIU X L, et al. The application of Corynebacterium glutamicum in L-threonine biosynthesis[J]. Fermentation, 2023, 9(9):822.

[29]
WEI L, XU N, WANG Y R, et al. Promoter library-based module combination (PLMC) technology for optimization of threonine biosynthesis in Corynebacterium glutamicum[J]. Applied Microbiology and Biotechnology, 2018, 102(9):4117-4130.

[30]
黄勤勤, 王慧梅, 梁玲, 等. lysC定点突变及lysCasdA串联表达对谷氨酸棒杆菌L-苏氨酸积累的影响[J]. 生物技术通报, 2019, 35(2):93-100.

DOI

HUANG Q Q, WANG H M, LIANG Ling, et al. Effects of site-directed mutation of gene lysC and co-expression of lysC-asdA cluster on L-threonine accumulation in Corynebacterium glutamate[J]. Biotechnology Bulletin, 2019, 35(2):93-100. (in Chinese)

[31]
SIMIC P, WILLUHN J, SAHM H, et al. Identification of glyA (encoding serine hydroxymethyltransferase) and its use together with the exporter ThrE to increase L-threonine accumulation by Corynebacterium glutamicum[J]. Applied and Environmental Microbiology, 2002, 68(7):3321-3327.

[32]
DIESVELD R, TIETZE N, FÜRST O, et al. Activity of exporters of Escherichia coli in Corynebacterium glutamicum,and their use to increase L-threonine production[J]. Journal of Molecular Microbiology & Biotechnology, 2009, 16(3/4):198-207.

[33]
ISHIDA M, KAWASHIMA H, SATO K, et al. Factors improving L-threonine production by a three L-threonine biosynthetic genes-amplified recombinant strain of Brevibacterium lactofermentum[J]. Bioscience,Biotechnology,and Biochemistry, 1994, 58(4):768-770.

[34]
LIU S, XU J Z, ZHANG W G. Advances and prospects in metabolic engineering of Escherichia coli for L-tryptophan production[J]. World Journal of Microbiology & Biotechnology, 2022,38:22.

[35]
REN X R, WEI Y, ZHAO H L, et al. A comprehensive review and comparison of L-tryptophan biosynthesis in Saccharomyces cerevisia and Escherichia coli[J]. Frontiers in Bioengineering and Biotechnology, 2023,11:1261832.

[36]
LI Z, DING D Q, WANG H Y, et al. Engineering Escherichia coli to improve tryptophan production via genetic manipulation of precursor and cofactor pathways[J]. Synthetic and Systems Biotechnology, 2020, 5(3):200-205.

[37]
WANG J, CHENG L K, WANG J, et al. Genetic engineering of Escherichia coli to enhance production of L-tryptophan[J]. Applied Microbiology and Biotechnology, 2013, 97(17):7587-7596.

[38]
GU P F, KANG J H, YANG F, et al. The improved L-tryptophan production in recombinant Escherichia coli by expressing the polyhydroxybutyrate synthesis pathway[J]. Applied Microbiology and Biotechnology, 2013, 97(9):4121-4127.

[39]
STEL A X V D, GORDON E R, SENGUPTA A, et al. Structural basis for the tryptophan sensitivity of TnaC-mediated ribosome stalling[J]. Nature Communications, 2021,12:5340.

[40]
DU L H, ZHANG Z, XU Q Y, et al. Central metabolic pathway modification to improve L-tryptophan production in Escherichia coli[J]. Bioengineered, 2019, 10(1):59-70.

[41]
CHEN L, CHEN M L, MA C W, et al. Discovery of feed-forward regulation in L-tryptophan biosynthesis and its use in metabolic engineering of E. coli for efficient tryptophan bioproduction[J]. Metabolic Engineering, 2018,47:434-444.

[42]
YU S Z, ZHENG B, CHEN Z Y, et al. Metabolic engineering of Corynebacterium glutamicum for producing branched chain amino acids[J]. Microbial Cell Factories, 2021,20:230.

[43]
GUO Y F, HAN M, XU J Z, et al. Analysis of acetohydroxyacid synthase variants from branched-chain amino acids-producing strains and their effects on the synthesis of branched-chain amino acids in Corynebacterium glutamicum[J]. Protein Expression & Purification, 2015,109:106-112.

[44]
MORBACH S, SAHM H, EGGELING L. Use of feedback-resistant threonine dehydratases of Corynebacterium glutamicum to increase carbon flux towards L-isoleucine[J]. Applied & Environmental Microbiology, 1995, 61(12):4315-4320.

[45]
PÁTEK M, KRUMBACH K, EGGELING L, et al. Leucine synthesis in Corynebacterium glutamicum:enzyme activities,structure of leuA,and effect of leuA inactivation on lysine synthesis[J]. Applied & Environmental Microbiology, 1994, 60(1):133-140.

[46]
LIU Y D, LI Y Y, WANG X Y. Acetohydroxyacid synthases:evolution,structure,and function[J]. Applied Microbiology and Biotechnology, 2016, 100(20):8633-8649.

[47]
ZHANG H L, LI Y Y, WANG C H, et al. Understanding the high L-valine production in Corynebacterium glutamicum VWB-1 using transcriptomics and proteomics[J]. Scientific Reports, 2018,8:3632.

[48]
ELISÁKOVÁ V, PÁTEK M, HOLÁTKO J, et al. Feedback-resistant acetohydroxy acid synthase increases valine production in Corynebacterium glutamicum[J]. Applied and Environmental Microbiology, 2005, 71(1):207-213.

[49]
VOGT M, HAAS S, KLAFFL S, et al. Pushing product formation to its limit:metabolic engineering of Corynebacterium glutamicum for L-leucine overproduction[J]. Metabolic Engineering, 2014,22:40-52.

[50]
GUO Y F, HAN M, YAN W L, et al. Generation of branched-chain amino acids resistant Corynebacterium glutamicum acetohydroxy acid synthase by site-directed mutagenesis[J]. Biotechnology and Bioprocess Engineering, 2014,19:456-467.

[51]
JEON A J, SONG B C, LEE J H, et al. Acetohydroxy acid synthase variant,microorganism comprising the same,and method of producing L-branched-chain amino acid using the same:US-2021040457-A1[P].2017-07-11.

[52]
BLOMBACH B, SCHREINER M E, HOLÁTKO J, et al. L-valine production with pyruvate dehydrogenase complex-deficient Corynebacterium glutamicum[J]. Applied and Environmental Microbiology, 2007, 73(7):2079-2084.

[53]
BLOMBACH B, SCHREINER M E, BARTEK T, et al. Corynebacterium glutamicum tailored for high-yield L-valine production[J]. Applied Microbiology and Biotechnology, 2008, 79(3):471-479.

[54]
WANG Y Y, SHI K, CHEN P D, et al. Rational modification of the carbon metabolism of Corynebacterium glutamicum to enhance L-leucine production[J]. Journal of Industrial Microbiology & Biotechnology, 2020, 47(6/7):485-495.

[55]
LANGE C, MUSTAFI N, FRUNZKE J, et al. Lrp of Corynebacterium glutamicum controls expression of the brnFE operon encoding the export system for L-methionine and branched-chain amino acids[J]. Journal of Biotechnology, 2012, 158(4):231-241.

[56]
PARK J H, LEE K H, KIM T Y, et al. Metabolic engineering of Escherichia coli for the production of L-valine based on transcriptome analysis and in silico gene knockout simulation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2007, 104(19):7797-7802.

[57]
CHEN C, LI Y Y, HU J Y, et al. Metabolic engineering of Corynebacterium glutamicum ATCC13869 for L-valine production[J]. Metabolic Engineering, 2015,29:66-75.

[58]
SUN X, LI Q G, WANG Y, et al. Isoleucyl-tRNA synthetase mutant based whole-cell biosensor for high-throughput selection of isoleucine overproducers[J]. Biosensors & Bioelectronics, 2021,172:112783.

[59]
SINGH S, SHARMA M P, ALQARAWI A A. Real-time optical detection of isoleucine in living cells through a genetically-encoded nanosensor[J]. Sensors, 2020, 20(1):146.

[60]
TRAKHANOV S, VYAS N K, LUECKE H, et al. Ligand-free and-bound structures of the binding protein (LivJ) of the Escherichia coli ABC leucine/isoleucine/valine transport system:trajectory and dynamics of the interdomain rotation and ligand specificity[J]. Biochemistry, 2005, 44(17):6597-6608.

[61]
HAO Y N, PAN X W, XING R F, et al. High-level production of L-valine in Escherichia coli using multi-modular engineering[J]. Bioresource Technology, 2022,359:127461.

[62]
KABUS A, GEORGI T, WENDISCH V F, et al. Expression of the Escherichia coli pntAB genes encoding a membrane-bound transhydrogenase in Corynebacterium glutamicum improves L-lysine formation[J]. Applied Microbiology and Biotechnology, 2007, 75(1):47-53. (in Chinese)

[63]
YIN L H, HU X Q, XU D Q, et al. Co-expression of feedback-resistant threonine dehydratase and acetohydroxy acid synthase increase L-isoleucine production in Corynebacterium glutamicum[J]. Metabolic Engineering, 2012, 14(5):542-550.

[64]
YIN L H, ZHAO J X, CHEN C, et al. Enhancing the carbon flux and NADPH supply to increase L-isoleucine production in Corynebacterium glutamicum[J]. Biotechnology and Bioprocess Engineering, 2014,19:132-142.

[65]
SHI F, LI K, HUAN X J, et al. Expression of NAD(H) kinase and glucose-6-phosphate dehydrogenase improve NADPH supply and L-isoleucine biosynthesis in Corynebacterium glutamicum ssp. lactofermentum[J]. Applied Biochemistry and Biotechnology, 2013,171:504-521.

文章导航

/