综述

纤维素降解菌及纤维素酶的研究进展及其在畜牧业中的应用

  • 周明月 , 1, 2 ,
  • 吴庆宇 3 ,
  • 曹阳 , 1, 2, 4, *
展开
  • 1 黑龙江八一农垦大学动物科技学院,大庆 163319
  • 2 粮食副产物加工与利用教育部工程研究中心,大庆 163319
  • 3 黑龙江省农业经济职业学院动物科学系,牡丹江 157401
  • 4 黑龙江省寒区饲料资源高效利用与营养调控重点实验室,大庆 163319
* 曹 阳,教授,博士生导师,E-mail:

周明月(2002—),女,河南周口人,硕士研究生,研究方向为饲料资源开发与利用。E-mail:

Copy editor: 武海龙

收稿日期: 2024-07-26

  网络出版日期: 2025-01-10

基金资助

黑龙江省双一流特色学科平台项目(HLJ2022TSXK)

国家自然科学基金项目(32171676)

黑龙江省“百千万”工程科研重大专项(2021ZX12B03)

Research Progress on Cellulose-Degrading Bacteria and Cellulases and Their Application in Animal Husbandry

  • ZHOU Mingyue , 1, 2 ,
  • WU Qingyu 3 ,
  • CAO Yang , 1, 2, 4, *
Expand
  • 1 College of Animal Science and Veterinary Medicine, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 Engineering Research Center of Processing and Utilization of Grain By-Products, Ministry of Education, Daqing 163319, China
  • 3 Department of Animal Science, Heilongjiang Vocational College of Agricultural Economics, Mudanjiang 157401, China
  • 4 Heilongjiang Provincial Key Laboratory of Efficient Utilization of Feed Resources and Nutrition Manipulation in Cold Region, Daqing 163319, China
* professor, E-mail:

Received date: 2024-07-26

  Online published: 2025-01-10

摘要

我国是农业大国,秸秆资源丰富,但秸秆中难以降解的纤维素成分含量高。生物法处理是纤维素降解利用的一种有效、环保及安全的处理方式,其利用具有纤维素降解功能的微生物通过产生胞外酶,将纤维素转化为易吸收的碳水化合物,从而提高秸秆消化率。本文概述了纤维素降解菌的分类、纤维素酶的分类与作用机制及其在秸秆等粗饲料资源开发中的应用和优化培养,进而促进粗饲料资源的开发与高效利用,为草食家畜养殖业降本增效和可持续健康发展提供参考。

本文引用格式

周明月 , 吴庆宇 , 曹阳 . 纤维素降解菌及纤维素酶的研究进展及其在畜牧业中的应用[J]. 动物营养学报, 2025 , 37(1) : 133 -145 . DOI: 10.12418/CJAN2025.012

Abstract

China is a large agricultural country with abundant straw resources, but the content of cellulose, which is difficult to be degraded, is high in straw. Biological treatment is an effective, environmentally friendly and safe treatment for cellulose degradation and utilization, which utilizes microorganisms with cellulose-degrading functions to convert cellulose into easily absorbed carbohydrates through the production of extracellular enzymes, thus improving the digestibility of straw. This paper outlines the classification of cellulose-degrading bacteria, the classification and mechanism of action of cellulase, and their application and optimal cultivation in the development of straw and other roughage resources, in order to provide a reference for the study of cellulose-degrading microorganisms, which in turn can promote the development and efficient utilization of roughage resources, and provide a reference for the reduction of cost and increase of efficiency and sustainable and healthy development of herbivorous livestock farming.

我国为农业大国,秸秆资源丰富,约占全球秸秆资源总量的1/5。2022年秸秆理论资源为9.77亿t[1]。根据《2022年中国秸秆理论资源量、综合利用量、市场规模及发展方向分析》显示,2022年全国秸秆综合利用量约为6.62亿t,饲料使用1.34亿t,饲料利用率仅占20.2%[2]。近年来,随着“粮改饲”政策的推进,我国饲草作物的种植也正在加快进行[3],然而,随着国家经济的不断增长和人民生活水平的提高,畜牧业的发展速度迅速,对饲草的需求也随之增长,因此我国的商品饲草自给率始终无法提升。如果单纯依靠从海外进口牛羊肉产品,可能面临诸多风险。这些进口产品往往会引入传染病的隐患,同时也会在国际贸易中被他国牵制,从而带来战略上的安全问题[4]。因此,采取措施自给自足,利用农作物秸秆进行合理调制加工,将其转化为牛、羊的优质饲料,既能在一定范围缓解牛、羊优质饲草短缺的问题,又能实现秸秆资源高值化利用[5],既节约了成本又提升了经济效益。
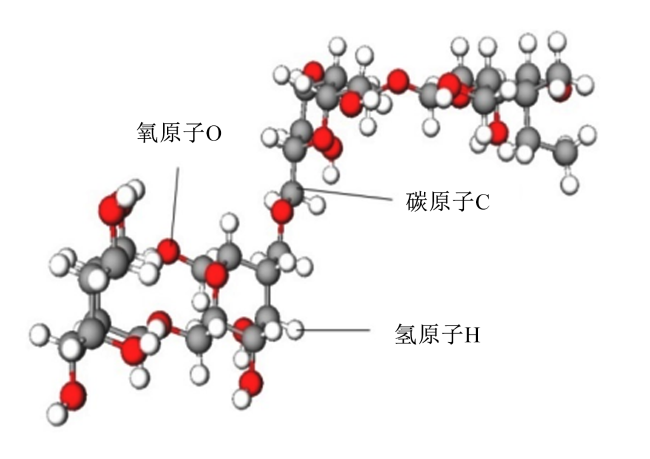
作为农作物收获完粮食籽粒后的副产品,秸秆主要由茎、叶等构成。其中,纤维素、半纤维素和木质素分别占据化学组成的25%~50%、10%~30%和10%~30%[6]。纤维素、木质素和半纤维素这3种重要组分相互作用、相互交织[7],构成了复杂的木质纤维素结构(图1),为植物提供了坚固而有弹性的支撑框架,这增加了细胞壁的结构稳定性,使其降解难度大大增加,进而限制了纤维素的饲料利用。纤维素是由葡萄糖分子以β-1,4糖苷键连接而成的大分子多糖[8],呈现独特的结构特征(图2),其具有紧密有序的排列结构和表现出的高度结晶性,使得纤维素在自然状态下溶解性相对较低。这在一定程度上限制了纤维素作为饲料原料、生物材料和工业原料等多种用途的应用潜力,为优化这一状况,科研人员正在积极研究各种方法来提升纤维素的降解效率,从而提高其利用价值。
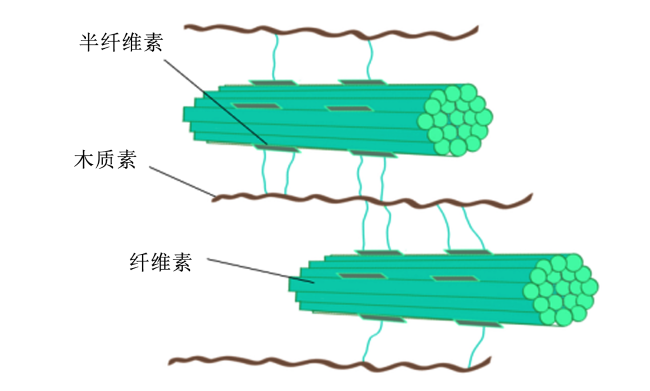
图1 秸秆中木质纤维结构图

Fig.1 Structure of wood fibers in straw

图2 纤维素分子结构模型

Fig.2 Model of cellulose molecular structure

随着全球绿色发展趋势的加强,生物法预处理秸秆纤维素因其环境友好性而日益受到研究者的青睐和关注[9]。生物法是利用微生物分泌的酶,破坏木质纤维素的理化结构[10],分解秸秆中的大分子碳水化合物[11-12],将其转化为单糖或多糖等易吸收的小分子物质[13]。生物法能促进秸秆纤维素的降解,从而进一步改变秸秆纤维素的化学结构和物理特性,而且生物法无化学试剂添加,对环境无污染,是秸秆纤维素降解利用的一种有效的预处理方式[14]。因此,通过添加外源秸秆纤维素降解菌,可以有效实现秸秆的高效降解。
本文概述了纤维素降解菌的分类,重点叙述了其作用机制、优化培养、基因工程菌构建及其在畜牧业中的应用等,为研究纤维素降解微生物提供了参考,进而促进秸秆饲料在畜牧业中的发展。

1 纤维素降解菌的分类

1.1 真菌

大量研究表明,真菌以其独特的生物学特征,在降解纤维素方面表现出了显著的优势。真菌是一种能分解有机物尤其是木质纤维素的微生物[15]。大部分可降解纤维素的真菌在生长过程中会形成机械强度高且具有很强穿透力的菌丝,这种菌丝能突破植物细胞壁纤维素屏障,紧密附着并穿插于纤维物质中[16],这不仅提高了纤维素酶对纤维素的分解效率,还增强了酶在复杂基质中的可及性,从而更有效地发挥其生物降解功能。此外,真菌还展现出了对酸性环境的强大适应能力,在酸性环境下,真菌在生长过程中会不断地合成和释放大量的纤维素酶,这些酶属于胞外酶[17],便于从培养基中分离和纯化酶液[18]
研究表明,二战期间从腐烂的装备上分离出的里氏木霉(Trichoderma reesei)具有强大的纤维素降解功能,后经过多次选育诱变,成为工业生产纤维素酶历史最久的菌株之一[19-20]。当前学术研究关注于木质纤维素降解的真菌主要包括白腐真菌属(Phanerochaete)、木霉属(Trichoderma)、青霉属(Penicillium)、毛壳霉属(Chaetomium)等[21]。Sánchez[22]研究表明,软腐真菌不但能够分解被子植物的木质素,还能够分解植物的次级细胞壁,使纤维素和半纤维素发生降解。苏玉春等[23]分离出一株毛头鬼伞菌(Coprinus comatus),该菌可使玉米秸秆的失重率达到23.65%,可有效降解秸秆中纤维素、半纤维素、木质素等。赵雪莉[24]添加白腐真菌对玉米秸秆进行黄贮处理后饲喂绵羊,结果表明,与对照组相比,添加白腐菌不仅提高了绵羊日增重,还提高了血液中甘油三酯(triacylglycerol,TG)、总蛋白(total protein,TP)和白蛋白(albumin,ALB)含量,背最长肌及半膜肌中氧化型肌纤维组成比例也有所升高,且提升了肉品质。
综上所述,真菌通过其高效的菌丝结构、耐酸环境产生的胞外酶以及适应性强的生物学特征,在降解纤维素方面展现了极佳的效果。随着研究的不断深入,有望进一步筛选出更具实用价值的真菌。

1.2 细菌

相较于真菌,细菌因代谢周期短[25],对温度、pH等的耐受范围广,易于培养,来源广泛,对环境压力有较大的弹性等优势成功进入大众的视野[26-27]。这些特性使得细菌成为理想的纤维素降解微生物,被广泛的培养和应用。随着科研人员对细菌降解纤维素机制的深入研究,越来越多的具有木质纤维素潜力的细菌被分离并发现,自然界中能够有效降解纤维素的细菌种类繁多。其中,梭菌属(Clostridium)、芽孢杆菌属(Bacillus)是2种典型的纤维素降解菌属,它们在自然界中分布广泛,在维持生态平衡中起着重要作用。而高温单胞菌属(Thermomonospora)则属于极端环境下的微生物[28],它们能适应高温等苛刻条件,这使得它们在工业上有了更多的应用价值。González等[29]在造纸厂废水中筛选出了一种新的细菌属,发现其具有降解木质素和木质素类芳香单体的特点。Nong等[30]发现细菌类芽孢杆菌(Paenibacillus sp.)具有通过分解半纤维素低成本高效率生产生物乙醇的功能。Bugg等[31]报道,绿孢链霉菌(Stretomyces viridosporus)T7A、诺卡菌属(Nocatdia)和红球菌属(Rhodococcus)能够降解木质素。刘梦洁等[32]用植物乳杆菌(Lactobacillus plantarum)、纤维素酶及两者复合形式分别对普通玉米秸秆及碱化秸秆进行黄贮发酵处理,结果发现复合菌剂处理碱化秸秆黄贮可改善其消化率与适口性。
综上所述,这些纤维素降解细菌不仅提供了新的微生物资源,也为保护自然资源以及实现可持续发展目标提供了新的思路。

1.3 放线菌

由于纤维素独特的结构特性,细菌在利用这一不溶性物质作为碳源时,需要依赖其分泌的胞外酶将纤维素转化为更易溶解的单糖或双糖。而丝状真菌在生长过程中,其菌丝具备侵入宿主细胞并产生纤维素酶的能力,这使得它们在降解纤维素方面相较于细菌展现出更为优越的效果。
放线菌对环境条件的适应性较强[33],它们能够适应极端的环境条件;此外,放线菌的代谢活动也表现出很高的适应性,它们可以在较大的pH范围内生长和活动。尽管放线菌对恶劣条件的耐受性强,但相比于一些细菌和真菌,放线菌的生长速度较慢,处理效率较低,对营养物质的需求较高,需要提供适当的培养基条件才能有效工作。放线菌分泌的胞外酶在碱性条件下依然保持较高的活性。张运晖等[34]从玉米秸秆还田土壤中筛选到一株纤维素降解放线菌SJS-15,为纤维素链霉菌(Streptomyces cellulosae),试验表明加入菌株SJS-15,在40 d时对玉米秸秆降解率为35.6%,对滤纸降解率为18.6%。曹慧等[35]成功从土壤中筛选得到一株可降解纤维素的放线菌,鉴定并命名为钉斑链霉菌(Streptomyces clavifer)LD-19,该菌株在30~70 ℃和pH 4~10内酶活力稳定。

2 纤维素酶的种类和协同作用机制

2.1 纤维素酶的种类

生物法预处理是一种高效环保的技术,它通过利用各种真菌和细菌产的一系列酶协同作用于木质纤维素,将其从难以分解的碳水化合物分解为更容易处理和利用的低分子化合物,这些低分子化合物经过发酵进一步转化为各种不同的生化聚合物。由于底物的不溶性,细菌和真菌的降解都必须发生在细胞外,大多数与细胞外膜有关[36]
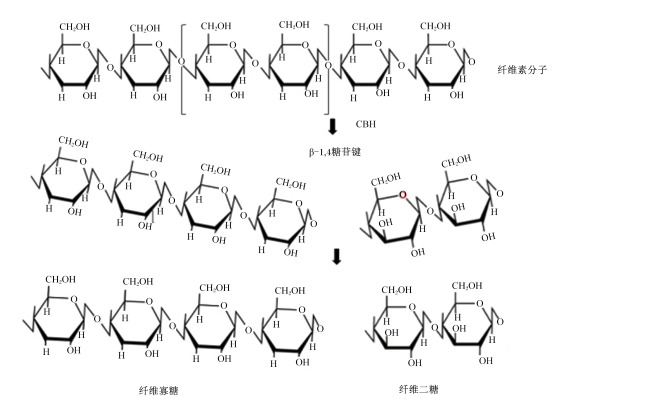
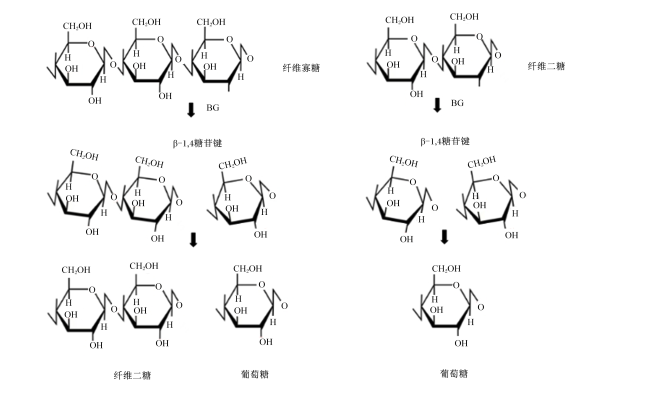
纤维素酶即为拥有降解纤维素功能的酶。这些酶通过水解纤维素来释放葡萄糖等能量物质,从而在生物体内起到至关重要的作用。它们并不是单一酶,而是一个更为复杂的体系,有多个不同的酶协同工作,以达到分解纤维素的目的。所有能够利用晶体纤维素的微生物,无论能力如何,都能产生纤维素酶。这些酶各自具有独特的特性和作用机制。研究表明,纤维素酶主要包括3种作用各不相同的酶组分[37]:1)内切葡聚糖酶[38]。它在纤维素酶分子内部,可以自由断裂β-1,4糖苷键,从而实现长链纤维素分子的有效截断。它作用不仅限于那些已经溶解的纤维素衍生物,同时也适用于那些尚未完全降解或已经膨胀的纤维物质,但不能作用于结构紧密的结晶纤维素。当其断裂长链纤维素分子时,主要产物是纤维素寡糖、纤维二糖等[39](图3)。2)外切葡聚糖酶。它可以按照次序从纤维分子的非还原端逐渐断裂β-1,4糖苷键,在这个过程中,释放出纤维二糖分子;同时,在纤维素分子的末端水解β-1,4糖苷键的过程中,每次作用都会导致一个纤维二糖单位被切除,因此也被广泛地称为纤维二糖水解酶(cellobiohydrolases,CBH)(图4)。3)β-葡萄糖苷酶。它能够将纤维二糖及其他一些低分子质量的纤维糊精转化为葡萄糖(图5),这是一种至关重要的酶,因为葡萄糖是细胞能量的主要来源之一,同时也是维持血糖水平稳定的关键物质。
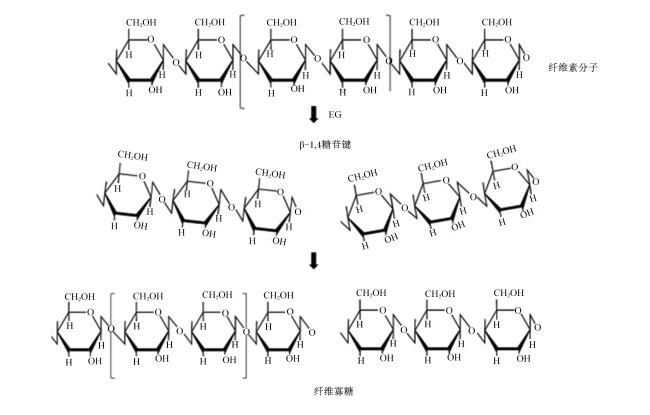
图3 纤维素内切葡聚糖酶的作用机制

EG:内切葡聚糖酶 endoglucanase。

Fig.3 Mechanism of action of cellulose endoglucanase

图4 纤维素外切葡聚糖酶的作用机制

CBH:纤维二糖水解酶 cellobiohydrolases。

Fig.4 Mechanism of action of cellulose exoglucanase

图5 纤维素β-葡萄糖苷酶的作用机制

BG:β-葡萄糖苷酶 β-glucosidase。

Fig.5 Mechanism of action of cellulose β-glucosidase

2.2 纤维素酶系内的协同作用

在纤维素降解过程中,纤维素酶展现出协同增效作用[40]。目前广泛认可的纤维素酶系降解机制为:当与纤维表面接触时,EG便开始激活纤维内的特定位点,导致纤维素长链中的部分区域断裂,这些断裂的片段从纤维素分子末端被释放出来,形成游离结构,从而使得纤维素易于水化;CBH则针对在EG作用下被激活的纤维素,分解其中的β-1,4键,生成短链低聚糖,这些低聚糖结构更加容易被水解酶类分解;BG作为另一类重要的水解酶与其他水解酶共同协作,它们能够将短链低聚糖如纤维二糖、三糖等高效地转化为葡萄糖[41](图6)。这一系列的酶促反应不仅提高了纤维素转化成葡萄糖的效率,也为生物燃料和其他工业应用提供了丰富的原料。这种多酶协同作用的机制,使得纤维素的降解和转化成为可能,对于农业生产、环境保护以及人类健康等方面都具有深远的意义。
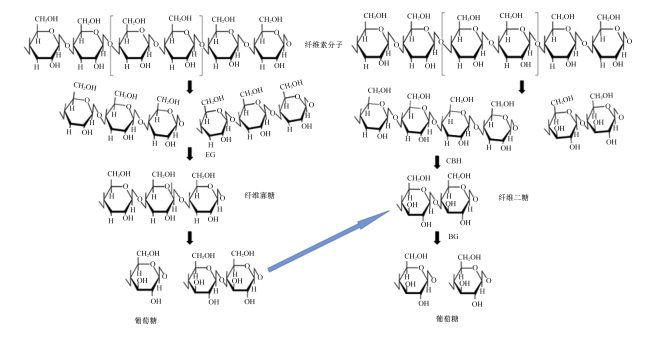
图6 纤维素酶组分协同降解纤维素的作用机制

EG:内切葡聚糖酶 endoglucanase;CBH:纤维二糖水解酶 cellobiohydrolases;BG:β-葡萄糖苷酶 β-glucosidase。

Fig.6 Mechanism of action of cellulase component co-degradation of cellulose

图7为经过纤维素降解菌CF12处理后的玉米秸秆表面,对照组中玉米秸秆结构完整紧密,表面相对光滑,边缘完整无破损。处理后的玉米秸秆结构略有松散,边缘有明显锯齿状破损,表面起皱,呈现多孔破损状态,此现象说明秸纤维素降解菌进入降解阶段,产生的纤维素酶破坏了秸秆纤维素三维结构,增加了纤维与菌群及各种酶的接触面积,更有利于菌群发挥作用。
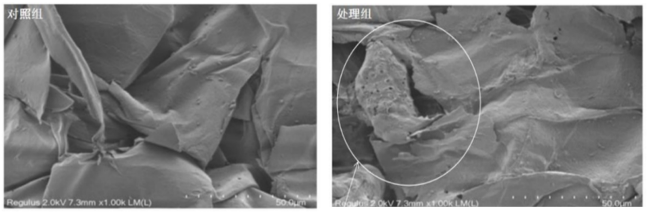
图7 生物法处理玉米秸秆电镜扫描对比图

Fig.7 Comparison of electron microscope scans of biologically treated corn stover

通过了解纤维素酶的多样性和作用机制,未来会开发出新的策略有效精准调控各类纤维素酶的活性及其相互作用,同时提升其生产效率,使纤维素酶在粗饲料生产中具有广泛的应用价值。

2.3 纤维素降解菌群体感应(quorum sensing,QS)系统

QS是一种在细菌群体中广泛存在的通讯机制,通过这种机制,微生物群体可以实现微生物个体无法完成的生理功能或行为调节,例如生物膜形成、毒素分泌和生物发光等,以增强对外界胁迫环境的适应性[42]。目前已有研究基于产信号分子的检测,发现青贮饲料中微生物具有QS现象,即以自体诱导物-2(autoinducer-2,AI-2)为信号分子、LuxS基因为调节蛋白质介导的LuxS/AI-2 QS[43]。研究进一步揭示了在生物法降解秸秆纤维素过程中,乳酸菌在QS方面具有多种相关的生理特性,如合成细菌素、生物膜形成以及耐酸耐胆盐等[44];在酸性胁迫的情况下,乳酸菌利用QS中的LuxS/AI-2机制,增加LuxS基因的转录水平,加强AI-2信号分子的效能,这种机制使得乳酸菌对酸的耐受性增强,使其更适应酸性环境[45],因此,即便在酸性环境下,乳酸菌仍然能稳定存在并持续发挥作用,展现出它们在自然界中生存和繁殖的高效性和灵活性。随着科技的进步和研究的深入,瘤胃微生物QS研究受到越来越多的关注,研究深度和广度也在不断扩展。目前已证实AI-2介导的QS于瘤胃微生物中广泛存在,而瘤胃中以纤维素降解菌为优势菌,多个瘤胃微生物菌属中均检测到LuxS基因序列,包括许多裂解菌和饲料颗粒上生物膜内的微生物[46],这一发现极大地推动了研究者们对其生物学意义的探索。
近年来,纤维素降解菌的生理生化特性和降解能机制得到了广泛研究,但大多数研究集中在单菌的培养条件优化上。基于以上对于瘤胃微生物以及乳酸菌QS的研究,我们猜想QS作为一种基于信号分子的细菌通信机制,在青贮过程中对于纤维素的降解也具有重要作用,当细胞密度较高时,自诱导剂浓度达到阈值水平,就会诱导QS信号系统的激活,当系统一旦激活,就会引起细菌修改自身基因的表达模式,以响应环境条件的变化,包括抑菌、耐酸、耐盐、温度、pH以及渗透压的变化,这可以使纤维素降解菌在青贮过程中随环境的变化自适应,充分在青贮过程中发挥作用[47]。进一步地,在深入剖析瘤胃微生物QS机制与高效产生AI-2信号分子乳酸菌的筛选工作基础上,可以创造性地融合传统纤维素降解菌的筛选策略与AI-2高产乳酸菌的筛选方法。这一综合策略旨在瘤胃环境中识别并筛选出具备高产AI-2信号分子能力的纤维素降解菌。随后,通过添加试验,深入探究LuxS/AI-2 QS系统如何调控这些筛选出的菌株在青贮粗饲料发酵过程中对纤维素的降解效率。这一过程不仅丰富了对瘤胃微生物互作机制的理解,也为优化青贮饲料发酵工艺、提升饲料品质提供了科学依据。

3 纤维素降解菌的优化培养

在追求更高效、更环保的饲料转化过程中,纤维素降解菌的优化培养显得尤为关键。科研人员运用响应面法等,针对这些菌种的生长特性和代谢途径,精准调控培养条件,包括选择适宜的培养基配方、调整培养温度、pH等,以最大化菌株性能,构建高效产酶环境。孙旭东等[47]通过正交试验法优化纤维素降解菌的产酶发酵条件,结果发现,当温度为32 ℃、pH为6.5、接种量为4%培养24 h时,纤维素酶活力达到最高值72.91 U/mL。白长胜等[48]通过单因素试验优化了芽孢杆菌HXS-LV12的产纤维素酶条件,发现当接种量为6.5%、发酵温度33 ℃和pH 7.0条件下培养24 h时,HXS-LV12产纤维素酶活力达到(40.53±0.43) U/mL,是优化前的2倍左右。Senthivelan等[49]则深入探讨了从产黄青霉(Penicillium chrysogenum)真菌中筛选和生产漆酶的过程,通过精确控制培养条件和发酵参数,实现了漆酶在产量上的显著提升,最终产量提升至7.9 U/mL,相比传统工艺增加了31.7%。这些研究结果为优化纤维素降解过程提供了关键的参数指导。

4 基因工程菌构建

4.1 基因工程菌构建技术

随着分子生物技术发展,科研人员正通过基因工程精细操作特定基因,克隆并异源表达纤维素酶基因,并对所得重组菌进行详细的检测与鉴定,这既增强了菌株产酶效率,又确保重组菌的高效安全[50-51]。目前,已经公布了数千种纤维素酶基因序列及其相应的氨基酸序列[52]。细菌、真菌、放线菌都可产纤维素酶,但细菌分泌的纤维素酶种类相对较少,且产量有限。相比之下,真菌则展现出了更强的纤维素酶合成能力,一些真菌种类不仅能够高效地分泌纤维素酶,而且其酶系组成完整,并且通常为胞外酶,来源广泛[53],其中,木霉属不仅不会产生有害毒素,而且在产酶方面表现出极高的效率,因此木霉属基因成为研究热点[54]。目前,针对里氏木霉,研究者们已经取得了显著进展,成功地克隆了一系列重要的酶基因,并且转化至大肠杆菌得到了表达。通过将这些酶基因转化到大肠杆菌等微生物中并进行表达,从而促进了对相关生物学过程的更深入了解。随着越来越多的关于纤维素酶基因的信息被公开,未来可能会有更多的突破出现,从而推动整个生物技术行业的发展。

4.2 纤维素酶基因的表达系统

在生物技术领域,编码基因的表达系统主要分为两大类:原核(prokaryotic)表达系统和真核(eukaryotic)表达系统。原核表达系统是指那些在细胞内没有核膜和核仁结构的系统,其中最常见的是细菌,而大肠杆菌便是一种典型的原核载体。目前发现的几乎所有编码纤维素酶的基因都可以在大肠杆菌中进行异源表达,这一点对于利用大肠杆菌作为载体进行纤维素酶基因工程改造具有重大意义。Amore等[55]从链霉菌科(Streptomycetaceae)G12中鉴定出2种产纤维素酶的内切葡聚糖酶,他们将其中一种酶的基因编码命名为CelStrep,并将大肠杆菌作为载体,将基因序列进行了异源重组表达,经过严格的筛选和验证程序后,结果表明,CelStrep催化了甲基纤维素的水解,并且在40 ℃下96 h后仍保留约80%的活性,表现出良好的耐热性。Yang等[56]在研究中发现了嗜热厌氧杆菌产生β-葡萄糖苷酶,对编码β-葡萄糖苷酶的基因进行了克隆和测序,并将其克隆到大肠杆菌载体pGro7中,结果显示,这一操作显著提高了酶活性,使其达到256.3 U/mg,相较于未将β-葡萄糖苷酶基因导入大肠杆菌载体表达前获得的酶活性增加了9.2倍。
真核表达系统以其独特的优势逐渐成为了外源基因表达的首选平台。与原核表达系统相比,真核表达系统提供了更多的可调控性,针对原核表达系统的无法特定翻译后进行修饰的缺点,真核表达系统较恰恰能够解决这个限制,真核表达系统已经开始逐渐应用于外源基因的表达,为了生产出具有潜在生物活性的真核生物蛋白,其中以酵母菌的真核表达系统应用最为广泛[57-58]。酵母表达系统展现了其强大的转化潜力,它可以将纤维素的最终分解产物葡萄糖转化为酒精,进一步地,通过将纤维素酶系的基因克隆到酵母表达系统中,可以实现一个完整的纤维素转化过程:首先,纤维素被分解成为葡萄糖,随后再利用酵母表达系统再将葡萄糖转化为酒精。从而,酵母不仅能够利用葡萄糖作为能量来源,同时也能发挥其天然纤维素降解的能力。这样的结合使得整个转化过程变得更加高效,而且能够实现对纤维素资源的深度开发与利用,对于环境保护和可持续发展具有重要意义,因此成为纤维素酶基因工程发展的一个重要方向[59]。Zhang等[60]成功将来源于枯草芽孢杆菌(Bacillus subtilis)的纤维素酶基因PEL168转移到毕赤酵母(Pichia pastoris)中,并使PEL168在毕赤酵母中的表达增加了1.5倍,实现了原核细菌基因在酵母菌中的表达。
综上所述,真核表达系统凭借其先进的特性和灵活性,正在日益成为纤维素酶基因工程研究中不可或缺的一个关键工具。随着科学技术的不断进步和应用范围的扩大,真核表达系统有望在未来发挥出更大的作用,为人类社会带来更加丰富多样的生物技术产品。

5 纤维素降解菌在畜牧业中的应用

5.1 纤维素降解菌在青贮秸秆中的应用

在现代畜牧业中,青贮饲料的制作和应用成为了提高动物生长效率的关键。通常在青贮饲料中加入特定的纤维素降解菌株,这些菌株在适宜的厌氧环境下发挥作用,进行发酵过程。青贮发酵过程涉及真菌、细菌或其微生物混合菌种联合发酵,共同参与纤维素的分解工作,由于纤维素是一种难以被胃肠道直接消化的多糖,这些纤维素降解菌的加入,使得秸秆等原料中的纤维素成分得以逐渐降解,更易于动物的消化系统吸收利用[61]
张凡凡[62]研究发现,青贮玉米中添加纤维素降解菌与异质型乳酸菌在瘤胃中进行复合发酵72 h后,与对照组相比,添加纤维素降解菌与异质型乳酸菌不仅可以提高青贮玉米在瘤胃中的酸性洗涤纤维降解率(ADFD),也可以提高有机物降解率(OMD),且通过主成分分析法分析发现对青贮玉米的品质和饲用价值也均有明显改善。买尔哈巴·艾合买提[63]在青贮玉米秸秆中添加乳酸菌和纤维素降解菌共同发酵,结果表明,玉米秸秆青贮饲料的pH显著降低,同时提高了干物质(DM)和粗蛋白质(CP)含量,且使中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量分别下降了30.5%和19.6%,半纤维素含量下降了50%。Azzaz等[64]研究表明,在埃及泌乳水牛饲粮中加入青霉纤维素酶后,不仅可以提高水牛的粗蛋白质降解率(CPD),还可以提高水牛的中性洗涤纤维降解率(NDFD)和ADFD,水牛的日产奶量(DY)以及4%乳脂校正日奶量(FCM)也均有所增加。

5.2 纤维素酶制剂在黄贮秸秆中的应用

黄贮秸秆,又称微贮秸秆,是通过微生物发酵技术在密闭条件下将秸秆转化为口感佳、气味酸香、柔软多汁的优质粗饲料。由于黄贮秸秆中可溶性糖含量相对较低,为了确保有效的发酵过程和良好的营养转化,因此需额外添加能够分解纤维素的特定微生物或酶制剂,以确保发酵过程中有足够的碳源生成乳酸,进而将pH降至有利于乳酸菌生长的水平,即抑菌水平。徐晓东等[65]深入探讨了在玉米秸秆黄贮过程中添加复合菌酶制剂的效果,研究发现,添加复合菌酶制剂显著提升了黄贮发酵品质,使其达到了优质发酵的标准,具体而言,经过复合菌酶制剂处理的玉米秸秆,相比于对照组的产品,其NDF含量降低了23.4%,ADF含量也下降了20.13%,酸性洗涤木质素(ADL)含量则减少了7.68%。这些数据清晰地展示了复合菌酶制剂在改善玉米秸秆黄贮发酵品质方面的显著效果,为农业废弃物资源化利用提供了重要的科学依据。

6 小结与展望

随着人们生活水平的提高以及饮食习惯的多元化,畜产品的需求量随之增加,这促使了畜禽养殖量增大,从而迫切需求低成本高品质饲料原料。然而目前秸秆转化技术在高值化利用方面尚不成熟,秸秆纤维素的环保化降解与高值化利用需要突破技术瓶颈,提高转化效率和创新研发。因此,筛选高效安全的纤维素降解菌株、通过纤维素酶基因改造构建高效菌株、木质纤维素高效降解影响因素的QS系统等方面的研究将成为热点,从而推动秸秆综合利用的产业化发展。
[1]
刘俊杰, 严晓斌, 张美怡, 等. 中国农作物秸秆资源产量分布及利用分析[J/OL]. 农业资源与环境学报:1-13.(2024-06-17)[2024-07-01].https://doi.org/10.13254/j.jare.2024.0184.

LIU J J, YAN X B, ZHANG M Y, et al. Analysis of production distribution and utilisation of crop stover resources in China[J]. Journal of Agricultural Resources and Environment:1-13.(2024-06-17)[2024-07-01].https://doi.org/10.13254/j.jare.2024.0184. (in Chinese)

[2]
杨伟. 2022年中国秸秆理论资源量、综合利用量、市场规模及发展方向分析[EB/OL].(2023-03-16)[2024-07-10]. https://m.chyxx.com/industry/1138822.html.

YANG W. Analysis of theoretical resource volume,comprehensive utilisation volume,market size and development direction of straw in China,2022[EB/OL].(2023-03-16)[2024-07-10]. https://m.chyxx.com/industry/1138822.html. (in Chinese)

[3]
梁运祥, 胡宝娥, 陈宏声, 等. 利用生物技术,加快秸秆"高值饲料化"转化,促进草食畜牧业发展[J]. 饲料工业, 2022, 43(12):1-9.

LIANG Y X, HU B E, CHEN H S, et al. Development of herbivore industry by speeding up feed conversion of crop straw with biotechnology[J]. Feed Industry, 2022, 43(12):1-9. (in Chinese)

[4]
ZHAO Q, HU P, LI Q Q, et al. Prevalence and transmission characteristics of listeria species from ruminants in farm and slaughtering environments in China[J]. Emerging Microbes & Infections, 2021, 10(1):356-364.

[5]
CANTERO D A, BERMEJO M D, COCERO M J. Kinetic analysis of cellulose depolymerization reactions in near critical water[J]. The Journal of Supercritical Fluids, 2013,75:48-57.

[6]
CORREDOR D Y, BEAN S, WANG D. Pretreatment and enzymatic hydrolysis of sorghum bran[J]. Cereal Chemistry, 2007, 84(1):61-66.

[7]
GUO M, CHEN J W, LI Q F, et al. Dynamics of gut microbiome in giant panda cubs reveal transitional microbes and pathways in early life[J]. Frontiers in Microbiology, 2018,9:3138.

[8]
YU N N, KETYA W, CHOI E H, et al. Plasma promotes fungal cellulase production by regulating the levels of intracellular NO and Ca2+[J]. International Journal of Molecular Sciences, 2022, 23(12):6668.

[9]
ROY K, DEBNATH S C, PONGWISUTHIRUCHTE A, et al. Recent advances of natural fibers based green rubber composites:properties,current status,and future perspectives[J]. Journal of Applied Polymer Science, 2021, 138(35):50866.

[10]
SHRESTHA S, FONOLL X, KHANAL S K, et al. Biological strategies for enhanced hydrolysis of lignocellulosic biomass during anaerobic digestion:current status and future perspectives[J]. Bioresource Technology, 2017,245:1245-1257.

[11]
ZHAO X, LI J, CHE Z X, et al. Succession of the bacterial communities and functional characteristics in sheep manure composting[J]. Biology-Basel, 2022, 11(8):1181.

[12]
VAN KUIJK S J A, SONNENBERG A S M, BAARS J J P, et al. Fungal treated lignocellulosic biomass as ruminant feed ingredient:a review[J]. Biotechnology Advances, 2015, 33(1):191-202.

[13]
SU H F, XIAO Z L, YU K F, et al. High diversity of β-glucosidase-producing bacteria and their genes associated with Scleractinian corals[J]. International Journal of Molecular Sciences, 2021, 22(7):3523.

[14]
HOU J J, ZHANG X T, ZHANG S D, et al. Enhancement of bioethanol production by a waste biomass-based adsorbent from enzymatic hydrolysis[J]. Journal of Cleaner Production, 2021,291:125933.

[15]
YIN Y, YUAN Y, ZHANG X, et al. Comparison of the responses of soil fungal community to straw,inorganic fertilizer, and compost in a farmland in the loess plateau[J]. Microbiology Spectrum, 2022, 10(1):e02230-21.

[16]
ANTONOV E, SCHLEMBACH I, REGESTEIN L, et al. Process relevant screening of cellulolytic organisms for consolidated bioprocessing[J]. Biotechnology for Biofuels, 2017,10:106.

[17]
NKUNA R, IJOMA G N, MATAMBO T S. Applying EDTA in chelating excess metal ions to improve downstream DNA recovery from mine tailings for long-read amplicon sequencing of acidophilic fungi communities[J]. Journal of Fungi (Basel, Switzerland), 2022, 8(5):419.

[18]
BERTINI L, PERAZZOLLI M, PROIETTI S, et al. Biodiversity and bioprospecting of fungal endophytes from the Antarctic plant Colobanthus quitensis[J]. Journal of Fungi, 2022, 8(9):979.

[19]
QIAN Y C, ZHONG L X, HOU Y H, et al. Characterization and strain improvement of a hypercellulytic variant,Trichoderma reesei SN1,by genetic engineering for optimized cellulase production in biomass conversion improvement[J]. Frontiers in Microbiology, 2016,7:1349.

[20]
ZVERLOV V V, SCHWARZ W H. Bacterial cellulose hydrolysis in anaerobic environmental subsystems-Clostridium thermocellum and Clostridium stercorarium,thermophilic plant-fiber degraders[J]. Annals of the New York Academy of Sciences, 2008,1125:298-307.

[21]
NORDIN S, SAMSUDIN N A, ESAH E M, et al. Prevalence,identification and mycotoxigenic potential of fungi in common spices used in local Malaysian cuisines[J]. Foods, 2022, 11(17):2548.

[22]
SÁNCHEZ C. Lignocellulosic residues:biodegradation and bioconversion by fungi[J]. Biotechnology Advances, 2009, 27(2):185-194.

[23]
苏玉春, 李文斌, 汪树生, 等. 毛头鬼伞菌株降解玉米秸秆的效果[J]. 吉林农业大学学报, 2023, 45(1):22-29.

SU Y C, LI W B, WANG S S, et al. Effects of Coprinus comatus on degrading corn straw[J]. Journal of Jilin Agricultural University, 2023, 45(1):22-29. (in Chinese)

[24]
赵雪莉. 白腐真菌发酵对玉米秸秆纤维降解和绵羊饲喂价值的影响[D]. 硕士学位论文. 重庆: 西南大学, 2020.

ZHAO X L. The Effects of white rot fungus pretreatment on corn straw fiber degradation and feeding value of sheep[D]. Master’s Thesis. Chongqing: Southwest University, 2020. (in Chinese)

[25]
GAO Y, GUO M, WANG D, et al. Advances in extraction, purification, structural characteristics and biological activities of hemicelluloses:a review[J]. International Journal of Biological Macromolecules, 2023,225:467-483.

[26]
WAKSMAN G. Purification and characterization of two endo-β-1,4-D-glucanases from Sclerotinia sclerotiorum[J]. Biochimica et Biophysica Acta:General Subjects, 1991, 1073(1):49-55.

[27]
TENEA G N, ASCANTA P. Fortification of cocoa semi-skimmed milk formulations with native lactic acid bacteria:cell viability,physicochemical and functional properties for developing novel foods[J]. Frontiers in Nutrition, 2022,9:1008871.

[28]
ZHANG Y, YANG J, LUO L, et al. Low-cost cellulase-hemicellulase mixture secreted by Trichoderma harzianum EM0925 with complete saccharification efficacy of lignocellulose[J]. International Journal of Molecular Sciences, 2020, 21(2):371.

[29]
GONZÁLEZ J M, MORAN M A. Numerical dominance of a group of marine bacteria in the alpha-subclass of the class Proteobacteria in coastal seawater[J]. Applied and Environmental Microbiology, 1997, 63(11):4237-4242.

DOI PMID

[30]
NONG G, RICE J D, CHOW V, et al. Aldouronate utilization in Paenibacillus sp. strain JDR-2: physiological and enzymatic evidence for coupling of extracellular depolymerization and intracellular metabolism[J]. Applied and Environmental Microbiology, 2009, 75(13):4410-4418.

[31]
BUGG T D H, AHMAD M, HARDIMAN E M, et al. The emerging role for bacteria in lignin degradation and bio-product formation[J]. Current Opinion in Biotechnology, 2011, 22(3):394-400.

DOI PMID

[32]
刘梦洁, 尹清强, 常娟, 等. 植物乳杆菌和纤维素酶对玉米秸秆降解及糖化效果的影响[J]. 中国饲料, 2020(23):34-39.

LIU M J, YIN Q Q, CHANG J, et al. Effects of Lactobacillus plantarum and cellulase on the degradation and saccharification of corn straw[J]. China Feed, 2020(23):34-39. (in Chinese)

[33]
LEE Y J, KIM H J, CHUNG C H, et al. Optimization for production of carboxymethylcellulase by recombinant E.coli from Bacillus amyoliquefaciens DL-3 by orthogonal array method[J]. 한국생물공학회학술대회, 2008, 29(1):53-64. (in Chinese)

[34]
张运晖, 赵瑛, 张艳萍, 等. 一株玉米秸秆纤维素降解放线菌的筛选、鉴定及酶学特性研究[J]. 微生物学杂志, 2023, 43(3):52-59.

ZHANG Y H, ZHAO Y, ZHANG Y P, et al. Isolation,identification and enzymology characteristics of a corn stalk cellulose-degradable actinomycetes strain[J]. Journal of Microbiology, 2023, 43(3):52-59. (in Chinese)

[35]
曹慧, 任世威, 张腾月, 等. 青藏高原低温纤维素降解菌的筛选与酶学特性[J]. 饲料工业, 2021, 42(8):36-41.

CAO H, REN S W, ZHANG T Y, et al. Screening and enzymatic properties of cold-adapted cellulose degradation bacteria in the Qinghai-Tibet plateau[J]. Feed Industry, 2021, 42(8):36-41. (in Chinese)

[36]
李鑫, 李建勋, 王雨萌, 等. 木质纤维素的微生物法降解及其饲料化研究进展[J]. 饲料工业, 2024, 45(9):137-144.

LI X, LI J X, WANG Y M, et al. Research progress on biodegradation of straw and its feed conversion[J]. Feed Industry, 2024, 45(9):137-144. (in Chinese)

[37]
STALIN T, PRIYA B S, SELVAM K. Ecofriendly application of cellulase and xylanase producing marine Streptomyces clavuligerus as enhancer in biogas production from waste[J]. African Journal of Environmental Science and Technology, 2012, 6(6):258-262.

[38]
KAMESHWAR A K S, QIN W S. Metadata analysis of Phanerochaete chrysosporium gene expression data identified common CAZymes encoding gene expression profiles involved in cellulose and hemicellulose degradation[J]. International Journal of Biological Sciences, 2017, 13(1):85-99.

[39]
VIANNA B A, KIMIE Y D, AKIRA U S, et al. A thermostable Aspergillus fumigatus GH7 endoglucanase over-expressed in Pichia pastoris stimulates lignocellulosic biomass hydrolysis[J]. International Journal of Molecular Sciences, 2019, 20(9):2261.

[40]
LU Y C, HE Q, PENG Q, et al. Directional synthesis of furfural compounds from holocellulose catalyzed by sulfamic acid[J]. Cellulose, 2021, 28(13):8343-8354.

[41]
LEE F H, WAN S Y, FOO H L, et al. Comparative study of extracellular proteolytic,cellulolytic,and hemicellulolytic enzyme activities and biotransformation of palm kernel cake biomass by lactic acid bacteria isolated from Malaysian foods[J]. International Journal of Molecular Sciences, 2019, 20(20):4979.

[42]
AQAWI M, GALLILY R, SIONOV R V, et al. Cannabigerol prevents quorum sensing and biofilm formation of Vibrio harveyi[J]. Frontiers in Microbiology, 2020,11: 858.

[43]
李雁冰, 李井春, 魏国生, 等. 青贮饲料中微生物群体感应(QS)机制的研究[R]. 大庆: 黑龙江八一农垦大学, 2021.

LI Y B, LI J C, WEI G S, et al. Studies on the mechanism of microbial community sensing (QS) in silages[R]. Daqing: Heilongjiang Bayi Agricultural University, 2021. (in Chinese)

[44]
XIAO Y, WANG X, LI Y, et al. Evaluation of the immunogenicity in mice orally immunized with recombinant Lactobacillus casei expressing porcine epidemic diarrhea virus S1 protein[J]. Viruses, 2022, 14(5):890.

[45]
LI X F, FAN X K, SHI Z H, et al. AI-2E family transporter protein in Lactobacillus acidophilus exhibits AI-2 exporter activity and relate with intestinal juice resistance of the strain[J]. Frontiers in Microbiology, 2022,13:908145.

[46]
WEI X, LONG T H, LI Y J, et al. Diet shift may trigger LuxS/AI-2 quorum sensing in rumen bacteria[J]. Bioengineering-Basel, 2022, 9(8):379.

[47]
孙旭东, 黄晓梅, 陈秀玲, 等. 产纤维素酶菌株的筛选鉴定及发酵条件优化[J]. 基因组学与应用生物学, 2014, 33(6):1281-1287.

SUN X D, HUANG X M, CHEN X L, et al. Screening and identifying the cellulase-producing bacteria and optimizing fermentation conditions[J]. Genomics and Applied Biology, 2014, 33(6):1281-1287. (in Chinese)

[48]
白长胜, 王欢, 尹珺伊, 等. Plackett-Burman和Box-Behnken 试验优化莫海威芽孢杆菌HXS-LV12产纤维素酶发酵工艺[J]. 动物营养学报, 2024, 36(1):564-578.

DOI

BAI C S, WANG H, YIN J Y, et al. Optimization of fermentation process for cellulase production by Bacillus mojavensis HXS-LV12 using Plackett-Burman and Box-Behnken experiments[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):564-578. (in Chinese)

[49]
SENTHIVELAN T, KANAGARAJ J, PANDA R C, et al. Screening and production of a potential extracellular fungal laccase from Penicillium chrysogenum:media optimization by response surface methodology (RSM) and central composite rotatable design (CCRD)[J]. Biotechnology Reports, 2019,23:e00344.

[50]
LIU X, WANG H, WANG B, et al. Efficient production of extracellular pullulanase in Bacillus subtilis ATCC6051 using the host strain construction and promoter optimization expression system[J]. Microbial Cell Factories, 2018, 17(1):163.

[51]
NASHIMOTO Y, MATSUSHITA F, DIJKSTRA J M, et al. Bitiscetin-3,a novel C-type lectin-like protein cloned from the venom gland of the viper bitis arietans,induces platelet agglutination and inhibits binding of von willebrand factor to collagen[J]. Toxins, 2022, 14(4):236.

[52]
LEE B, KIM T, KIM S K, et al. Patome:a database server for biological sequence annotation and analysis in issued patents and published patent applications[J]. Nucleic Acids Research, 2007, 35(Suppl.1):D47-D50.

[53]
SHENG T, MENG Q B, WEN X C, et al. Bioaugmentation with Ruminiclostridium thermocellum M3 to enhance thermophilic hydrogen production from agricultural solid waste[J]. Journal of Chemical Technology and Biotechnology, 2021, 96(6):1623-1631.

[54]
WU M F, LIU P Y, WANG S Y, et al. Ultrasonic microwave-assisted micelle combined with fungal pretreatment of Eucommia ulmoides leaves significantly improved the extraction efficiency of total flavonoids and gutta-percha[J]. Foods, 2021, 10(10):2399.

[55]
AMORE A, PEPE O, VENTORINO V, et al. Cloning and recombinant expression of a cellulase from the cellulolytic strain Streptomyces sp.G12 isolated from compost[J]. Microbial Cell Factories, 2012,11:164.

[56]
YANG F, YANG X, LI Z, et al. Overexpression and characterization of a glucose-tolerant β-glucosidase from T.aotearoense with high specific activity for cellobiose[J]. Applied Microbiology and Biotechnology, 2015,99:8903-8915.

[57]
LI G, WANG A P, CHEN Y M, et al. Development of a colloidal gold-based immunochromatographic strip for rapid detection of severe acute respiratory syndrome coronavirus 2 spike protein[J]. Frontiers in Immunology, 2021,12:635677.

[58]
银川, 杨艳红, 高焕方, 等. 纤维素酶的基因研究进展及其应用[J]. 纤维素科学与技术, 2021, 29(4):71-78.

YIN C, YANG Y H, GAO H F, et al. Research progress and application of cellulase gene[J]. Journal of Cellulose Science and Technology, 2021, 29(4):71-78. (in Chinese)

[59]
JAKUBCZYK K, KAŁDUÑSKA J, KOCHMAN J, et al. Chemical profile and antioxidant activity of the kombucha beverage derived from white,green,black and red tea[J]. Antioxidants, 2020, 9(5):447.

[60]
ZHANG C J, YAO J, ZHOU C, et al. The alkaline pectate lyase PEL168 of Bacillus subtilis heterologously expressed in Pichia pastoris is more stable and efficient for degumming ramie fiber[J]. BMC Biotechnology, 2013,13:26.

[61]
马瑞, 陈成, 李海峰, 等. 中国温泉微生物物种多样性及其酶活性研究进展[J]. 微生物学通报, 2020, 47(9):2959-2973.

MA R, CHEN C, LI H F, et al. Species diversity and enzymatic activity of microorganisms in Chinese hot springs:a review[J]. Microbiology (Reading, England), 2020, 47(9):2959-2973. (in Chinese)

[62]
张凡凡. 纤维素分解菌与乳酸菌协同作用提高玉米青贮品质研究[D]. 博士学位论文. 石河子: 石河子大学, 2017.

ZHANG F F. Study on quality of corn silage by synergistic effect of cellulose decomposing and lactic acid bacteria colony[D]. Ph.D.Thesis. Shihezi: Shihezi University, 2017. (in Chinese)

[63]
买尔哈巴·艾合买提. 瘤胃中纤维素分解菌的分离、鉴定及其在青贮饲料中的应用研究[D]. 硕士学位论文. 乌鲁木齐: 新疆大学, 2013.

AHMET M. Study on isolation and identification of cellulose-degrading bacteria from rumen and its application on silage[D]. Master’s Thesis. Urumqi: Xinjiang University, 2013. (in Chinese)

[64]
AZZAZ H H, ABD EL TAWAB A M, KHATTAB M S A, et al. Effect of cellulase enzyme produced from Penicillium chrysogenum on the milk production,composition,amino acid,and fatty acid profiles of Egyptian buffaloes fed a high-forage diet[J]. Animals, 2021, 11(11):3066.

[65]
徐晓东, 吴立坡, 姜宁, 等. 复合菌酶制剂对玉米秸秆黄贮发酵品质的影响[J]. 中国畜牧杂志, 2021, 57(9):187-191.

XU X D, WU L P, JIANG N, et al. Effect of enzyme preparation of compound bacteria on the fermentation quality of corn stover yellow silage[J]. Chinese Journal of Animal Science, 2021, 57(9):187-191. (in Chinese)

文章导航

/