研究论文

大豆异黄酮对安格斯肉牛免疫性能、生殖激素水平和血清代谢物的影响

  • 王建东 , 1 ,
  • 于有利 , 1, * ,
  • 丁辉 2 ,
  • 王攀 2 ,
  • 郭亚男 1 ,
  • 梁小军 1
展开
  • 1 宁夏农林科学院动物科学研究所,银川 750002
  • 2 宁夏大学动物科技学院,银川 750021
* 于有利,副研究员,E-mail:

王建东(1980—),男,宁夏同心人,副研究员,硕士,从事动物营养研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-06-26

  网络出版日期: 2025-01-10

基金资助

宁夏重大成果转化项目(2023KJCGZH0003)

宁夏回族自治区重点研发计划(2024BBF02014)

Effects of Soybean Isoflavone on Immune Performance, Reproductive Hormone Levels and Serum Metabolites of Angus Beef Cattle

  • WANG Jiandong , 1 ,
  • YU Youli , 1, * ,
  • DING Hui 2 ,
  • WANG Pan 2 ,
  • GUO Ya’nan 1 ,
  • LIANG Xiaojun 1
Expand
  • 1 Institute of Animal Science, Ningxia Academy of Agriculture and Forestry Sciences, Yinchuan 750002, China
  • 2 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
* associate professor, E-mail:

Received date: 2024-06-26

  Online published: 2025-01-10

摘要

本试验旨在探究饲粮添加不同水平大豆异黄酮(SIF)对安格斯肉牛免疫性能、生殖激素水平和血清代谢物的影响。试验选取40头体重(396.87±35.42) kg、2~3胎次的健康安格斯母牛,随机分为4组,每组10头。对照组(CG组)饲喂基础饲粮,试验组分别在基础饲粮的基础上添加10(SIF-10组)、20(SIF-20组)和40 mg/kg(SIF-40组)SIF。预试期7 d,正试期40 d。饲养试验结束后采集血液,检测血清生化指标以及血清免疫因子和生殖激素含量,并基于超高效液相色谱-串联质谱(UPLC-MS/MS)非靶向代谢组学技术分析SIF对血清代谢物的影响。 结果表明: 1)与CG组相比,SIF-10组和SIF-20组血清总蛋白(TP)含量显著提高(P<0.05),血清谷丙转氨酶(ALT)活性显著降低(P<0.05);SIF-20组血清球蛋白(GLB)含量显著提高(P<0.05);SIF-40组血清TP和GLB含量极显著提高(P<0.01),血清谷草转氨酶(AST)和ALT活性极显著降低(P<0.01)。2)与CG组相比,SIF-10组和SIF-20组血清免疫球蛋白A(IgA)和免疫球蛋白G(IgG)含量显著提高(P<0.05);SIF-20组血清干扰素-γ(IFN-γ)含量显著提高(P<0.05),血清白细胞介素-4(IL-4)含量极显著提高(P<0.01);SIF-40组血清IgA、IgG、免疫球蛋白M(IgM)、IFN-γ、白细胞介素-2(IL-2)和IL-4含量均极显著提高(P<0.01)。3)与CG组相比,SIF-40组血清孕酮、雌二醇、促卵泡激素和促黄体生成素含量均极显著提高(P<0.01)。4)CG组和SIF-40组之间共筛选出346种血清差异代谢物[P<0.05、变量投影重要度(VIP)≥1、差异倍数(FC)>2.0或FC<0.5],其中,相对于CG组,SIF-40组163种代谢物上调、183种代谢物下调。选取VIP值前20的代谢差异物(14种上调、6种下调)进行通路富集,发现甘氨酸、丝氨酸和苏氨酸代谢、苯丙氨酸代谢、泛酸和辅酶A生物合成、赖氨酸降解、色氨酸代谢、丁酸代谢、叶酸生物合成以及柠檬酸循环等8个代谢通路发生显著变化。综上所述,饲粮添加一定水平SIF能够提高安格斯肉牛母牛免疫性能、生殖激素水平以及代谢水平,且以添加40 mg/kg为宜。

本文引用格式

王建东 , 于有利 , 丁辉 , 王攀 , 郭亚男 , 梁小军 . 大豆异黄酮对安格斯肉牛免疫性能、生殖激素水平和血清代谢物的影响[J]. 动物营养学报, 2025 , 37(1) : 400 -411 . DOI: 10.12418/CJAN2025.035

Abstract

This study was conducted to investigate the effects of different dietary levels soy isoflavone (SIF) on immune performance, reproductive hormone levels and serum metabolites of Angus beef cattle. Forty healthy Angus cows with a body weight of (396.87±35.42) kg and 2 to 3 parities were randomly divided into 4 groups with 10 cows per group. Cows in the control group (CG group) were fed a basal diet, and those in experimental groups were fed the basal diet supplemented with 10 (SIF-10 group), 20 (SIF-20 group) and 40 mg/kg (SIF-40 group) SIF, respectively. After the feeding experiment, the blood samples were collected, and the serum biochemical indices and contents of immune factors and reproductive hormones were detected. Meanwhile, the effects of SIF on serum metabolites were analyzed based on ultra-high performance liquid chromatography-tandem mass spectrometry (UPLC-MS/MS) non-targeted metabolomics technology. The results showed as follows: 1) compared with CG group, the serum total protein (TP) content in SIF-10 and SIF-20 groups was significantly increased (P<0.05), and the serum alanine aminotransferase (ALT) activity was significantly decreased (P<0.05); the serum globulin (GLB) content in SIF-20 group was significantly increased (P<0.05); the contents of serum TP and GLB in SIF-40 group were extremely significantly increased (P<0.01), and the activities of serum aspartate aminotransferase (AST) and ALT were extremely significantly decreased (P<0.01). 2) Compared with CG group, the contents of serum immunoglobulin A (IgA) and immunoglobulin G (IgG) in SIF-10 and SIF-20 groups were significantly increased (P<0.05); the serum interferon-γ (IFN-γ) content in SIF-20 group was significantly increased (P<0.05), and the serum interleukin-4 (IL-4) content was extremely significantly increased (P<0.01); the contents of serum IgA, IgG, immunoglobulin M (IgM), IFN-γ, interleukin-2 (IL-2) and IL-4 in SIF-40 group were extremely significantly increased (P<0.01). 3) Compared with CG group, the contents of serum progesterone, estradiol, follicle stimulating hormone and luteinizing hormone in SIF-40 group were extremely significantly increased (P<0.01). 4) A total of 346 serum differential metabolites were screened between CG group and SIF-40 group [P<0.05, variable importance in projection (VIP)≥1, fold change (FC)>2.0 or FC<0.5], among which 163 metabolites were up-regulated and 183 metabolites were down-regulated in SIF-40 group compared with CG group. The top 20 differential metabolites in VIP value (14 up-regulated and 6 down-regulated) were selected for pathway enrichment, and significant changes were found in 8 metabolic pathways, including glycine, serine and threonine metabolism, phenylalanine metabolism, pantothenate and coenzyme A biosynthesis, lysine degradation, tryptophan metabolism, butanoate metabolism, folate biosynthesis and citrate cycle. In conclusion, dietary supplementation with a certain level of SIF can improve the immune performance, reproductive hormone levels and metabolic levels of Angus cows, and the appropriate supplemental level is 40 mg/kg.

大豆异黄酮(soy isoflavone,SIF)作为异黄酮植物提取物,最早提取于大豆。不过,SIF不仅存在于豆科植物之中,也广泛存在于谷物、蔬菜、水果和坚果中,但含量较少[1]。SIF结构和功能与动物雌激素相似,对雌激素受体的调节有双重活性,当机体内源性雌激素含量较少时,SIF占据雌激素受体,发挥弱雌激素样作用;而当机体内源性雌激素含量较多时,SIF可与其竞争受体从而表现出抗雌激素样作用[2-3]。研究报道,雌激素可影响卵巢癌、乳腺癌和子宫内膜癌等癌症细胞的生成、分化及凋亡[4],SIF正是通过其类似雌激素的化学结构与雌激素受体结合,影响雌激素代谢,在雌激素相关癌症的预防中发挥有利作用[5]。范觉鑫[6]研究发现,SIF可与巴马香猪垂体、卵巢等组织的雌激素受体结合,改变促卵泡激素(follicle stimulating hormone,FSH)、促黄体生成素(luteinizing hormone,LH)等生殖激素合成中关键因子的表达,从而影响生殖激素的水平,并导致巴马香猪初次发情时间的延长。郭振慧等[7]研究发现,在公兔饲粮中添加SIF后,公兔的精子密度及采精量显著高于未添加组,且精子畸形率显著下降。除了具有影响生殖性能作用外,SIF还具有抗菌、抗氧化及增强免疫力等作用。据报道,SIF对革兰氏阴性菌抑菌活性较低,但对金黄色葡萄球菌、耐甲氧西林金黄色葡萄球菌以及炭疽芽孢杆菌等革兰氏阳性菌抑菌活性较强[8-9];SIF饲喂公羊后可提高公羊平均日采食量、饲料转化率及平均日增重,同时提高瘤胃微生物如瘤胃球菌属、毛螺菌属和普雷沃氏菌属等的丰度,提高瘤胃消化能力[10];在泌乳母猪饲粮中添加SIF,可显著提高哺乳仔猪的平均日增重以及泌乳母猪血清中催乳素含量,并通过提升泌乳母猪的抗氧化酶活性以及抑制脂质过氧化来提高机体抗氧化能力[11];在体外奶牛乳腺上皮细胞培养试验中添加SIF可显著提高奶牛乳腺上皮细胞生成甘油三酯和β-酪蛋白的能力[12],同时细胞中抗氧化指标也显著升高;向围产期奶牛补饲含SIF保健颗粒后,可显著降低围产期奶牛的肝脏损伤,提高其抗氧化能力和泌乳能力,并有效降低产后能量代谢病的发生率[13];给小鼠口服SIF可增加胸腺质量和血液中淋巴细胞数量,促进抗原特异性免疫球蛋白M(immunoglobulin M,IgM)含量的升高[14]
肉牛生长性能和繁殖力低一直是制约肉牛产业发展的瓶颈问题,提升肉牛生长性能和繁殖力对于产业发展意义重大。目前,国内外关于SIF在肉牛方面的研究极少,关于肉牛适宜SIF添加量的报道更是空白,有待进一步研究。因此,本研究旨在探究饲粮添加不同水平SIF对安格斯肉牛免疫性能、生殖激素水平和血清代谢物的影响,以明确SIF适宜添加量,为SIF作为新型饲料添加剂在肉牛养殖中的应用提供参考。

1 材料与方法

1.1 试验材料

SIF提取物有效纯度为98%,为市售产品。

1.2 试验设计和饲养管理

本试验于宁夏银川市某肉牛养殖场进行,动物试验由宁夏科技伦理学会审查批准,批准编号为NXKJLL-2022-031。试验选取40头体重(396.87±35.42) kg、2~3胎次的健康安格斯母牛,随机分为4组,每组10头。对照组(CG组)饲喂基础饲粮,试验组分别在基础饲粮的基础上添加10(SIF-10组)、20(SIF-20组)和40 mg/kg(SIF-40组)SIF。参考《肉牛饲养标准》(NY/T 815—2004)[15]推荐育肥牛营养需要配制基础饲粮,基础饲粮精料以玉米、小麦麸、豆粕和棉籽粕等为主,粗料为全株青贮玉米、麦秸和玉米秸秆,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 15.42
小麦麸Wheat bran 13.25
豆粕Soybean meal 12.45
棉籽粕Cottonseed meal 8.28
氯化钠NaCl 0.20
碳酸氢钠NaHCO3 0.30
预混料Premix1) 0.10
全株青贮玉米Whole-plant corn silage 20.00
麦秸Wheat straw 20.00
玉米秸秆Corn stalk 10.00
合计Total 100.00
营养水平Nutrient levels2)
总能GE/(MJ/kg) 16.48
粗蛋白质CP 12.47
粗脂肪EE 2.53
中性洗涤纤维ADF 39.31
酸性洗涤纤维NDF 22.41
磷P 0.48
钙Ca 0.63

1)每千克预混料含有 Contained the following per kg of the premix:VA 500 000 IU,VD 150 000 IU,VE 3 000 IU,Fe 4.0 g,Cu 1.3 g,Zn 6.0 g,Mn 3.0 g,I 80 mg,Se 50 mg,Co 80 mg。

2)营养水平均为实测值。Nutrient levels were all measured values.

各组试验牛分栏饲养并设置单独料槽,每天08:00和18:00各饲喂1次,自由饮水。早上饲喂饲粮前用颈夹固定肉牛,将SIF撒在少量饲粮上待试验牛完全舔舐干净后再自由进食。预试期7 d,正试期40 d。

1.3 测定指标及方法

1.3.1 取样方法

饲喂试验结束次日早晨饲喂前,采用真空采血管经尾静脉采血(每头牛采集20 mL),于4 ℃冰箱中静置2 h后,1 000×g离心10 min,取上层血清,迅速使用液氮冷冻后送至实验室,保存于-80 ℃备用。选取CG组和SIF-40组血清各6份送至上海拜谱生物科技有限公司进行超高效液相色谱-串联质谱(UPLC-MS/MS)非靶向代谢组学分析。

1.3.2 饲粮营养成分测定

饲粮总能(GE)按照国际标准ISO 9831:1998推荐的方法使用氧弹式测热仪测定;粗蛋白质(CP)、粗脂肪(EE)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、钙(Ca)和磷(P)含量分别按照GB/T 6432—2018、GB/T 6433—2006、GB/T 20806—2022、NY/T 1459—2022、GB/T 6436—2018和GB/T 6437—2018方法进行测定。

1.3.3 血清生化指标

采用比色法测定血清总蛋白(total protein,TP)、白蛋白(albumin,ALB)、球蛋白(globulin,GLB)含量以及谷草转氨酶(aspartate aminotransferase,AST)和谷丙转氨酶(alanine aminotransferase,ALT)活性,测定试剂盒购自江苏晶美生物科技有限公司,并按照试剂盒说明书操作执行。

1.3.4 血清免疫因子和生殖激素含量

采用酶联免疫吸附试验(ELISA)法测定血清免疫因子免疫球蛋白A(immunoglobulin A,IgA)、IgM、免疫球蛋白G(immunoglobulin G,IgG)、干扰素-γ(interferon-γ,IFN-γ)、白细胞介素-2(interleukin-2,IL-2)及白细胞介素-4(interleukin-4,IL-4)含量,以及生殖激素如孕酮(progesterone,PRG)、雌二醇(estradiol,E2)、FSH和LH含量,ELISA试剂盒购自上海研谨生物科技有限公司,测定步骤参照试剂盒说明书进行。

1.3.5 血清代谢物

1.3.5.1 样品预处理

将CG组和SIF-40组血清样本于4 ℃解冻并涡旋混匀,分别取100 μL血清置于无菌EP管中,加入预冷的甲醇:水(4:1)混合溶液并混匀,置于-20 ℃冰水浴中超声20 min后静置1 h,4 ℃、5 000×g离心20 min,取上清后再高速真空浓缩离心机中挥干。质谱检测时,加入100 μL甲醇:水(1:1)混合溶液进行复溶,4 ℃、10 000×g离心15 min后,取上清液上机分析。

1.3.5.2 色谱分离

分析流程中将样本加入4 ℃自动进样器中,色谱柱为ACQUITY UPLC® HSS T3(2.1 mm×100 mm,1.8 μm),色谱流动相A为0.1%甲酸水溶液,色谱流动相B为乙腈;设定柱温为40 ℃,进样量4 μL,流速为0.3 mL/min。

1.3.5.3 质谱采集

每份样品分别采用电喷雾电离进行正离子(+)和负离子(-)模式检测。样品经超高效液相色谱(UPLC)分离后用QE Plus质谱仪进行质谱分析,使用加热电喷雾离子(HESI)源进行离子化,最后经一二级质谱后收集数据并分析。

1.4 数据处理与分析

试验数据采用Excel 2021进行初步整理,然后使用SPSS 26.0软件进行单因素方差分析(one-way ANOVA),达到显著水平时,采用Duncan氏法进行组间多重比较,结果数据以“平均值±标准误”的形式表示,P<0.05表示差异显著,P<0.01表示差异极显著。
代谢物测序原始数据采用MS-DIAL软件进行峰对齐、保留时间校正和提取峰面积。代谢物结构鉴定采用精确质量数匹配(质量偏差<10×10-6)和二级谱图匹配(质量偏差<0.01 u)的方式,检索人类代谢数据库(HMDB)、MassBank、全球天然产物社会分子网络(GNPS)等公共数据库比对提取得到的数据,删除组内缺失值>50%的离子峰不参与后续统计分析。正、负离子数据经紫外光(UV)预处理后,进行主成分分析(PCA)和正交偏最小二乘判别分析(OPLS-DA),再根据主成分的变量投影重要度(VIP)、P值(P-value)、差异倍数(fold change,FC)来筛选差异代谢物。将筛选出的差异代谢物在京都基因与基因组百科全书(KEGG)数据库作映射,筛选出CG组和SIF-40组差异显著的代谢通路。

2 结果与分析

2.1 饲粮添加不同水平SIF对安格斯肉牛血清生化指标的影响

表2可知,与CG组相比,SIF-10组和SIF-20组安格斯肉牛血清TP含量显著提高(P<0.05),血清ALT活性显著降低(P<0.05);SIF-20组血清GLB含量显著提高(P<0.05);SIF-40组血清TP和GLB含量极显著提高(P<0.01),血清AST和ALT活性极显著降低(P<0.01)。各组间血清ALB含量无显著差异(P>0.05)。
表2 饲粮添加不同水平SIF对安格斯肉牛血清生化指标的影响

Table 2 Effects of different dietary levels of SIF on serum biochemical indices of Angus beef cattle (n=10)

项目
Items
组别Groups
CG SIF-10 SIF-20 SIF-40
总蛋白TP/(g/L) 64.82±4.39Bb 66.46±6.33ABa 69.48±5.27ABa 72.03±6.17Aa
白蛋白ALB/(g/L) 32.20±2.38 31.88±3.15 32.74±2.90 32.84±2.77
球蛋白GLB/(g/L) 32.80±3.30Bb 32.87±4.63Bb 35.75±4.35ABa 38.35±3.35Aa
谷草转氨酶AST/(U/L) 60.34±3.98Aa 58.21±4.23Aa 56.73±3.64Aa 46.16±3.42Bb
谷丙转氨酶ALT/(U/L) 45.16±2.98Aa 38.23±3.17ABb 38.11±2.67ABb 31.16±3.38Bb

同行数据肩标相同小写字母或无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。表3表4同。

In the same row, values with the same small letter or no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as Table 3 and Table 4.

2.2 饲粮添加不同水平SIF对安格斯肉牛血清免疫因子含量的影响

表3可知,与CG组相比,SIF-10组和SIF-20组安格斯肉牛血清IgA和IgG含量显著提高(P<0.05);SIF-20组血清IFN-γ含量显著提高(P<0.05),血清IL-4含量极显著提高(P<0.01);SIF-40组血清IgA、IgG、IgM、IFN-γ、IL-2和IL-4含量均极显著提高(P<0.01)。
表3 饲粮添加不同水平SIF对安格斯肉牛血清免疫因子含量的影响

Table 3 Effects of different dietary levels of SIF on serum immune factor contents of Angus beef cattle (n=10)

项目
Items
组别Groups
CG SIF-10 SIF-20 SIF-40
免疫球蛋白A IgA/(g/L) 1.78±0.18Bb 1.89±0.14ABa 1.93±0.15ABa 1.94±0.15Aa
免疫球蛋白G IgG/(g/L) 8.62±1.50Bb 8.98±1.25ABa 9.42±1.30ABa 9.95±0.96Aa
免疫球蛋白M IgM/(g/L) 2.42±0.40Bb 2.46±0.54Bb 2.36±0.36Bb 2.66±0.19Aa
干扰素-γ IFN-γ/(pg/mL) 31.10±0.35Bb 30.35±1.22Bb 35.72±0.88ABa 41.80±1.28Aa
白细胞介素-2 IL-2/(pg/mL) 11.25±2.16Bb 10.86±1.69Bb 11.70±1.88Bb 13.22±2.32Aa
白细胞介素-4 IL-4/(pg/mL) 264.13±28.45Bb 271.25±49.23Bb 315.58±48.16Aa 338.35±41.25Aa

2.3 饲粮添加不同水平SIF对安格斯肉牛血清生殖激素含量的影响

表4可知,与CG组相比,SIF-40组安格斯肉牛血清PRG、E2、FSH和LH含量均极显著提高(P<0.01);SIF-10组和SIF-20组血清生殖激素含量均无显著差异(P>0.05)。
表4 饲粮添加不同水平SIF对安格斯肉牛血清生殖激素含量的影响

Table 4 Effects of different dietary levels of SIF on serum reproductive hormone contents of Angus beef cattle (n=10) ng/mL

项目
Items
组别Groups
CG SIF-10 SIF-20 SIF-40
孕酮PRG 2.69±0.34Bb 2.95±0.28Bb 2.85±0.19Bb 4.66±0.74Aa
雌二醇E2 181.33±66.14Bb 176.44±82.36Bb 194.33±75.35Bb 279.25±40.25Aa
促卵泡激素FSH 4.99±2.22Bb 4.81±3.11Bb 5.22±1.96Bb 6.13±2.34Aa
促黄体生成素LH 11.22±3.16Ba 10.66±2.78Ba 11.57±3.69Ba 12.77±4.22Aa

2.4 饲粮添加不同水平SIF对安格斯肉牛血清代谢物的影响

2.4.1 血清代谢物PCA
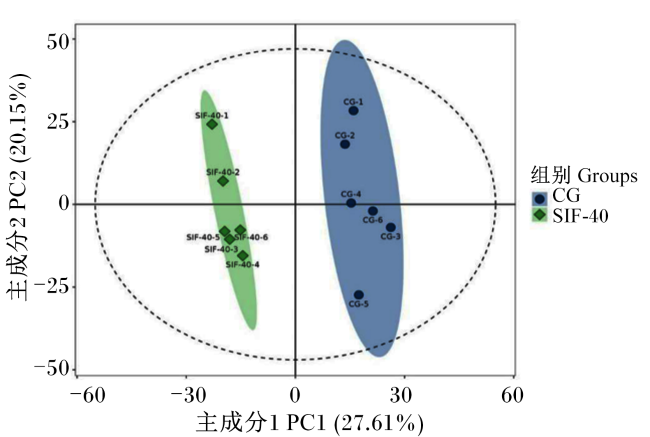
采用MS-DIAL软件对安格斯肉牛血清代谢物离子峰进行提取,在正负离子模式下共采集到的离子峰数目为30 733个。将所有试验样本和质控(QC)样本提取得到的峰,经UV处理后进行PCA(图1)。结果显示,QC样本较为紧密地聚集在一起,表明样本之间重复性良好。CG组和SIF-40组样本可置信区间为95%,表明2组样本组内差异小,且SIF-40组血清代谢物相较CG组发生明显变化,这表明饲粮添加40 mg/kg SIF可明显改变肉牛血清代谢物。
图1 血清代谢物PCA

Fig.1 PCA of serum metabolites

2.4.2 血清差异代谢物体筛选

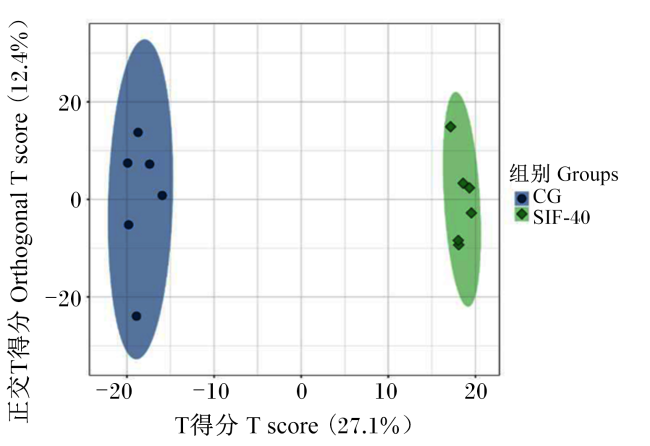
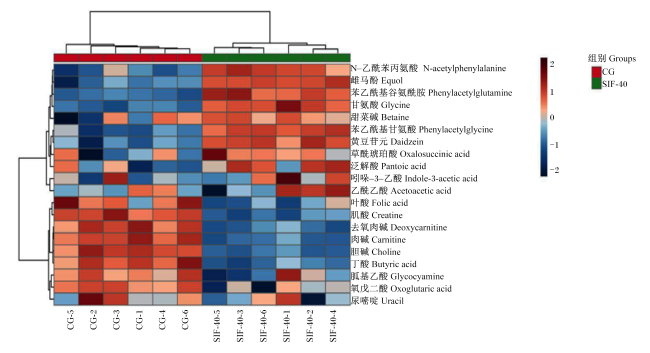
将CG组和SIF-40组样本进行OPLS-DA,并以VIP≥1、P<0.05、FC>2.0或FC<0.5为筛选标准,以代谢物火山图(图2)对2组的差异代谢物进行可视化展示,结果发现2组之间存在明显的代谢差异,且共筛选出346种差异代谢物,其中,相对于CG组,SIF-40组163种代谢物上调、183种代谢物下调。选取VIP值前20的差异代谢物(14种上调,6种下调,表5),并绘制聚类热图(图3)。结果表明,这20种差异代谢物能将2组明显区分,筛选出的差异代谢物有较强的可靠性。
图2 血清代谢物OPLS-DA

Fig.2 OPLS-DA of serum metabolites

表5 SIF-40组和CG组之间血清差异代谢物及相关参数

Table 5 Serum differential metabolites and related parameters between SIF-40 and CG groups

代谢物
Metabolites
平均峰值Average peak value 变化趋势
Trend of
change
变量投影
重要度
VIP
P
P-value
SIF-40组
SIF-40 group
对照组
CG group
苯乙酰基谷氨酰胺Phenylacetylglutamine 10 088 339 740 894 1.67 3.46×10⁻⁵
苯乙酰基甘氨酸Phenylacetylglycine 5 706 518 747 1 668 791 123 1.89 1.31×10⁻⁷
N-乙酰苯丙氨酸N-acetylphenylalanine 5 241 284 784 893 1.74 6.23×10⁻⁵
泛解酸Pantoic acid 78 641 610 18 395 354 1.56 2.06×10⁻³
尿嘧啶Uracil 52 699 640 36 084 848 1.42 2.55×10⁻²
肉碱Carnitine 92 009 991 232 791 466 1.67 5.15×10⁻⁴
去氧肉碱Deoxycarnitine 23 302 885 38 626 003 1.50 4.51×10⁻³
氧戊二酸Oxoglutaric acid 152 253 285 416 868 720 1.38 1.13×10⁻³
乙酰乙酸Acetoacetic acid 6 141 253 2 775 371 1.48 2.91×10⁻³
甘氨酸Glycine 88 075 316 20 100 811 1.86 3.25×10⁻⁷
胆碱Choline 556 859 827 1 553 168 128 1.73 1.25×10⁻³
甜菜碱Betaine 26 612 840 8 989 720 1.59 9.94×10⁻⁵
吲哚-3-乙酸Indole-3-acetic acid 18 253 412 8 193 692 1.61 4.97×10⁻⁴
丁酸Butyric acid 25 360 206 34 434 962 1.49 1.14×10⁻³
叶酸Folic acid 228 285 394 174 222 587 1.63 9.66×10⁻³
草酰琥珀酸Oxalosuccinic acid 4 003 554 209 1 768 171 290 1.66 5.36×10⁻⁴
胍基乙酸Glycocyamine 903 816 206 582 279 563 1.55 1.34×10⁻³
肌酸Creatine 364 086 100 450 096 616 1.69 1.26×10⁻⁴
雌马酚Equol 34 923 876 52 464 1.65 2.83×10⁻⁴
黄豆苷元Daidzein 48 875 032 12 715 947 1.83 3.91×10⁻⁶

↑:上调 up-regulation;↓:下调 down-regulation。

图3 血清差异代谢物聚类热图

Fig.3 Clustering heat map of serum differential metabolites

2.4.3 血清差异代谢物通路富集分析

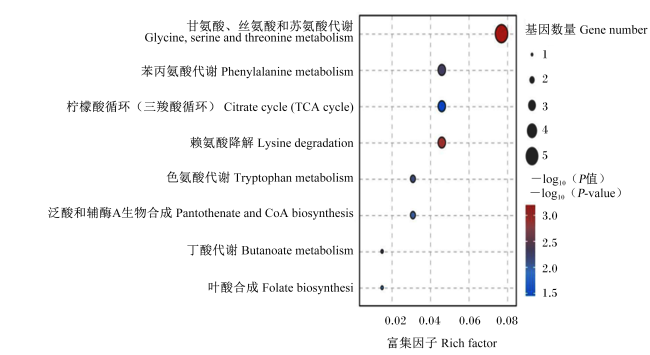
将筛选出来的20种差异代谢物进行代谢通路富集分析,结果如图4所示。CG组与SIF-40组之间有8个代谢通路发生变化,分别为苯丙氨酸代谢、泛酸和辅酶A生物合成、赖氨酸降解、甘氨酸、丝氨酸和苏氨酸代谢、色氨酸代谢、丁酸代谢、柠檬酸循环[三羧酸(TCA)循环]以及叶酸生物合成。
图4 血清差异代谢物通路富集分析

Fig.4 Serum differential metabolite pathway enrichment analysis

3 讨论

3.1 饲粮添加不同水平SIF对安格斯肉牛血清生化指标的影响

血清生化指标可直观地反映动物的健康状况和对营养物质的利用[16]。TP为动物合成蛋白质提供稳定环境,加快其合成效率,提高机体生长发育速度[17]。GLB由免疫器官生成,反映机体免疫性能强弱。本研究中,在安格斯肉牛基础饲粮中添加一定水平SIF可显著提高血清TP和GLB含量,尤其是高添加水平SIF效果达到极显著。血清TP和GLB含量提高可能是由于SIF作用于机体器官及细胞的雌激素受体,从而促进肝脏和肌肉的蛋白质合成,并使血液中蛋白质含量升高,这表明SIF可以改善机体生长发育及免疫状况[18-19]。ALT和AST是线粒体中2种重要的氨基酸转氨酶,对动物蛋白质代谢起着关键作用[20];同时,这2种酶也是肝脏功能受损后最灵敏的指标,可通过其活性高低判断机体病理状况[21]。本研究中,饲粮添加一定水平SIF后,安格斯肉牛血清ALT和AST活性显著降低,表明饲喂SIF不会对肝脏功能造成损伤。

3.2 饲粮添加不同水平SIF对安格斯肉牛血清免疫因子含量的影响

免疫球蛋白是动物机体在体液免疫过程中释放的关键活性分子,对致病抗原有识别清除功能,其含量的高低反映了机体的免疫状况和抗病能力[22]。IgA大多由黏膜淋巴组织分泌,可阻碍微生物定植于黏膜上,并通过结合病毒表面受体抑制病毒传播,破坏病毒粒子[23]。IgG是初级免疫应答中持续时间最长的免疫球蛋白,通过吞噬细胞、中和毒素提高机体免疫性能[24]。IgM则是免疫应答中最早分泌的免疫球蛋白,其在生物抗体中效率极高。IFN-γ、IL-2和IL-4是免疫调节中关键的细胞因子,在维持机体免疫稳态中起重要作用。IFN-γ是由多种免疫细胞分泌的细胞因子,不仅可以激活免疫细胞分化,还可以通过自身诱导的反式作用因子强化巨噬细胞的抗原呈递能力[25]。IL-2主要是由活化后T细胞分泌的一种细胞因子,可诱导自然杀伤(NK)细胞和B细胞活化与增殖,促进机体免疫球蛋白产生[26]。IL-4多由Th2细胞产生,可活化B细胞介导机体产生体液免疫应答。肖凡等[27]报道,在荷斯坦犊牛饲粮中添加600 mg/d SIF可提高犊牛血清中IgA、IgM、IgG、IFN-γ、白细胞介素-1β(interleukin-1β,IL-1β)和IL-4含量,这与本研究结果一致。沈菲[17]报道,在荷斯坦奶牛饲粮中添加5、15和30 mg/kg的SIF 60 d后,对血清IL-1β、白细胞介素-6(interleukin-6,IL-6)和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)含量无显著影响,这一不同结果可能与饲喂方法、牛品种以及饲养管理水平等因素不同有关。本研究表明,饲粮添加一定水平SIF后,肉牛血清IgA、IgM、IgG、IFN-γ、IL-2和IL-4含量有不同程度提高,表明SIF能够改善肉牛血清免疫指标,增强机体免疫力。

3.3 饲粮添加不同水平SIF对安格斯肉牛血清生殖激素含量的影响

PRG是性腺类固醇激素,通常由雌性动物黄体或胎盘分泌,在妊娠初期通过影响胚胎的发育、着床和生长,在建立和维持妊娠中起着非常重要的作用。研究发现,PRG与E2协同作用可增强精子活性,提高受孕率[28]。LH可刺激机体排卵、黄体发育、孕酮生物合成和黄体的维持,其与FSH协同作用,可刺激卵泡的生长和促进排卵[29]。FSH与卵泡颗粒细胞受体结合后,促进雄激素转化为雌激素,刺激成熟卵泡颗粒细胞释放孕酮,促进生殖器官的生长和分化[30]。本研究结果显示,饲粮添加40 mg/kg SIF后,安格斯肉牛血清PRG、E2、FSH和LH含量均极显著提高,表明SIF能够提高生殖激素水平,为下一步改善肉牛繁殖性能奠定了基础。

3.4 饲粮添加不同水平SIF对安格斯肉牛血清代谢物的影响

3.4.1 SIF对甘氨酸、丝氨酸和苏氨酸代谢通路的影响

甘氨酸、丝氨酸和苏氨酸代谢通路中的差异代谢物为甘氨酸、胍基乙酸、甜菜碱、肌酸及胆碱。甘氨酸是机体必需氨基酸,参与蛋白质、谷胱甘肽和葡萄糖等重要生物学分子的合成,具有广泛的抗炎、保护细胞和免疫调节特性。据报道,仔猪饲粮中添加1%的甘氨酸可增强促肾上腺皮质激素释放因子(corticotropin releasing factor,CRF)/促肾上腺皮质激素释放因子受体1(corticotropin releasing factor receptor 1,CRFR1)信号通路传导,修复脂多糖(lipopolysaccharide,LPS)应激导致的肠黏膜损伤,维持肠黏膜屏障功能的完整性[31];蛋鸡饲粮中添加0.683%的甘氨酸可提高饲料效率,降低热应激造成的应激反应[32]。关于繁殖性能方面,甘氨酸可通过提高成熟卵母细胞和卵丘细胞中抗凋亡基因B细胞淋巴瘤-2(B-cell lymphoma-2,Bcl2)的表达水平,降低活性氧(reactive oxygen specie,ROS)水平和增强线粒体功能,减少细胞凋亡,在卵母细胞成熟和后期发育中发挥重要作用。胍基乙酸是动物体内肌酸合成的前体物质。胍基乙酸与肌酸对生物体的代谢起重要作用,可促进瘤胃微生物菌群繁殖生长,提高饲粮营养物质消化率,改善肉品质和生长效率等[33]。胆碱是机体必需的营养物质,往往从食物中摄入,也可以在肝脏中产生,作为甲基供体在体内转化为甜菜碱。赵元等[34]研究表明,肉猪屠宰前饲粮中添加胍基乙酸和甜菜碱可提高平均日采食量和平均日增重,并通过影响能量物质代谢调节宰后糖酵解,提高肌肉pH,以此改善肉品质。在本研究中,SIF-40组安格斯肉牛血清甘氨酸、甜菜碱和胍基乙酸含量显著高于CG组,提示SIF在代谢水平上,通过调控特异代谢物提高机体抗炎、抗氧化和免疫能力。

3.4.2 SIF对叶酸生物合成代谢通路的影响

叶酸是一种机体必需的水溶性维生素,且不能在哺乳动物体内合成。叶酸作为单碳基团的载体,在核酸合成、氨基酸代谢和甲基化等单碳转移反应中必不可少,且在蛋白质沉积和营养物质代谢中起着关键作用。据报道,在蛋鸡饲粮中添加6 mg/kg叶酸可降低十二指肠和回肠TNF-α表达水平,提高十二指肠白细胞介素-10(interleukin-10,IL-10)、白细胞介素-13(interleukin-13,IL-13)及IgA表达水平,减少炎症反应,改善肠道屏障[35];饲粮添加叶酸可提高安格斯公牛瘤胃纤维素分解菌的数量和酶活性,提高公牛血清TP、ALB、生长激素和胰岛素样生长因子含量,并通过提高甲基转移效率促进蛋白质合成、饲粮消化及动物生长[36];饲粮添加叶酸还可通过提高胎盘抗氧化能力和血管密度以及激活胎盘哺乳动物雷帕霉素靶蛋白复合物1(mammalian target of rapamycin complex 1,mTORC1)-钠依赖性中性氨基酸转运载体2(sodium-dependent neutral amino acid transporter 2,SNAT2)信号通路,降低宫内胎儿生长迟缓发生率,并降低难产率[37]。同时叶酸与SIF有协同作用,可提高同型半胱氨酸糖尿病小鼠模型脾脏和胸腺指数,促进巨噬细胞的吞噬能力,有较好的免疫恢复功能[38];在雄性小鼠幼年时期补充足够叶酸和SIF,两者可产生协同作用,有助于改善小鼠成年后的骨骼健康[39]。在本研究中,饲粮添加40 mg/kg SIF可显著提高安格斯肉牛血清叶酸含量,提示SIF在代谢水平上,通过调控特异代谢物提高机体抗氧化和免疫能力。

3.4.3 SIF对泛酸和辅酶A生物合成代谢通路的影响

泛酸和辅酶A生物合成代谢通路中的差异代谢物为泛解酸和尿嘧啶。泛酸是一种生物必需的水溶性氨基酸,也是辅酶A和酰基载体蛋白的前体物质。泛酸还是多种酶反应中的辅酶,在体内主要参与蛋白质代谢和脂质代谢,同时也是脂肪酸合成类固醇所必需的物质,参与体内柠檬酸循环、胆碱乙酰化以及合成抗体等代谢。据报道,泛酸可以通过增强谷胱甘肽的生物合成来抑制细胞凋亡,保护细胞免受氧化应激,并通过增强膜磷脂的合成来促进细胞修复机制[40]。辅酶A是通过泛酸、半胱氨酸和三磷酸腺苷经5个酶促反应所合成的所有活细胞中必需的辅助因子。辅酶A及其衍生物通过代谢反应参与蛋白质、碳水化合物和脂质的分解代谢,使食物中的能量以辅酶A的形式释放出来[41]。本试验中,饲粮添加40 mg/kg SIF可显著提高安格斯肉牛血清泛解酸和尿嘧啶含量,提示SIF在代谢水平上,通过调控特异代谢物改善机体免疫性能。

4 结论

饲粮添加一定水平SIF可提高安格斯肉牛血清免疫因子和和生殖激素含量,且对肝脏功能没有负面影响,并通过调控如甘氨酸、甜菜碱、胍基乙酸、叶酸及泛酸等多种代谢途径促进机体蛋白质合成代谢,提高机体免疫性能。建议安格斯肉牛母牛饲粮中SIF添加水平为40 mg/kg。
[1]
IVASHKEVICH A. The role of isoflavones in augmenting the effects of radiotherapy[J]. Frontiers in Oncology, 2023,12:800562.

[2]
SIROTKIN A V, ALEXA R, KÁDASI A, et al. The isoflavone daidzein directly affects porcine ovarian cell functions and modifies the effect of follicle-stimulating hormone[J]. Journal of Animal Physiology and Animal Nutrition, 2017, 101(1):127-135.

DOI PMID

[3]
YAMASHITA S Y, LIN I, OKA C, et al. Soy isoflavone metabolite equol inhibits cancer cell proliferation in a PAP associated domain containing 5-dependent and an estrogen receptor-independent manner[J]. The Journal of Nutritional Biochemistry, 2022,100:108910.

[4]
任维利. 大豆异黄酮的作用研究进展[J]. 食品安全导刊, 2021(14):74-75.

REN W L. Research progress on the effects of soy isoflavones[J]. China Food Safety Magazine, 2021(14):74-75. (in Chinese)

[5]
巫波, 郭辉, 王宗岭, 等. 大豆异黄酮的抗肿瘤作用研究进展[J]. 四川解剖学杂志, 2019, 27(3):184-187.

WU B, GUO H, WANG Z L, et al. Research advance on antitumor effect of soy isoflavones[J]. Sichuan Journal of Anatomy, 2019, 27(3):184-187. (in Chinese)

[6]
范觉鑫. 大豆异黄酮对巴马香猪初情启动及卵泡发育的影响及其机制[D]. 博士学位论文. 长沙: 湖南农业大学, 2015.

FAN J X. Effects of soybean isoflavones on onset of puberty and follicular development of Bama miniature pigs[D]. Ph.D. Thesis. Changsha: Hunan Agricultural University, 2015. (in Chinese)

[7]
郭振慧, 张立永, 张富梅, 等. 大豆异黄酮对热应激公兔睾丸组织结构及精液品质的影响[J]. 黑龙江畜牧兽医, 2016(15):216-219,298.

GUO Z H, ZHANG L Y, ZHANG F M, et al. The effect of soy isoflavones on the testicular tissue structure and semen quality of heat stressed male rabbits[J]. Heilongjiang Animal Science and Veterinary Medicine, 2016(15):216-219,298. (in Chinese)

[8]
CHEN P, SUN J W, LIANG Z Q, et al. The bioavailability of soy isoflavones in vitro and their effects on gut microbiota in the simulator of the human intestinal microbial ecosystem[J]. Food Research International(Ottawa,Ont.), 2022,152:110868.

[9]
薛静文, 周谨文, 黄洁彦, 等. 菜用大豆荚壳中异黄酮的提取及抑菌作用研究[J]. 农产品加工, 2022(16):17-22.

XUE J W, ZHOU J W, HUANG J Y, et al. Study on extraction of isoflavones and its bacteriostasis from vegetable soybean pod shell[J]. Farm Products Processing, 2022(16):17-22. (in Chinese)

[10]
田博文. 关中奶山羊阉割公羊在大豆异黄酮影响下的生长发育、屠宰性能和瘤胃微生物的研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2023.

TIAN B W. The Guanzhong dairy goats castrated ram in the growth and development under the influence of the soy isoflavones,slaughter performance and rumen microbial research[D]. Master’s Thesis. Yangling: Northwest A&F University, 2023. (in Chinese)

[11]
胡胜兰, 肖昊, 王丽, 等. 大豆异黄酮对体外氧化应激仔猪肠上皮细胞的影响及机制研究[J]. 动物营养学报, 2021, 33(12):6699-6708.

DOI

HU S L, XIAO H, WANG L, et al. Effects and mechanism research of soybean isoflavones on intestinal epithelial cells of piglets under oxidative stress in vitro[J]. Chinese Journal of Animal Nutrition, 2021, 33(12):6699-6708. (in Chinese)

[12]
姜淑妍. 大豆异黄酮对高温下体外培养奶牛乳腺上皮细胞增殖和抗氧化能力的影响[J]. 中国饲料, 2020(15):29-32.

JIANG S Y. Effects of isoflavones on proliferation and antioxidation of bovine mammary epithelial cells cultures in vitro under high temperature[J]. China Feed, 2020(15):29-32. (in Chinese)

[13]
杨明茂, 田艳, 高畅鸿, 等. 植物甾醇、大豆异黄酮、杨梅素混合保健颗粒对围产期奶牛能量代谢病防控效果的评价[J]. 中国兽医学报, 2022, 42(7):1457-1463,1516.

YANG M M, TIAN Y, GAO C H, et al. Evaluation of effect of phytosterols,soybean isoflavones and myricetin mixed health granules on prevention and control of energy metabolism diseases in dairy cows during the perinatal period[J]. Chinese Journal of Veterinary Science, 2022, 42(7):1457-1463,1516. (in Chinese)

[14]
YAMAMOTO M, TANAKA Y, TAKEDA R, et al. Soy isoflavone genistein attenuates the efficacy of immune checkpoint therapy in C57BL/6 mice inoculated with B16F1 melanoma and a high PD-L1 expression level reflects tumor resistance[J]. Journal of Clinical Biochemistry and Nutrition, 2024, 74(1):57-62.

DOI PMID

[15]
中华人民共和国农业部. 肉牛饲养标准:NY/T 815—2004[S]. 北京: 中国农业出版社, 2004.

Ministry of Agriculture of the People’s Republic of China. Feeding standard of beef cattle:NY/T 815—2004[S]. Beijing: China Agriculture Press, 2004.

[16]
TAO H, SI B W, XU W C, et al. Effect of Broussonetia papyrifera L. silage on blood biochemical parameters,growth performance,meat amino acids and fatty acids compositions in beef cattle[J]. Asian-Australasian Journal of Animal Sciences, 2020, 33(5):732-741.

[17]
沈菲. 添喂不同水平大豆异黄酮对奶牛生产性能、血清生化指标的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2020.

SHEN F. Effects of feeding different levels of soy isoflavones on dairy cow performance and serum biochemical indicators[D]. Master’s Thesis. Urumqi: Xinjiang Agricultural University, 2020. (in Chinese)

[18]
马旭东, 刘显军, 陈静, 等. 菌酶协同发酵绵马贯众对断奶仔猪生长性能、血清生化指标和抗氧化能力的影响[J]. 动物营养学报, 2023, 35(12):7691-7701.

DOI

MA X D, LIU X J, CHEN J, et al. Effects of Dryopteris crassirhizoma fermented with bacteria and enzymes on growth performance,serum biochemical indexes and antioxidant capacity of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2023, 35(12):7691-7701. (in Chinese)

[19]
肖凡. 饲喂不同剂量大豆异黄酮对荷斯坦犊牛生长性能、免疫及血清生化指标的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2020.

XIAO F. Effects of different doses soy isoflavones on growth performance,immune function and serum biochemical indexes of Holstein calves[D]. Master’s Thesis. Urumqi: Xinjiang Agricultural University, 2020. (in Chinese)

[20]
HAKKAK R, GAUSS C H, BELL A, et al. Short-term soy protein isolate feeding prevents liver steatosis and reduces serum ALT and AST levels in obese female Zucker rats[J]. Biomedicines, 2018, 6(2):55.

[21]
李振亚. 血清AST、ALT、ESR及IL-21预测系统性红斑狼疮肝损伤的价值[J]. 罕少疾病杂志, 2024, 31(4):57-59.

LI Z Y. Value of serum AST,ALT,ESR,and IL-21 in predicting liver injury in systemic lupus erythematosus[J]. Journal of Rare and Uncommon Diseases, 2024, 31(4):57-59. (in Chinese)

[22]
陶晓钊, 薄欣宇, 段树楠, 等. 哺乳动物免疫球蛋白基因及其表达机制研究进展[J]. 中国畜禽种业, 2023, 19(8):61-66.

TAO X Z, BO X Y, DUAN S N, et al. Research progress on mammalian immunoglobulin genes and their expression mechanisms[J]. The Chinese Livestock and Poultry Breeding, 2023, 19(8):61-66. (in Chinese)

[23]
IMOTO S, SUZUKAWA M, TAKADA K, et al. Immunoglobulin A promotes IL-6 and IL-8 production,proliferation,and migration by the human bronchial smooth muscle cells[J]. Cellular Immunology, 2022,381:104612.

[24]
罗一富, 王艳, 李兰兰. 炎症性肠病患者血清IgM、IgG、IgA水平与肠道菌群的相关性[J]. 标记免疫分析与临床, 2019, 26(11):1876-1878,1886.

LUO Y F, WANG Y, LI L L. The correlations between serum IgM,IgG and IgA levels and intestinal flora in patients with inflammatory bowel disease[J]. Labeled Immunoassays and Clinical Medicine, 2019, 26(11):1876-1878,1886. (in Chinese)

[25]
杨生海, 殷宏, 刘永生, 等. 干扰素-γ研究进展[J]. 生物技术通报, 2010(8):29-34.

YANG S H, YIN H, LIU Y S, et al. Advances in research of interferon-gamma[J]. Biotechnology Bulletin, 2010(8):29-34. (in Chinese)

[26]
OROZCO VALENCIA A, CAMARGO KNIRSCH M, SUAVINHO FERRO E, et al. Interleukin-2 as immunotherapeutic in the autoimmune diseases[J]. International Immunopharmacology, 2020,81:106296.

[27]
肖凡, 李建洲, 李明, 等. 饲喂大豆异黄酮对荷斯坦犊牛免疫及抗氧化性能的影响[J]. 中国兽医学报, 2020, 40(12):2425-2432.

XIAO F, LI J Z, LI M, et al. Effects of soy isoflavones on immune performance and antioxidant properties of Holstein calves[J]. Chinese Journal of Veterinary Science, 2020, 40(12):2425-2432. (in Chinese)

[28]
FUJIKURA M, FUJINOKI M. Progesterone and estradiol regulate sperm hyperactivation and in vitro fertilization success in mice[J]. The Journal of Reproduction and Development, 2024, 70(2):96-103.

[29]
RAJU G A R, CHAVAN R, DEENADAYAL M, et al. Luteinizing hormone and follicle stimulating hormone synergy:a review of role in controlled ovarian hyper-stimulation[J]. Journal of Human Reproductive Sciences, 2013, 6(4):227-234.

[30]
王鹏, 管庆丰, 华蕊, 等. 促卵泡素和促黄体生成素对儋州鸡生殖激素调控规律的研究[J]. 中国畜牧兽医, 2017, 45(10):3029-3034.

WANG P, GUAN Q F, HUA R, et al. Study on regulation of reproductive hormones in Danzhou chicken by FSH and LH[J]. China Animal Husbandry & Veterinary Medicine, 2017, 45(10):3029-3034. (in Chinese)

[31]
王慧, 郭俊杰, 李先根, 等. 甘氨酸对脂多糖应激断奶仔猪肠黏膜屏障的调控作用[J]. 中国畜牧杂志, 2022, 58(7):199-203.

WANG H, GUO J J, LI X G, et al. Regulation of glycine on intestinal mucosal barrier induced in weaned pigs challenged lipopolysaccharide[J]. Chinese Journal of Animal Science, 2022, 58(7):199-203. (in Chinese)

[32]
NAM J H, HAN G P, KIM D Y, et al. Effect of dietary glycine supplementation on productive performance,egg quality,stress response,and fatty liver incidence in laying hens raised under heat stress conditions[J]. Poultry Science, 2023, 102(12):103101.

[33]
WEI L L, WANG R R, LIN K, et al. Creatine modulates cellular energy metabolism and protects against cancer cachexia-associated muscle wasting[J]. Frontiers in Pharmacology, 2022,13:1086662.

[34]
赵元, 许迟, 吴仙花, 等. 不同浓度水平胍基乙酸对育肥猪肉品质影响的研究[J]. 中国饲料, 2018(17):27-31.

ZHAO Y, XU C, WU X H, et al. Study on effects of dietary supplementation guanidinoacetic acid (GAA) on fattening pork quality[J]. China Feed, 2018(17):27-31. (in Chinese)

[35]
武笑天, 温曌, 李锐瑞, 等. 叶酸对产蛋鸡血液免疫指标和肠道屏障功能的影响[J]. 中国畜牧杂志, 2021, 57(8):174-181.

WU X T, WEN Z, LI R R, et al. Effects of dietary folic acid on serum immune parameters and intestinal barrier function of laying hens[J]. Chinese Journal of Animal Science, 2021, 57(8):174-181. (in Chinese)

[36]
WANG C, LIU C, ZHANG G W, et al. Effects of rumen-protected folic acid and betaine supplementation on growth performance,nutrient digestion,rumen fermentation and blood metabolites in Angus bulls[J]. The British Journal of Nutrition, 2020, 123(10):1109-1116.

[37]
ZHOU R, ZHE L, CHEN F Y, et al. Maternal folic acid and vitamin B12 supplementation during medium to late gestation promotes fetal development via improving placental antioxidant capacity, angiogenesis and amino acid transport[J]. Journal of Agriculture and Food Sciences, 2024, 104(5):2832-2841.

[38]
KALUDJEROVIC J, WARD W E. Adequate but not supplemental folic acid combined with soy isoflavones during early life improves bone health at adulthood in male mice[J]. The Journal of Nutritional Biochemistry, 2013, 24(10):1691-1696.

[39]
钟少华, 何坚, 郭晓玲, 等. 大豆异黄酮和叶酸对同型半胱氨酸糖尿病动物模型免疫功能的影响[J]. 新乡医学院学报, 2008, 25(2):190-192.

ZHONG S H, HE J, GUO X L, et al. Effect of soybean isoflavone and folic acid on immune function of mice models with homocysteine diabetes[J]. Journal of Xinxiang Medical University, 2008, 25(2):190-192. (in Chinese)

[40]
BAKOVIĆ J, YU B Y K, SILVA D, et al. A key metabolic integrator,coenzyme A,modulates the activity of peroxiredoxin 5 via covalent modification[J]. Molecular and Cellular Biochemistry, 2019, 461(1/2):91-102.

[41]
ST PAUL M, SAIBIL S D, HAN S J, et al. Coenzyme a fuels T cell anti-tumor immunity[J]. Cell Metabolism, 2021, 33(12):2415-2427.e6.

文章导航

/