研究论文

饲粮蛋白质水平对妊娠期秦川母牛瘤胃发酵性能、微生物多样性及犊牛初生体况的影响

  • 李化轩 , 1 ,
  • 潘月婷 1, * ,
  • 梁恩堂 1 ,
  • 孙格格 1 ,
  • 陈帅成 1 ,
  • 李果 1 ,
  • 昝林森 , 1, 2, **
展开
  • 1 西北农林科技大学动物科技学院,杨凌 712100
  • 2 国家肉牛改良中心,杨凌 712100
** 昝林森,教授,博士生导师,E-mail:

* 同等贡献作者

李化轩(1999—),男,辽宁沈阳人,硕士研究生,研究方向为反刍动物生产。E-mail:

Copy editor: 武海龙

收稿日期: 2024-07-05

  网络出版日期: 2025-01-10

基金资助

国家重点研发计划(2023YFD1300100)

陕西省畜禽育种“两链”融合重点专项(2022GD-TSLD-46-0102)

陕西省重点研发计划(2022ZDLNY01-01)

杨凌畜牧产业创新中心专项(YLXM-2024-001)

Effects of Dietary Protein Levels on Rumen Fermentation Performance, Microbial Diversity of Qinchuan Cows during Pregnancy and Body Condition of Newborn Calves

  • LI Huaxuan , 1 ,
  • PAN Yueting 1, * ,
  • LIANG Entang 1 ,
  • SUN Gege 1 ,
  • CHEN Shuaicheng 1 ,
  • LI Guo 1 ,
  • ZAN Linsen , 1, 2, **
Expand
  • 1 College of Animal Science and Technology, Northwest A&F University, Yangling 712100, China
  • 2 National Beef Cattle Improvement Center, Yangling 712100, China
** professor, E-mail:

* Contributed equally

Received date: 2024-07-05

  Online published: 2025-01-10

摘要

本试验旨在探究饲粮蛋白质水平对妊娠期秦川母牛瘤胃发酵性能、微生物多样性及犊牛初生体况的影响。选取妊娠中期的健康秦川母牛18头,随机分为3组,每组6个重复,每个重复1头牛。各组分别饲喂粗蛋白质水平为8.08%(LCP组)、10.01%(MCP组)和12.04%(HCP组)的试验饲粮。试验期为140 d。 结果表明: 1)MCP组犊牛体重、腹围显著高于LCP组和HCP组(P<0.05),体高、胸围、体斜长显著高于LCP组(P<0.05);HCP组尻长显著高于LCP组和MCP组(P<0.05)。2)LCP组瘤胃pH和总挥发性脂肪酸(TVFAs)浓度显著低于MCP组和HCP组(P<0.05),HCP组瘤胃氨态氮(NH3-N)浓度显著高于LCP组和MCP组(P<0.05),MCP组瘤胃乙酸浓度显著高于LCP组(P<0.05)。3)MCP组血清高密度脂蛋白和总蛋白含量显著高于HCP组(P<0.05),血清尿素氮含量显著低于HCP组(P<0.05)。4)MCP组瘤胃纤维杆菌门(Fibrobacterota)和纤维杆菌属(Fibrobacter)相对丰度显著高于LCP组和HCP组(P<0.05)。综上所述,饲喂中蛋白质水平(10.01%)饲粮提高了妊娠期秦川母牛血清高密度脂蛋白和总蛋白含量,增加了瘤胃TVFAs浓度及纤维素降解菌相对丰度,并改善了初生犊牛体况。

本文引用格式

李化轩 , 潘月婷 , 梁恩堂 , 孙格格 , 陈帅成 , 李果 , 昝林森 . 饲粮蛋白质水平对妊娠期秦川母牛瘤胃发酵性能、微生物多样性及犊牛初生体况的影响[J]. 动物营养学报, 2025 , 37(1) : 440 -452 . DOI: 10.12418/CJAN2025.038

Abstract

The objective of this study was to investigate the effects of dietary protein levels on rumen fermentation performance, microbial diversity of Qinchuan cows during pregnancy and body condition of newborn calves. Eighteen healthy Qinchuan cows in mid-pregnancy were randomly assigned to 3 groups with 6 replicates per group and 1 cow per replicate. Cows in 3 group were fed experimental diets which the crude protein levels were 8.08% (LCP group), 10.01% (MCP group) and 12.04% (HCP group), respectively. The experiment lasted for 140 days. The results showed as follows: 1) the body weight and abdominal circumference of calves of MCP group were significantly higher than those of LCP and HCP groups (P<0.05), and the body height, abdominal circumference and body diagonal length were significantly higher than those of LCP group (P<0.05); the caudal length of calves of HCP group was significantly higher than that of LCP and MCP groups (P<0.05). 2) The rumen pH and total volatile fatty acids (TVFAs) concentration of LCP group were significantly lower than those of MCP and HCP groups (P<0.05), the rumen ammoniacal nitrogen (NH3-N) concentration of HCP group was significantly higher than that of LCP and MCP groups (P<0.05), and the rumen acetate concentration of MCP group was significantly higher than that inof LCP group (P<0.05). 3) The serum high-density lipoprotein and total protein contents of MCP group were significantly higher than those of HCP group (P<0.05), and the serum urea nitrogen (UN) content was significantly lower than that of HCP group (P<0.05). 4) The rumen Fibrobacteres and Fibrobacter relative abundances of MCP group were significantly higher than those of LCP and HCP groups (P<0.05). In conclusion, feeding medium protein level (10.01%) diet increase the serum high-density lipoprotein and total protein contents, improve the rumen TVFAs concentration and fiber-degrading bacteria relative abundance of Qinchuan cows during pregnancy, and improve the body condition of newborn calves.

繁殖母牛是肉牛产业发展的重要基础,其养殖效益得益于较低的饲养成本及母牛良好的繁殖性能[1]。饲粮营养水平决定着母牛的发情、受胎、妊娠、犊牛成活率等繁殖性能[2]。蛋白质不仅是构成肉牛机体组织细胞的主要成分,又是组成激素、酶、黏液和抗体等的重要物质成分。适宜的饲粮蛋白质水平能促进母牛正常发育、性成熟、受孕以及腹中胎儿的健壮生长。妊娠后期母牛蛋白质缺乏会导致胎儿发育迟缓[3],并出现葡萄糖-胰岛素代谢紊乱的风险[4]。由于青绿饲料缺乏以及玉米、豆粕等饲料原料价格的大幅上涨[5],我国繁殖母牛饲粮中蛋白质缺乏,导致母牛发情迟缓、繁殖障碍多发、犊牛活力低下[6]。因此,为提高母牛繁殖性能和犊牛健康水平,降低母畜饲养成本,本研究旨在探究饲粮蛋白质水平对妊娠期母牛瘤胃发酵性能、微生物多样性及犊牛初生体况的影响,并确定适宜饲粮蛋白质水平,为改善母畜繁殖性能以及降低饲喂成本提供试验依据,为肉牛科学养殖提供思考。

1 材料与方法

1.1 试验设计及饲养管理

试验动物管理和样品采集流程按照西北农林科技大学试验动物管理委员会的《动物福利和伦理规则》进行,并已获得批准(方案编号:NWAFUCAST2018-168)。
选取体重[(358.69±2.36) kg]相近、健康状况良好、饲养管理方式一致的妊娠中期秦川肉牛(秦川牛肉用新品系)18头,随机分为3组,每组6个重复,每个重复1头牛。各组分别饲喂粗蛋白质水平为8.08%(LCP组)、10.01%(MCP组)和12.04%(HCP组)的试验饲粮。试验期为140 d。
本研究在西北农林科技大学国家肉牛改良中心秦川牛良种繁育场进行。试验牛单栏饲养,每个栏内配备自动饮水器,供给干净充足的饮水。试验饲粮参照《肉牛饲养标准》(NY/T 81—2004)营养需要进行配制,其组成及营养水平见表1。试验期间,全株玉米青贮、精料、麦草完全混合后饲喂,每天饲喂2次(06:00、16:00),以前1天采食量的110%进行投喂,以保证充分采食。
表1 试验饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experiment diets (DM basis) %

项目
Items
组别Groups
LCP MCP HCP
原料Ingredients
玉米青贮Corn silage 52.50 49.00 47.50
小麦秸秆Wheat straw 15.00 11.50 12.00
玉米Corn 28.00 23.50 20.50
豆粕Soybean meal 0.50 2.00 5.00
菜籽粕Rapeseed meal 0.50 2.00 5.50
小麦麸Wheat bran 0.50 9.00 6.50
食盐NaCl 1.00 1.00 1.00
磷酸氢钙CaHPO4 1.00 1.00 1.00
预混料Premix1) 1.00 1.00 1.00
合计Total 100.00 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 10.40 10.45 10.41
粗蛋白质CP 8.08 10.01 12.04
中性洗涤纤维NDF 36.81 36.43 36.48
酸性洗涤纤维ADF 22.13 20.97 21.49
钙Ca 0.49 0.49 0.52

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 2 560 IU,VD 3 550 IU,VE 25 mg,Fe 61 mg,Cu 18 mg,Mn 47 mg,Zn 49 mg,Co 0.12 mg,I 0.31 mg,Se 0.36 mg。

2)代谢能为计算值[7],其余为实测值。ME was a calculated value[7], while the others were measured values.

1.2 样品采集

母牛分娩前第7天,晨饲后2 h,采用入口式瘤胃管采集瘤胃液,废弃前50 mL混有唾液及口腔分泌物的液体后,抽取30 mL瘤胃液,经4层纱布过滤后立即测定pH,剩余瘤胃液分装于5 mL离心管,液氮速冻后-80 ℃保存,分别用于瘤胃发酵性能测定及微生物16S rRNA测序。采用一次性静脉采血针空腹采集试验牛颈外静脉血液,室温静置4~6 h后离心取上清,用于血清生化指标测定。

1.3 指标测定

1.3.1 饲粮营养成分

收集饲喂青贮、小麦秸秆以及各组的精料样品置于烘箱中65 ℃烘干72 h,计算干物质含量。烘干后的样品粉碎过1 mm筛,常温密封保存,用于饲粮营养成分测定。粗蛋白质含量参照国标GB/T 6432—2018(半微量法)采用全自动凯氏定氮仪(UDK159,VELP,意大利)测定,中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量分别参照国标GB/T 20806—2022(滤袋法,ANKOM F57 filter bags)和农业行业标准NY/T 1459—2022(滤袋法,ANKOM XT4 filter bags)用全自动纤维仪(ANKOM 2000,ANKOM,美国)测定,钙(Ca)含量采用高锰酸钾法(GB/T 6436—2018)测定。

1.3.2 犊牛初生体况

犊牛出生当天空腹称重,并测定体高、胸围、腹围、管围、体斜长、坐骨端宽、十字部高和尻长。

1.3.3 瘤胃发酵性能及血清生化指标

瘤胃液中挥发性脂肪酸(VFAs)浓度通过气相色谱-氢火焰离子化检测器(GC-6850,安捷伦,美国),采用内标法(巴豆酸为内标)进行测定;氨态氮(ammonia nitrogen,NH3-N)浓度通过紫外-可见分光光度计(Cary-60,安捷伦,美国),采用比色法进行测定。血清生化指标采用全自动血清生化分析仪(BK-400,博科控股集团有限公司)进行测定。

1.3.4 微生物多样性

1.3.4.1 DNA提取与测序

使用TIANamp Stool DNA Kit(北京天根生化科技有限公司)提取瘤胃液中微生物总DNA,根据保守区设计获得引物序列(F:ACTCCTACGGGAGGCAGCA;R:GGACTACHVGGGTWTCTAAT),在引物末端加上测序接头后进行PCR扩增。PCR产物经纯化、定量和均一化后生成测序文库,质检合格后用Illumina NovaSeq 6000进行测序。测序过程委托北京百迈客生物科技有限公司完成。

1.3.4.2 生物信息学分析

使用Trimmomatic v0.33[8]软件,对测序得到的Raw Reads进行过滤,采用Cutadapt v1.9.1[9]软件识别并去除引物序列(允许最大错配率20%,最小覆盖度80%),使用Usearch v10[10]对双端reads进行拼接后,采用UCHIME v8.1[11]去除嵌合体。使用QIIME2 2020.6[12]中的DADA2[13]算法去噪,以测序所有序列数的0.005%作为阈值过滤扩增子序列变异体(amplicon sequence variants,ASVs)。选择SILVA参考数据库(Release138, http://www.arb-silva.de),使用朴素贝叶斯分类器(Naïve Bayes classifier)对特征序列进行注释,得到物种分类信息,过滤丰度小于2的特征序列。使用QIIME2 2020.6[12]软件对α多样性(Chao1指数和Shannon指数)、β多样性进行评估。使用STAMP(v2.1.3)[14]软件,在门水平和属水平上进行瘤胃微生物的差异分析,过滤未分类及相对丰度小于0.1%的物种。采用PICRUSt2软件进行KEGG微生物群落功能预测[15]

1.4 数据统计分析

试验数据用Excel 2016进行整理,采用SPSS 27.0软件进行单因素方差分析(one-way ANOVA)和Duncan氏法多重比较检验。试验结果数据采用平均值和标准误(SE)表示,P<0.05为差异显著。

2 结果与分析

2.1 饲粮蛋白质水平对初生犊牛体况的影响

表2可见,MCP组犊牛体重、腹围显著高于LCP组和HCP组(P<0.05),MCP组犊牛体高、胸围、体斜长显著高于LCP组(P<0.05),HCP组犊牛尻长显著高于LCP组和MCP组(P<0.05)。饲粮蛋白质水平对犊牛坐骨端宽、管围和十字部高没有显著影响(P>0.05)。
表2 饲粮蛋白质水平对初生犊牛体况的影响

Table 2 Effects of dietary protein levels on body condition of newborn calves

项目
Items
组别Groups 标准误
SE
P
P-value
LCP MCP HCP
体重Body weight/kg 21.84b 29.40a 25.29b 0.96 0.001
体高Body height/cm 65.89b 70.70a 68.29ab 0.82 0.048
腹围Abdominal circumference/cm 62.73b 71.71a 66.09b 1.17 0.002
胸围Chest circumference/cm 64.40b 70.44a 67.30ab 0.89 0.013
体斜长Body diagonal length/cm 52.06b 58.80a 54.21ab 1.14 0.039
坐骨端宽Sciatic wide/cm 4.19 4.60 4.36 0.12 0.377
管围Cannon circumference/cm 9.50 10.24 10.01 0.18 0.243
十字部高Cross height/cm 69.26 73.96 69.61 1.07 0.132
尻长Caudal length/cm 17.80b 19.17b 22.07a 0.58 0.003

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 饲粮蛋白质水平对妊娠期秦川母牛瘤胃发酵性能的影响

表3可见,LCP组瘤胃pH和总挥发性脂肪酸(TVFAs)浓度显著低于MCP组和HCP组(P<0.05),HCP组瘤胃NH3-N浓度显著高于LCP组和MCP组(P<0.05),MCP组瘤胃乙酸浓度显著高于LCP组(P<0.05)。饲粮蛋白质水平对妊娠期秦川母牛瘤胃丙酸、异丁酸、丁酸、异戊酸、戊酸浓度及乙酸/丙酸没有显著影响(P>0.05)。
表3 饲粮蛋白质水平对妊娠期秦川母牛瘤胃发酵性能的影响

Table 3 Effects of dietary protein levels on rumen fermentation performance of Qinchuan cows during pregnancy

项目
Items
组别Groups 标准误
SE
P
P-value
LCP MCP HCP
pH 6.60b 6.86a 6.94a 0.05 0.014
氨态氮NH3-N/(mmol/L) 5.50b 5.94b 7.90a 0.39 0.016
乙酸Acetate/(mmol/L) 60.29b 80.17a 70.37ab 2.87 0.006
丙酸Propionate/(mmol/L) 22.67 24.80 24.60 0.43 0.076
异丁酸Isobutyrate/(mmol/L) 2.00 2.04 2.05 0.07 0.962
丁酸Butyrate/(mmol/L) 15.20 15.65 16.57 0.57 0.641
异戊酸Isovalerate/(mmol/L) 2.31 2.14 2.06 0.13 0.751
戊酸Valerate/(mmol/L) 1.98 1.69 1.55 0.09 0.155
总挥发性脂肪酸TVFAs/(mmol/L) 104.45b 126.50a 117.19a 2.91 <0.001
乙酸/丙酸Acetate/propionate 2.69 3.25 2.86 0.19 0.146

2.3 饲粮蛋白质水平对妊娠期秦川母牛血清生化指标的影响

2.3.1 血清代谢相关指标

表4可见,MCP组血清高密度脂蛋白含量显著高于HCP组(P<0.05),MCP组血清总蛋白含量显著高于LCP组和HCP组(P<0.05),MCP组血清尿素氮含量显著低于HCP组(P<0.05)。饲粮蛋白质水平对妊娠期秦川母牛血清总胆固醇、甘油三酯、总胆汁酸、游离脂肪酸、β-羟丁酸、葡萄糖、乳酸和白蛋白含量没有显著影响(P>0.05)。
表4 饲粮蛋白质水平对妊娠期秦川母牛血清代谢相关指标的影响

Table 4 Effects of dietary protein levels on serum metabolic related parameters of Qinchuan cows during pregnancy

项目
Items
组别Groups 标准误
SE
P
P-value
LCP MCP HCP
总胆固醇TC/(mmol/L) 2.45 2.72 2.21 0.09 0.068
甘油三酯TG/(mmol/L) 0.33 0.34 0.32 0.02 0.888
总胆汁酸TBA/(μmol/L) 30.98 26.01 34.13 3.30 0.616
高密度脂蛋白HDL/(mmol/L) 1.25ab 1.41a 1.15b 0.04 0.034
游离脂肪酸NEFA/(mmol/L) 0.58 0.46 0.57 0.07 0.731
β-羟丁酸β-HB/(mmol/L) 0.35 0.32 0.39 0.03 0.558
葡萄糖GLU/(mmol/L) 2.18 2.46 2.09 0.07 0.063
乳酸LAC/(mg/dL) 66.73 59.56 46.80 3.95 0.125
总蛋白TP/(g/L) 67.93b 74.70a 67.66b 1.31 0.030
白蛋白ALB/(g/L) 27.65 26.76 27.85 0.59 0.322
尿素氮UN/(mmol/L) 2.49ab 2.02b 2.88a 0.13 0.011

2.3.2 血清酶活性相关指标

表5可见,饲粮蛋白质水平对妊娠期秦川母牛血清超氧化物歧化酶、γ-谷氨酰胺基转移酶、谷丙转氨酶、谷草转氨酶活性没有显著影响(P>0.05)。
表5 饲粮蛋白质水平对妊娠期秦川母牛血清酶活性相关指标的影响

Table 5 Effects of dietary protein levels on serum enzyme activity related parameters of Qinchuan cows during pregnancy

项目
Items
组别Groups 标准误
SE
P
P-value
LCP MCP HCP
超氧化物歧化酶SOD/(U/mL) 137.00 127.71 136.17 3.79 0.479
γ-谷氨酰胺基转移酶GGT/(U/L) 25.50 29.57 27.67 1.27 0.441
谷丙转氨酶ALT/(U/L) 21.80 20.17 21.15 0.98 0.805
谷草转氨酶AST/(U/L) 62.43 69.51 66.43 1.98 0.355

2.4 饲粮蛋白质水平对妊娠期秦川母牛瘤胃微生物多样性的影响

2.4.1 α多样性和β多样性
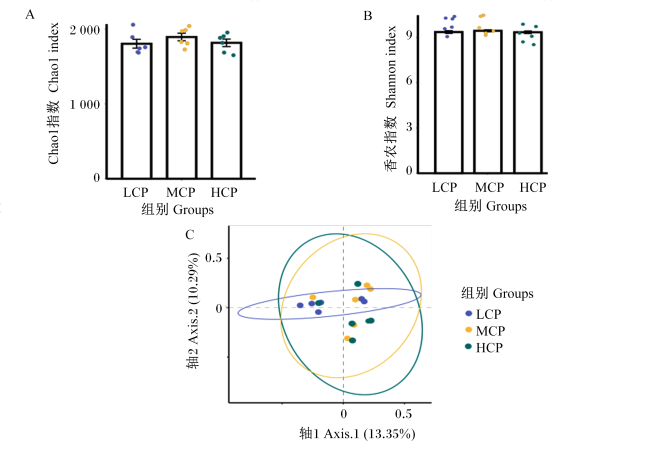
通过16S rRNA测序,从36个样本中共获得了31 889操作分类单元(OTU)用于后续分析,使用Chao1指数和Shannon指数评估瘤胃微生物群落α多样性。由图1可见,各组瘤胃微生物Chao1指数和Shannon指数均无显著差异(P>0.05);基于OTU水平的主坐标分析,没有微生物群落明显区分开,使用基于Bray-Curtis距离的置换多元方差分析显示微生物群落相似相似性拟和度较低,分组差异小(R2=0.141,P=0.097),表明不同蛋白质水平对妊娠期秦川母牛瘤胃微生物群落空间异质性小,群落相似度较高。
图1 饲粮蛋白质水平妊娠期秦川母牛瘤胃微生物多样性的影响

数据柱标相同或无小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of dietary protein levels on rumen microbial diversity of Qinchuan cows during pregnancy

Value columns with the same or no small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.4.2 微生物组成

在所有瘤胃液样品中,共有31个细菌门、1 272个细菌属被检测到。表6显示了检测样品在门水平和属水平上相对丰度≥0.5%的微生物组成,其中拟杆菌门(Bacteroidota)和厚壁菌门(Firmicutes)为优势菌门,普雷沃氏菌属(Prevotella)为优势菌属,相对丰度分别为43.8%、43.3%和17.6%。
表6 饲粮蛋白质水平对妊娠期秦川母牛瘤胃微生物相对丰度的影响

Table 6 Effects of dietary protein level on rumen microbial relative abundance of Qinchuan cows during pregnancy

项目
Items
组别Groups 标准误
SE
P
P-value
LCP MCP HCP
拟杆菌门Bacteroidota 44.19 43.60 43.96 2.03 0.994
普雷沃氏菌属Prevotella 19.55 15.99 17.53 1.28 0.554
理妍菌科RC9肠道群Rikenellaceae_RC9_gut_group 5.95 6.34 7.11 0.57 0.721
普雷沃氏菌科UCG 003 Prevotellaceae_UCG_003 3.73 3.83 3.42 0.47 0.940
普雷沃氏菌科UCG 001 Prevotellaceae_UCG_001 2.97 2.80 2.63 0.17 0.733
厚壁菌门Firmicutes 42.19 43.34 44.01 2.01 0.940
琥珀酸菌属Succiniclasticum 4.31 4.34 5.12 0.32 0.527
瘤胃球菌属Ruminococcus 2.75 3.12 3.44 0.46 0.848
NK4A214群NK4A214_group 2.07 2.40 3.12 0.27 0.277
糖酵菌属Saccharofermentans 2.43 2.88 2.12 0.24 0.451
毛螺菌科XPB1014群Lachnospiraceae_XPB1014_group 1.95 1.23 1.30 0.25 0.453
丁酸弧菌属Butyrivibrio 1.39 0.89 0.96 0.14 0.278
毛螺菌科AC2044群Lachnospiraceae_AC2044_group 1.13 1.10 0.80 0.09 0.305
变形菌门Proteobacteria 5.12 3.77 3.06 0.78 0.579
琥珀酸菌科UCG_002 Succinivibrionaceae_UCG_002 2.47 1.68 0.97 0.74 0.737
髌骨菌门Patescibacteria 2.98 2.44 3.50 0.22 0.147
假丝酵母菌属Candidatus_Saccharimonas 1.89 1.48 2.10 0.16 0.304
疣微菌门Verrucomicrobiota 1.57 2.07 1.68 0.20 0.594
螺旋体菌门Spirochaetota 1.09 1.36 1.06 0.13 0.617
密螺旋体属Treponema 0.94 1.07 0.86 0.13 0.797
蓝菌门Cyanobacteria 0.74 0.51 0.78 0.13 0.652
纤维杆菌门Fibrobacterota 0.30b 1.11a 0.36b 0.11 <0.001
纤维杆菌属Fibrobacter 0.30b 1.11a 0.36b 0.11 <0.001
热脱硫杆菌门Desulfobacterota 0.51 0.51 0.50 0.04 0.987
对门水平和属水平上的差异微生物进行分析,结果表明,在门水平上,MCP组瘤胃纤维杆菌门(Fibrobacterota)相对丰度显著高于LCP组和HCP组(P<0.05),饲粮蛋白质水平对妊娠期秦川母牛瘤胃其余菌门相对丰度没有显著影响(P>0.05)。在属水平上,MCP组瘤胃纤维杆菌属(Fibrobacter)相对丰度显著高于LCP组和HCP组(P<0.05),饲粮蛋白质水平对妊娠期秦川母牛瘤胃其余菌属相对丰度没有显著影响(P>0.05)。

2.4.3 微生物标志物筛选

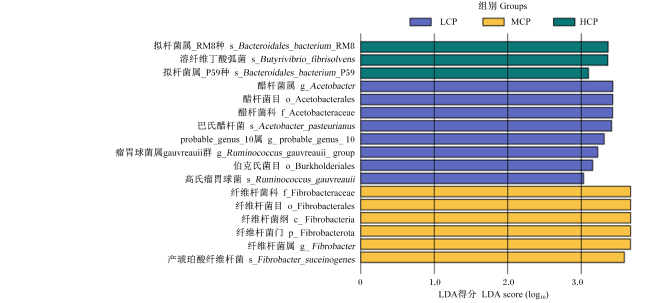
图2可见,使用线性判别分析(LDA)对妊娠期各组秦川母牛瘤胃微生物标志物进行筛选(LDA≥3,P<0.05)。共鉴定到17个差异显著的细菌分类群,其中醋杆菌属(Acetobacter)和醋杆菌目(Acetobacterales)、纤维杆菌科(Fibrobacteraceae)和纤维杆菌目(Fibrobacterales)、拟杆菌属_RM8种(Bacteroidales_bacterium_RM8)和绒纤维丁酸弧菌(Butyrivibrio_fibrisolvens)分别在LCP、MCP、HCP组中显著富集(P<0.05),可作为妊娠期各组秦川母牛的瘤胃微生物标志物用于组间鉴别。
图2 各组之间妊娠期秦川母牛瘤胃微生物标志物的筛选

Fig.2 Identification of rumen microbial biomarkers among all groups of Qinchuan cows during pregnancy

2.4.4 微生物功能预测

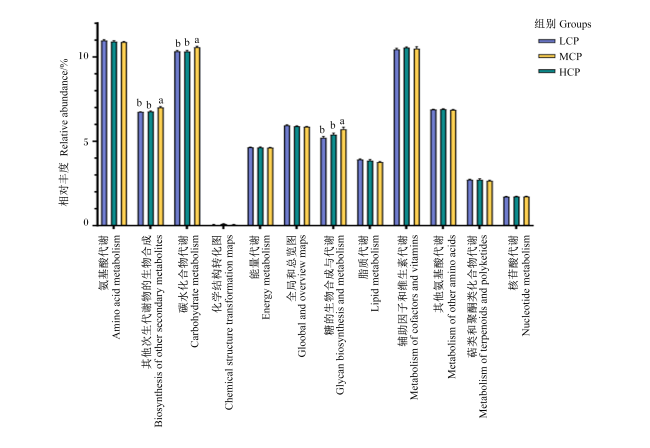
图3可见,使用PICRUSt2软件对秦川牛瘤胃微生物进行了基于OTU的功能预测。对层级2的KEGG通路进行差异分析,发现妊娠期有13个涉及代谢过程的KEGG通路。其中,MCP组其他次生代谢物的生物合成(biosynthesis of other secondary metabolites)、碳水化合物代谢(carbohydrate metabolism)、糖的生物合成与代谢(glycan biosynthesis and metabolism)的相对丰度显著高于LCP组和HCP组(P<0.05)。
图3 各组之间妊娠期秦川母牛瘤胃微生物功能预测

Fig.3 Prediction of rumen microbial functions among all groups of Qinchuan cows during pregnancy

2.4.5 微生物共现网络分析

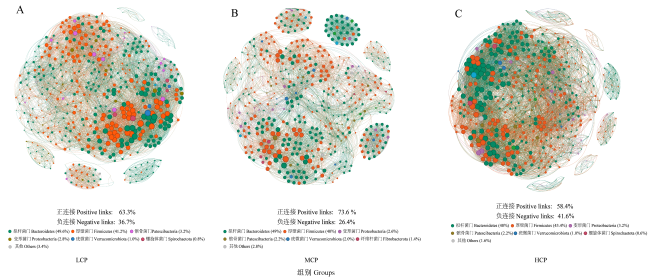
图4表7可见,使用Gephi构建了妊娠期秦川牛瘤胃微生物共现网络,与LCP组相比,MCP组微生物共现网络的边降低了23.1%,平均度降低了23.1%,模块化升高了23.6%,表明中蛋白质饲粮在一定程度上降低了瘤胃微生物群落结构的复杂性,而提高了群落结构的稳定性。
图4 各组妊娠期秦川母牛瘤胃微生物共现网络

每个节点表示单个OTU,其大小与节点度呈正相关,颜色按门划分;边表示Spearman相关性(|r|>0.60和P<0.05)。

Fig.4 Rumen microbial co-occurrence network in all groups of Qinchuan cows during pregnancy

Each node represents a single OTU, with the size positively correlated with the degree of the node, and the color coded by phylum; edges represent Spearman correlations (|r|>0.60 and P<0.05).

表7 瘤胃微生物共现网络的拓扑结构分析

Table 7 Topological structure analysis of rumen microbial co-occurrence network

拓扑结构
Topological features
组别Groups
LCP MCP HCP
边Edges 8 458 6 508 8 213
网络直径Network diameter 13.00 11.00 10.00
模块化Modularity 0.57 0.70 0.54
聚类系数Clustering coefficient 0.30 0.35 0.30
图密度Graph density 0.03 0.03 0.03
平均度Average degree 16.92 13.02 16.43
平均路径长度Average path length 2.95 3.24 2.94

3 讨论

3.1 饲粮蛋白质水平对犊牛初生体况的影响

饲粮营养水平决定了母牛受胎、妊娠、犊牛初生重等繁殖性能[2],蛋白质水平是影响犊牛生长发育的重要因素[16]。适宜的蛋白质水平能够提高母牛繁殖性能,而过高的蛋白质水平会导致母牛过肥,造成难产等问题[17]。研究发现,中蛋白质水平(9.54%)饲粮饲喂西门塔尔母牛,增加了犊牛初生重,并显著提高了犊牛初生体高[18]。本研究中,MCP组犊牛初生体重、体高、胸围、腹围、体斜长显著高于LCP组,3组之间坐骨端宽、管围、十字部高虽无显著差异,但均以MCP组最高,表明中蛋白质水平(10.01%)饲粮饲喂妊娠期秦川母牛可以改善犊牛的初生体况。

3.2 饲粮蛋白质水平对妊娠期秦川母牛瘤胃发酵性能和微生物多样性的影响

瘤胃pH、NH3-N是评估反刍动物瘤胃发酵状态的重要指标[19]。瘤胃pH是反映瘤胃酸碱度的指标,对瘤胃发育和反刍动物健康至关重要[20]。NH3-N是反刍动物分解饲料蛋白质的重要产物,是微生物蛋白质合成的主要原料[21]。本研究中,秦川牛瘤胃pH和NH3-N浓度均随着饲粮蛋白质水平增加而明显升高。研究表明,饲粮蛋白质水平(10%~14%)增加能够提高荷斯坦公牛瘤胃pH和NH3-N浓度[22],这与本研究结果一致。饲粮蛋白质进入瘤胃后,在微生物作用下降解生成氨,氨具有碱性,产生的氨会导致瘤胃pH的升高,而较高的蛋白质摄入为瘤胃蛋白质降解微生物提供了更多的可利用底物,进一步提高了瘤胃NH3-N浓度[23-24]。这进一步证实了本研究中HCP组秦川母牛较高的瘤胃pH和NH3-N浓度。但也有研究指出,饲粮蛋白质水平(15.6%~18%)对荷斯坦奶牛瘤胃pH没有显著影响[22],这可能与牛的品种、饲粮蛋白质水平以生理阶段的差异有关[22,25]
瘤胃微生物发酵结构性碳水化合物产生VFA,为反刍动物提供了70%~80%能量来源[26]。本研究中,MCP组和HCP组秦川母牛瘤胃TVFAs浓度显著高于LCP组,这与在水牛及牦牛上的研究结果一致,即随着饲粮蛋白质水平的提高,瘤胃TVFAs浓度也明显升高[27-28]。这可能是因为较高的饲粮蛋白质摄入为瘤胃微生物的生长和繁殖提供了丰富的氮源,提高了微生物发酵速率,从而产生更高浓度的挥发性脂肪酸[29-30]。乙酸是瘤胃发酵的主要产物之一,适量的蛋白质摄入有助于维持瘤胃微生物的平衡,促进乙酸生成[31]。本研究中,MCP组瘤胃乙酸浓度较LCP组显著升高;HCP组瘤胃乙酸浓度略高于LCP组,但差异不显著。HCP组乙酸浓度的降低可能与较高的NH3-N浓度有关,有研究表明过多的NH3-N会抑制微生物活性,进而影响瘤胃乙酸的生成[24]。此外,乙酸的生成更多地依赖于纤维的发酵,瘤胃中的纤维分解菌可利用碳水化合物产生乙酸[32]。MCP组较高的纤维降解菌(纤维杆菌门和纤维杆菌属)相对丰度进一步证实了乙酸浓度的变化。
一般来说,微生物群落多样性越高,群落系统结构越稳定[33]。本研究中,瘤胃微生物丰富度(Chao1指数)与多样性(Shannon指数)在各组之间均无显著差异。在荷斯坦公牛上的研究发现,饲粮蛋白质水平(19%和22%)对瘤胃微生物多样性没有显著影响[34],这与本研究结果一致。但也有研究发现,牦牛瘤胃微生物丰富度与多样性随着饲粮蛋白质水平(10%~12%)降低而明显下降[35]。这可能与不同研究的饲粮蛋白质水平以及动物品种差异有关[36]。厚壁菌门、拟杆菌门是反刍动物瘤胃中相对丰度最高的两大优势菌门[37]。厚壁菌门拥有大量参与能量代谢相关的酶,产生的酶通过分解有机物为机体提供能量[38]。拟杆菌门主要通过产生水解酶参与碳水化合物代谢[39]。本研究中,MCP组秦川母牛瘤胃纤维杆菌门和纤维杆菌属相对丰度显著高于LCP组和HCP组,碳水化合物代谢、糖的生物合成与代谢等通路相对丰度也显著高于LCP组和HCP组。纤维杆菌属是重要的纤维分解菌属,可分解纤维素产生VFAs,在发酵结构性碳水化合物产生VFAs过程中发挥主要作用[40-41]。MCP组秦川牛瘤胃纤维降解菌相对丰度的升高加快了结构性碳水化合物降解速率,从而生成更多的乙酸为机体提供能量[42]。此外,共现网络分析表明,MCP组瘤胃微生物群落复杂性降低,但稳定性提高,这可能是由于纤维杆菌属相对丰度的升高在一定程度上加速了纤维素的降解过程,增加了分解底物的种类,提供了更多样化的底物供其他菌利用,降低了种间竞争,从而提高了微生物群落的稳定性[43]

3.3 饲粮蛋白质水平对妊娠期秦川母牛血清生化指标的影响

血清生化指标能反映牛的生理健康状况,是机体代谢水平最灵敏的指标之一[44]。血液代谢产物会随饲粮营养水平变化而改变,因此饲饲营养水平变化对血清生化指标的影响能够反映动物机体营养物质利用的情况[45]。血清总蛋白与尿素氮含量可以反映动物对蛋白质的利用效率[33],尿素氮含量越高,蛋白质利用率越低[46]。葡萄糖是机体主要能量来源,不仅提供能量,还参与了脂肪和蛋白质的合成[47]。本研究中,MCP组血清总蛋白含量显著高于LCP组和HCP组,血清尿素氮含量显著低于HCP组。在牦牛上的研究表明,饲喂高蛋白质水平的饲粮显著提高了牦牛血清尿素氮含量,但对血清葡萄糖含量没有显著影响[48],而饲喂低蛋白质水平的饲粮则降低了血清尿素氮含量,并提高了血清总蛋白含量[49]。这与本研究结果一致,表明过高的饲粮蛋白质水平会增加血清尿素氮含量,而适量的蛋白质水平则能够降低血清尿素氮含量并提高总蛋白含量。这可能是由于饲粮蛋白质水平增加,瘤胃释放氨的速率加快,过量的氨通过瘤胃壁吸收到血液中,经肝脏转化为尿素氮[50]。因此,较高的饲粮蛋白质水平通常会导致血清中尿素氮浓度的升高[46]。血清谷丙转氨酶、谷草转氨酶与γ-谷氨酰胺基转移酶活性反映了动物肝脏机能状况,其含量上升提示肝脏机能受损。血清白蛋白主要由肝脏合成,与机体免疫系统相关[51];血清乳酸能够反映肝脏代谢速率[52];血清超氧化物歧化酶是机体重要的抗氧化物酶,能反映动物机体抗氧化的总体水平[53]。本研究中,各组之间血清谷丙转氨酶、谷草转氨酶、γ-谷氨酰胺基转移酶、超氧化物歧化酶活性和白蛋白、乳酸含量均无显著差异,说明饲粮蛋白质水平对妊娠期秦川母牛肝脏代谢及免疫功能未产生负面影响。

4 结论

① 中蛋白质水平(10.01%)饲粮饲喂妊娠期秦川母牛,增加了犊牛初生体重,并提高了体高、胸围、腹围及体斜长。
② 中、高蛋白质水平(10.01%、12.04%)饲粮饲喂妊娠期秦川母牛,提高了瘤胃pH和TVFAs浓度。
③ 中蛋白质水平(10.01%)饲粮饲喂妊娠期秦川母牛,增加了血清高密度脂蛋白、总蛋白含量,并提高了瘤胃纤维素降解菌相对丰度,促进了碳水化合物代谢及糖的生物合成与代谢等过程,并提高了微生物群落的稳定性。
[1]
脱征军, 张建勇, 肖爱萍, 等. 不同营养水平日粮对妊娠期西门塔尔牛及其犊牛的影响[J]. 安徽农业科学, 2023, 51(17):81-86.

TUO Z J, ZHANG J Y, XIAO A P, et al. Effects of diets with different nutritional levels on gestational Simmenmal cows and their calves[J]. Journal of Anhui Agricultural Sciences, 2023, 51(17):81-86. (in Chinese)

[2]
张卜然. 提高母牛繁殖力的措施[J]. 山东畜牧兽医, 2021, 42(1):23-24.

ZHANG B R. Measures to improve the fertility of cows[J]. Shandong Journal of Animal Science and Veterinary Medicine, 2021, 42(1):23-24. (in Chinese)

[3]
MARESCA S, LOPEZ VALIENTE S, RODRIGUEZ A M, et al. Effect of protein restriction of bovine dams during late gestation on offspring postnatal growth,glucose-insulin metabolism and IGF-1 concentration[J]. Livestock Science, 2018,212:120-126.

[4]
GARDNER D S, TINGEY K, VAN BON B W M, et al. Programming of glucose-insulin metabolism in adult sheep after maternal undernutrition[J]. American Journal of Physiology:Regulatory, Integrative and Comparative Physiology, 2005, 289(4):R947-R954.

[5]
张乃锋. 畜禽饲料配方结构多元化技术研究进展[J]. 饲料工业, 2021, 42(20):1-6.

ZHANG N F. Research progress on technology of diversified formula structures in animal feed[J]. Feed Industry, 2021, 42(20):1-6. (in Chinese)

[6]
蔡奎善. 母牛繁殖性能的影响因素及提高措施[J]. 现代畜牧科技, 2017(9):61.

CAI K S. The influence factors of reproductive performance and improving measures of cows[J]. Modern Animal Husbandry Science & Technology, 2017(9):61. (in Chinese)

[7]
NRC. Nutrient requirements of beef cattle[S]. 8th ed.Washington,D.C.:The National Academies Press, 2016.

[8]
BOLGER A M, LOHSE M, USADEL B. Trimmomatic:a flexible trimmer for Illumina sequence data[J]. Bioinformatics, 2014, 30(15):2114-2120.

[9]
MARTIN M. Cutadapt removes adapter sequences from high-throughput sequencing reads[J]. EMBnet.journal, 2011, 17(1):10-12.

[10]
EDGAR R C. UPARSE:highly accurate OTU sequences from microbial amplicon reads[J]. Nature Methods, 2013, 10(10):996-998.

[11]
EDGAR R C, HAAS B J, CLEMENTE J C, et al. UCHIME improves sensitivity and speed of chimera detection[J]. Bioinformatics, 2011, 27(16):2194-2200.

DOI PMID

[12]
BOLYEN E, RIDEOUT J R, DILLON M R, et al. Reproducible,interactive,scalable and extensible microbiome data science using QIIME 2[J]. Nature Biotechnology, 2019, 37(8):852-857.

[13]
CALLAHAN B J, MCMURDIE P J, ROSEN M J, et al. DADA2:high-resolution sample inference from illumina amplicon data[J]. Nature Methods, 2016, 13(7):581-583.

[14]
PARKS D H, TYSON G W, HUGENHOLTZ P, et al. STAMP:statistical analysis of taxonomic and functional profiles[J]. Bioinformatics, 2014, 30(21):3123-3124.

[15]
GAVIN M D, VINCENT J M, JESSE Z, et al. PICRUSt2:an improved and extensible approach for metagenome inference[DB/OL].(2019-09-14)[2024-04-01]. https://www.biorxiv.org/content/10.1101/672295v1.

[16]
李辉, 刁其玉, 张乃锋, 等. 不同蛋白质水平对犊牛消化代谢及血清生化指标的影响[J]. 中国农业科学, 2008, 41(4):1219-1226.

LI H, DIAO Q Y, ZHANG N F, et al. Effect of different protein levels on nutrient digestion metabolism and serum biochemical indexes in calves[J]. Scientia Agricultura Sinica, 2008, 41(4):1219-1226. (in Chinese)

[17]
夏成, 朱玉哲, 徐鹏, 等. 过瘤胃脂肪对泌乳奶牛生殖机能的影响[J]. 中国奶牛, 2010(10):35-38.

XIA C, ZHU Y Z, XU P, et al. Effect of rumen bypass protected fat on reproductive function of lactating Cows[J]. China Dairy Cattle, 2010(10):35-38. (in Chinese)

[18]
邹松岩, 王勇胜, 孙晓玉, 等. 揉碎大豆秸秆对西门塔尔母牛繁殖性能及犊牛生长性能的影响[J]. 饲料研究, 2022, 45(10):1-5.

ZOU S Y, WANG Y S, SUN X Y, et al. Effect of crushing soybean straw on reproductive performance of Simmental cows and growth performance of calves[J]. Feed Research, 2022, 45(10):1-5. (in Chinese)

[19]
YANG C T, SI B W, DIAO Q Y, et al. Rumen fermentation and bacterial communities in weaned Chahaer lambs on diets with different protein levels[J]. Journal of Integrative Agriculture, 2016, 15(7):1564-1574.

[20]
BEAUCHEMIN K A, YANG W Z. Effects of physically effective fiber on intake,chewing activity,and ruminal acidosis for dairy cows fed diets based on corn silage[J]. Journal of Dairy Science, 2005, 88(6):2117-2129.

[21]
BACH A, CALSAMIGLIA S, STERN M D. Nitrogen metabolism in the rumen[J]. Journal of Dairy Science, 2005, 88(Suppl.):E9-E21.

[22]
夏传齐. 营养水平对荷斯坦奶公牛生长性能、血液生化指标、瘤胃发酵、屠宰性能及肉品质的影响[D]. 博士学位论文. 北京: 中国农业大学, 2018.

XIA C Q. Effects of dietary nutrition levels on growth performance,plasma parameters,rumen fermentation,carcass characteristics and meat quality of Holstein bulls[D].Ph.D.Thesis. Beijing: China Agricultural University, 2018. (in Chinese)

[23]
RUSSELL J B, RYCHLIK J L. Factors that alter rumen microbial ecology[J]. Science, 2001, 292(5519):1119-1122.

DOI PMID

[24]
CALSAMIGLIA S, FERRET A, REYNOLDS C K, et al. Strategies for optimizing nitrogen use by ruminants[J]. Animal, 2010, 4(7):1184-1196.

DOI PMID

[25]
REYNOLDS C K, KRISTENSEN N B. Nitrogen recycling through the gut and the nitrogen economy of ruminants:an asynchronous symbiosis[J]. Journal of Animal Science, 2008, 86(Suppl.14):E293-E305.

[26]
CHAUCHEYRAS-DURAND F, OSSA F. REVIEW:the rumen microbiome:composition,abundance,diversity,and new investigative tools[J]. The Professional Animal Scientist, 2014, 30(1):1-12.

[27]
HE S C, ZHANG R Y, WANG R J, et al. Responses of nutrient utilization,rumen fermentation and microorganisms to different roughage of dairy buffaloes[J]. BMC Microbiology, 2024, 24(1):188.

[28]
WANG H B, FU J H, WU X, et al. Effects of dietary protein level and rumen-protected methionine and lysine on growth performance,rumen fermentation and serum indexes for yaks[J]. Animals, 2024, 14(12):1751.

[29]
HRISTOV A N, ETTER R P, ROPP J K, et al. Effect of dietary crude protein level and degradability on ruminal fermentation and nitrogen utilization in lactating dairy cows[J]. Journal of Animal Science, 2004, 82(11):3219-3229.

PMID

[30]
RIUS A G, KITTELMANN S, MACDONALD K A, et al. Nitrogen metabolism and rumen microbial enumeration in lactating cows with divergent residual feed intake fed high-digestibility pasture[J]. Journal of Dairy Science, 2012, 95(9):5024-5034.

DOI PMID

[31]
DIJKSTRA J, FORBES J, FRANCE J. Quantitative aspects of ruminant digestion and metabolism[M]. 2nd Ed.USA: CABI Digital Library, 2005.

[32]
HRISTOV A N, ROPP J K. Effect of dietary carbohydrate composition and availability on utilization of ruminal ammonia nitrogen for milk protein synthesis in dairy cows[J]. Journal of Dairy Science, 2003, 86(7):2416-2427.

PMID

[33]
PTACNIK R, SOLIMINI A G, ANDERSEN T, et al. Diversity predicts stability and resource use efficiency in natural phytoplankton communities[J]. Proceedings of the National Academy of Sciences of the United States of America, 2008, 105(13):5134-5138.

DOI PMID

[34]
郭凯, 唐梦琪, 霍倩倩, 等. 不同蛋白质水平饲粮对犊牛瘤胃微生物区系多样性及组成的影响[J]. 家畜生态学报, 2019, 40(11):22-28.

GUO K, TANG M Q, HUO Q Q, et al. Effects of diets with different protein level on rumen bacterial community in calves[J]. Journal of Domestic Animal Ecology, 2019, 40(11):22-28. (in Chinese)

[35]
姜南, 李学威, 张楠, 等. 日粮不同能量和蛋白质水平对生长期牦牛瘤胃发酵参数及瘤胃菌群的影响[J]. 中国草食动物科学, 2024, 44(2):18-26.

JIANG N, LI X W, ZHANG N, et al. Effect of different dietary energy and protein levels on rumen fermentation parameters and rumen microfiora in growing yaks[J]. China Herbivore Science, 2024, 44(2):18-26. (in Chinese)

[36]
LIU X J, YANG Z M, YANG J F, et al. A comparative study of growth performance,blood biochemistry,rumen fermentation,and ruminal and fecal bacterial structure between yaks and cattle raised under high concentrate feeding conditions[J]. Microorganisms, 2023, 11(10):2399.

[37]
MIZRAHI I, WALLACE R J, MORAÏS S. The rumen microbiome:balancing food security and environmental impacts[J]. Nature Reviews:Microbiology, 2021, 19(9):553-566.

[38]
KAAKOUSH N O. Insights into the role of Erysipelotrichaceae in the human host[J]. Frontiers in Cellular and Infection Microbiology, 2015,5:84.

[39]
FERNANDO S C, PURVIS H T 2, NAJAR F Z, et al. Rumen microbial population dynamics during adaptation to a high-grain diet[J]. Applied and Environmental Microbiology, 2010, 76(22):7482-7490.

DOI PMID

[40]
HESS M, SCZYRBA A, EGAN R, et al. Metagenomic discovery of biomass-degrading genes and genomes from cow rumen[J]. Science, 2011, 331(6016):463-467.

DOI PMID

[41]
ABDUL RAHMAN N, PARKS D H, VANWONTERGHEM I, et al. A phylogenomic analysis of the bacterial phylum fibrobacteres[J]. Frontiers in Microbiology, 2015,6:1469.

[42]
ZHANG X L, XU T W, WANG X G, et al. Effect of dietary protein levels on dynamic changes and interactions of ruminal microbiota and metabolites in yaks on the Qinghai-Tibetan plateau[J]. Frontiers in Microbiology, 2021,12:684340.

[43]
ZHU X Y, LIU B S, XIAO J N, et al. Effects of different roughage diets on fattening performance,meat quality,fatty acid composition,and rumen microbe in steers[J]. Frontiers in Nutrition, 2022,9:885069.

[44]
ANDJELIĆ B, DJOKOVIĆ R, CINCOVIĆ M, et al. Relationships between milk and blood biochemical parameters and metabolic status in dairy cows during lactation[J]. Metabolites, 2022, 12(8):733.

[45]
黄文琴, 祁敏丽, 吕小康, 等. 饲粮能量和蛋白质水平对21-60日龄湖羊生长、消化性能及血清指标的影响[J]. 畜牧兽医学报, 2019, 50(1):105-114.

HUANG W Q, QI M L, LV X K, et al. Effects of dietary energy and protein levels on the growth,digestion performance and serum indexes of 21-60 days old Hu sheep lambs[J]. Acta Veterinaria et Zootechnica Sinica, 2019, 50(1):105-114. (in Chinese)

[46]
KOHN R A, DINNEEN M M, RUSSEK-COHEN E. Using blood urea nitrogen to predict nitrogen excretion and efficiency of nitrogen utilization in cattle,sheep,goats,horses,pigs,and rats[J]. Journal of Animal Science, 2005, 83(4):879-889.

[47]
ZHUANG K J, MENG W H, SHU X, et al. Fecal metabonomics combined with 16S rDNA sequencing to analyze the changes of gut microbiota in rats fed with different protein source diets[J]. European Journal of Nutrition, 2023, 62(6):2687-2703.

DOI PMID

[48]
MENG F, YUAN C L, YU Z Y. Effects of dietary protein level on milk production performance and serum biochemical indicators of dairy goat[J]. Agricultural and Food Sciences, 2015, 4(3):1-5.

[49]
韩兴泰, 陈杰, 韩正康. 日粮蛋白质水平对生长牦牛血液中若干代谢激素和代谢物的影响[J]. 青海畜牧兽医杂志, 1996(3):5-8.

HAN X T, CHEN J, HAN Z K. Effect of dietary protein lecvel on metabolic hormones and metabolites in the serum of growing yaks[J]. Chinese Qinghai Journal of Animal And Veterinary Sciences, 1996(3):5-8. (in Chinese)

[50]
HUHTANEN P, CABEZAS-GARCIA E H, KRIZSAN S J, et al. Evaluation of between-cow variation in milk urea and rumen ammonia nitrogen concentrations and the association with nitrogen utilization and diet digestibility in lactating cows[J]. Journal of Dairy Science, 2015, 98(5):3182-3196.

DOI PMID

[51]
LEVITT D G, LEVITT M D. Human serum albumin homeostasis:a new look at the roles of synthesis,catabolism,renal and gastrointestinal excretion,and the clinical value of serum albumin measurements[J]. International Journal of General Medicine, 2016,9:229-255.

[52]
RABINOWITZ J D, ENERBÄCK S. Lactate:the ugly duckling of energy metabolism[J]. Nature Metabolism, 2020, 2(7):566-571.

[53]
DIKALOV S. Cross talk between mitochondria and NADPH oxidases[J]. Free Radical Biology & Medicine, 2011, 51(7):1289-1301.

文章导航

/