研究论文

青海牦牛源益生菌分离、鉴定及其益生特性的研究

  • 谢林林 , 1 ,
  • 曹瑾 1 ,
  • 赵玉琪 1 ,
  • 张欣 1 ,
  • 郝力壮 2 ,
  • 简莹娜 3 ,
  • 孙偲 4 ,
  • 李军训 5 ,
  • 宋洪宁 5 ,
  • 王楠 , 1, *
展开
  • 1 天津科技大学生物工程学院,教育部工业发酵微生物学重点实验室,天津 300457
  • 2 青海大学,青海省高原放牧家畜动物营养与饲料科学重点实验室,西宁 810016
  • 3 青海大学畜牧兽医科学院,青海省动物疾病病原诊断与绿色防控技术研究重点实验室,西宁 810016
  • 4 青海百分牛生物科技有限公司,西宁 810016
  • 5 山东泰山生力源集团股份有限公司,泰安 271000
* 王 楠,教授,博士生导师,E-mail:

谢林林(1998—),女,河南洛阳人,硕士研究生,从事益生菌与肠道微生态研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-05-30

  网络出版日期: 2025-01-10

基金资助

泰山产业领军人才工程专项

国家重点研发项目子课题(2022YFD1302103)

Study on Isolation, Identification and Probiotic Properties of Qinghai Yak Derived Probiotics

  • XIE Linlin , 1 ,
  • CAO Jin 1 ,
  • ZHAO Yuqi 1 ,
  • ZHANG Xin 1 ,
  • HAO Lizhuang 2 ,
  • JIAN Yingna 3 ,
  • SUN Cai 4 ,
  • LI Junxun 5 ,
  • SONG Hongning 5 ,
  • WANG Nan , 1, *
Expand
  • 1 Key Laboratory of Industrial Fermentation Microbiology, Ministry of Education, College of Biotechnology, Tianjin University of Science and Technology, Tianjin 300457, China
  • 2 Qinghai Plateau Grazing Livestock Key Laboratory of Animal Nutrition and Feed Science, Qinghai University, Xining 810016, China
  • 3 Qinghai Provincial Key Laboratory of Animal Disease Pathogen Diagnosis and Green Prevention and Control Technology Research, College of Animal Husbandry and Veterinary Science, Qinghai University, Xining 810016, China
  • 4 Qinghai Baifenniu Biotechnology Co., Ltd., Xining 810016, China
  • 5 Shandong Taishan Shengliyuan Group Co., Ltd., Tai’an 271000, China
* professor, E-mail:

Received date: 2024-05-30

  Online published: 2025-01-10

摘要

本研究旨在从青海省牦牛源样品中分离筛选可用于改善牦牛腹泻的潜在益生菌菌株,并评价其体外益生特性。试验首先从健康牦牛粪便和酸奶中分离纯化出乳酸菌,通过菌落形态观察、16S rDNA以及对部分菌株进行保守基因rpoA测序,并进行BLAST比对,对筛选菌株进行鉴定。然后,通过评价菌株的生长、耐酸、耐胆盐、自动聚集能力和疏水性等特性筛选出优异菌株,重点考察其对来自腹泻致死牦牛中分离的致病菌的抑制能力,同时对其抗生素耐药性、细胞黏附能力、抗氧化能力[2,2-二苯基-1-苦基肼(DPPH)自由基清除率、羟自由基清除率及还原能力]及抗炎能力[巨噬细胞释放一氧化氮(NO)]进行测定。 结果表明: 试验共获得8株乳酸菌,其中1株为罗伊氏黏液乳杆菌,3株为植物乳植杆菌,4株为屎肠球菌。其中,罗伊氏黏液乳杆菌QM11具有较强的耐酸和耐胆盐能力;自动聚集率和疏水率分别为(64.07±1.36)%和(26.90±1.51)%;对牦牛源致病性大肠杆菌QH01、QH02和QH03的抑菌率分别为(87.29±0.98)%、(74.67±1.28)%和(86.43±0.21)%,对金黄色葡萄球菌、单增李斯特菌和鼠伤寒沙门氏菌等多种病原指示菌的抑菌率达74%以上;对氨苄西林、青霉素、庆大霉素和链霉素等多种抗生素敏感。与对照菌株鼠李糖乳杆菌GG相比,罗伊氏黏液乳杆菌QM11对结肠细胞的黏附能力更强,黏附率为(54.38±2.15)%;菌悬液的抗氧化能力更强,DPPH自由基清除率、羟自由基清除率和还原能力分别为(4.19±1.03)%、(180.29±9.28)%和(6.07±0.60)%;抑制巨噬细胞释放NO的能力与鼠李糖乳杆菌GG相当。综上所述,本试验筛选出的罗伊氏黏液乳杆菌QM11可作为后续研制用于防治牦牛腹泻益生菌制剂的备选菌株。

本文引用格式

谢林林 , 曹瑾 , 赵玉琪 , 张欣 , 郝力壮 , 简莹娜 , 孙偲 , 李军训 , 宋洪宁 , 王楠 . 青海牦牛源益生菌分离、鉴定及其益生特性的研究[J]. 动物营养学报, 2025 , 37(1) : 658 -671 . DOI: 10.12418/CJAN2025.057

Abstract

The aim of this study was to isolate and screen potential probiotic strains for preventing and treating yak diarrhea from yak source samples in Qinghai Province, and to evaluate their probiotic properties in vitro. Firstly, lactic acid bacteria were isolated and purified from healthy yak feces and yogurt, and the selected strains were identified through colony morphology observation, 16S rDNA sequencing, and conserved gene rpoA sequencing of some strains, followed by BLAST comparison. Then, excellent strains were selected by evaluating their growth, acid and bile salt resistance, auto-aggregation ability, hydrophobicity, and especially their inhibition ability against pathogenic bacteria isolated from yaks that died of diarrhea. At the same time, the antibiotic resistance, cell adhesion, antioxidant ability [2,2-diphenyl-1-picrylhydrazyl (DPPH) radical scavenging rate, hydroxyl radical scavenging rate and reducing ability] and anti-inflammatory ability [macrophage release of nitric oxide (NO)] were measured. The results showed that a total of 8 strains of lactic acid bacteria were obtained, in which 1 strain was Limosilactobacillus reuteri, 3 strains were Lactiplantibacillus plantarum and 4 strains were Enterococcus faecium. Among them, Limosilactobacillus reuteri QM11 had strong acid and bile salt resistance; the auto-aggregation rate and hydrophobicity were (64.07±1.36)% and (26.90±1.51)%, respectively; the inhibition rates against yak pathogenic Escherichia coli QH01, QH02 and QH03 were (87.29±0.98)%, (74.67±1.28)% and (86.43±0.21)%, respectively; the inhibition rates against Staphylococcus aureus, Listeria monocytogenes, Salmonella typhimurium and other pathogenic indicator bacteria were more than 74%; it is sensitive to ampicillin, penicillin, gentamicin, streptomycin and many other antibiotics. Compared with the control strain Lactobacillus rhamnosus GG, Limosilactobacillus reuteri QM11 had stronger adhesion to colon cells, and the adhesion rate was (54.38±2.15)%; the antioxidant capacity of bacterial suspension was stronger, and the DPPH radical scavenging rate, hydroxyl radical scavenging rate and reducing capacity were (4.19±1.03)%, (180.29±9.28)% and (6.07±0.60) %, respectively; the ability to inhibit the release of NO from macrophages was similar to that of Lactobacillus rhamnosus GG. In conclusion, Limosilactobacillus reuteri QM11 screened in this study can be used as a candidate strain for the subsequent development of probiotics for the prevention and treatment of yak diarrhea.

牦牛是高原(海拔>3 000 m)特有的物种,能够在低温和缺氧的极端条件下生存[1]。牦牛养殖是生活在高海拔地区人们重要的经济来源,也是当地牧民奶、肉制品和皮革的重要来源[2]。犊牦牛由于肠胃道系统和免疫系统等还未发育成熟,受到气候、环境及病菌等因素的影响极易发生腹泻。其中,细菌、寄生虫和病毒等病原体感染会导致犊牛产生严重的腹泻症状[3],是犊牦牛腹泻的重要原因。目前,传统的抗生素治疗会加速细菌耐药性的产生,抗生素在肉制品中残留还会引起食品安全问题[4]。随着我国对兽用抗菌药综合治理的高度重视,以及“养殖业减抗、禁抗、产品无抗”行动计划的加快实施,寻找新的方法预防和治疗犊牦牛腹泻及提高其生长性能迫在眉睫。
益生菌具有抗菌、改善肠道环境、降血脂、抗肿瘤以及参与免疫调节等生理作用,可通过增强肠道黏膜屏障功能、阻止病原菌黏附定植以及增强机体免疫反应来发挥作用[5]。研究发现,嗜酸乳杆菌、枯草芽孢杆菌和酿酒酵母联合干预可促进犊牛生长发育,减轻炎症反应,促进肠黏膜功能恢复[6]。罗伊氏黏液乳杆菌的发酵酸奶可减轻由产肠毒素大肠杆菌感染引起的小鼠氧化应激,并且降低产肠毒素大肠杆菌对肠上皮细胞的黏附[7]。冯鸣鹊等[8]从犊牛粪便中分离的乳酸菌对大肠杆菌、金黄色葡萄球菌以及临床分离株大肠杆菌K99具有抑菌活性。因此,筛选具有抗菌、抗炎功能的益生菌菌株,开发具有防治犊牦牛腹泻的益生菌制剂,对于犊牦牛的养殖生产具有重要意义。
本研究旨在通过从青海省牦牛源样品中分离乳酸菌,筛选耐酸、耐胆盐,具有较强肠道黏附性和抗氧化能力的益生菌菌株,并对其体外抑菌能力、抗炎能力及抗生素耐药性进行研究,为开发防治犊牦牛腹泻和有益其生长发育的益生菌制剂提供参考依据。

1 材料与方法

1.1 试验材料

牦牛粪便采集于青海省果洛藏族自治州玛多县,牦牛品种为高原型牦牛,采集时间为2023年5—8月;牦牛酸奶为市售产品,主要配料为生牦牛乳、全脂乳粉和乳清蛋白粉,其营养成分见表1
表1 牦牛酸奶营养成分

Table 1 Nutrient composition in yak yoghurt

项目
Items
每100 g含量
Content per
100 g
营养
参考值
NRV/%
能量Energy 2 110 kJ 25
蛋白质Protein 25.8 g 43
脂肪Fat 29 g 48
多不饱和脂肪酸PUFA 0.7 g
碳水化合物Carbohydrate 35.2 g 12
钠Sodium 350 mg 18
维生素A Vitamin A 150 mg 19
维生素E Vitamin E 0.3 μg 2
维生素B1 Vitamin B1 0.1 mg 7
维生素B2 Vitamin B2 0.7 mg 50
维生素B6 Vitamin B6 0.13 mg 9
烟酸Niacin 0.34 mg 2
泛酸Pantothenic acid 1.1 mg 22
胆碱Choline 50 mg 11
磷Phosphorus 600 mg 86
钾Potassium 700 mg 35
镁Magensium 55 mg 18
钙Calcium 900 mg 113
锌Zinc 3 mg 20
碘Iodine 50 μg 33
硒Selenium 5 μg 10
左旋肉碱L-carnitine 10 mg
试验所用菌株鼠李糖乳杆菌(Lactobacillus rhamnosus)GG(ATCC53103)由中国工业微生物菌种保藏管理中心提供。病原指示菌:大肠杆菌(Escherichia coli)O157(ATCC32250)、志贺氏菌(Shigella castellani)(CICC10865)、鼠伤寒沙门氏菌(Salmonella typhimurium)(CMCC50115)、阪崎克罗诺杆菌(Cronobacter sakazakii)(ATCC29544)、单增李斯特菌(Listeria monocytogenes)(ATCC19115)和金黄色葡萄球菌(Staphylococcus aureus)为本实验室保藏菌种。大肠杆菌QH01(与GenBank登录号CP037903.1菌株相似性为99.33%)、大肠杆菌QH02(与GenBank登录号LR134081.1菌株相似性为99.89%)和大肠杆菌QH03(与GenBank登录号菌株OP755835.1相似性为99.67%)为因腹泻死亡的牦牛病料组织分离培养所得[9-10],其中大肠杆菌QH01和QH02的牦牛病料采集于青海省果洛州久治县,牦牛品种为高原型牦牛;大肠杆菌QH03的牦牛病料采集于青海省天峻县木里镇,牦牛品种为环湖型牦牛。
人结肠癌细胞HCT-116和小鼠巨噬细胞RAW264.7为本实验室保藏细胞,使用含10%胎牛血清和1%青霉素、链霉素在37 ℃、5%二氧化碳(CO2)下培养。

1.2 主要试剂与仪器设备

主要试剂:MRS肉汤、琼脂粉、猪胆盐和盐酸购自北京索莱宝科技有限公司,噻唑蓝(MTT)购自美国Sigma公司,二甲基亚砜(DMSO)购自生工生物工程(上海)股份有限公司,乙醇购自天津市江天化工技术股份有限公司,抗生素药敏纸片购自北京三药科技有限公司,DMEM培养基购自美国Gibco公司,一氧化氮检测试剂盒购自上海碧云天生物技术股份有限公司。
主要仪器设备:SPX-150型生化恒温培养箱,北京市永光明医疗仪器有限公司;SpectraMax iD3型多功能酶标仪,美国Molecular Devices公司;SW-CJ-1FD型净化工作台,上海沪净医疗器械有限公司;CT90A型全自动立式蒸汽灭菌器,上海伯能仪器有限公司;TY-80B型脱色摇床,常州润华电器有限公司。

1.3 菌株的分离纯化

将样品进行稀释,分别吸取100 μL稀释液(10-4、10-5、10-6稀释梯度)均匀涂布于添加碳酸钙的MRS固体平板,37 ℃培养48 h,挑选产溶钙圈和具有乳酸菌形态的单菌落,将挑选的单菌落在MRS固体培养基上纯化3次后进行革兰氏染色。将分离得到的菌株进行16S rDNA(通用引物27F和1492R)测序;对部分菌株进行16S rDNA及保守基因rpoA测序,所用引物序列见表2,结果进行BLAST比对分析。
表2 引物序列

Table 2 Primer sequences

引物Primers 序列Sequences(5'—3') 位点Position
27F AGAGTTTGATCCTGGCTCAG 7
1492R GGTTACCTTGTTACGACTT 1 159
rpoA 21F ATGATYGARTTTGAAAAACC 1
rpoA 23R ACHGTRTTRATDCCDGCRCG 802

1.4 菌株生长曲线测定

将菌株接种于MRS液体培养基中,37 ℃静置培养24 h,每2 h取样,采用多功能酶标仪测定600 nm波长处吸光度(OD)值,绘制菌株的生长曲线。

1.5 菌株耐酸和耐胆盐能力测定

菌株的耐酸和耐胆盐能力的测定参照Liu等[11]的方法。将菌体分别重悬于pH为2、3、4以及含0.1%、0.2%、0.3%胆盐的MRS液体培养基中,以正常生长状态下的菌液作为对照。采用多功能酶标仪测定490 nm波长处OD值。存活率计算公式如下:
存活率(%)=100×试验组OD值/对照组OD值。

1.6 菌株自动聚集能力测定

菌株自动聚集能力的测定参考Polak-Berecka等[12]的方法。将菌液以2 654×g离心10 min,收集菌体,用pH=7.2的无菌磷酸盐缓冲液(PBS)经过2次洗涤后重悬,调整菌悬液的600 nm波长处OD值为(1.00±0.05),取菌悬液于室温静置6 h,测定600 nm波长处OD值。自动聚集率计算公式如下:
自动聚集率(%)=100×(OD0-OD1)/OD0
式中:OD0为0 h的OD值;OD1为静置6 h的OD值。

1.7 菌株疏水性测定

菌株疏水性测定参照杜兰兰等[13]的方法。将菌液以2 654×g离心10 min,收集菌体,用PBS洗涤2次后重悬。调整菌悬液的600 nm波长处OD值为(1.00±0.05),然后将3 mL菌悬液与600 μL的二甲苯混匀室温静置1 h,取水相测定600 nm波长处OD值。疏水率计算公式如下:
疏水率(%)=100×(OD0-OD1)/OD0
式中:OD0为0 h的OD值;OD1为静置1 h的OD值。

1.8 菌株抑菌能力测定

将乳酸菌和指示菌的菌悬液浓度调整至107 CFU/mL,然后将乳酸菌分别与指示菌接种到液体MRS培养基中,37 ℃共培养12 h。将共培养后的菌悬液稀释涂布于LB固体培养基,37 ℃培养48 h,计数指示菌的活菌数,以单独培养的指示菌活菌数为对照组。抑菌率计算公式如下:
抑菌率(%)=100×(1-试验组菌液浓度/对照组菌液浓度)。

1.9 菌株抗生素耐药性测定

抗生素耐药性测定采用药敏纸片琼脂扩散法[14],取100 μL 108 CFU/mL的菌液在MRS固体培养基表面涂布,将药敏纸片取出贴于培养基表面,37 ℃培养24 h后,测量抑菌圈直径。

1.10 菌株对结肠细胞的黏附能力测定

黏附能力测定参照Liu等[11]的方法。将HCT-116细胞以1×10⁵个/mL接种至96孔板,待细胞生长至致密单层后,每孔加入107 CFU菌液培养2 h后用PBS漂洗3次。采用MTT法分别测定PBS漂洗后的OD值(OD1)、未漂洗的OD值(OD2)和未加菌液的对照组OD值(OD0)。黏附率计算公式如下:
黏附率(%)=100×(OD1-OD0)/(OD2-OD0)。

1.11 菌株抗氧化能力测定

1.11.1 样品的制备

1)发酵上清液的制备:用蒸馏水调整菌体浓度为109 CFU/mL,4 ℃、6 796×g离心15 min,收集发酵上清液。2)菌悬液的制备:离心后的菌体沉淀用PBS重悬洗涤,4 ℃、6 796×g离心15 min,重复3次后将菌体重悬于PBS中,并调整菌体浓度至109 CFU/mL。3)无菌体破碎物的制备:取上述菌悬液超声破碎,破碎后离心取上清,即为无菌体破碎物。同时,将鼠李糖乳杆菌GG按以上3种处理方式制备3种样品液作为对照。

1.11.2 2,2-二苯基-1-苦基肼(2,2-diphenyl-1-picrylhydrazyl,DPPH)自由基清除率、羟自由基清除率及还原能力测定

参照Li等[15]的方法,测定乳酸菌发酵上清液、菌悬液和无菌体破碎物的DPPH自由基清除率;参照张月等[16]的方法,测定乳酸菌发酵上清液、菌悬液和无菌体破碎物的羟自由基清除率;参照Chen等[17]的方法,对乳酸菌发酵上清液、菌悬液和无菌体破碎物的还原能力进行测定。

1.12 RAW264.7细胞活力的测定

将乳酸菌的浓度调整成108 CFU/mL,4 ℃、6 796×g离心15 min后收集发酵上清液,冷冻干燥后用PBS溶解得到冻干发酵上清液。将RAW264.7细胞以1×10⁵个/mL接种到96孔板,用不同浓度(0.2、0.4、0.8、1.6、3.2和6.4 mg/mL)的乳酸菌冻干发酵上清液37 ℃含5% CO2培养箱孵育2 h后,加入0.1 μg/mL脂多糖(LPS)后孵育24 h。利用MTT法测定490 nm波长处OD值。

1.13 一氧化氮(NO)生成的测定

冻干发酵上清液预处理2 h后,使用LPS(0.1 μg/mL)诱导RAW264.7细胞24 h,收集细胞上清液。利用NO检测试剂盒测定NO的生成情况。

1.14 数据统计分析

试验数据结果表示为“平均值±标准差(mean±SD)”形式,每组试验重复3次。采用SPSS 27.0软件进行单因素方差分析(one-way ANOVA),并采用LSD法进行组间多重比较;采用GraphPad Prism 8软件进行做图。P<0.05表示差异显著。

2 结果与分析

2.1 分离菌株的形态和镜检

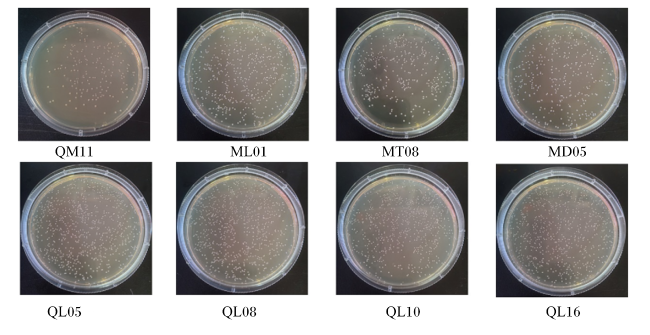
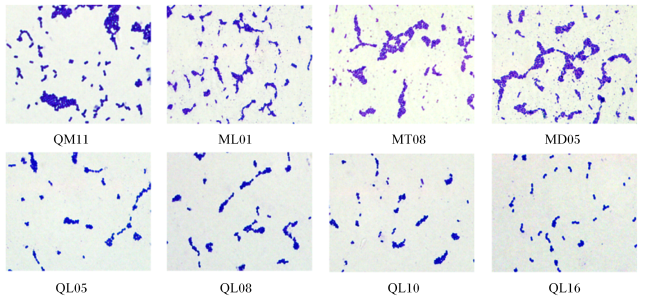
纯化后的菌株在MRS固体培养基上菌落形态较小,呈乳白色、圆形且边缘整齐。通过菌落形态、产溶钙圈和镜检,共筛选得到82株革兰氏阳性且产溶钙圈菌株,其中分离到3株罗伊氏黏液乳杆菌、15株植物乳植杆菌、42株屎肠球菌、8株芽孢杆菌和14株其他菌株。选取其中8株进行后续益生特性的研究。部分菌落形态和镜检结果见图1图2。将测序结果进行BLAST比对分析,部分菌株的鉴定结果见表3
图1 部分菌株的菌落形态

Fig.1 Colony morphology of some strains

图2 部分菌株的镜检结果

Fig.2 Microscopic examination results of some strains (×1 000)

表3 牦牛源样品部分菌株的鉴定结果

Table 3 Identification results of some strains of yak source samples

菌株
Strains
菌株编号
Strain number
GenBank登录号
GenBank accession No.
相似性
Similarity/%
罗伊氏黏液乳杆菌Limosilactobacillus reuteri QM11 MF461465.1 99.86
植物乳植杆菌Lactiplantibacillus plantarum ML01 KC836663.1 99.56
植物乳植杆菌Lactiplantibacillus plantarum MT08 MT544918.1 98.90
植物乳植杆菌Lactiplantibacillus plantarum MD05 JQ801725.1 99.44
屎肠球菌Enterococcus faecium QL05 CP034949.1 99.74
屎肠球菌Enterococcus faecium QL08 CP034949.1 99.48
屎肠球菌Enterococcus faecium QL10 CP034949.1 99.61
屎肠球菌Enterococcus faecium QL16 CP034949.1 99.48

2.2 菌株生长曲线

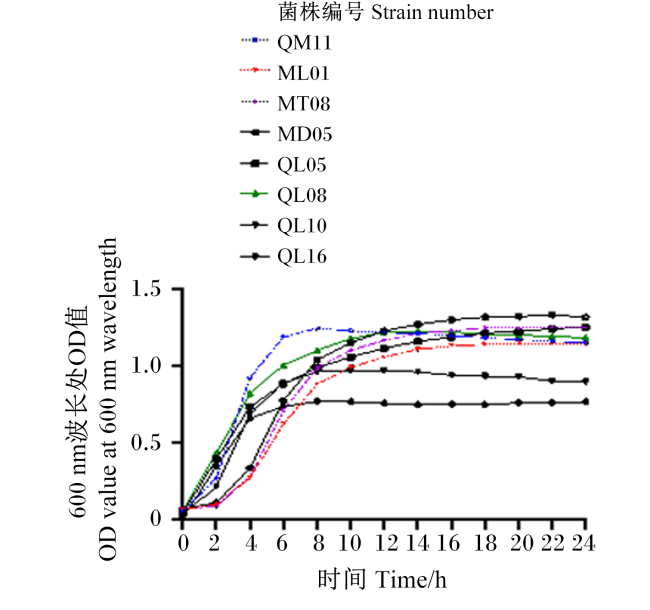
图3可以看出,罗伊氏黏液乳杆菌QM11在2 h后进入对数生长期,8~24 h为稳定期,24 h时的600 nm波长处OD值为1.2左右。3株植物乳植杆菌生长情况相似,接种4 h后进入对数生长期,开始迅速生长;10 h后进入稳定期,24 h时的600 nm波长处OD值达到1.3左右。4株屎肠球菌中QL10和QL16的生长较缓慢,24 h时的600 nm波长处OD值分别为0.92和0.76。
图3 菌株生长曲线

QM11为罗伊氏黏液乳杆菌,ML01、MT08和MD05为植物乳植杆菌,QL05、QL08、QL10和QL16为屎肠球菌。图4图7同。

Fig.3 Growth curves of strains

QM11 was Limosilactobacillus reuteri, ML01, MT08 and MD05 were Lactiplantibacillus plantarum, and QL05, QL08, QL10 and QL16 were Enterococcus faecium. The same as Fig.4 to Fig.7.

2.3 菌株耐酸和耐胆盐能力

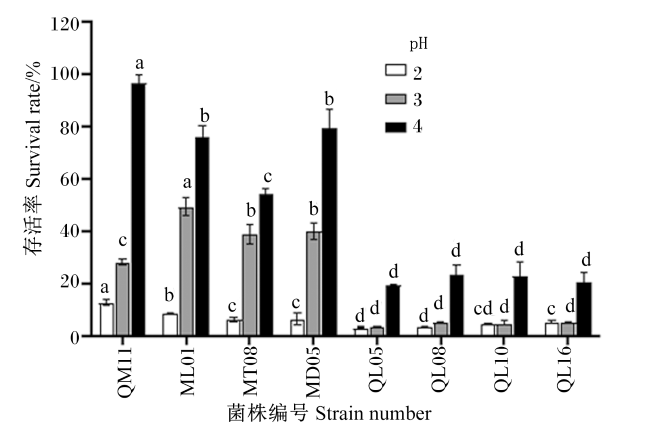
益生菌要能够适应胃酸的低pH和小肠胆盐的高渗透压环境才能在肠道中存活[18],因此本试验评价了菌株的耐酸和耐胆盐能力。8株乳酸菌在不同pH条件下的存活率如图4所示。当pH为2时,所有菌株的存活率较低,其中罗伊氏黏液乳杆菌QM11的存活率显著高于其他菌株(P<0.05),为(12.68±0.95)%。当pH为3时,3株植物乳植杆菌ML01、MT08和MD05的存活率分别为(49.32±3.60)%、(38.89±3.52)%和(39.85±3.35)%,显著高于其他菌株(P<0.05);而罗伊氏黏液乳杆菌QM11的存活率为(28.12±1.10)%。当pH为4时,罗伊氏黏液乳杆菌QM11的存活率显著高于其他菌株(P<0.05),可达到(96.71±3.50)%,植物乳植杆菌ML01和MD05的存活率分别为(75.97±4.44)%和(79.38±7.16)%;而4株屎肠球菌的存活率均在20%左右。结果表明,罗伊氏黏液乳杆菌QM11表现出较强的耐酸能力。
图4 菌株耐酸能力

数据柱标记不同字母表示不同菌株在相同pH条件下差异显著(P<0.05)。

Fig.4 Acid tolerance of strains

Data columns with different letters mean significant differences between different strains at the same pH condition (P<0.05).

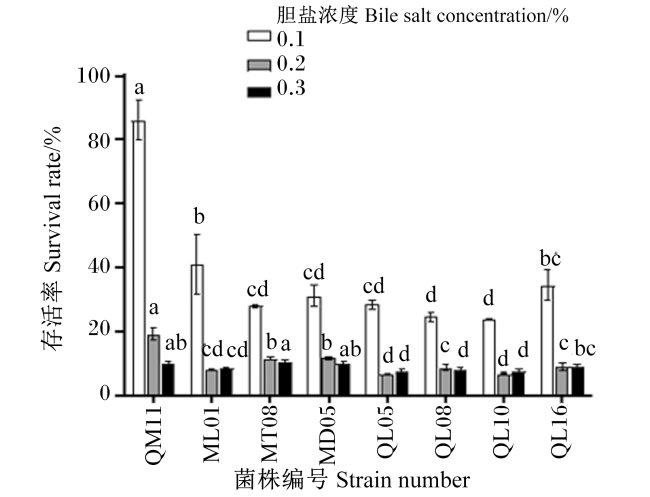
8株乳酸菌在不同胆盐浓度下的存活率见图5。其中,罗伊氏黏液乳杆菌QM11经过0.1%的胆盐处理4 h后,存活率达到(86.04±6.35)%,显著高于其他菌株(P<0.05);植物乳植杆菌ML01和MD05的存活率分别为(41.13±9.34)%和(31.12±3.45)%;4株屎肠球菌的存活率在20%~30%。当胆盐浓度为0.2%时,所有菌株的生长都受到了影响,但QM11、ML01和MD05仍具有一定的耐受能力。当胆盐浓度为0.3%时,罗伊氏黏液乳杆菌QM11的存活率显著高于除植物乳植杆菌MT08、MD05以及屎肠球菌QL16外的其他菌株(P<0.05),为(9.94±0.76)%。结果表明,罗伊氏黏液乳杆菌QM11表现出较强的耐胆盐能力。
图5 菌株耐胆盐能力

数据柱标记不同字母表示不同菌株在相同胆盐浓度条件下差异显著(P<0.05)。

Fig.5 Bile salt tolerance of strains

Data columns with different letters mean significant differences between different strains at the same bile salt concentration condition (P<0.05).

2.4 菌株自动聚集能力和疏水性

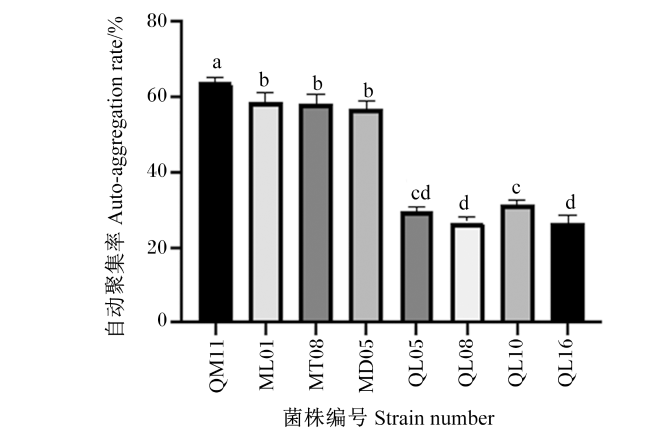
细菌的自动聚集能力和表面疏水性与细菌的黏附性存在一定的相关性,自动聚集能力和疏水性越高,其黏附性越好[19]。如图6所示,罗伊氏黏液乳杆菌QM11的自动聚集率最高,可达(64.07±1.36)%,显著高于其他菌株(P<0.05);植物乳植杆菌ML01、MT08和MD05的自动聚集率相对较高,分别为(58.70±2.41)%、(58.29±2.48)%和(56.74±2.34)%;4株屎肠球菌的自动聚集能力较差,自动聚集率均在30%左右。
图6 菌株自动聚集率

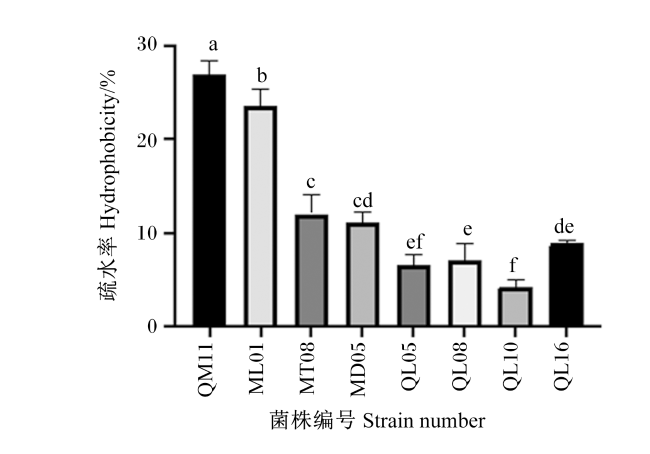
数据柱标记不同字母表示不同菌株间差异显著(P<0.05)。图7

Fig.6 Auto-aggregation rate of strains

Data columns with different letters mean significant differences between different strains (P<0.05). The same as Fig.7.

图7可以看出,8株乳酸菌都具有一定的表面疏水性,但不同菌株表现出明显的差异性。其中,罗伊氏黏液乳杆菌QM11的疏水率显著高于其他菌株(P<0.05),为(26.90±1.51)%;植物乳植杆菌ML01、MT08和MD05疏水率次之,分别为(23.57±1.81)%、(12.00±2.04)%和(11.06±1.22)%;屎肠球菌QL05、QL08、QL10和QL16的疏水率相对较差,分别为(6.51±1.19)%、(7.10±1.71)%、(4.21±0.73)%和(8.90±0.22)%。综合来看,罗伊氏黏液乳杆菌QM11的自动聚集能力和疏水性均显著高于其他菌株,表明其对肠道的黏附性能可能较强。
图7 菌株疏水率

Fig.7 Hydrophobicity of strains

2.5 菌株抑菌能力

选取腹泻致死牦牛来源的致病性大肠杆菌QH01和金黄色葡萄球菌对8株乳酸菌的抑菌能力进行评价,结果如表4所示,8株乳酸菌对大肠杆菌QH01的抑菌率均在60%以上,其中,罗伊氏黏液乳杆菌QM11的抑菌率可达到(86.46±1.13)%;屎肠球菌QL16对大肠杆菌QH01的抑菌率较差,为(60.92±1.29)%。8株乳酸菌对金黄色葡萄球菌具有较好的抑菌能力,抑菌率均在75%以上。由此可见,罗伊氏黏液乳杆菌QM11对大肠杆菌QH01和金黄色葡萄球菌的抑菌率均在85%以上,因此进一步利用9种致病菌对其抑菌能力进行研究。
表4 不同菌株的抑菌能力

Table 4 Bacteriostatic capacity of different strains %

菌株编号
Strain number
抑菌率Inhibition rate 菌株编号
Strain number
抑菌率Inhibition rate
大肠杆菌QH01
Escherichia
coli QH01
金黄色葡萄球菌
Staphylococcus
aureus
大肠杆菌QH01
Escherichia
coli QH01
金黄色葡萄球菌
Staphylococcus
aureus
QM11 86.46±1.13 85.77±1.35 QL05 80.52±0.36 85.34±1.55
ML01 71.34±0.94 87.74±0.45 QL08 71.11±1.42 81.35±1.65
MT08 74.53±0.93 77.14±1.37 QL10 71.23±0.90 82.14±0.82
MD05 83.46±1.12 75.32±0.94 QL16 60.92±1.29 77.24±0.94
表5可知,罗伊氏黏液乳杆菌QM11对9种致病菌均有明显的抑制效果,其对志贺氏菌和单增李斯特菌的抑菌率高达90%以上,对大肠杆菌O157、QH03以及阪崎克罗诺杆菌等的抑菌率为85.68%~89.21%,对大肠杆菌QH02和鼠伤寒沙门氏菌的抑菌率为74%左右。
表5 罗伊氏黏液乳杆菌QM11的抑菌能力

Table 5 Bacteriostatic capacity of Limosilactobacillus reuteri QM11 %

指示菌
Indicator bacteria
抑菌率
Inhibition rate
指示菌
Indicator bacteria
抑菌率
Inhibition rate
大肠杆菌O157 Escherichia coli O157 89.21±0.62 志贺氏菌Shigella castellani 97.05±0.41
大肠杆菌QH01 Escherichia coli QH01 87.29±0.98 鼠伤寒沙门氏菌Salmonella typhimurium 74.29±1.88
大肠杆菌QH02 Escherichia coli QH02 74.67±1.28 阪崎克罗诺杆菌Cronobacter sakazakii 85.68±1.09
大肠杆菌QH03 Escherichia coli QH03 86.43±0.21 金黄色葡萄球菌Staphylococcus aureus 87.85±1.16
单增李斯特菌Listeria monocytogenes 91.95±0.50

2.6 菌株抗生素耐药性

罗伊氏黏液乳杆菌QM11对16种常见抗生素的耐药性见表6,其对氨苄西林、青霉素、庆大霉素、链霉素、四环素、氯霉素、呋喃妥因、头孢噻吩、万古霉素、头孢他啶和卡那霉素敏感,对氨曲南中度敏感,对苯唑西林、诺氟沙星、环丙沙星和左氧氟沙星耐药。
表6 罗伊氏黏液乳杆菌QM11的抗生素耐药性

Table 6 Antibiotic resistance of Limosilactobacillus reuteri QM11

抗生素
Antibiotics
每片含量
Content
per tablet
抑菌圈
直径
Inhibition
circle
diameter/
mm
敏感性
Sensitivity
抗生素
Antibiotics
每片含量
Content
per tablet
抑菌圈
直径
Inhibition
circle
diameter/
mm
敏感性
Sensitivity
氨苄西林Ampicillin 10 μg 44.58±0.75 S 诺氟沙星Norfloxacin 10 μg 0.00±0.00 R
苯唑西林Oxacillin 1 μg 0.00±0.00 R 头孢噻吩Cefalotin 30 μg 40.40±1.08 S
青霉素Penicillin 10 IU 32.50±1.03 S 万古霉素Vancomycin 30 μg 35.15±1.37 S
庆大霉素Gentamicin 10 μg 32.79±1.48 S 环丙沙星Ciprofloxacin 5 μg 0.00±0.00 R
链霉素Streptomycin 10 μg 27.74±1.95 S 左氧氟沙星Levofloxacin 5 μg 0.00±0.00 R
四环素Tetracycline 30 μg 36.85±1.27 S 氨曲南Aztreonam 30 μg 20.36±0.84 I
氯霉素Chloramphenicol 30 μg 39.78±0.51 S 头孢他啶Ceftazidime 30 μg 29.82±1.09 S
呋喃妥因Furadantin 300 μg 40.61±2.86 S 卡那霉素Kanamycin 30 μg 23.77±2.00 S

S:敏感 sensitive;I:中度敏感 moderately sensitive;R:耐药 resistant。

2.7 菌株对结肠细胞的黏附能力

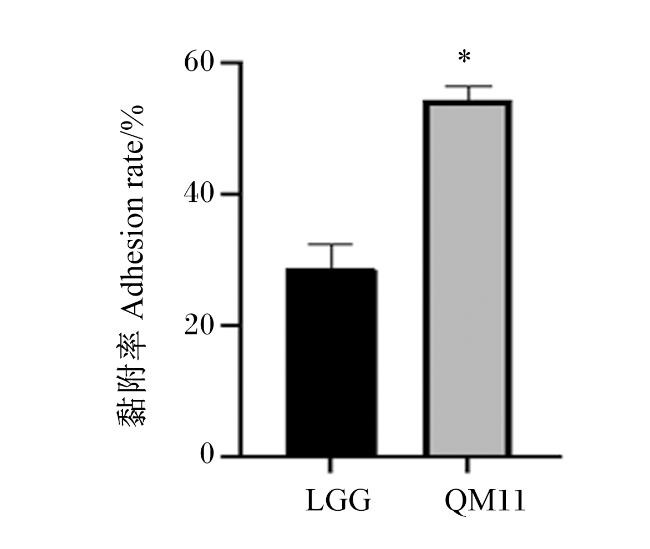
益生菌对宿主肠黏膜的黏附能力是筛选具有应用潜力益生菌的首要标准[20],因此为了进一步探究罗伊氏黏液乳杆菌QM11对肠上皮细胞的黏附能力,利用HCT-116细胞测定了菌株对细胞的黏附能力,结果见图8。罗伊氏黏液乳杆菌QM11的黏附率为(54.38±2.15)%,显著高于对照菌株鼠李糖乳杆菌GG(P<0.05)。
图8 菌株对HCT-116细胞的黏附率

“*”代表2组之间差异显著(P<0.05)。“*”represented significant difference between the two groups (P<0.05).

LGG:鼠李糖乳杆菌GG Lactobacillus rhamnosus GG;QM11:罗伊氏黏液乳杆菌QM11 Limosilactobacillus reuteri QM11。下图同 the same as below。

Fig.8 Adhesion rate of strains to HCT-116 cells

2.8 菌株抗氧化能力

表7可知,罗伊氏黏液乳杆菌QM11的发酵上清液、菌悬液和无菌体破碎物均具有DPPH自由基清除能力、羟自由基清除能力和还原能力。其中,罗伊氏黏液乳杆菌QM11的无菌体破碎物DPPH自由基清除率为(38.57±8.16)%,显著高于鼠李糖乳杆菌GG(P<0.05);发酵上清液的羟自由基清除率为(37.97±2.28)%,显著低于鼠李糖乳杆菌GG(P<0.05);而菌悬液的羟自由基清除率和还原能力分别为(180.29±9.28)%和(6.07±0.60)%,显著高于鼠李糖乳杆菌GG(P<0.05)。综合以上3个抗氧化能力指标的结果,罗伊氏黏液乳杆菌QM11具有良好的抗氧化能力。
表7 菌株抗氧化能力

Table 7 Antioxidant capacity of strains %

菌株
Strains
处理方式
Treatments
DPPH自由基清除率
DPPH radical
scavenging rate
羟自由基清除率
Hydroxyl radical
scavenging rate
还原能力
Reducing ability
罗伊氏黏液乳杆菌QM11
Limosilactobacillus reuteri QM11
发酵上清液 89.42±0.75 37.97±2.28b 16.73±1.47
菌悬液 4.19±1.03 180.29±9.28a 6.07±0.60a
无菌体破碎物 38.57±8.16a 95.57±2.91 3.63±1.62
鼠李糖乳杆菌GG
Lactobacillus rhamnosus GG
发酵上清液 89.25±1.19 92.58±0.06a 15.77±1.25
菌悬液 2.83±0.95 92.31±0.96b 1.47±0.42b
无菌体破碎物 15.62±2.75b 99.80±4.71

“—”表示清除率较低(<0.5%)。不同字母代表不同菌株相同处理方式差异显著(P<0.05)。

“—”indicated low scavenging rate (<0.5%). Different letters represented significant differences between different strains of the same treatment (P<0.05).

2.9 菌株对LPS诱导RAW264.7细胞NO生成的影响

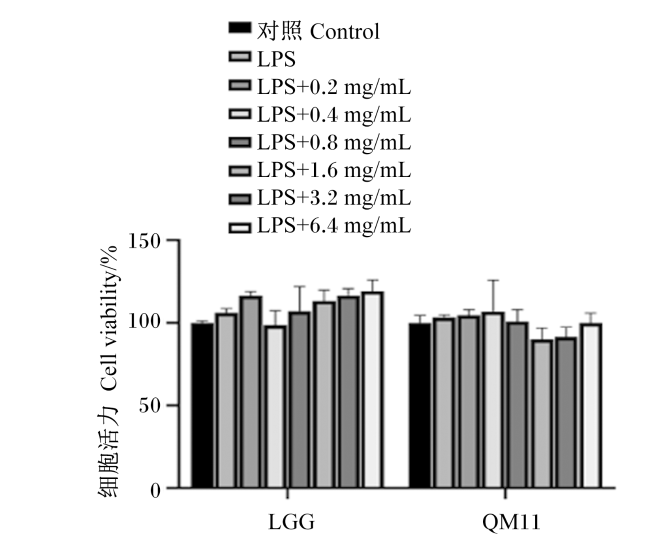
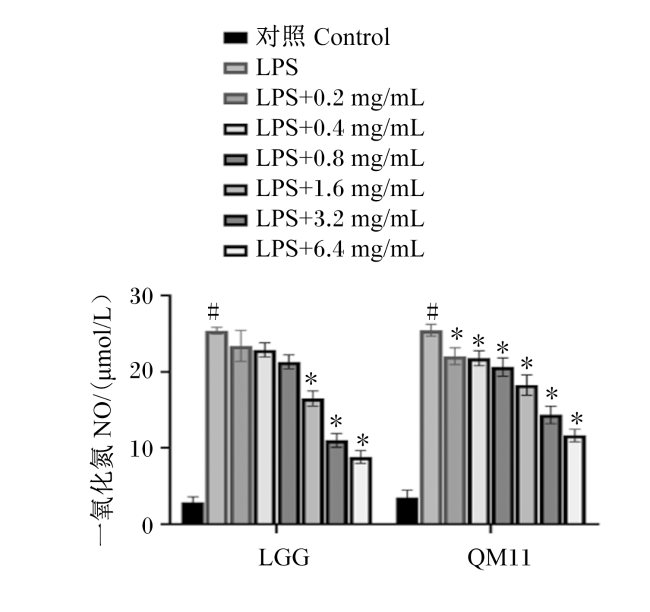
本试验首先评价了菌株发酵上清液对RAW264.7细胞活力的影响,结果如图9所示,不同浓度(0.2~6.4 mg/mL)的发酵上清液对细胞活力均没有显著影响(P>0.05)。然后,为进一步评价菌株罗伊氏黏液乳杆菌QM11的抗炎能力,本试验建立了LPS诱导的RAW264.7细胞产生NO模型,结果如图10所示。与对照组相比,LPS组NO含量显著提高(P<0.05);与LPS组相比,不同浓度的罗伊氏黏液乳杆菌QM11发酵上清液均可显著降低NO含量(P<0.05),且高浓度的罗伊氏黏液乳杆菌QM11发酵上清液表现出更强的抗炎能力。结果表明,罗伊氏黏液乳杆菌QM11可降低LPS诱导RAW264.7细胞NO的产生,具有一定的抗炎能力,与鼠李糖乳杆菌GG相似。
图9 菌株对LPS诱导RAW264.7细胞活力的影响

Fig.9 Effects of strains on viability of RAW264.7 cells induced by LPS

图10 菌株对LPS诱导RAW264.7细胞NO生成的影响

“#”代表LPS组与对照组相比差异显著(P<0.05),“*”代表不同浓度处理组与LPS组相比差异显著(P<0.05)。

Fig.10 Effects of strains on NO production of RAW264.7 cells induced by LPS

“#” represented significant difference between LPS group and control group (P<0.05), and “*” represented significant difference between different concentration treatment groups and LPS group (P<0.05).

3 讨论

益生菌具有抗毒素、抗致病菌和防治腹泻的作用,能够改善肠道菌群平衡,促进营养物质的消化吸收,提高宿主免疫力[21]。益生菌能够改善反刍动物瘤胃发酵状况,从而提高反刍动物的干物质采食量、饲料利用效率和体增重[22]。不过,菌株发挥益生特性可能存在物种差异性,外源益生菌可能无法在肠道内定植,而从动物肠道或粪便中分离的益生菌可在其肠道内定植并发挥益生功能,所以用于生产畜禽用益生菌的微生物制剂通常从相应的动物个体中分离[23]。本文从青海省果洛藏族自治州健康牦牛粪便和酸奶中分离纯化出乳酸菌,通过菌落形态观察、16S rDNA以及对部分菌株进行保守基因rpoA测序分析,获得1株罗伊氏黏液乳杆菌、3株植物乳植杆菌和4株屎肠球菌,并对其益生特性进行研究。
益生菌能进入胃肠道发挥益生功能的前提是具有对胃酸和胆盐环境的耐受能力,胃液的pH和小肠中的胆汁浓度通常为3.0左右和0.1%~0.3%[24]。本研究中,8株乳酸菌都能在pH 2.0~4.0、胆盐浓度0.1%~0.3%的条件下生长,其中罗伊氏黏液乳杆菌QM11以及植物乳植杆菌ML01和MD05有较高的存活率。细菌的黏附能力是益生菌选择的重要标准,确定细菌的黏附性对于益生菌的研究有重大意义[19]。本文通过测定菌株的自动聚集率和表面疏水性筛选具有黏附性质的益生菌,结果发现,罗伊氏黏液乳杆菌QM11在6 h时的自动聚集率为(64.07±1.36)%,3株植物乳植杆菌的自动聚集率为56.74%~58.70%。訾静等[25]研究发现,乳杆菌和肠球菌在6 h时的自动聚集率为50.9%~56.8%,与本试验结果相似。杜兰兰等[13]研究表明,鼠李糖乳杆菌GG的疏水率为(9.85±1.25)%。本研究中,罗伊氏黏液乳杆菌QM11的疏水率为(26.90±1.51)%,与上述研究结果相比具有更强的疏水性。结合自动聚集能力和疏水性结果来看,罗伊氏黏液乳杆菌QM11可能对肠道的黏附能力更强。冯鸣鹊等[8]研究犊牛源乳酸菌12号菌株对结肠细胞的黏附率为17.5%,而本试验中罗伊氏黏液乳杆菌QM11对结肠细胞HCT-116的黏附率约为54.38%。
腹泻是犊牦牛的常见疾病,威胁牦牛健康,降低其生产力、产奶量和繁殖能力;在怀孕牦牛分娩前发生腹泻,还会导致犊牛营养不良甚至死亡[26]。细菌性疾病引起的腹泻大多由大肠杆菌、沙门氏菌、弯曲杆菌和产气荚膜梭菌造成[27],其中大肠杆菌是导致腹泻的主要致病菌。犊牦牛的大肠杆菌病为严重急性肠道传染病,患病犊牦牛会出现严重腹泻、脱水、急性败血症甚至引发死亡[28]。Liu等[29]研究发现,未饲喂益生菌的犊牛腹泻率达39%,补充乳酸菌或酵母以及二者组成的复合益生菌后,与对照组相比,腹泻率分别降低了11%、13%和17%。研究表明,乳酸菌发挥益生功能的重要机制之一是抑制肠道病原菌[30]。本研究选取的大肠杆菌QH01、QH02和QH03是从牦牛病料组织中分离获得,通过前期的分子生物学鉴定和动物致死试验证实,均为致病性大肠杆菌[9-10]。本研究中,8株乳酸菌对大肠杆菌QH01的抑菌率均在60%以上,对金黄色葡萄球菌的抑菌率达到75%以上,其中罗伊氏黏液乳杆菌QM11的抑菌能力更优,对3株牦牛源致病性大肠杆菌的抑菌率在74.67%~87.29%,并且对单增李斯特菌、阪崎克罗诺杆菌和鼠伤寒沙门氏菌等9种致病菌均有抑制作用。同时,罗伊氏黏液乳杆菌QM11对多数常见抗生素无耐药性,可认为是安全菌株,对宿主健康不会产生损害。
DPPH自由基、羟自由基清除能力和还原能力是评价益生菌抗氧化能力的常见指标[31]。本研究中,罗伊氏黏液乳杆菌QM11的发酵上清液、菌悬液和无菌体破碎物都具有抗氧化能力。陈楠等[32]对多种益生菌抗氧化能力进行评价,其中粪肠球菌ZJUIDS-D016和融合魏斯氏菌ZJUIDS-D034的抗氧化能力较高,这2株菌的发酵上清液DPPH自由基清除率分别为86.21%和89.47%,羟自由基清除率分别为4.41%和32.32%。本研究中,罗伊氏黏液乳杆菌QM11发酵上清液的DPPH自由基清除率为(89.42±0.75)%,发酵上清液的羟自由基清除率为(37.97±2.28)%,菌悬液的羟自由基清除率高达(180.29±9.28)%。
炎症是免疫系统的一种适应性反应,在宿主防御系统中起着核心作用,可平衡体内稳态;而过度的炎症会引起如癌症、哮喘、动脉粥样硬化以及糖尿病等多种疾病的发生[33]。LPS可与细胞膜表面Toll样受体4结合,刺激巨噬细胞产生炎症因子和炎症介质;LPS诱导的RAW264.7细胞常用于评价样品的体外抗炎活性[34]。张金兰等[35]将鼠李糖乳杆菌GG与枸杞果汁进行发酵,发酵提取物与未发酵提取物相比NO生成量显著降低。米洁兰等[36]通过LPS和尼日利亚菌素诱导的急性炎症巨噬细胞模型筛选出一株具有抗炎、抗感染的免疫调节活性的益生菌Lac.5。本研究通过LPS诱导巨噬细胞RAW264.7模拟体外炎症微环境,结果表明罗伊氏黏液乳杆菌QM11可降低LPS诱导RAW264.7细胞NO的产生,这与刘奕彤等[37]的研究结果类似。

4 结论

本研究从青海健康牦牛粪便中分离出一株罗伊氏黏液乳杆菌QM11,其具有较强的酸和胆盐耐受性,对肠道具有较好的黏附性,且具有较好的抗氧化、抗炎能力以及对多种致病菌有一定的抑制作用,有望应用于牦牛腹泻的预防和治疗,为后期研制抗牦牛腹泻的益生菌制剂提供了参考菌株和理论依据。
[1]
WANG Y P, FU Y H, HE Y Y, et al. Longitudinal characterization of the gut bacterial and fungal communities in yaks[J]. Journal of Fungi, 2021, 7(7):559.

[2]
张思卓. 益生菌制剂防治犊牦牛腹泻的作用机理[J]. 当代畜牧, 2021(12):20-22.

ZHANG S Z. The mechanism of probiotics in preventing and treating calf yak diarrhea[J]. Contemporary Animal Husbandry, 2021(12):20-22. (in Chinese)

[3]
王宏奎. 犊牦牛腹泻发生原因及防治[J]. 畜牧兽医科学(电子版), 2020(15):61-62.

WANG H K. Causes and control measures of diarrhea in yak calves[J]. Graziery Veterinary Sciences (Electronic Version), 2020(15):61-62. (in Chinese)

[4]
张志军. 复合益生菌制剂对绵羊瘤胃发酵、血清生化和奶牛生产性能的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2013.

ZHANG Z J. Effect of dietary compound probiotics on rumen fermentation,serum biochemistry of sheep and productive performance of dairy cow[D]. Master’s Thesis. Urumqi: Xinjiang Agricultural University, 2012. (in Chinese)

[5]
阿热爱·巴合提, 武瑞赟, 肖梦圆, 等. 益生菌的生理功能及作用机理研究进展[J]. 食品与发酵工业, 2020, 46(22):270-275.

DOI

A RE AI-BA HE DI, WU R Y, XIAO M Y, et al. Research progress in physiological function and mechanism of probiotics[J]. Food and Fermentation Industries, 2020, 46(22):270-275. (in Chinese)

DOI

[6]
WU Y, NIE C, LUO R, et al. Effects of multispecies probiotic on intestinal microbiota and mucosal barrier function of neonatal calves infected with E.coli K99[J]. Frontiers in Microbiology, 2022,12:813245.

[7]
LU X, ZHANG M, MA Y, et al. Protective effect of Limosilactobacillus reuteri-fermented yogurt on mouse intestinal barrier injury induced by enterotoxigenic Escherichia coli[J]. Journal of the Science of Food and Agriculture, 2023, 103(15):7494-7505.

[8]
冯鸣鹊, 靳天雄, 刘蓓, 等. 犊牛源益生菌的分离鉴定及生物学特性分析[J]. 河北农业大学学报, 2024, 47(1):91-98,131.

DOI

FENG M Q, JIN T X, LIU B, et al. Isolation,identification and biological characteristics analysis of probiotics from calves[J]. Journal of Agricultural University of Hebei, 2024, 47(1):91-98,131. (in Chinese)

[9]
李稳欣, 简莹娜, 张学勇, 等. 死亡牦牛脏器中大肠杆菌的分离鉴定及药敏试验[J]. 青海畜牧兽医杂志, 2017, 47(1):9-13.

LI W X, JIAN Y N, ZHANG X Y, et al. Isolation and identification of pathogens from case of clinical died yak[J]. Chinese Qinghai Journal of Animal and Veterinary Sciences, 2017, 47(1):9-13. (in Chinese)

[10]
完马单智, 简莹娜, 王贵元, 等. 一株青海天峻县牦牛源致病性大肠杆菌的分离鉴定及药敏试验[J]. 青海畜牧兽医杂志, 2022, 52(1):30-32.

WAN M D Z, JIAN Y N, WANG G Y, et al. Isolation,identification and drug resistance analysis of a pathogenic Escherichia coli from yaks in Tianjun,Qinghai[J]. Chinese Qinghai Journal of Animal and Veterinary Sciences, 2022, 52(1):30-32. (in Chinese)

[11]
LIU M, ZHANG X, HAO Y, et al. Protective effects of a novel probiotic strain,Lactococcus lactis ML 2018,in colitis:in vivo and in vitro evidence[J]. Food & Function, 2019, 10(2):1132-1145.

[12]
POLAK-BERECKA M, WAŚKO A, PADUCH R, et al. The effect of cell surface components on adhesion ability of Lactobacillus rhamnosus[J]. Antonie van Leeuwenhoek, 2014, 106(4):751-762.

[13]
杜兰兰, 王洋, 刘蕾, 等. 类植物乳杆菌L-ZS9黏附特性研究及胃肠道环境对其黏附力的影响[J]. 食品科技, 2015, 40(12):2-6,14.

DU L L, WANG Y, LIU L, et al. Adhesion properties of Lactobacillus paraplantarum L-ZS9 and effect of in vitro gastrointestinal tract environment on its adhesion ability[J]. Food Science and Technology, 2015, 40(12):2-6,14. (in Chinese)

[14]
REUBEN R C, ROY P C, SARKAR S L, et al. Isolation,characterization, and assessment of lactic acid bacteria toward their selection as poultry probiotics[J]. BMC Microbiology, 2019, 19(1):253.

[15]
LI W J, CHENG X L, LIU J, et al. Phenolic compounds and antioxidant activities of Liriope muscari[J]. Molecules, 2012, 17(2):1797-1808.

[16]
张月, 赵崇杰, 韩先磊, 等. 发酵桔梗活性成分分析及抗氧化能力研究[J]. 中国现代中药, 2022, 24(11):2101-2108.

ZHANG Y, ZHAO C J, HAN X L, et al. Active components and antioxidant capacity of fermented Platycodonis radix[J]. Modern Chinese Medicine, 2022, 24(11):2101-2108. (in Chinese)

[17]
CHEN T S, LIOU S Y, WU H C, et al. New analytical method for investigating the antioxidant power of food extracts on the basis of their electron-donating ability:comparison to the ferric reducing/antioxidant power (FRAP) assay[J]. Journal of Agricultural and Food Chemistry, 2010, 58(15):8477-8480.

[18]
MAKETE G, AIYEGORO O A, THANTSHA M S. Isolation,identification and screening of potential probiotic bacteria in milk from South African Saanen goats[J]. Probiotics and Antimicrobial Proteins, 2017, 9(3):246-254.

[19]
龚虹, 王海霞, 马征途, 等. 乳酸菌粘附力与生物膜、疏水性和自凝集特性的研究[J]. 中国微生态学杂志, 2016, 28(9):1026-1028,1033.

GONG H, WANG H X, MA Z T, et al. Biofilm hydrophobicity and auto-agglutination properties of five Lactobacillus strains[J]. Chinese Journal of Microecology, 2016, 28(9):1026-1028,1033. (in Chinese)

[20]
吕秀莉, 岳莹雪, 平丽筠, 等. 益生菌黏附机制及其拮抗肠道致病菌研究进展[J]. 食品科学, 2023, 44(9):313-320.

LV X L, YUE Y X, PING L J, et al. Research progress on the adhesion mechanism and antagonistic effects against intestinal pathogens of probiotics[J]. Food Science, 2023, 44(9):313-320. (in Chinese)

DOI

[21]
李淼, 何海娟, 李忠秋, 等. 益生菌在畜禽肠道健康中的作用研究进展[J]. 饲料研究, 2024, 47(6):154-158.

LI M, HE H J, LI Z Q, et al. Research progress on role of probiotics in intestinal health of livestock and poultry[J]. Feed Research, 2024, 47(6):154-158. (in Chinese)

[22]
CHUANG S T, CHEN C T, HSIEH J C, et al. Development of next generation probiotics by investigating the interrelationships between gastrointestinal microbiota and diarrhea in preruminant Holstein calves[J]. Animals, 2022, 12(6):695.

[23]
于淼, 马倩倩, 陈雪颖, 等. 益生菌在断奶仔猪中应用的研究进展[J]. 黑龙江畜牧兽医, 2020(13):55-58.

YU M, MA Q Q, CHEN X Y, et al. Research progress on the application of probiotics in weaned piglets[J]. Heilongjiang Animal Science and Veterinary, 2020(13):55-58. (in Chinese)

[24]
王婷, 安明轩, 李正浩, 等. 牛源产酸芽孢杆菌的分离筛选及益生特性研究[J]. 动物医学进展, 2023, 44(10):12-18.

WANG T, AN M X, LI Z H, et al. Isolation and screening of acid-producing bacillus from cattle and study on its prebiotics[J]. Progress in Veterinary Medicine, 2023, 44(10):12-18. (in Chinese)

[25]
訾静, 王琰, 李亮亮, 等. 林麝肠道中乳酸菌的分离筛选及益生特性[J]. 食品科学, 2024, 45(8):79-86.

ZI J, WANG Y, LI L L, et al. Isolation and screening of lactic acid bacteria from the gut of forest musk deer for probiotic properties[J]. Food Science, 2024, 45(8):79-86. (in Chinese)

DOI

[26]
HEUER C, HEALY A, ZERBINI C. Economic effects of exposure to bovine viral diarrhea virus on dairy herds in New Zealand[J]. Journal of Dairy Science, 2007, 90(12):5428-5438.

PMID

[27]
岳山. 黑龙江部分地区肉牛大肠杆菌耐药基因与毒力基因检测及耐药性分析[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2017.

YUE S. Detection of drug resistance genes and virulence genes and analysis of drug resistance of Escherichia coli in beef cattle in some areas of Heilongjiang province[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2017. (in Chinese)

[28]
索昂折尕. 牦牛重要传染病和寄生虫病的防治与展望[J]. 农家参谋, 2022(21):109-111.

SUO A S G. Control and prospects of important infectious and parasitic diseases of yak[J]. The Farmers Consultant, 2022(21):109-111. (in Chinese)

[29]
LIU B, WANG C J, HUASAI S M J, et al. Compound probiotics improve the diarrhea rate and intestinal microbiota of newborn calves[J]. Animals, 2022, 12(3):322.

[30]
胡爱心, 刘金松, 许英蕾, 等. 乳酸菌抑菌作用机制的研究进展[J]. 动物营养学报, 2021, 33(12):6690-6698.

DOI

HU A X, LIU J S, XU Y L, et al. Research progress in antibacterial mechanism of lactic acid bacteria[J]. Chinese Journal of Animal Nutrition, 2021, 33(12):6690-6698. (in Chinese)

[31]
王小鹏, 崔文明, 王子卓越, 等. 抗氧化乳酸菌的筛选及其对小肠上皮细胞氧化损伤的保护作用[J]. 食品工业科技, 2023, 44(4):387-394.

WANG X P, CUI W M, WANG ZI Z Y, et al. Screening of lactic acid bacteria with antioxidant capacity and its protective effect on oxidative damage in intestinal epithelial cells[J]. Science and Technology of Food Industry, 2023, 44(4):387-394. (in Chinese)

[32]
陈楠, 余泽旭, 季暄, 等. 犬源抗氧化益生菌的筛选及功效评定[J]. 动物营养学报, 2024, 36(2):1303-1314.

DOI

CHEN N, YU Z X, JI X, et al. Screening and efficacy evaluation of antioxidant probiotics derived from canine[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):1303-1314. (in Chinese)

DOI

[33]
KO E Y, HEO S J, CHO S H, et al. 3-bromo-5-(ethoxymethyl)-1,2-benzenediol inhibits LPS-induced pro-inflammatory responses by preventing ROS production and downregulating NF-κB in vitro and in a zebrafish model[J]. International Immunopharmacology, 2019,67:98-105.

[34]
JOU I M, LIN C F, TSAI K J, et al. Macrophage-mediated inflammatory disorders[J]. Mediators of Inflammation, 2013,2013:316482.

[35]
张金兰, 魏巍, 杨云, 等. 乳酸菌发酵对枸杞果汁体外抗氧化和抗炎活性的影响[J]. 中国酿造, 2023, 42(2):76-82.

DOI

ZHANG J L, WEI W, YANG Y, et al. Effects of lactic acid bacteria fermentation on antioxidant and anti-inflammatory activities in vitro of goji berry juice[J]. China Brewing, 2023, 42(2):76-82. (in Chinese)

[36]
米洁兰, 王志浩, 王婷婷, 等. 抗炎免疫调节活性益生菌的体外筛选及其相关组分的初步鉴定[J]. 中国预防兽医学报, 2022, 44(12):1283-1289.

MI J L, WANG Z H, WANG T T, et al. In vitro screening of anti-inflammatory immunomodulatory active probiotics and preliminary identification of relevant components[J]. Chinese Journal of Preventive Veterinary Medicine, 2022, 44(12):1283-1289. (in Chinese)

[37]
刘奕彤, 韩楠楠, 杜鹃, 等. 罗伊氏乳杆菌提取物对牙周炎症微环境中巨噬细胞功能及牙槽骨吸收的影响研究[J]. 口腔颌面修复学杂志, 2024, 25(1):6-14.

LIU Y T, HAN N N, DU J, et al. Effect and mechanism of Lactobacillus reuteri extracts on the macrophage function and alveolar bone resorption in periodontitis microenvironment[J]. Chinese Journal of Prosthodontics, 2024, 25(1):6-14. (in Chinese)

文章导航

/