研究论文

饲粮中添加葡萄籽原花青素对康乐黄公鸡睾丸氧化损伤的影响

  • 丁香 , 1 ,
  • 胡威 , 1, 2, * ,
  • 李子怡 1 ,
  • 徐德明 1 ,
  • 樊庆灿 1, 2 ,
  • 杨雪 1, 2 ,
  • 郑文亚 1, 2
展开
  • 1 宜春学院生命科学与资源环境学院,宜春 336000
  • 2 江西省高等学校硒农业工程技术研究中心,宜春 336000
*胡 威,讲师,E-mail:

丁 香(2001—),女,江苏盐城人,本科生,从事动物生殖生理与发育生物学研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-07-30

  网络出版日期: 2025-02-16

基金资助

国家自然科学基金青年科学基金项目(32202762)

江西省教育厅科学技术研究项目(GJJ211628)

江西省教育厅科学技术研究项目(GJJ2201729)

宜春学院引进高层次人才科研启动基金项目(3360119068)

Effects of Dietary Grape Seed Proanthocyanidins on Testes Oxidative Damage of Kangle Yellow Roosters

  • DING Xiang , 1 ,
  • HU Wei , 1, 2, * ,
  • LI Ziyi 1 ,
  • XU Deming 1 ,
  • FAN Qingcan 1, 2 ,
  • YANG Xue 1, 2 ,
  • ZHENG Wenya 1, 2
Expand
  • 1 College of Life Science and Resources and Environment, Yichun University, Yichun 336000, China
  • 2 Engineering Technology Research Center of Jiangxi Universities and Colleges for Selenium Agriculture, Yichun 336000, China
*lecturer, E-mail:

Received date: 2024-07-30

  Online published: 2025-02-16

摘要

本试验旨在探究饲粮中添加葡萄籽原花青素(GSPs)对氧化应激条件下公鸡睾丸组织结构、抗氧化能力、抗凋亡能力和睾酮合成相关调控分子表达的影响。试验选取90只健康、体重相近的30日龄康乐黄公鸡,随机分成3组,每组3个重复,每个重复10只鸡。利用敌草快(DQ)作为氧化应激诱导剂。对照(CON)组和DQ组饲喂基础饲粮(不添加GSPs),GSPs+DQ组在基础饲粮中添加400 mg/kg的GSPs。各组饲喂相应饲粮30 d后,DQ组和GSPs+DQ组公鸡一次性腹腔注射25 mg/kg BW的DQ,对照组公鸡一次性腹腔注射等剂量的生理盐水,12 h后采集各组公鸡睾丸样品。预试期7 d,正试期31 d。结果显示:1)各组之间终末体重、平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)均无显著差异(P>0.05)。2)与CON组相比,DQ组睾丸组织中核因子红细胞2相关因子2(Nrf2)的mRNA相对表达量显著上调(P<0.05),半氧合酶-1(HO-1)的mRNA相对表达量显著下调(P<0.05),过氧化氢酶(CAT)活性及丙二醛(MDA)含量均显著升高(P<0.05);与DQ组相比,GSPs+DQ组睾丸组织中Nrf2和谷胱甘肽过氧化物酶1(Gpx1)的mRNA相对表达量显著上调(P<0.05),总超氧化物歧化酶(T-SOD)活性显著升高(P<0.05),MDA含量显著降低(P<0.05)。3)与CON组相比,DQ组睾丸组织生精小管中的生精细胞排列略为稀疏,生精小管间的睾丸间质细胞密度仍维持在较高水平;饲粮中添加GSPs可有效缓解DQ对公鸡睾丸组织结构的氧化损伤。4)与CON组相比,DQ组睾丸组织中B细胞淋巴瘤-2相关X蛋白(Bax)、半胱氨酸天冬氨酸蛋白酶3(Caspase3)的mRNA相对表达量均显著上调(P<0.05),Bax的蛋白相对表达量也显著上调(P<0.05),B细胞淋巴瘤-2(Bcl-2)的蛋白相对表达量显著下调(P<0.05);与DQ组相比,GSPs+DQ组睾丸组织中BaxCaspase3的mRNA和蛋白相对表达量显著下调(P<0.05),Bcl-2的mRNA和蛋白相对表达量均显著上调(P<0.05)。5)与CON组相比,DQ组睾丸组织中类固醇激素合成急性调节蛋白(StAR)、细胞色素P450家族成员11A1(Cyp11a1)和3β-羟基类固醇脱氢酶1(Hsd3b1)的mRNA和蛋白相对表达量均显著下调(P<0.05);与DQ组相比,GSPs+DQ组睾丸组织中StARCyp11a1和Hsd3b1的mRNA和蛋白相对表达量显著上调(P<0.05)。由此可见,饲粮中添加GSPs可有效缓解DQ诱导的氧化应激对公鸡睾丸组织结构、抗氧化能力、抗凋亡能力和睾酮合成相关调控基因表达的损伤。

本文引用格式

丁香 , 胡威 , 李子怡 , 徐德明 , 樊庆灿 , 杨雪 , 郑文亚 . 饲粮中添加葡萄籽原花青素对康乐黄公鸡睾丸氧化损伤的影响[J]. 动物营养学报, 2025 , 37(2) : 1033 -1046 . DOI: 10.12418/CJAN2025.090

Abstract

This experiment was conducted to investigate the effects of dietary grape seed proanthocyanidins (GSPs) on testis tissue structure, antioxidant capacity, anti-apoptosis ability and the expression of testosterone synthesis-related regulatory molecules of roosters under oxidative stress conditions. A total of 90 healthy Kangle yellow roosters at 30 days of age with similar body weight were randomly divided into 3 groups with 3 replicates per group and 10 roosters per replicate. Diquat (DQ) was used as an oxidative stress inducer. Roosters in the control (CON) group and DQ group were fed a basal diet (without adding GSPs), and others in the GSPs+DQ group were fed the basal diet supplemented with 400 mg/kg GSPs. After feeding the corresponding feed to each group for 30 days, roosters in the DQ group and GSPs+DQ group were injected with 25 mg/kg BW of DQ intraperitoneally, and others in the control group were injected with an equal volume of physiological saline. Collected the testis samples from each group of roosters 12 h later. The pre-trial period was 7 days, and the experimental period was 31 days. The results showed as follows: 1) there were no significant differences on the final body weight, average daily gain (ADG), average daily feed intake (ADFI) and feed-to-gain ratio (F/G) among all groups (P>0.05). 2) Compared with the CON group, the mRNA relative expression level of nuclear factor erythroid 2-related factor 2 (Nrf2) in testis tissue of the DQ group was significantly up-regulated (P<0.05), the haemoxygenase-1 (HO-1) mRNA relative expression level was significantly down-regulated (P<0.05), and the catalase (CAT) activity and malondialdehyde (MDA) content were significantly increased (P<0.05); compared with the DQ group, the mRNA relative expression levels of Nrf2 and glutathione peroxidase 1 (Gpx1) in testis tissue of the GSPs+DQ group were significantly up-regulated (P<0.05), the total superoxide dismutase (T-SOD) activity was significantly increased (P<0.05), and the MDA content was significantly decreased (P<0.05). 3) Compared with the CON group, the arrangement of spermatogenic cells in the seminiferous tubules of the testicular tissue in the DQ group was slightly less dense, while the density of interstitial cells between seminiferous tubules was still maintained at a high level. Dietary GSPs can effectively alleviate the oxidative damage to the testicular tissue structure under the action of DQ. 4) Compared with the CON group, the mRNA relative expression levels of B cell lymphoma-2 associated X protein (Bax) and cysteinyl aspartate specific proteinase 3 (Caspase3) in testis tissue of the DQ group were significantly up-regulated (P<0.05), the Bax protein relative expression level was significantly up-regulated (P<0.05), and the B cell lymphoma-2 (Bcl-2) protein relative expression level was significantly down-regulated (P<0.05); compared with the DQ group, the mRNA and protein relative expression levels of Bax and Caspase3 in testis tissue of the GSPs+DQ group were significantly down-regulated (P<0.05), and the Bcl-2 mRNA and protein relative expression levels were significantly up-regulated (P<0.05). 5) Compared with the CON group, the mRNA and protein relative expression levels of steroidogenic acute regulatory protein (StAR), cytochrome P450 family 11 subfamily A member 1 (Cyp11a1) and 3β-hydroxysteroid dehydrogenase (Hsd3b1) in testis tissue of the DQ group were significantly down-regulated (P<0.05); compared with the DQ group, the mRNA and protein relative expression levels of StAR, Cyp11a1 and Hsd3b1 in testis tissue of the GSPs+DQ group were significantly up-regulated (P<0.05). In conclusion, dietary GSPs can effectively alleviate the damage of oxidative stress to the testicular tissue structure, antioxidant ability, anti-apoptosis ability and testosterone synthesis-related regulatory molecules expression of roosters induced by DQ.[Chinese Journal of Animal Nutrition, 2025, 37(2):1033-1046]

动物在正常代谢过程中会产生包括活性氧(reactive oxygen species,ROS)和活性氮(reactive nitrogen species,RNS)在内的多种副产物,机体可通过自身抗氧化系统来清除这些副产物以维护体内的正常生理活动。然而,当机体受到某些因素作用导致体内氧化与抗氧化平衡遭到破坏时,便会引起机体内过多ROS、RNS等副产物的累积,诱导氧化应激的发生,并进一步促进器官组织中中性粒细胞浸润、蛋白酶分泌增加和氧化产物累积等[1],进而可对畜禽的器官组织结构和繁殖性能产生一定程度的损伤[2]。因此,提高畜禽的抗氧化能力对保护畜禽繁殖性能和促进畜禽养殖业健康发展具有重要意义。
课题组前期研究表明,氧化应激可引起公鸡睾丸组织结构受损,睾丸细胞凋亡水平升高,繁殖性能受到损伤[3]。此外,氧化应激还可直接引起种公鸡精液品质的下降,进而对种蛋的孵化率和健雏率产生不利影响,导致养殖场的经济效益受损[4]。核因子红细胞2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)对抗氧化基因的表达发挥着关键调控作用,当发生氧化应激时,Nrf2会进入细胞核,激活靶基因的转录过程,调动机体内各种抗氧化系统发挥作用[5]。半氧合酶-1(haemoxygenase-1,HO-1)是一种重要的抗氧化酶,能有效抑制氧化应激引起的细胞凋亡[6]。谷胱甘肽过氧化物酶1(glutathione peroxidase 1,Gpx1)是机体内重要的过氧化物分解酶,具有重要的抗氧化功能[7]。因此,Nrf2、HO-1和Gpx1可作为氧化应激发生的指示分子。核因子-κB(nuclear factor-kappa B,NF-κB)/p53信号通路在炎症反应过程中具有重要的调控作用,该信号通路的激活可进一步促进氧化应激的发生[8]。而氧化应激可进一步促进细胞凋亡的发生,B细胞淋巴瘤-2(B cell lymphoma-2,Bcl-2)、B细胞淋巴瘤-2相关X蛋白(B cell lymphoma-2 associated X protein,Bax)、半胱氨酸天冬氨酸蛋白酶3(cysteinyl aspartate specific proteinase 3,Caspase3)的蛋白表达水平及Bax/Bcl-2的比率对细胞凋亡的发生具有重要的调控作用[9]。联吡啶类除草剂敌草快(diquat,DQ)在动物机体内易转化为氧自由基,诱导氧化应激的发生,目前常作为氧化应激诱导剂而被广泛应用于科学研究中[10]
原花青素又称前花青素,是一种富含多酚的天然化合物,广泛存在于水果、蔬菜和植物中,尤其在葡萄籽中较为丰富[11]。大量研究表明,原花青素具有较强的抗氧化功能,可降低氧化应激对机体组织器官的损伤[12-13]。睾酮是睾丸间质细胞分泌的一种重要的类固醇激素,睾酮的产生与腺垂体分泌的促间质细胞激素密切相关,对雄性动物的繁殖性能具有重要的调控作用[14]。类固醇激素合成急性调节蛋白(steroidogenic acute regulatory protein,StAR)、3β-羟基类固醇脱氢酶1(3β-hydroxysteroid dehydrogenase,Hsd3b1)和细胞色素P450家族成员11A1(cytochrome P450 family 11 subfamily A member 1,Cyp11a1)在类固醇激素睾酮的合成过程中具有重要的调控作用[15]。研究表明,饲粮中添加葡萄籽原花青素(grape seed proanthocyanidins,GSPs)可显著提高绵羊肝脏的抗氧化功能[16]。然而,关于GSPs对公鸡睾丸氧化损伤影响的研究较少。因此,本研究利用DQ作为氧化应激诱导剂,旨在探究饲粮中添加GSPs对公鸡睾丸组织结构、抗氧化能力、抗凋亡能力及睾酮合成相关调控基因表达氧化损伤的影响,以期为缓解氧化应激对禽类繁殖性能损伤方法的探寻提供理论基础。

1 材料与方法

1.1 试验设计和饲养管理

本试验经宜春学院动物管理和使用委员会批准(JXSTUDKY2022009)。
试验选取同一批次的90只健康且体重[(0.24±0.02) kg]相近的30日龄康乐黄公鸡,经7 d适应性饲养后,随机分成3组,每组3个重复,每个重复10只鸡。对照(CON)组和DQ组饲喂基础饲粮(不添加GSPs),GSPs+DQ组在基础饲粮中添加400 mg/kg的GSPs。GSPs添加剂量参考李祺等[17]。基础饲粮参照《鸡饲养标准》(NY/T 33—2004)和《康乐鸡》(DB36/T 333—2019)进行配制,其组成及营养水平见表1。各组公鸡自由饮水,饲喂相应饲粮30 d后,DQ组和GSPs+DQ组公鸡一次性腹腔注射25 mg/kg BW的DQ,对照组公鸡一次性腹腔注射等剂量的生理盐水,作用12 h。预试期7 d,正试期31 d。试验所用GSPs由葡萄籽中提取获得,纯度为98%左右,成分主要包括儿茶素和表儿茶素,低聚原花青素含量高达62.4%。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
玉米Corn 66.70 代谢能ME/(MJ/kg) 12.59
豆粕Soybean meal 27.35 粗蛋白质CP 17.68
豆油Soybean oil 2.41 钙Ca 0.75
石粉Limestone 1.21 总磷TP 0.56
食盐NaCl 0.21 赖氨酸Lys 0.92
磷酸氢钙CaHPO4 0.92 蛋氨酸Met 0.42
L-赖氨酸盐酸盐L-Lys·HCl 0.11 非植酸磷NPP 0.34
DL-蛋氨酸DL-Met 0.09
预混料Premix1) 1.00
合计Total 100.00

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 9 000 IU,VB1 5 mg,VB2 10 mg,VB6 12 mg,VB12 30 μg,VD3 2 500 IU,VE 25 mg,VK3 3 mg,生物素 biotin 0.10 mg,叶酸 folic acid 3 mg,D-泛酸 D-pantothenic acid 20 mg,烟酸 nicotinic acid 30 mg,Cu 20 mg,Fe 320 mg,Mn 100 mg,Zn 200 mg,I 0.60 mg,Se 0.30 mg。

2)代谢能、非植酸磷为计算值,其他为测定值。ME and NPP were calculated values, while the others were measured values.

1.2 样品采集

正试期结束后,公鸡经颈动脉放血致死后,使用无菌器械采集睾丸组织,用无菌生理盐水冲洗干净,一部分样品放入到配制好的4%多聚甲醛中进行固定;另一部分放入冻存管于液氮中速冻暂存,再转移至-80 ℃冰箱中统一保存,用于后续相关试验。

1.3 指标测定

1.3.1 饲粮营养成分

基础饲粮中的代谢能是通过红外光谱分析获得的饲料成分的相应值计算所得,参考Cozannet等[18];非植酸磷含量是根据《鸡饲养标准》(NY/T 33—2004)计算所得。粗蛋白质含量的测定参考中华人民共和国国家标准《饲料中粗蛋白的测定凯氏定氮法》(GB/T 6432—2018)进行,钙和总磷含量的测定参考中华人民共和国农业行业标准《饲料中钙、钠、磷、镁、钾、铁、锌、铜、锰、钴和钼的测定原子发射光谱法》(NY/T 3318—2018)进行,氨基酸含量的测定参考中华人民共和国国家标准《饲料中氨基酸的测定》(GB/T 18246—2019)进行。

1.3.2 生长性能

正试期开始时,称量每个重复的试验鸡只体重作为初始体重;67日龄时,称量每个重复的试验鸡只体重作为终末体重。统计正试期内每组鸡的饲粮消耗量,计算各组试验鸡的平均日增重(average daily gain,ADG)、平均日采食量(average daily feed intake,ADFI)和料重比(feed to gain ratio,F/G)。

1.3.3 睾丸组织抗氧化指标

利用过氧化氢酶(catalase,CAT)、总超氧化物歧化酶(total superoxide dismutase,T-SOD)、丙二醛(malondialdehyde,MDA)检测试剂盒(上海碧云天生物技术有限公司)和全波长酶标仪对各组公鸡睾丸组织的抗氧化指标进行检测,所有操作步骤均严格按照试剂盒说明书进行。

1.3.4 睾丸组织结构

1.3.4.1 组织切片制作

各组公鸡睾丸组织块经4%多聚甲醛固定好之后,利用缓慢流动的自来水冲洗24 h以去除残留的固定液,然后经上行梯度酒精(50%、70%、80%、90%Ⅰ、90%Ⅱ、100%Ⅰ、100%Ⅱ)脱水、二甲苯透明、依次浸蜡(蜡Ⅰ、蜡Ⅱ、蜡Ⅲ)后,利用金属组织包埋框将组织包埋在混合蜡(蜡Ⅰ、蜡Ⅱ、蜡Ⅲ等比例混合)中制作成石蜡组织块,待石蜡组织块自然冷却凝固后,利用石蜡切片机将石蜡组织块切成5 μm厚的石蜡切片并平铺贴附在多聚赖氨酸处理后的载玻片上,最后在65 ℃展片台上烘干,保存备用。

1.3.4.2 苏木素-伊红(hematoxylin-eosin,HE)染色

参考课题组之前的方法[3],利用HE染色试剂盒(北京索莱宝科技有限公司)对制备好的各组公鸡睾丸组织石蜡切片进行HE染色,根据试剂盒说明书,切片经脱蜡水化处理后,利用苏木素和伊红染液分别对细胞核和细胞质进行染色,最后切片经脱水透明等处理后,利用中性树脂胶进行封片。生物显微镜下观察各组公鸡睾丸组织结构的变化情况,并拍照记录。

1.3.4.3 免疫组织化学(immunohistochemistry,IHC)

将制备好的公鸡睾丸组织石蜡切片经脱蜡水化处理后,利用柠檬酸盐修复液对组织抗原进行修复,其余操作步骤按照通用二步法检测试剂盒(北京中杉金桥生物技术有限公司)说明书进行,一抗(Rabbit anti-PCNA antibody,北京博奥森生物技术有限公司)利用1×磷酸盐缓冲液(phosphate buffered saline,PBS)分别按照1∶400的比例进行稀释后对组织切片于4 ℃条件下进行孵育,阴性对照仅用1×PBS进行孵育。利用二氨基联苯胺(diaminobenzidine,DAB)显色试剂盒(北京中杉金桥生物技术有限公司)对各组织切片进行显色,并利用苏木素染液对细胞核进行复染,然后组织切片经脱水、透明后进行封片,最后在显微镜下观察增殖细胞核抗原(proliferating cell nuclear antigen,PCNA)在各组公鸡睾丸组织中的表达定位情况,并拍照分析。阳性细胞的细胞核呈棕色,从每组公鸡睾丸组织切片中随机选取10个400×视野进行阳性细胞计数。

1.3.5 实时荧光定量PCR(quantitative real-time PCR,qRT-PCR)

参考课题组之前的方法[3],利用RNAiso Plus总RNA提取试剂盒(北京宝日医生物技术有限公司)提取各组织总RNA,所提取RNA的纯度和浓度经超微量分光光度计测定后,利用HiScript® Ⅱ QRT SuperMix for qPCR反转录试剂盒(南京诺唯赞生物科技股份有限公司)将RNA反转录成cDNA。根据NCBI所公布的相应物种目的基因的CDs序列并利用Primer Premier 6.0软件设计qRT-PCR所需引物,相关基因引物序列见表2,引物送至上海生工生物工程股份有限公司进行合成。利用ChamQTM SYBR® qPCR Master Mix试剂盒(南京诺唯赞生物科技股份有限公司)进行qRT-PCR反应,qRT-PCR反应体系(10 μL)为:2×ChamQ SYBR qPCR Master Mix 5 μL,上、下游引物(浓度4 μmol/L)各1 μL,cDNA模板液3 μL;qRT-PCR反应条件为:95 ℃预变性3 min,95 ℃变性10 s,60 ℃退火/延伸30 s,共40个循环;反应结束后导出各样品的Ct值,以β-肌动蛋白(β-actin)为内参,利用2-ΔΔCt法计算各样品中相应目的基因的mRNA相对表达量。
表2 qRT-PCR相关基因引物序列

Table 2 Related gene primer sequences for qRT-PCR

基因名称
Gene names
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
登录号
Accession number
核因子红细胞2相关因子2
Nrf2
F:GATGTCACCCTGCCCTTAGA
R:TCGTTCCATTTGTTCCTTCTG
108 NM_205117.1
半氧合酶-1
HO-1
F:TCATTGGCAAGAAGCATCCAGAGC
R:GAACTTGGTGGCGTTGGAGACTC
176 HM237181.1
谷胱甘肽过氧化物酶1
Gpx1
F:ACGGCGCATCTTCCAAAG
R:TGTTCCCCCAACCATTTCTC
73 NM_001277853.2
B细胞淋巴瘤-2相关X蛋白
Bax
F:GTGATGGCATGGGACATAGCTC
R:TGGCGTAGACCTTGCGGATAA
90 XM_015290060.3
B-细胞淋巴瘤-2
Bcl-2
F:AGTAGAGTCACCCAGTTTATCG
R:CTTTAGCCAGGAAGTTGTTT
113 NM_205339.2
半胱氨酸天冬氨酸蛋白酶3
Caspase3
F:AAGGCTCCTGGTTTATTC
R:CTGCCACTCTGCGATTTA
102 NM_204725.1
核因子κB
NF-κB
F:TCAACGCAGGACCTAAAGACAT
R:GCAGATAGCCAAGTTCAGGATG
162 NM_205134.1
肿瘤抑制基因p53
p53
F:GAGATGCTGAAGGAGATCAATGAG
R:GTGGTCAGTCCGAGCCTTTT
145 NM_205264
类固醇激素合成急性调节蛋白
StAR
F:TCAGCCGGCGGATTTAAGG
R:TGGTGGCTGCTACAAACACT
64 NM_204686.2
3β-羟基类固醇脱氢酶1
Hsd3b1
F:AAGGCAGATGGCCAGATGT
R:TGATGCGTCTGGCTTTCTGT
250 FJ_607242.1
细胞色素P450家族成员11A1
Cyp11a1
F:TTTGCCTTGGAGTCTGTG
R:GCCATGTCTTGGTGTTGA
178 NM_001001756.1
β-肌动蛋白
β-actin
F:CAGCCATCTTTCTTGGGTAT
R:CTGTGATCTCCTTCTGCATCC
169 NM_205518.1

1.3.6 蛋白免疫印迹(Western blot)

参考课题组之前的方法[3],利用组织总蛋白提取试剂盒(北京普利莱基因技术有限公司)提取各组织总蛋白,利用二辛可酸(bicinchoninic acid,BCA)蛋白分析试剂盒(武汉博士德生物工程有限公司)测定蛋白浓度,将蛋白溶液与5×十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(sodium dodecyl sulfate-polyacrylamide gel electrophoresis,SDS-PAGE)蛋白上样缓冲液(武汉博士德生物工程有限公司)按4∶1的比例进行混合后于95 ℃金属浴条件下变性10 min,利用SDS-PAGE凝胶制备试剂盒(武汉博士德生物工程有限公司)制备合适浓度的凝胶(浓缩胶浓度为5%、分离胶浓度为12%)进行电泳,将凝胶中分离后的蛋白转移至聚偏氟乙烯(polyvinylidene fluoride,PVDF)膜上,利用5%脱脂奶粉对转膜后的PVDF膜室温封闭2 h,再用含吐温-20的三乙醇胺缓冲盐水溶液(TBST)(北京索莱宝科技有限公司)进行漂洗,然后于配制好的一抗孵育液中于4 ℃摇床上孵育过夜(大于16 h),次日经TBST漂洗后,室温条件下于配制好的二抗(HRP-Goat anti-Rabbit IgG,上海艾博抗贸易有限公司)孵育液中孵育2 h,再用TBST进行漂洗,最后利用增强型化学发光液(enhanced chemiluminescence,ECL)进行显影并于化学发光成像仪中进行成像拍照,利用Image J软件进行条带的灰度值测定分析。

1.4 数据统计分析

试验数据利用SPSS 22.0软件进行单因素方差分析,差异显著者利用Duncan氏法进行多重比较。试验结果以平均值和均值标准误(SEM)表示,P<0.05为差异显著。使用GraphPad Prism 9.0软件绘制柱状图。

2 结果与分析

2.1 饲粮中添加GSPs对DQ诱导的公鸡生长性能的影响

表3可知,各组之间终末体重、ADG、ADFI和F/G均无显著差异(P>0.05)。
表3 饲粮中添加GSPs对DQ诱导的公鸡生长性能的影响

Table 3 Effects of dietary GSPs on growth performance of roosters induced by DQ

项目
Items
组别Groups SEM P
P-value
CON DQ GSPs+DQ
初始体重IBW/g 235.28 245.28 244.80 2.89 0.19
终末体重FBW/g 685.92 704.65 704.04 18.33 0.71
平均日增重ADG/(g/d) 15.02 15.31 15.30 0.61 0.86
平均日采食量ADFI/(g/d) 56.79 56.72 56.70 0.05 0.50
料重比F/G 3.78 3.70 3.71 0.19 0.41

同行数据肩标无字母表示差异不显著(P>0.05)。

In the same row, values with no letter superscripts mean no significant difference (P>0.05).

2.2 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织氧化应激指标的影响

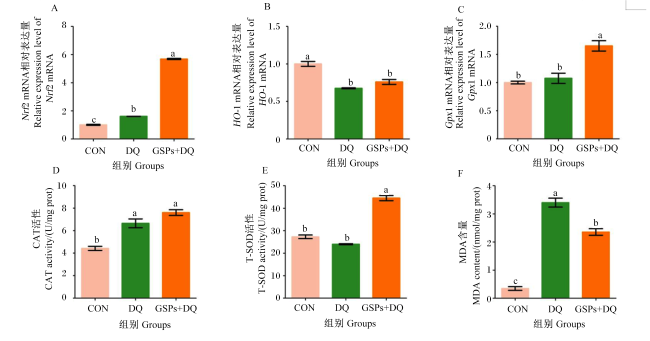
图1所示,与CON组相比,DQ组睾丸组织中Nrf2的mRNA相对表达量显著上调(P<0.05),HO-1的mRNA相对表达量显著下调(P<0.05),CAT活性及MDA含量均显著升高(P<0.05);与DQ组相比,GSPs+DQ组睾丸组织中Nrf2和Gpx1的mRNA相对表达量显著上调(P<0.05),T-SOD活性显著升高(P<0.05),MDA含量显著降低(P<0.05)。以上结果表明,DQ诱导可引起公鸡睾丸的抗氧化系统激活,而饲粮中添加GSPs可进一步增强公鸡睾丸组织的抗氧化能力。
图1 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织氧化应激指标的影响

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of dietary GSPs on oxidative stress indices in testis tissue of roosters induced by DQ

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.3 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织结构损伤的影响

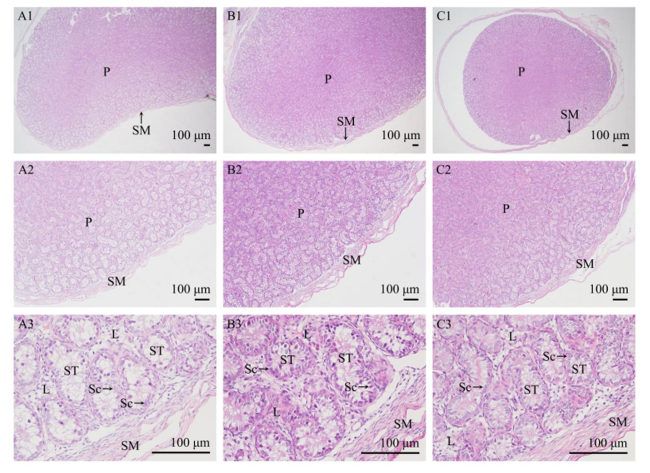
图2所示,HE染色结果显示,与CON组相比,DQ组睾丸间质细胞数量和密度仍维持在较高水平,生精细胞排列较为稀疏;饲粮中添加GSPs可使DQ诱导的公鸡睾丸组织上述损伤得到一定程度的缓解,睾丸间质细胞数量和密度明显降低,生精细胞排列基本恢复至较为致密的状态。以上结果表明,饲粮中添加GSPs可在一定程度上保护公鸡睾丸组织结构免受DQ诱导引起的氧化损伤。
图2 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织结构损伤的影响

A1~A3:CON组睾丸组织的HE染色;B1~B3:DQ组睾丸组织的HE染色;C1~C3:GSPs+DQ组睾丸组织的HE染色。A1 to A3: HE staining of testis tissue in CON group; B1 to B3: HE staining of testis tissue in DQ group; C1 to C3: HE staining of testis tissue in GSPs+DQ group.

SM:被膜;P:实质;L:睾丸间质细胞;Sc:生精细胞;ST:生精小管。图3同。SM: serous membrane; P: parenchyma; L: leydig cells; Sc: spermatogenic cell; ST: seminiferous tubule. The same as Fig.3.

Fig.2 Effects of dietary GSPs on testis tissue structural damage of roosters induced by DQ

2.4 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织生精细胞增殖的影响

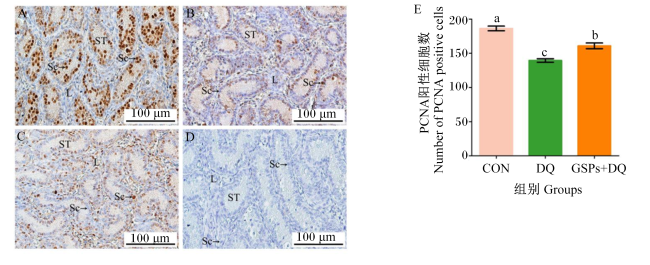
图3所示,与CON组相比,DQ组睾丸组织中PCNA阳性生精细胞数显著降低(P<0.05);与DQ组相比,GSPs+DQ组睾丸组织中PCNA阳性生精细胞数显著升高(P<0.05)。以上结果表明,饲粮中添加GSPs可有效缓解DQ诱导的氧化应激对公鸡睾丸组织中生精细胞增殖的抑制作用。
图3 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织生精细胞增殖的影响

A:CON组睾丸组织的PCNA染色;B:DQ组睾丸组织的PCNA染色;C:GSPs+DQ组睾丸组织的PCNA染色;D:阴性对照,CON组睾丸组织;E:各组睾丸组织PCNA阳性生精细胞数目统计。PCNA:增殖细胞核抗原。

Fig.3 Effects of dietary GSPs on spermatogenic cells proliferation in testis tissue of roosters induced by DQ

A: PCNA staining of testis tissue in CON group; B: PCNA staining of testis tissue in DQ group; C: PCNA staining of testis tissue in GSPs+DQ group; D: negative control, the testis tissue in control group; E: count of PCNA-positive spermatogenic cells in testis tissue of each group. PCNA: proliferating cell nuclear antigen.

2.5 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织细胞凋亡的影响

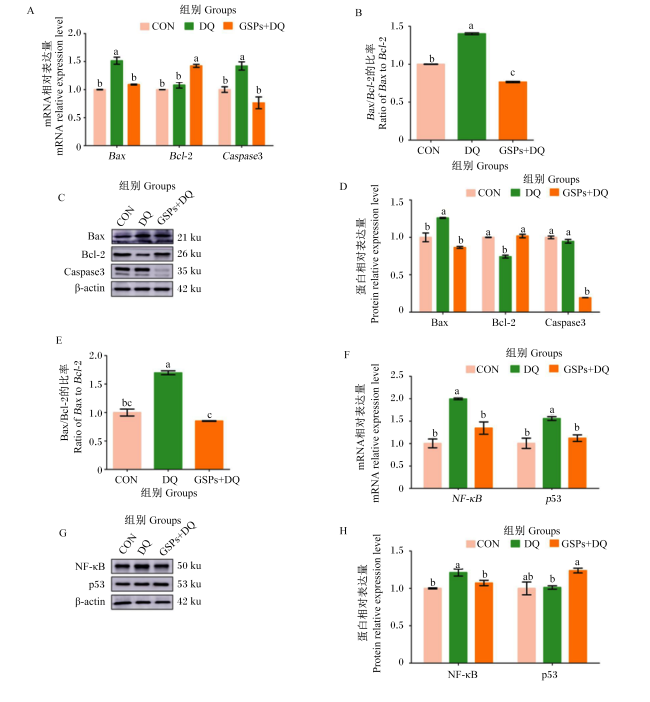
图4所示,与CON组相比,DQ组睾丸组织中促凋亡相关基因BaxCaspase3的mRNA相对表达量及Bax/Bcl-2的mRNA相对表达量比率均显著上调(P<0.05),同时Bax的蛋白相对表达量及Bax/Bcl-2的蛋白相对表达量比率也显著上调(P<0.05),抗凋亡相关蛋白Bcl-2的蛋白相对表达量显著下调(P<0.05);与DQ组相比,GSPs+DQ组睾丸组织中BaxCaspase3的mRNA和蛋白相对表达量显著下调(P<0.05),且Bax/Bcl-2的mRNA及蛋白相对表达量比率均显著下调(P<0.05),Bcl-2的mRNA和蛋白相对表达量均显著上调(P<0.05)。以上结果表明,饲粮中添加GSPs可在一定程度上抑制DQ诱导的公鸡睾丸组织细胞凋亡水平的上升趋势。
图4 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织细胞凋亡的影响

Bax:B细胞淋巴瘤-2相关X蛋白 B cell lymphoma-2 associated X protein;Bcl-2:B细胞淋巴瘤-2 B cell lymphoma-2;Caspase3:半胱氨酸天冬氨酸蛋白酶3 cysteinyl aspartate specific proteinase 3;NF-κB:核因子-κB nuclear factor-kappa B;β-actin:β-肌动蛋白。

Fig.4 Effects of dietary GSPs on testis tissue apoptosis of roosters induced by DQ

进一步研究显示,与CON组相比,DQ组睾丸组织中炎症反应相关基因NF-κBp53的mRNA相对表达量显著上调(P<0.05),NF-κB的蛋白相对表达量同样显著上调(P<0.05);与DQ组相比,GSPs+DQ组睾丸组织中NF-κBp53的mRNA相对表达量显著下调(P<0.05),p53蛋白相对表达量显著上调(P<0.05)。以上结果表明,饲粮中添加GSPs可有效抑制DQ对公鸡睾丸组织中NF-κB/p53信号通路的激活。

2.6 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织中睾酮合成相关调控分子表达的影响
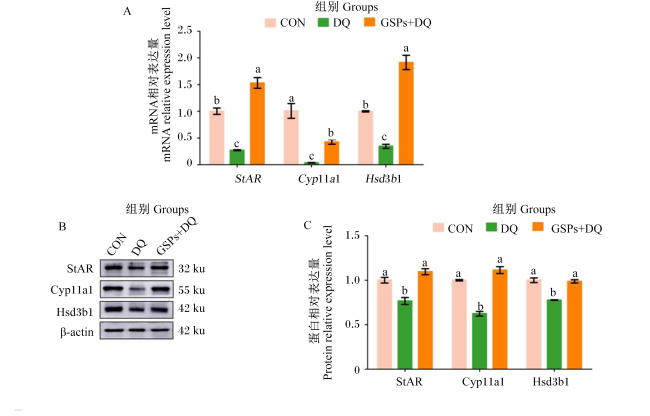
图5所示,与CON组相比,DQ组睾丸组织中睾酮合成相关调控分子StARCyp11a1和Hsd3b1的mRNA和蛋白相对表达量均显著下调(P<0.05);与DQ组相比,GSPs+DQ组睾丸组织中StARCyp11a1和Hsd3b1的mRNA和蛋白相对表达量显著上调(P<0.05)。此外,GSPs+DQ组睾丸组织中StARHsd3b1的mRNA相对表达量显著高于CON组(P<0.05)。以上结果表明,饲粮中添加GSPs可有效降低DQ诱导的氧化应激对公鸡睾丸组织中睾酮合成相关调控分子表达的损伤程度。
图5 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织中睾酮合成相关调控分子表达的影响

StAR:类固醇激素合成急性调节蛋白 steroidogenic acute regulatory protein;Hsd3b1:3β-羟基类固醇脱氢酶1 3β-hydroxysteroid dehydrogenase 1;Cyp11a1:细胞色素P450家族成员11A1 cytochrome P450 family 11 subfamily A member 1;β-actin:β-肌动蛋白。

Fig.5 Effects of GSPs on expression of testosterone synthesis-related molecules in testis tissue of roosters induced by DQ

3 讨论

3.1 饲粮中添加GSPs对DQ诱导的公鸡生长性能的影响

ADG、ADFI和F/G是最为常用的动物生长性能检测指标。田跃等[19]研究发现,饲粮中添加100和200 mg/kg的GSPs可显著提高21~42日龄肉鸡ADG,降低F/G。陈姗姗等[20]研究也表明,饲粮中添加160 mg/kg的GSPs可显著提高1~42日龄肉鸡ADG,降低F/G。但本试验结果发现,饲粮中添加GSPs对37~67日龄康乐黄公鸡ADG、ADFI和F/G均未产生显著影响,说明GSPs对生长性能的影响可能与GSPs在饲粮中的添加剂量、禽类日龄或品种有关。而任继武等[21]在四川白鹅饲粮中添加100和150 mg/kg的GSPs后,发现GSPs对白鹅43~63日龄ADG、ADFI及F/G均无显著影响,这与本研究结果一致,说明GSPs对禽类生长性能的影响可能还与禽的品种有关。

3.2 饲粮中添加GSPs对DQ诱导的公鸡睾丸组织氧化应激的影响

畜禽在生长繁殖过程中极易受到机体内外多种应激诱导因素的影响,其中氧化应激是引起鸡生长和繁殖性能受损的主要因素之一[22]。研究表明,饲粮中添加100 mg/kg的GSPs可有效提高氧化应激条件下大鼠肾脏组织中CAT、超氧化物歧化酶(SOD)等抗氧化酶活性,降低MDA含量,提高肾脏的抗氧化能力,降低氧化应激和细胞凋亡对大鼠肾脏组织的损伤[23]。饲粮中添加100和150 mg/kg的GSPs可显著上调四川白鹅肝脏和肾脏组织中SOD活性,降低MDA含量,提高肝脏和肾脏的抗氧化能力[21]。李祺等[17]在发情期母兔饲粮中添加300 mg/kg的GSPs后,母兔血清中CAT、SOD活性显著提高,MDA含量显著降低,提高了发情期母兔的抗氧化能力。另有研究表明,GSPs可通过激活Nrf2抗氧化信号通路提高雄鼠的抗氧化能力,降低过量氟化物对肝脏组织的氧化损伤[24]。张茹等[25]在幼龄大鼠中的研究也发现,GSPs可通过激活Nrf2/HO-1抗氧化信号通路提高海马组织中SOD活性和降低MDA含量,保护幼龄大鼠记忆能力免受氧化应激的损害。本试验发现,饲粮中添加GSPs可有效提高DQ诱导的康乐黄公鸡睾丸组织中T-SOD活性,同时降低MDA含量;此外,睾丸组织中Nrf2抗氧化信号通路也得到了激活,提高了Gpx1的mRNA相对表达量,说明饲粮中添加GSPs可有效提高康乐黄公鸡睾丸的抗氧化能力,缓解DQ对公鸡睾丸组织的氧化损伤,与上述报道一致。

3.3 饲粮中添加GSPs对DQ诱导的公鸡睾丸细胞凋亡的影响

氧化应激是诱导细胞凋亡发生的主要因素。研究表明,过氧化氢(H2O2)引起猪卵泡颗粒细胞发生氧化应激后可进一步诱导细胞凋亡的发生,GSPs可有效抑制H2O2作用下颗粒细胞凋亡的发生[26]。细胞凋亡相关调控分子BaxBcl-2、Caspase3的表达及Bax/Bcl-2的比率是检测细胞凋亡的重要指标。研究发现,过量氟化物的摄入可引起大鼠肝脏组织中促凋亡蛋白BaxCaspase3的mRNA表达显著上调,Bcl-2的mRNA表达显著下调,肝脏组织结构发生损伤,GSPs处理可显著抑制BaxCaspase3的表达及促进Bcl-2的表达,下调Bax/Bcl-2的比率,有效降低肝细胞凋亡率,缓解肝脏组织结构的损伤程度[24]。张丹丹等[27]研究发现,GSPs处理心肌缺血再灌注损伤模型小鼠后,可显著下调心肌Caspase3的蛋白表达和心肌细胞凋亡率,对小鼠心肌缺血再灌注损伤发挥一定的保护作用。顺铂(cisplatin,cDDP)可显著提高小鼠睾丸支持细胞TM4细胞凋亡水平,GSPs处理可上调cDDP作用下TM4细胞中Bcl-2的蛋白表达,抑制Bax和Caspase3的蛋白表达,进而抑制cDDP诱导TM4细胞的凋亡[28]。本试验结果表明,饲粮中添加GSPs可有效缓解DQ对公鸡睾丸组织结构的氧化损伤,恢复睾丸的正常发育水平及生精细胞的增殖水平,抑制睾丸组织中BaxCaspase3的表达,促进Bcl-2的表达,下调Bax/Bcl-2的比率,抑制睾丸组织细胞凋亡的发生,与上述在其他动物中的研究结果是一致的,说明GSPs能够在大部分动物器官组织中发挥无较大差别的抗细胞凋亡作用。
炎症反应是诱导细胞凋亡的另一重要因素。研究发现,铜或砷等重金属污染可引起鸡骨骼肌氧化应激的发生,进而激活NF-κB/p53炎症反应信号调控通路,并最终导致骨骼肌细胞凋亡水平的提高[29]。另有研究表明,DQ作用PC12细胞后可引起ROS的产生和激活NF-κB/p53信号通路,进而导致线粒体功能障碍,促进细胞凋亡的发生[30]。这说明氧化应激在细胞或组织水平均能够有效引起NF-κB/p53炎症反应信号通路的激活,进而促进细胞凋亡的发生。本研究结果表明,DQ诱导康乐黄公鸡睾丸组织发生氧化应激后,同样能够激活NF-κB/p53信号通路,与上述报道一致。砷暴露大鼠经GSPs灌胃处理后,心肌组织中p53、Caspase3和Bax的蛋白表达水平均发生了显著下调,抑制心肌组织细胞凋亡的发生[31]。研究发现,GSPs预处理可明显抑制高血糖引起的大鼠血管内皮细胞TR-iBRB2细胞氧化应激的发生及NF-κB信号通路的激活,保护TR-iBRB2细胞免受高血糖应激的影响[32]。另有研究表明,GSPs处理能激活脂多糖(lipopolysaccharide,LPS)作用下小鼠单核巨噬细胞白血病细胞RAW264.7细胞的Nrf2/HO-1信号通路和抑制NF-κB信号通路,显著提高RAW264.7细胞的抗氧化及抗炎能力,降低LPS对RAW264.7细胞的炎症及氧化损伤[33]。本试验结果表明,DQ诱导可有效激活公鸡睾丸组织中NF-κB/p53信号通路,饲粮中添加GSPs同样可抑制DQ诱导的NF-κB/p53信号通路的激活,保护公鸡睾丸组织免受炎性损伤。这说明GSPs在细胞或组织水平均具有一定的抗氧化、抗炎作用,可针对多种氧化应激诱导因素发挥拮抗效应,保护细胞或组织免受细胞凋亡损伤。

3.4 饲粮中添加GSPs对DQ诱导的公鸡睾丸睾酮合成相关调控分子表达的影响

睾丸是雄性动物分泌睾酮的主要生殖器官,因此,睾酮合成对雄性动物睾丸发育情况具有重要指示作用[34]。而StAR、Cyp11a1和Hsd3b1对睾丸中睾酮的合成又发挥着重要的调控作用,因此,通过对这几个调控分子表达的检测,可在一定程度上反映睾丸的发育情况及其合成睾酮的能力等。研究发现,饲粮中添加硒可显著上调公鸡睾丸组织中StARCyp11a1和Hsd3b1的基因表达,进而提高血浆中睾酮水平[15]。本课题组之前的研究发现,DQ诱导的氧化应激会引起公鸡睾丸组织结构受损,显著下调睾酮合成相关调控分子StARCyp11a1和Hsd3b1的基因表达,说明氧化应激能够在对睾丸组织结构产生损伤的同时破坏睾酮的正常合成过程[3]。Tian等[35]研究发现,cDDP能够引起大鼠睾丸组织结构发生生精细胞脱落、生精上皮变薄等损伤,睾酮合成相关调控分子StARCyp11a1和Hsd3b1的基因表达显著下调,GSPs可有效缓解cDDP对睾丸组织结构的损伤,显著上调睾丸组织中StARCyp11a1和Hsd3b1的基因表达。本试验结果同样表明,饲粮中添加GSPs可显著上调DQ诱导的睾丸组织中StARCyp11a1和Hsd3b1的mRNA和蛋白相对表达量,降低DQ诱导的氧化应激对康乐黄公鸡睾丸组织结构及睾酮合成相关调控分子表达的损伤,与上述报道一致。这说明GSPs可在一定程度上缓解氧化应激对公鸡睾丸的损伤,降低氧化应激对公鸡部分繁殖性能的损伤。

4 结论

饲粮中添加400 mg/kg的GSPs可有效提高DQ诱导的康乐黄公鸡睾丸组织的抗氧化、抗凋亡能力,提高生精细胞的增殖能力,缓解氧化应激对公鸡睾丸组织结构及睾酮合成相关调控分子的损伤。
[1]
FENG S J, YANG M X, LIU S P, et al. Oxidative stress as a bridge between age and stroke:a narrative review[J]. Journal of Intensive Medicine, 2023, 3(4):313-319.

[2]
LI Q, LIU M R, SUN Y, et al. SLC6A8-mediated intracellular creatine accumulation enhances hypoxic breast cancer cell survival via ameliorating oxidative stress[J]. Journal of Experimental & Clinical Cancer Research, 2021, 40(1):168.

[3]
吴冰燕, 曹原, 刘思丽, 等. 氧化应激对公鸡睾丸组织结构及睾酮合成相关基因表达的影响[J]. 农业生物技术学报, 2024, 32(3):605-616.

WU B Y, CAO Y, LIU S L, et al. Effects of oxidative stress on testicular structure and expression of genes related to testosterone synthesis in roosters (Gallus gallus)[J]. Journal of Agricultural Biotechnology, 2024, 32(3):605-616. (in Chinese)

[4]
孙彤彤, 闵育娜, 刘福柱, 等. VC和VE对氧化应激种公鸡繁殖性能的影响[J]. 中国家禽, 2014, 36(22):28-32.

SUN T T, MIN Y N, LIU F Z, et al. Effect of dietary vitamin C and vitamin E on reproductive performance of oxidative-stress roosters[J]. China Poultry, 2014, 36(22):28-32. (in Chinese)

[5]
ZUO C C, CAO H, SONG Y, et al. Nrf2:an all-rounder in depression[J]. Redox Biology, 2022, 58:102522.

[6]
LUO D, GUO Y M, CHENG Y Y, et al. Natural product celastrol suppressed macrophage M1 polarization against inflammation in diet-induced obese mice via regulating Nrf2/HO-1,MAP kinase and NF-κB pathways[J]. Aging, 2017, 9(10):2069-2082.

[7]
ZHU J N, SHEN H, LI G H, et al. Theaflavin pretreatment ameliorates renal ischemia/reperfusion injury by attenuating apoptosis and oxidative stress in vivo and in vitro[J]. Biomedicine & Pharmacotherapy, 2024, 171:116114.

[8]
ZINATIZADEH M R, SCHOCK B, CHALBATAIN G M, et al. The nuclear factor kappa B (NF-κB)signaling in cancer development and immune diseases[J]. Genes & Diseases, 2020, 8(3):287-297.

[9]
ZUO R K, WANG C, YU Z Y, et al. A high concentrate diet inhibits forkhead box protein A2 expression,and induces oxidative stress,mitochondrial dysfunction and mitochondrial unfolded protein response in the liver of dairy cows[J]. Microbial Pathogenesis, 2024, 188:106570.

[10]
CAO S T, WU H, WANG C C, et al. Diquat-induced oxidative stress increases intestinal permeability,impairs mitochondrial function,and triggers mitophagy in piglets[J]. Journal of Animal Science, 2018, 96(5):1795-1805.

[11]
BAGCHI D, BAGCHI M, STOHS S J, et al. Cellular protection with proanthocyanidins derived from grape seeds[J]. Annals of the New York Academy of Sciences, 2002, 957:260-270.

PMID

[12]
ZOU Y P, ZHANG Q C, ZHANG Q Y, et al. Procyanidin B2 alleviates oxidative stress-induced nucleus pulposus cells apoptosis through upregulating Nrf2 via PI3K-Akt pathway[J]. Journal of Orthopaedic Research, 2023, 41(7):1555-1564.

[13]
ZHU X Z, TIAN X, YANG M L, et al. Procyanidin B2 promotes intestinal injury repair and attenuates colitis-associated tumorigenesis via suppression of oxidative stress in mice[J]. Antioxidants & Redox Signaling, 2021, 35(2):75-92.

[14]
KIM J H, PARK S J, KIM T S, et al. Testosterone production by a Leydig tumor cell line is suppressed by hyperthermia-induced endoplasmic reticulum stress in mice[J]. Life Sciences, 2016, 146:184-191.

[15]
HENG D, ZHANG T, TIAN Y, et al. Effects of dietary soybean isoflavones (SI) on reproduction in the young breeder rooster[J]. Animal Reproduction Science, 2017, 177:124-131.

DOI PMID

[16]
牟春堂, 谢蕴哲, 申玉萍, 等. 葡萄籽原花青素对高精料育肥绵羊肝脏炎症反应、抗氧化功能的影响及代谢组学分析[J]. 动物营养学报, 2024, 36(7):4447-4461.

DOI

MU C T, XIE Y Z, SHEN Y P, et al. Effects of grape seed proanthocyanidins on liver inflammation and antioxidant function of fattening sheep fed a high-concentrate diet and metabolomic analysis[J]. Chinese Journal of Animal Nutrition, 2024, 36(7):4447-4461. (in Chinese)

DOI

[17]
李祺, 梁慧, 龙润泽, 等. 饲粮中添加葡萄籽原花青素对热应激母兔繁殖性能及其仔兔生长性能的影响[J]. 动物营养学报, 2023, 35(12):7988-8000.

DOI

LI Q, LIANG H, LONG R Z, et al. Effects of dietary grape Seed procyanidins on reproductive performance of female rabbits and growth performance of offspring under heat stress[J]. Chinese Journal of Animal Nutrition, 2023, 35(12):7988-8000. (in Chinese)

DOI

[18]
COZANNET P, JLALI M, MOORE D, et al. Evaluation of phytase dose effect on performance,bone mineralization,and prececal phosphorus digestibility in broilers fed diets with varying metabolizable energy,digestible amino acids,and available phosphorus concentration[J]. Poultry Science, 2023, 102(7):102755.

[19]
田跃, 董红刚, 沈泽锋. 葡萄籽原花青素对肉鸡生长性能、免疫功能和经济效益的影响[J]. 饲料研究, 2022, 45(12):28-31.

TIAN Y, DONG H G, SHEN Z F. Effect of grape seed proanthocyanidins on growth performance,immune function and economic benefit of broilers[J]. Feed Research, 2022, 45(12):28-31. (in Chinese)

[20]
陈姗姗, 孙桂芳. 葡萄籽原花青素对肉鸡生长性能和肉品质风味的影响[J]. 中国饲料, 2023(24):177-180.

CHEN S S, SUN G F. Effects of grape seed proanthocyanidin on growth performance,meat quality and flavor of broilers[J]. China Feed, 2023(24):177-180. (in Chinese)

[21]
任继武, 陈哲秀, 乔君毅, 等. 葡萄籽原花青素对四川白鹅生长性能和抗氧化能力的影响[J]. 动物营养学报, 2023, 35(12):7817-7827.

DOI

REN J W, CHEN Z X, QIAO J Y, et al. Effects of grape seed proanthocyanidins on growth performance and antioxidant capacity of Sichuan white geese[J]. Chinese Journal of Animal Nutrition, 2023, 35(12):7817-7827. (in Chinese)

[22]
ZOU Y, LIU S B, ZHANG Q, et al. Effects of aflatoxin B1 on growth performance,carcass traits,organ index,blood biochemistry and oxidative status in Chinese yellow chickens[J]. The Journal of Veterinary Medical Science, 2023, 85(9):1015-1022.

[23]
WANG E H, YU Z L, PING G F, et al. Grape seed procyanidin extract attenuate sodium fluoride-induced oxidative damage and apoptosis in rat kidneys[J]. Biomedical and Environmental Sciences, 2020, 33(6):454-457.

DOI PMID

[24]
WEI R, PING G F, LANG Z T, et al. Grape seed proanthocyanins protect fluoride-induced hepatotoxicity via the Nrf2 signaling pathway in male rats[J]. Toxicology Research, 2024, 13(2):tfae039.

[25]
张茹, 曲中原, 杜娟. 葡萄籽原花青素通过Nrf2/HO-1通路减轻镉诱导的幼龄大鼠认知功能损伤[J]. 中药药理与临床, 2021, 37(4):32-36.

ZHANG R, QU Z Y, DU J. Proanthocyanidins in grape seeds protects against cadmium-induced cognitive impairment in young rats by regulating Nrf-2/HO-1 pathway[J]. Pharmacology and Clinics of Chinese Materia Medica, 2021, 37(4):32-36. (in Chinese)

[26]
ZHANG J Q, REN Q L, CHEN J F, et al. Downregulation of miR-192 alleviates oxidative Stress-Induced porcine granulosa cell injury by directly targeting Acvr2a[J]. Cells, 2022, 11(15):2362.

[27]
张丹丹, 胡书群, 杨荣礼, 等. 葡萄籽原花青素对小鼠心肌缺血再灌注损伤的保护作用[J]. 中成药, 2023, 45(3):955-960.

ZHANG D D, HU S Q, YANG R L, et al. Protective effect of grape seed proanthocyanidins on myocardial ischemia-reperfusion injury in mice[J]. Chinese Traditional Patent Medicine, 2023, 45(3):955-960. (in Chinese)

[28]
杜月梅, 韩何丹, 郭卓雨, 等. 葡萄籽原花青素对顺铂诱导小鼠睾丸支持细胞TM4细胞凋亡的影响[J]. 食品科学, 2020, 41(9):98-104.

DOI

DU Y M, HAN H D, GUO Z Y, et al. Effect of grape seed proanthocyanidin extract on cisplatin-induced apoptosis of mouse testicular sertoli TM4 cells[J]. Food Science, 2020, 41(9):98-104. (in Chinese)

DOI

[29]
ZHAO H J, WANG Y, SHAO Y Z, et al. Oxidative stress-induced skeletal muscle injury involves in NF-κB/p53-activated immunosuppression and apoptosis response in copper (Ⅱ) or/and arsenite-exposed chicken[J]. Chemosphere, 2018, 210:76-84.

[30]
CHOI S E, PARK Y S, KOH H C. NF-κB/p53-activated inflammatory response involves in diquat-induced mitochondrial dysfunction and apoptosis[J]. Environmental Toxicology, 2018, 33(10):1005-1018.

DOI PMID

[31]
刘梦瑶. 葡萄籽原花青素对砷暴露大鼠心脏保护作用的研究[D]. 硕士学位论文. 沈阳: 沈阳医学院, 2021.

LIU M Y. Study on the protective effects of grape seed proanthocyanidins extract on the heart of rats exposed to arsenic[D]. Master’s Thesis. Shenyang: Shenyang Medical College, 2021. (in Chinese)

[32]
ZOU W J, LU Q Y, ZHU X, et al. Procyanidin B2 protects TR-iBRB2 cells against hyperglyc emia stress by attenuating oxidative stress and inflammasome activation via regulation of redoxosomes/NF-kB signaling[J]. Current Molecular Medicine, 2023, 23(10):1095-1103.

[33]
WANG Q Q, GAO H W, YUAN R Y U, et al. Procyanidin A2,a polyphenolic compound,exerts anti-inflammatory and anti-oxidative activity in lipopolysaccharide-stimulated RAW264.7 cells[J]. PLoS One, 2020, 15(8):e0237017.

[34]
SMITH G T, BRENOWITZ E A, WINGFIELD J C. Roles of photoperiod and testosterone in seasonal plasticity of the avian song control system[J]. Journal of Neurobiology, 1997, 32(4):426-442.

PMID

[35]
TIAN M M, LIU F F, LIU H, et al. Grape seed procyanidins extract attenuates cisplatin-induced oxidative stress and testosterone synthase inhibition in rat testes[J]. Systems Biology in Reproductive Medicine, 2018, 64(4):246-259.

DOI PMID

文章导航

/