研究论文

基于子宫黏膜转录组研究调控蛋鸡产蛋后期蛋壳质量相关的基因和信号通路

  • 邵丹 ,
  • 瞿源 ,
  • 刘良基 ,
  • 童海兵 , *
展开
  • 江苏省家禽科学研究所,扬州 225125
*童海兵,研究员,硕士生导师,E-mail:

邵 丹(1988—),女,江苏溧阳人,副研究员,博士,研究方向为家禽健康养殖。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-08-23

  网络出版日期: 2025-02-16

基金资助

现代农业产业技术体系专项资金项目(CARS-40-S23)

Study of Key Genes and Signaling Pathways Regulating Laying Hens’ Eggshell Quality in Late Laying Period Based on Transcriptome Sequencing of Uterine

  • SHAO Dan ,
  • QU Yuan ,
  • LIU Liangji ,
  • TONG Haibing , *
Expand
  • Jiangsu Institute of Poultry Science, Yangzhou 225125, China
*professor, E-mail:

Received date: 2024-08-23

  Online published: 2025-02-16

摘要

本研究通过比较高、低质量蛋壳力学特性、超微结构和蛋鸡的子宫组织形态、基因表达差异,挖掘调控产蛋后期蛋壳质量的重要候选基因和信号通路。选用80周龄海兰褐蛋鸡12只,6只产鸡蛋蛋壳质量相对好[蛋壳强度为(3.54±0.11) kg/cm2,蛋壳厚度为(385.06±12.46) μm]的为高质量组(HQE组),6只产鸡蛋蛋壳质量相对差[蛋壳强度为(2.54±0.07) kg/cm2,蛋壳厚度为(256.17±18.36) μm]的为低质量组(LQE组),每组每天收集6枚鸡蛋,累计收集5 d。鸡蛋称重后采用蛋壳强度仪测定蛋壳强度,螺旋测微仪测定蛋壳厚度,计算蛋壳比例;采用扫描电子显微镜观察蛋壳的超微结构,测定蛋壳有效层厚度、乳突层厚度和乳突宽度,计算乳突层厚度比例;运用组织切片技术比较2组蛋鸡子宫组织形态差异;运用转录组测序(RNA-seq)技术,比较2组子宫样本之间的差异表达基因(DEGs),并对其进行GO和KEGG富集分析。结果显示:与LQE相比,HQE组蛋壳强度、蛋壳厚度、蛋壳重和蛋壳比例显著增加(P<0.05),蛋壳有效层厚度、乳突层厚度和乳突层厚度比例显著增加(P<0.05),蛋鸡子宫黏膜组织管状腺细胞排布更紧密,子宫黏膜绒毛高度显著增加(P<0.05)。以LQE组为对照组,在HQE组子宫黏膜中筛选到303个DEGs,其中103个表达上调,200个表达下调;GO功能分析显示DEGs主要富集在DNA复制、免疫应答等生物过程;KEGG分析发现DEGs主要富集在细胞因子-细胞因子受体互作、Th17细胞分化、肿瘤坏死因子(TNF)、Toll样受体等与免疫、炎症反应相关的信号通路,其中信号转导和转录激活因子1(STAT1)、CC趋化因子受体2(CCR2)、CC趋化因子配体4(CCL4)、CC趋化因子配体20(CCL20)、白细胞介素18受体1(IL18R1)等基因在以上通路中反复富集,且在HQE组显著下调。由以上结果可知,产蛋后期蛋壳力学特性和超微结构变差的同时伴随着蛋鸡子宫组织形态变差,功能分析显示子宫黏膜组织上细胞因子-细胞因子受体互作等信号通路可能通过调控子宫免疫应答、炎症反应相关基因的表达在蛋壳矿化过程中发挥重要作用,该结果可为精准改善产蛋后期蛋壳质量提供理论依据。

本文引用格式

邵丹 , 瞿源 , 刘良基 , 童海兵 . 基于子宫黏膜转录组研究调控蛋鸡产蛋后期蛋壳质量相关的基因和信号通路[J]. 动物营养学报, 2025 , 37(2) : 1221 -1233 . DOI: 10.12418/CJAN2025.106

Abstract

This study aimed to identify important candidate genes and signaling pathways associated with eggshell quality by comparing the mechanical property, ultrastructure of higher and lower quality eggshells as well as the uterine morphology and gene expression of laying hens. Twelve Hy-Line brown laying hens aged 80-weeks were selected in the experiment, and 6 hens with higher eggshell quality [with (3.54±0.11) kg/cm2 eggshell strength and (385.06±12.46) μm eggshell thickness] were selected as the high quality group (HQE group), and 6 hens with lower eggshell quality [with (2.54±0.07) kg/cm2 eggshell strength and (256.17±18.36) μm eggshell thickness)] were selected as the low quality group (LQE group). Each group collected 6 eggs a day for 5 days. After weighing of the egg, the eggshell strength was measured with an eggshell strength meter, the eggshell thickness was determined by a spiral micrometer, and then eggshell ratio was calculated; the ultrastructure of eggshell such as the effective layer thickness, mammillary layer thickness and mammillary width were observed with a scanning electron microscope, and the mammillary thickness layer ratio was calculated; histological section technique was used to compare the uterine morphological differences between two groups; RNA-seq technology was employed to compare the differentially expressed genes (DEGs) of uterine samples between the two groups, and these DEGs were analyzed for GO and KEGG enrichment. The results showed that, in comparison with the LQE group, the eggshell strength, eggshell thickness, eggshell weight and eggshell ratio in HQE group were significantly increased (P<0.05), as well as the eggshell effective layer thickness, mammillary layer thickness and mammillary layer thickness ratio (P<0.05). In respect to uterine morphology, the mucosal tubular gland cells of uterine in HQE group were more tightly arranged, and the height of the villi of the uterine mucosa was significantly higher than in LQE group (P<0.05). The LQE group was selected as the control group, and 303 DEGs were identified, including 103 up-regulated DEGs and 200 down-regulated DEGs. GO analysis suggested the DEGs were mainly enriched in DNA replication and immune response and other related biological processes. KEGG analysis indicated enriched pathways primarily associated with immune and inflammatory response, including cytokine-cytokine receptor interaction, Th17 cell differentiation, tumor necrosis factor (TNF) and Toll-like receptor signaling pathways, among which signal Transducer and activator of transcription 1 (STAT1), CC chemokine receptor 2 (CCR2), CC chemokine ligand 4 (CCL4), CC chemokine ligand 20 (CCL20) and interleukin 18 receptor 1 (IL18R1) were repeatedly enriched in these pathways, and these genes were significantly down-regulated in the HQE group. From the above results, it can be concluded that the deterioration of mechanical properties and ultrastructure of eggshell in late laying period was accompanied by the deterioration of uterine tissue morphology. By functional analysis, signaling pathways such as cytokine-cytokine receptor interaction in uterine mucosa might play an important role in the process of eggshell mineralization by regulating the expression of genes related to uterine immune and inflammatory responses. These results provided theoretical basis for improving eggshell quality in the late laying period of hens.

近年来为了降低饲料成本,提高土地、水源等资源利用率和减少碳排放,蛋鸡行业提出了100周龄产蛋500枚的发展目标,这其中产蛋后期在整个蛋鸡生产周期的比例大大提高,因而产蛋后期蛋壳质量下降的问题更加突出。据统计,产蛋后期蛋壳质量下降造成的鸡蛋破损率达到总产蛋量的12%~20%[1],这在影响了养殖户经济效益和阻碍了蛋鸡延养计划的实施的同时[2],亦增加了食品安全风险。蛋鸡子宫部是蛋壳形成的器官,产蛋后期蛋鸡子宫由于功能减退易造成子宫疾病感染和衰老,从而导致蛋壳的矿化异常,影响了蛋壳厚度、蛋壳强度等多项蛋壳指标,可能造成易破鸡蛋的产生[3]。因此,通过深入研究蛋鸡子宫状态与蛋壳质量下降的潜在机制可以助力改善产蛋后期蛋壳质量。蛋壳的形成是在输卵管远端的子宫部,需要耗时18~20 h进行复杂的矿化过程形成完整的蛋壳结构[4],因此子宫内矿化过程的状态直接决定了蛋壳质量的好坏。而随着蛋鸡周龄的增长,蛋鸡子宫上皮细胞会出现脱落、坏死等现象,且固有层中管状腺细胞密度逐渐减少,子宫黏膜巨噬细胞和CD8+T细胞数量显著增加[5],与T细胞活性相关基因如RAS癌基因家族成员(member RAS oncogene family,RAB7B)、γ-谷氨酰转移酶5(gamma-glutamyltransferase 5,GGT5)等的表达上调[6],促炎细胞因子白细胞介素1β(IL1β)的表达上调,子宫局部免疫反应的激活和炎症反应的稳态逐步被打乱[7],最终会影响蛋壳的形成。通过分析产高、低蛋壳强度鸡蛋的蛋鸡子宫状态,研究者认为在老龄蛋鸡中出现相对较低的蛋壳强度主要归因于子宫组织损伤导致的钙转运降低[8-9],从而影响蛋壳钙化并产生较差的蛋壳。不同产蛋时期或不同周龄蛋鸡子宫功能差异已有分析,且子宫的生理状态介导产蛋后期鸡蛋蛋壳质量已明确,然而从转录组水平上系统解析产蛋后期蛋鸡子宫功能差异的研究尚少。鉴于此,本试验以产不同蛋壳质量鸡蛋的海兰褐蛋鸡为研究对象,通过分析蛋壳力学特性、蛋壳超微结构和子宫切片的差异,并采用转录组测序技术对蛋鸡子宫黏膜组织进行测序分析,筛选影响蛋壳质量的候选基因和信号通路,以期为精准改善产蛋后期蛋壳质量提供理论依据。

1 材料与方法

1.1 试验时间和地点

本试验经江苏省家禽科学研究所实验动物福利与动物实验伦理审查委员会批准(批准号:No.2022—0015)。蛋鸡养殖于2022年6月在江苏省家禽科学研究所仪征基地完成,样品测定在江苏省家禽科学研究所实验室进行。

1.2 试验材料

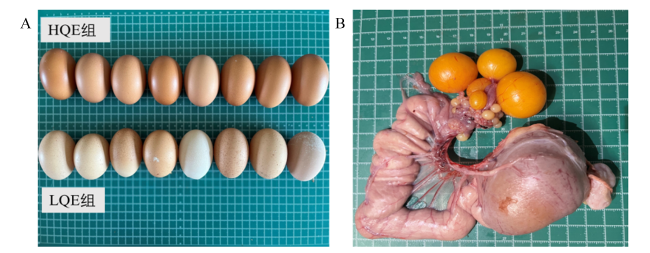
选取1 256只80周龄(产蛋率为83.23%)健康的海兰褐蛋鸡,单笼饲养于3层阶梯笼(23 cm×38 cm×39 cm)中,自由采食和饮水,光照时间为16 h(05:00—21:00)。基础饲粮参考《海兰褐饲养管理手册》推荐的产蛋后期蛋鸡营养需要配制成粉状饲粮,其组成及营养水平见表1。饲粮中粗蛋白质、钙和总磷含量分别参照GB/T 6432—2018、GB/T 6436—2018和GB/T 6437—2018方法进行测定。试验前1周,每天06:00—14:00观察蛋鸡产蛋时间和鸡蛋质量,选取至少5 d所产鸡蛋蛋壳质量相对好[蛋壳色泽鲜亮、触感光滑,蛋壳强度为(3.54±0.11) kg/cm2,蛋壳厚度为(385.06±12.46) μm]的6只试验鸡作为高质量组(HQE组),选取至少5 d所产鸡蛋蛋壳质量相对差[蛋壳色泽苍白暗淡、触感粗糙,蛋壳强度为(2.54±0.07) kg/cm2,蛋壳厚度为(256.17±18.36) μm]的6只试验鸡作为低质量组(LQE组)(图1-A)。第81周,06:00开始观察并记录试验鸡的产蛋时间,在蛋壳钙化初始期即于产蛋后8~9 h[7-8](图1-B),将鸡放血并采集蛋鸡子宫组织切片样和子宫黏膜组织样(剪开子宫部后中间位置取切片样,然后用刀片轻轻刮取子宫黏膜组织样),分别用于子宫组织形态分析、转录组测序分析。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 57.48
豆粕Soybean meal 23.00
麦麸Wheat bran 8.25
石粉Limestone 9.60
磷酸氢钙CaHPO4 0.95
蛋氨酸Met 0.10
氯化钠NaCl 0.30
氯化胆碱Choline chloride 0.09
微量元素预混料Microelement premix1) 0.20
多维Multi-vitamins2) 0.03
合计Total 100.00
营养水平Nutrient levels3)
代谢能ME/(MJ/kg) 10.69
粗蛋白质CP 15.59
蛋氨酸Met 0.34
赖氨酸Lys 0.73
钙Ca 3.83
总磷TP 0.54
有效磷AP 0.32

1)微量元素预混料为每千克饲粮提供 Microelement premix provided the following per kg of the diet:Cu 10 mg,Fe 60 mg,Zn 48 mg,Mn 60 mg,Se 0.3 mg,I 0.40 mg,Co 0.30 mg。

2)多维为每千克饲粮提供 Multi-vitamins provided the following per kg of the diet:VA 9 840 IU,VD3 3 750 IU,VE 18 IU,VK 1.80 mg,VB1 1.50 mg,VB2 6.6 mg,VB6 2.4 mg,VB12 0.009 mg,D-生物素 D-biotin 0.045 mg,D-泛酸钙 D-pantothenate calcium 10.5 mg,烟酰胺 nicotinamide 30 mg,叶酸 folic acid 0.6 mg。

3)粗蛋白质、钙和总磷为实测值,代谢能、氨基酸和有效磷为参照NY/T 33—2004所得计算值。CP, Ca and TP were measured values, while ME, amino acids and AP were calculated values referred to NY/T 33—2004.

图1 试验鸡鸡蛋和生殖道形态

A:高质量组(HQE组)和低质量组(LQE组)鸡蛋;B:采样时蛋鸡生殖道状态。

Fig.1 Morphology of eggs and reproductive tract of experimental chickens

A: eggs of higher quality group (HQE group) and lower quality group (LQE group); B: reproductive tract status of laying hens at sampling time.

1.3 试验方法

1.3.1 蛋壳力学特性

将各组收集5 d的鸡蛋用于测定蛋壳力学特性。鸡蛋称重后,采用蛋壳强度仪(EFR-01,ORKA Food Technology,以色列)测定蛋壳强度;测定后将蛋壳洗净室温自然晾干后用电子天平称蛋壳重,并计算蛋壳比例[蛋壳比例(%)=(蛋壳重量/鸡蛋重量)×100];随后分别于蛋壳的钝端、锐端和赤道部3处取0.5 cm×0.5 cm大小的蛋壳,用螺旋测微器(IP65,桂林广陆数字测控有限公司)测定厚度,取平均值作为蛋壳厚度。

1.3.2 蛋壳超微结构

将最后1天收取的鸡蛋蛋壳用于测定蛋壳超微结构。取蛋壳赤道部1 cm×1 cm大小的蛋壳碎片,直接用双蒸水洗净室温晾干后(未去除蛋壳膜),将蛋壳固定在观测台上,进行喷金处理,利用扫描电子显微镜(GEMINI300,ZEISS,德国)在200倍下观察蛋壳的断面超微结构,每个蛋壳样观察5个点。根据文献[10]的方法使用Image J软件测定并计算蛋壳乳突层厚度、有效层厚度和乳突宽度,并计算乳突层厚度比例[乳突层厚度比例(%)=(乳突层厚度/总厚度)×100],其中有效层厚度是从蛋壳角质层顶部到栅栏层底部的长度。

1.3.3 子宫组织形态

采集1 cm×1 cm大小的子宫组织样品,用10%多聚甲醛溶液固定,固定好的子宫组织参照文献[11]中的方法进行脱水、石蜡包埋、苏木精-伊红(HE)染色,使用OLYMPUS BX43显微镜镜检染色的子宫组织切片,利用Image J软件随机选择5个视野测量子宫黏膜绒毛高度和绒毛宽度,其中绒毛高度为从子宫绒毛顶端至固有层顶部的长度[12-13],绒毛宽度为子宫绒毛两边缘的平均宽度[14]

1.3.4 子宫黏膜组织中总RNA提取、建库与转录组测序

子宫黏膜组织中总RNA用TRIzol试剂盒(Invitrogen,美国)提取。总RNA浓度和质量分别使用NanoDrop 2000(Thermo,美国)和Agilent 2100 Bioanalyzer(Agilent Technologies,美国)评估,RNA完整性使用1%无RNA酶琼脂糖凝胶电泳检测。质检合格后,用Oligo(dT)法分离mRNA,将其碎片化处理,构建cDNA文库,库检合格后采用Illumina NovaSeq 6000测序系统(Illumina,美国)进行测序,由广州基迪奥生物科技有限公司完成。将测序获得的原始数据(raw reads)进行质量控制,去除接头序列,过滤掉低质量和含N比例大于10%的reads后,获得高质量的序列(clean reads)进行下一步分析。

1.3.5 基因表达及差异表达基因(differentially expressed genes,DEGs)筛选与富集分析

利用HISAT2.2.4软件将clean reads与鸡参考基因组(Galgal 6.0)进行基因比对[15]。根据比对结果,利用RSEM计算每个样本中所有基因的FPKM值(表示每百万比对片段中比对到转录本每千个碱基的数量)[16]。采用DESeq2软件,使用错误发现率(false discovery rate,FDR)和差异倍数(fold change,FC)作为DEGs筛选的关键指标进行组间DEGs筛选[17],以FDR<0.05和|log2(FC)|>1作为DEGs的显著性阈值。DEGs基于GO Database数据库(http://www.geneontology.org/)、KEGG Database数据库(http://www.genome.jp/kegg/)进行基因功能注释和分类富集分析[18]

1.4 数据处理与分析

数据经Excel 2010处理后,采用SPSS 20.0软件的独立样本t检验来分析组间差异,数据均以平均值和均值标准误(SEM)表示,统计学差异显著水平定为P<0.05。

2 结果与分析

2.1 蛋壳力学特性和超微结构分析

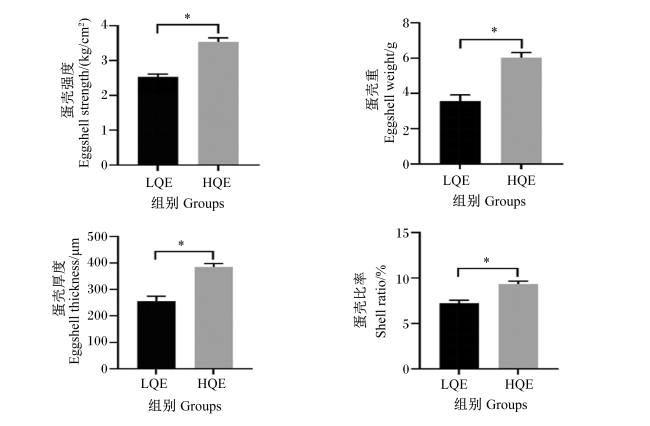
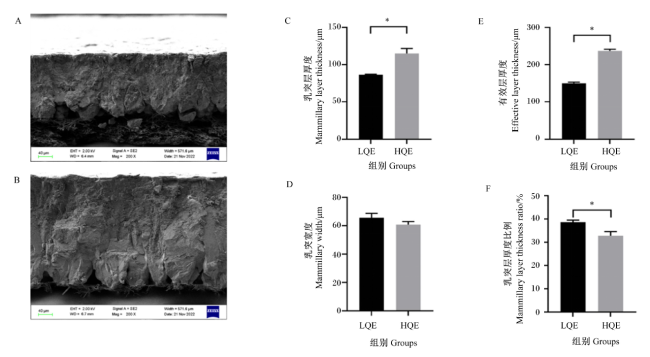
不同组鸡蛋蛋壳力学特性如图2所示,与LQE组相比,HQE组的蛋壳强度、蛋壳厚度、蛋壳重和蛋壳比例显著增加(P<0.05)。不同组鸡蛋蛋壳超微结构如图3所示,与LQE组相比,HQE组的蛋壳有效层厚度、乳突层厚度和乳突层厚度比例显著增加(P<0.05),乳突宽度无显著变化(P>0.05)。
图2 不同组鸡蛋蛋壳力学特性比较

“*”表示LQE组与HQE组之间差异显著(P<0.05)。下图同。

Fig.2 Comparison of eggshell mechanical properties of eggs in different groups

“*” mean significant difference between LQE group and HQE group (P<0.05). The same as below.

图3 不同组鸡蛋蛋壳超微结构观察及结构特性指标

A:LQE组蛋壳超微结构;B:HQE组蛋壳超微结构;C:乳突层厚度;D:乳突宽度;E:有效层厚度;F:乳突层厚度比例。

Fig.3 Eggshell ultrastructure observation and structural characteristic indexes of eggs in different groups

A: eggshell ultrastructure of LQE group; B: eggshell ultrastructure of HQE group; C: mammillary layer thickness; D: mammillary width; E: effective layer thickness; F: mammillary layer thickness ratio.

2.2 子宫组织形态分析

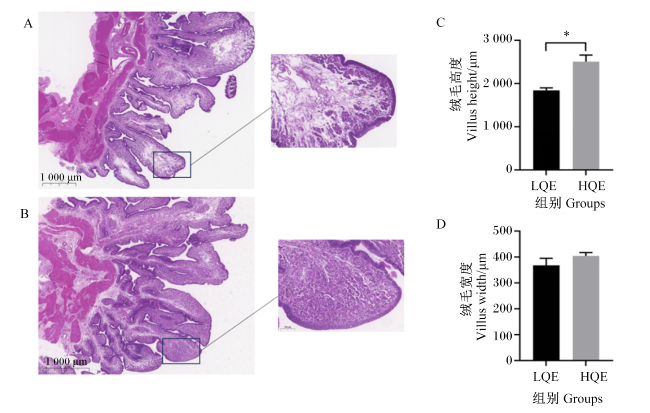
图4可知,与LQE组相比,HQE组的蛋鸡子宫黏膜组织管状腺细胞排布更紧密,子宫黏膜绒毛高度显著增加(P<0.05),绒毛宽度无显著变化(P>0.05)。
图4 不同组蛋鸡子宫组织形态及结构特性指标

A:LQE组子宫组织切片;B:HQE组子宫组织切片;C:绒毛高度;D:绒毛宽度。

Fig.4 Uterine morphology and structural characteristic indexes of laying hens in different groups

A: uterine tissue slice of LQE group; B: uterine tissue slice of HQE group; C: villus height; D: villus width.

2.3 子宫黏膜转录组测序数据统计

对LQE组和HQE组蛋鸡子宫黏膜组织样本进行转录组测序。由表2可知,LQE组6个样本(LQE-1~6)共获得297 869 278个raw read,HQE组6个样本(HQE-1~6)共获得279 995 880个raw reads,进行质控过滤后2组分别获得295 906 240和278 136 226个clean reads;2组Q30均值为92%,GC含量为47%,获得的有效数据与参考基因组比对率近94%,唯一位置比对率达92%。以上数据表明测序获得的数据质量高,可用于后续生物信息学分析。
表2 样本测序质量及与参考基因组比对信息统计

Table 2 Statistical analysis for sample sequence quality and mapping to reference genome

样本名称
Sample
names
原始数据
Raw reads
有效数据
Clean
reads
Q30均值
average value
of Q30/%
GC含量
GC
content/%
比对率
Mapped
ratio/%
唯一位置比对率
Uniquely
mapped ratio/%
LQE-1 50 684 164 50 373 290 90.49 47.05 93.74 91.82
LQE-2 48 578 746 48 265 766 90.85 46.69 93.41 91.73
LQE-3 50 222 706 49 876 896 91.20 47.24 92.91 90.85
LQE-4 44 590 776 44 275 172 92.67 47.64 93.85 92.04
LQE-5 51 259 208 50 943 432 93.26 47.36 94.19 92.16
LQE-6 52 533 678 52 171 684 92.48 46.49 93.93 92.19
HQE-1 50 398 792 50 083 424 92.42 47.25 93.89 92.12
HQE-2 47 530 956 47 172 332 93.12 47.38 94.14 92.21
HQE-3 51 218 254 50 894 722 92.97 48.15 93.39 91.49
HQE-4 45 646 138 45 333 466 92.78 47.86 93.56 91.66
HQE-5 43 131 244 42 845 270 92.98 47.69 93.98 92.10
HQE-6 42 070 496 41 807 012 92.58 47.40 93.98 92.14

2.4 DEGs功能富集分析

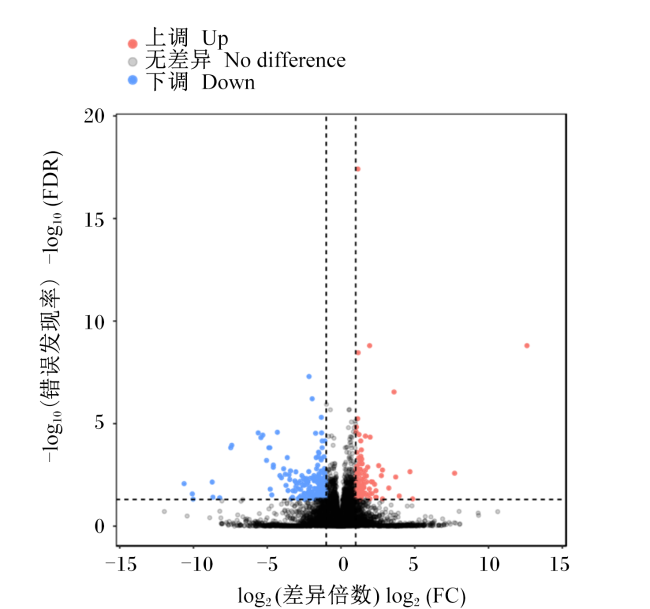
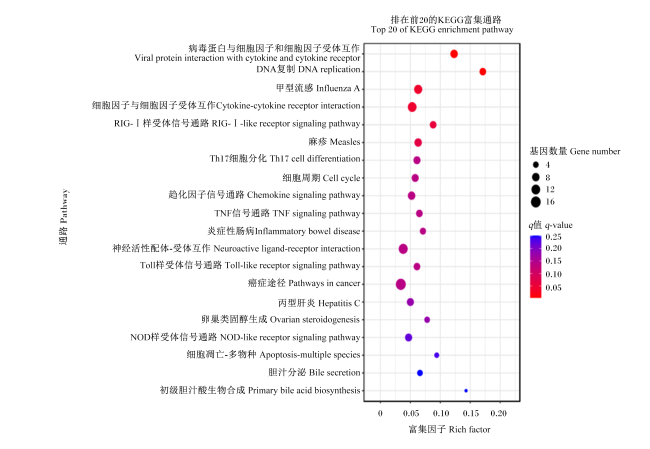
以FDR<0.05和|log2(FC)|>1作为筛选标准,以LQE组为对照组,筛选到303个DEGs,其中有103个DEGs在HQE组子宫黏膜组织中表达上调,200个DEGs表达下调(图5)。对DEGs进行GO功能富集分析,共显著富集到168个条目,其中细胞组成(cellular component,CC)11个,生物过程(biological progress)141个和分子功能(molecular function)16个。前20个显著富集的GO条目如表3所示,主要包括DNA复制、免疫应答等。KEGG富集分析获得的前20个KEGG通路条目如图6所示,主要富集在细胞因子-细胞因子受体互作、Th17细胞分化、肿瘤坏死因子(tumor necrosis factor,TNF)、Toll样受体等信号通路,其中信号转导和转录激活因子1(STAT1)、CC趋化因子受体2(CCR2)、CC趋化因子配体4(CCL4)、CC趋化因子配体20(CCL20)、白细胞介素18受体1(IL18R1)、白细胞介素15(IL15)等基因在以上通路中反复富集(表4),且在HQE组显著下调。
图5 不同组蛋鸡子宫黏膜组织中差异表达基因火山图

Fig.5 Volcano plots of DEGs in uterine mucosa tissues of laying hens in different groups

表3 差异表达基因前20个GO富集条目

Table 3 Top 20 enriched GO term of DEGs

分类
Classes
GO条目
GO term
基因数
Gene number
背景基因数
Background gene
number
Q
Q-value
细胞组分
Cellular component
DNA复制前起始复合物
DNA replication preinitiation complex
7 9 1.49E-09
解旋酶复合物CMG complex 7 9 1.49E-09
微小染色体维持复合物MCM complex 5 7 2.41E-06
细胞核染色质Nuclear chromosome 12 145 3.07E-05
生物过程
Biological process
DNA复制中涉及的DNA解旋
DNA unwinding involved in DNA replication
8 15 9.59E-08
防御应答Defense response 40 748 9.59E-08
免疫应答Immune response 39 764 4.56E-07
对其他生物应答Response to other organism 29 502 4.91E-06
对外界生物刺激应答Response to external biotic stimulus 29 505 4.91E-06
免疫系统过程Immune system process 52 1 364 5.91E-06
刺激应答Response to biotic stimulus 29 525 7.67E-06
依赖DNA的DNA复制
DNA-dependent DNA replication
13 103 7.67E-06
DNA双解璇DNA duplex unwinding 9 41 7.97E-06
DNA几何变化DNA geometric change 9 46 2.10E-05
对外界生物刺激的防御应答
Defense response to other organism
20 288 2.78E-05
对病毒的防御Defense response to virus 12 109 8.48E-05
外部刺激应答Response to external stimulus 46 1 297 1.89E-04
病毒应答Response to virus 14 165 1.89E-04
DNA构象改变DNA conformation change 13 149 3.23E-04
信号正向调节Positive regulation of signaling 38 996 3.27E-04
图6 差异表达基因前20个KEGG富集通路气泡图

Fig.6 Bubble map of top 20 KEGG enrichment pathways of DEGs

表4 与免疫、炎症相关的富集通路和差异表达基因

Table 4 Enrichment pathways and DEGs related to immune and inflammation

通路名称Pathway names 富集的差异表达基因Enriched DEGs
病毒蛋白与细胞因子和细胞因子受体互作
Viral protein interaction with cytokine and
cytokine receptor
CC趋化因子配体20(CCL20)、肿瘤坏死因子配体超家族成员10
(TNFSF10)、XC基序趋化因子配体1(XCL1)、CC趋化因子
配体4(CCL4)、白细胞介素18受体1(IL18R1)、CXC基序趋化因子
配12(CXCL12)、血小板因子4(PF4)、趋化因子受体2(CCR2)
细胞因子-细胞因子受体互作
Cytokine-cytokine receptor interaction
CCL20、Fas配体(FASLG)、白细胞介素21受体(IL21R)、
TNFSF10、白细胞介素15(IL15)、白细胞介素7受体(IL7R)、XCL1、
CCL4、IL18R11、CXCL12、PF4、CCR2
RIG-I样受体信号通路
RIG-I-like receptor signaling pathway
半胱天冬酶18(CASP18)、干扰素调节因子7(IRF7)、
DExH-box解旋酶58(DHX58)、跨膜蛋白173(TMEM173)、
PF4、雌激素反应锌指蛋白25(TRIM25)
Th17细胞分化
Th17 cell differentiation
IL21R、T细胞表面糖蛋白CD3复合体(CD3D)、信号转导和
转录激活因子1(STAT1)、细胞受体β位点(TRB)、
GATA结合蛋白3(GATA3)、干扰素调节因子9(IRF9)
趋化因子信号通路
Chemokine signaling pathway
CCL20、STAT1、腺苷酸环化酶2(ADCY2)、
XCL1、CCL4、CXCL12、PF4、CCR2
TNF信号通路
TNF signaling pathway
CCL20、干扰素调节因子1(IRF1)、CASP18、
半胱天冬酶7(CASP7)、IL15、IL18R1
Toll样受体信号通路
Toll-like receptor signaling pathway
STAT1、CASP18、IRF7、淋巴
细胞抗原96(LY96)、CCL4、PF4
Nod样受体信号通路
NOD-like receptor signaling pathway
嘌呤能受体P2X7(P2RX7)、STAT1、CASP18、
IRF7、TMEM173、PF4、鸟苷酸结合蛋白1(GBP1)

3 讨论

3.1 不同蛋壳质量鸡蛋蛋壳力学特性和超微结构差异

反映蛋壳质量的指标如蛋壳力学特性、表观指标等是鸡蛋重要的经济和外观性状,不仅可以保护鸡蛋的内在品质,亦是鸡蛋运输、销售等过程中的天然包装[19]。其中,评价蛋壳力学特性的指标主要包括蛋壳厚度、蛋壳强度[20]。本试验中比较了同一时期不同蛋壳质量的鸡蛋,发现HQE组鸡蛋蛋壳强度、蛋壳厚度以及蛋壳比例较LQE组增加,即蛋壳强度增加的同时伴随着蛋壳厚度增加,这印证了蛋壳厚度与蛋壳强度呈正相关这一观点[21]。相关研究认为蛋壳超微结构层厚度和比例的变化可能参与了蛋鸡蛋壳力学特性的改变[19]。本研究观察到,相比LQE组,HQE组鸡蛋蛋壳有效层厚度增加,乳突层厚度比例下降,这与现有的大部分研究报道[8-9,22]相符。有效层是决定蛋壳力学特性的主要结构特征,它的厚度占蛋壳总厚度的近2/3,其厚度与比例与蛋壳强度呈显著正相关[22];当有效层厚度及比例减少时会降低蛋壳强度,进而导致蛋壳破裂发生率提升[23]。此外,亦有研究者认为乳突层对蛋壳力学特性起主要决定作用[24],它是蛋壳裂纹产生的最初始位置[19]。蛋壳受到的外力一般集中在乳突的位点上,并沿着乳突间隙传播[25],当乳突层厚度比例增加后,其所受外力传播深度增加,进而蛋壳力学特性更易遭到损害。综上可知,增加蛋壳超微结构中有效层厚度、减少乳突层厚度有利于缓解产蛋后期鸡蛋蛋壳力学特性下降的趋势。

3.2 产不同蛋壳质量鸡蛋的蛋鸡子宫组织形态差异

子宫部是形成蛋壳的独有器官,它在结构和功能上的变化都直接影响了蛋壳的质量[26]。由于长期产蛋行为的刺激,产蛋后期蛋鸡子宫结构的完整性、组织形态等可能存在不同程度的损伤而造成其功能异常,包括出现子宫管状腺密度下降[27]、子宫内膜绒毛微绒毛消失等现象[28]。Fu等[9]研究发现,产较低蛋壳强度鸡蛋的蛋鸡子宫组织管状腺分布松散,并有少量炎症细胞浸润;Duan等[29]在雀斑蛋形成机制的研究中发现产雀斑蛋的蛋鸡子宫组织完整性差,管状腺密度下降,子宫黏膜上皮细胞的微绒毛密度下降。这些报道提示蛋鸡子宫部组织结构影响蛋壳的质量,这与本研究中因蛋鸡子宫组织管状腺细胞排布松散、子宫黏膜绒毛高度显著降低进而导致所产鸡蛋蛋壳质量较差的结果类似。鸡蛋进入子宫后就进入到蛋壳的钙化过程,该过程主要依赖子宫液中的矿物质等原料,规律性地沉积碳酸钙晶体,由内到外逐渐形成乳突层、栅栏层、垂直晶体层以及胶护膜[30]。众所周知,蛋壳矿化过程中所需要的物质包括钙、碳酸氢盐、蛋白质等大多数由子宫黏膜组织合成分泌,从而形成蛋壳特定的超微结构[4]。当子宫部形态发生不利变化势必会带来子宫部合成分泌功能紊乱、免疫力下降等问题[31],进而导致了蛋壳结构的异常变化,形成的蛋壳质量差,甚至会形成弱壳蛋和软壳蛋。因此,产蛋后期蛋鸡保持良好的子宫组织状态尤为重要。

3.3 产不同蛋壳质量鸡蛋的蛋鸡子宫转录组差异

有学者对产蛋高峰期产不同蛋壳强度鸡蛋的蛋鸡子宫进行了转录组分析,发现蛋壳矿化初期子宫中钙信号传导、离子转运等通路与蛋壳强度直接相关[8]。另有研究发现,与产蛋高峰期蛋鸡相比,产蛋后期蛋鸡子宫促炎因子含量增加,经蛋鸡子宫转录组分析发现产蛋后期蛋鸡子宫中参与蛋壳矿化的基质蛋白表达下调,进而引起蛋白质合成紊乱和免疫功能下降[7]。与产蛋高峰期蛋壳质量差异的子宫转录组结果不一致,本研究发现产蛋后期产不同蛋壳质量鸡蛋的蛋鸡子宫转录组中,DNA复制、免疫应答等是子宫黏膜组织DEGs的GO功能富集最多类别。对产不同蛋壳质量鸡蛋的蛋鸡子宫黏膜组织进行转录组测序,结果显示DNA复制、免疫应答等是子宫黏膜组织DEGs的GO功能富集最多类别。KEGG富集分析表明,DEGs主要富集到在细胞因子-细胞因子受体互作、Th17细胞分化与免疫和炎症应答信号通路等;筛选出STAT1、CCR2、CCL4、CCL20、IL18R1等是参与免疫、炎性反应的重要基因,说明产蛋后期蛋鸡子宫黏膜中与免疫、炎症反应相关基因的表达与其所产蛋壳质量的好坏关系密切。事实上,蛋壳破裂被认为主要是由传染病和衰老引起的且可能归因于子宫炎性损伤和免疫等机能紊乱[7,32-33]。在产蛋后期,部分蛋鸡由于子宫组织结构的破坏以及免疫活性细胞数量的减少,加剧了子宫免疫防御功能下降等异常变化,对病原菌和炎症的敏感性增强[31],必然会导致与免疫调节、炎症反应相关的通路如细胞因子-细胞因子受体互作信号通路[34]、Th17细胞分化信号通路[35]、TNF信号通路[36]、Toll样受体信号通路[37]被激活,进而造成蛋壳矿化过程异常。与此同时,本试验发现STAT1、CCR2、CCL4、CCL20、IL18R等基因在以上通路中反复富集。其中,STAT1被认为是控制细胞炎性表型的关键转录调控因子,STAT1的上调表达最终导致了细胞的炎性激活[38]。此外,趋化因子及其受体也参与调控机体稳态和炎症过程中的细胞活动,能在病理状态下调控宿主的反应[39]。本研究中发现,趋化因子CCL4和CCL20以及趋化因子受体CCR2在HQG组表达下调,而在LQG组表达上调,这可能是因为LQG组蛋鸡由于长期产蛋造成子宫组织免疫功能紊乱,引起相关趋化因子合成增加[31]。据报道,相比青年蛋鸡,老龄蛋鸡子宫黏膜组织中趋化因子CX3C基序趋化因子配体1(CX3CL1)和CXC基序趋化因子配体2(CXCL2)的表达量显著升高[5]。与之相似,Nii等[32]研究发现,在蛋鸡遭受鸡传染性支气管炎病毒弱毒苗感染后,子宫组织趋化因子受体5(CCR5)、XC基序趋化因子配体1(XCL1)等基因表达上调,进一步说明CC趋化因子作为趋化因子的亚族,在蛋鸡产蛋后期机体免疫系统和炎症反应中具有重要作用[40]。本研究不仅发现趋化因子相关基因表达存在差异,炎症因子相关基因如IL18R在2组蛋鸡子宫黏膜组织中表达也存在差异,这与Nii等[32]的研究发现相似,即趋化因子和炎症因子均在蛋壳矿化过程中发挥作用。且有研究表明,促炎细胞因子的活性可能会通过干扰蛋壳矿化过程中基质蛋白的作用效果和无机离子的供应效率,进而影响蛋壳的形成[41]。综上可知,当产蛋后期蛋鸡子宫黏膜组织状态发生改变,其防疫能力减退,导致机体免疫反应的激活和炎症反应的稳态被打乱,与免疫、炎症反应相关的通路被启动,进而扰乱蛋壳的形成。

4 结论

本试验通过比较高、低蛋壳质量鸡蛋的蛋壳力学特性、超微结构和蛋鸡的子宫组织形态,证实了蛋壳质量与蛋鸡子宫状态相关;产不同蛋壳质量鸡蛋的蛋鸡子宫黏膜组织转录组测序结果表明,细胞因子-细胞因子受体互作、Th17细胞分化、TNF、Toll样受体等信号通路以及通路上与免疫、炎性反应相关的基因如STAT1、CCR2、CCL4、CCL20、IL18R1等,在蛋壳矿化过程中发挥重要作用。
[1]
TRAVEL A, NYS Y, BAIN M M. Effect of hen age,moult,laying environment and egg storage on egg quality[M]// Improving the safety and quality of eggs and egg products:egg chemistry, production and consumption woodhead publishing series in food science,technology and nutrition. Cambridge: Woodhead Publishing, 2011:300-329.

[2]
GU Y F, CHEN Y P, JIN R, et al. A comparison of intestinal integrity,digestive function,and egg quality in laying hens with different ages[J]. Poultry Science, 2021, 100(3):100949.

[3]
张倚剑, 胡艳, 梁明振, 等. 改善产蛋后期鸡蛋蛋壳质量研究进展[J]. 动物营养学报, 2021, 33(2):686-697.

DOI

ZHANG Y J, HU Y, LIANG M Z, et al. Research progress on improving eggshell quality in late laying period[J]. Chinese Journal of Animal Nutrition, 2021, 33(2):686-697. (in Chinese)

[4]
KHAN S, WU S B, ROBERTS J. RNA-sequencing analysis of shell gland shows differences in gene expression profile at two time-points of eggshell formation in laying chickens[J]. BMC Genomics, 2019, 20(1):89.

DOI PMID

[5]
ELHAMOULY M, NII T, ISOBE N, et al. Expression of pro- and anti-inflammatory cytokines and chemokines during the ovulatory cycle and effects of aging on their expression in the uterine mucosa of laying hens[J]. Cytokine, 2018, 111:303-308.

DOI PMID

[6]
张帆, 侯卓成. 蛋鸡不同产蛋周龄子宫部转录组变化规律以及对蛋壳质量影响的研究[C]// 中国畜牧兽医学会2018年学术年会禽病学分会第十九次学术研讨会论文集. 南宁: 中国农业大学, 2018:1.

ZHANG F, HOU Z C. Study on transcriptome changes in uterus of laying hens at different laying weeks and its effect on eggshell quality[C]. Proceedings of the 19th Symposium of the Poultry Branch of the 2018 Academic Annual Meeting of the Chinese Society of Animal Husbandry and Veterinary Medicine. Nanning: China Agricultural University, 2018:1. (in Chinese)

[7]
FENG J, ZHANG H J, WU S G, et al. Uterine transcriptome analysis reveals mRNA expression changes associated with the ultrastructure differences of eggshell in young and aged laying hens[J]. BMC Genomics, 2020, 21(1):770.

DOI PMID

[8]
ZHANG J C, WANG Y N, ZHANG C, et al. The differences of gonadal hormones and uterine transcriptome during shell calcification of hens laying hard or weak-shelled eggs[J]. BMC Genomics, 2019, 20(1):707.

DOI PMID

[9]
FU Y, ZHOU J M, SCHROYEN M, et al. Decreased eggshell strength caused by impairment of uterine calcium transport coincide with higher bone minerals and quality in aged laying hens[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):37.

DOI PMID

[10]
张亚男, 金永燕, 庄智威, 等. 鸡蛋与鸭蛋的蛋壳力学特性、超微结构及蛋壳组分的比较[J]. 中国农业科学, 2022, 55(24):4957-4968.

DOI

ZHANG Y N, JIN Y Y, ZHUANG Z W, et al. Comparison of shell mechanical property,ultrastructure and component between chicken and duck eggs[J]. Scientia Agricultura Sinica, 2022, 55(24):4957-4968. (in Chinese)

[11]
JI G G, ZHANG M, LIU Y F, et al. A gene co-expression network analysis of the candidate genes and molecular pathways associated with feather follicle traits of chicken skin[J]. Journal of Animal Breeding and Genetics, 2021, 138(1):122-134.

[12]
MA Y F, YAO J W, ZHOU S, et al. Improvement of eggshell quality by dietary N-carbamylglutamate supplementation in laying chickens[J]. Poultry Science, 2020, 99(8):4085-4095.

DOI PMID

[13]
FENG J, LU M Y, MA L L, et al. Uterine inflammation status modulates eggshell mineralization via calcium transport and matrix protein synthesis in laying hens[J]. Animal Nutrition, 2023, 13:411-425.

DOI PMID

[14]
李丹. 饲粮中添加复合益生菌对产蛋不同阶段天府绿壳蛋鸡子宫部发育及蛋壳质量的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2023.

LI D. Effects of probiotics supplementation in the diet on uterine development and eggshell quality of tianfu green-shelled laying hens at different stages of egg production[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2023. (in Chinese)

[15]
KIM D, LANGMEAD B, SALZBERG S L. HISAT:a fast spliced aligner with low memory requirements[J]. Nature Methods, 2015, 12(4):357-360.

[16]
LI B, DEWEY C N. RSEM:accurate transcript quantification from RNA-seq data with or without a reference genome[J]. BMC Bioinformatics, 2011, 12:323.

[17]
LOVE M I, HUBER W, ANDERS S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2[J]. Genome Biology, 2014, 15(12):550.

[18]
SUBRAMANIAN A, TAMAYO P, MOOTHA V K, et al. Gene set enrichment analysis:a knowledge-based approach for interpreting genome-wide expression profiles[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(43):15545-15550.

[19]
马玲玲, 冯嘉, 王晶, 等. 海兰褐蛋鸡产蛋高峰至后期蛋壳品质的变化特征[J]. 中国农业科学, 2021, 54(17):3766-3779.

DOI

MA L L, FENG J, WANG J, et al. The changes of eggshell quality in the laying cycle of Hy-Line brown layers[J]. Scientia Agricultura Sinica, 2021, 54(17):3766-3779. (in Chinese)

DOI

[20]
张凯. 鸭蛋壳的力学特性及多孔超微结构的渗透特性研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2012.

ZHANG K. Research on mechanics of duck eggshells and its permeability of porous ultrastructure[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2012. (in Chinese)

[21]
常枨, 唐韶青, 晏志勋, 等. 北京油鸡不同蛋壳颜色鸡蛋蛋壳品质研究[J]. 中国家禽, 2023, 45(8):19-23.

CHANG C, TANG S Q, YAN Z X, et al. Eggshell quality of eggs with different eggshell color in Beijing You chicken[J]. China Poultry, 2023, 45(8):19-23. (in Chinese)

[22]
梅慧灵, 郑定黔, 赵邦哲, 等. 番鸭不同质地蛋壳超微结构及其与蛋壳强度的关联分析[J]. 动物营养学报, 2024, 36(2):1350-1360.

DOI

MEI H L, ZHENG D Q, ZHAO B Z, et al. Ultrastructure of eggshells with different textures in muscovy ducks and its correlation with eggshell strength[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):1350-1360. (in Chinese)

DOI

[23]
RADWAN L M. Eggshell quality:a comparison between fayoumi,gimieizah and brown Hy-Line strains for mechanical properties and ultrastructure of their eggshells[J]. Animal Production Science, 2016, 56:908-912.

[24]
周光玉. 蛋壳颜色、成分和结构与蛋壳质量关系的研究[D]. 硕士学位论文. 扬州: 扬州大学, 2010.

ZHOU G Y. The research on relationship between eggshell color,composition,structure and egg shell quality[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2010. (in Chinese)

[25]
DUNN I C, RODRÍGUEZ-NAVARRO A B, MCDADE K, et al. Genetic variation in eggshell crystal size and orientation is large and these traits are correlated with shell thickness and are associated with eggshell matrix protein markers[J]. Animal Genetics, 2012, 43(4):410-418.

DOI PMID

[26]
HUNTLEY D M, HOLDER D P. Ultrastructure of shell gland tissue from Hens producing good and poor eggshells1[J]. Poultry Science, 1978, 57(5):1365-1368.

[27]
WISTEDT A, RIDDERSTRÅLE Y, WALL H, et al. Age-related changes in the shell gland and duodenum in relation to shell quality and bone strength in commercial laying hen hybrids[J]. Acta Veterinaria Scandinavica, 2019, 61(1):14.

DOI PMID

[28]
PARK J A, SOHN S H. The influence of hen aging on eggshell ultrastructure and shell mineral components[J]. Korean Journal for Food Science of Animal Resources, 2018, 38(5):1080-1091.

[29]
DUAN G C, LIU W, HAN H X, et al. Transcriptome and histological analyses on the uterus of freckle egg laying hens[J]. BMC Genomics, 2023, 24(1):738.

DOI PMID

[30]
HINCKE M T, WELLMAN L O, MCKEE M D, et al. Biosynthesis and structural assembly of eggshell components[M]. New Jersey: John Wiley & Sons, 2007:97-128.

[31]
冯嘉. 蛋鸡产蛋后期鸡蛋蛋壳超微结构特征的形成机理与营养调控[D]. 硕士学位论文. 北京: 中国农业科学院, 2021.

FENG J. Mechanism of eggshell ultrastructure formation and nutritional modulation in the late phase production of laying hens[D]. Master’s Thesis. Beijing: Chinese of Academy of Agricultural Sciences Thesis, 2021. (in Chinese)

[32]
NII T, ISOBE N, YOSHIMURA Y. Effects of avian infectious bronchitis virus antigen on eggshell formation and immunoreaction in hen oviduct[J]. Theriogenology, 2014, 81(8):1129-1138.

DOI PMID

[33]
JIANG Q Y, SUN J J, HE Y, et al. Hydroxychloride trace elements improved eggshell quality partly by modulating uterus histological structure and inflammatory cytokines expression in aged laying hens[J]. Poultry Science, 2021, 100(11):101453.

[34]
宋祥军, 沈啸, 蒋胡艳, 等. 禽致病性大肠杆菌Hcp2b对雏鸡气管黏膜细胞因子-细胞因子受体相互作用通路的影响[J]. 畜牧兽医学报, 2021, 52(3):742-751.

DOI

SONG X J, SHEN X, JIANG H Y, et al. Effect of avian pathogenic Escherichia coli Hcp2b on the cytokine-cytokine receptor interaction pathway in chick tracheal mucosa[J]. Acta Veterinaria et Zootechnica Sinica, 2021, 52(3):742-751. (in Chinese)

[35]
武美序. 环境因素与Th17通路相关基因多态性与克罗恩病发病及临床表型关联的研究[D]. 硕士学位论文. 北京: 中国医学科学院北京协和医学院, 2020.

WU M X. The association research of environmental factors and Th17 pathway-related gene polymorphisms with Crohn’s disease and clinical phenotype[D]. Master’s Thesis. Beijing: Peking Union Medical College,Chinese Academy of Medical Sciences, 2020. (in Chinese)

[36]
徐倩, 刘磊, 郭玉蓉. 苹果多酚对小鼠巨噬细胞TNF信号通路的影响[J]. 甘肃农业大学学报, 2018, 53(6):10-18.

XU Q, LIU L, GUO Y R. Effect of apple polyphenols on TNF pathway in murine macrophage[J]. Journal of Gansu Agricultural University, 2018, 53(6):10-18. (in Chinese)

[37]
贺雅静, 谢勇. Toll样受体信号通路与TAM受体在炎症性肠病中的作用[J]. 中国免疫学杂志, 2021, 37(10):1271-1273,1278.

HE Y J, XIE Y. Role of Toll-like receptor signaling pathway and TAM receptor in inflammatory bowel disease[J]. Chinese Journal of Immunology, 2021, 37(10):1271-1273,1278. (in Chinese)

[38]
MA J W, WEI K K, LIU J W, et al. Glycogen metabolism regulates macrophage-mediated acute inflammatory responses[J]. Nature Communications, 2020, 11(1):1769.

DOI PMID

[39]
CHEN K Q, BAO Z Y, TANG P, et al. Chemokines in homeostasis and diseases[J]. Cellular & Molecular Immunology, 2018, 15(4):324-334.

[40]
孙佰鸣. 卵形鲳鲹趋化因子CCL4(TroCCL4)参与机体抗菌免疫反应[D]. 硕士学位论文. 海口: 海南大学, 2019.

SUN B M. TroCCL4,a CC chemokine of Tracjomptus ovatus,is involved in the antimicrobial immune response[D]. Master’s Thesis. Haikou: Hainan University, 2019. (in Chinese)

[41]
NARSALE A A, CARSON J A. Role of interleukin-6 in cachexia:therapeutic implications[J]. Current Opinion in Supportive and Palliative Care, 2014, 8(4):321-327.

文章导航

/