研究论文

植物多酚与硝基化合物协同降低体外瘤胃甲烷排放的作用研究

  • 谭健 , 1 ,
  • 张靖 1 ,
  • 杨东峰 1 ,
  • 韩赛波 1 ,
  • 余诗强 1 ,
  • 赵慧颖 1 ,
  • 蒋林树 1 ,
  • 赵玉超 , 1, * ,
  • 郭刚 , 2, *
展开
  • 1 北京农学院动物科学技术学院,北京 102206
  • 2 北京首农畜牧发展有限公司,北京 100176
*赵玉超,副教授,硕士生导师,E-mail: ;
郭 刚,正高级畜牧师,E-mail:

谭 健(2000—),男,湖南湘潭人,硕士研究生,研究方向为奶牛营养与免疫。E-mail:

Copy editor: 陈鑫

收稿日期: 2024-06-25

  网络出版日期: 2025-02-16

基金资助

家畜产业技术体系北京市创新团队(BAIC05-2022)

北京首农食品集团有限公司“乳业全产业链”绿色数智“技术集成创新与产业化应用”(SNSPKJ-2022)

Research on Synergistic Reduction of Methane Emissions from Ruminants by Plant Polyphenols and Nitro-Compounds

  • TAN Jian , 1 ,
  • ZHANG Jing 1 ,
  • YANG Dongfeng 1 ,
  • HAN Saibo 1 ,
  • YU Shiqiang 1 ,
  • ZHAO Huiying 1 ,
  • JIANG Linshu 1 ,
  • ZHAO Yuchao , 1, * ,
  • GUO Gang , 2, *
Expand
  • 1 College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
  • 2 Beijing Shounong Animal Husbandry Development Co., Ltd., Beijing 100176, China
*ZHAO Yuchao, associate professor, E-mail: ;
GUO Gang, senior livestock specialist, E-mail:

Received date: 2024-06-25

  Online published: 2025-02-16

摘要

本试验旨在通过体外法研究植物多酚与硝基化合物降低瘤胃甲烷(CH4)排放的作用机制。采用体外瘤胃模拟的方法,探究植物多酚协同硝基化合物对体外发酵产气量、发酵参数、微生物组成的影响,探究二者对瘤胃发酵和抑制CH4生成效果差异的协同机制。试验分为4组,分别为对照组(CON组)、添加50 mg/g的原花青素组(PC组)、添加10 mmol/L的硝基乙醇组(NEOH组)、添加25 mg/g原花青素+5 mmol/L的硝基乙醇组(MIX组),每个发酵瓶为1个平行,每组设10个平行,重复试验3次,发酵时间为24 h。结果显示:1)相比于CON组,MIX组总产气量显著降低(P<0.05),NEOH组和MIX组CH4产量显著降低(P<0.05)。2)相比于CON组,PC组瘤胃异丁酸和异戊酸的摩尔比例和乙丙比显著提高(P<0.05),丙酸的摩尔比例显著降低(P<0.05),NEOH组和MIX组乙酸的摩尔比例和乙丙比显著降低(P<0.05),丙酸的摩尔比例显著提高(P<0.05)。3)在细菌属水平中,10种微生物存在显著组间差异,其中相比于CON组,PC组、NEOH组普雷沃氏菌属相对丰度显著降低(P<0.05),而在MIX组中未发生显著变化(P>0.05),PC组琥珀酸弧菌科UCG-002相对丰度显著降低(P<0.05),而在NEOH组和MIX组中未发生显著变化(P>0.05),NEOH组和MIX组瘤胃杆菌属相对丰度显著升高(P<0.05),而PC组中未发生显著变化(P>0.05);在古菌属水平中,甲烷短杆菌属等5种微生物存在显著组间差异(P<0.05),其中相比于CON组,NEOH组、PC组和MIX组甲烷短杆菌属相对丰度显著升高(P<0.05),甲烷球形菌属相对丰度在NEOH组和PC组未发生显著变化(P>0.05),而在MIX组显著降低(P<0.05)。4)LEfSe分析结果显示,细菌属水平中,普雷沃氏菌属等3种微生物在CON组中显著富集,克里斯滕菌科R-7群、毛螺菌科NK3A20群和NK4A214群等13种微生物在PC组中显著富集,琥珀酸弧菌属和月形单胞菌属等4种微生物在NEOH组中显著富集,琥珀酸弧菌科UCG-002和反刍杆菌属等4种微生物在MIX组中显著富集;古菌属水平中,甲烷球形菌属等3种微生物在CON组中显著富集,PC组中1种未明确的甲烷短杆菌属显著富集,甲烷短杆菌属在MIX组中显著富集。综上所述,添加PC和NEOH能够影响瘤胃菌群结构,NEOH和MIX改变了瘤胃发酵模式,使其由乙酸生成型转变为丙酸生成型,进而降低CH4生成量,并且二者存在一定的协同作用。

本文引用格式

谭健 , 张靖 , 杨东峰 , 韩赛波 , 余诗强 , 赵慧颖 , 蒋林树 , 赵玉超 , 郭刚 . 植物多酚与硝基化合物协同降低体外瘤胃甲烷排放的作用研究[J]. 动物营养学报, 2025 , 37(2) : 1245 -1259 . DOI: 10.12418/CJAN2025.108

Abstract

This study aimed to investigate the mechanism by which plant polyphenols and nitro-compounds reduce rumen methane (CH4) emissions using an in vitro approach. Through in vitro rumen simulation, the study explores the effects of plant polyphenols in combination with nitro-compounds on gas production, fermentation parameters, and microbial composition during in vitro fermentation, as well as the synergistic mechanisms between the two in terms of their effects on rumen fermentation and methane suppression. The experiment is divided into four groups: control group (CON group), supplemented with 50 mg/g of procyanidins (PC) (PC group), supplemented with 10 mmol/L of nitroethanol (NEOH) (NEOH group), and supplemented with 25 mg/g of PC + 5 mmol/L of NEOH (MIX group), with 10 fermentation bottles in each group and a fermentation duration of 24 h. The results showed as follows: 1) compared with CON group, the total gas production of MIX group was significantly decreased (P<0.05), and the CH4 production of NEOH group and MIX group was significantly decreased (P<0.05). 2) Compared with CON group, the molar ratio of isobutyric acid and isovaleric acid in rumen and the ratio of ethylene to propylene in PC group were significantly increased (P<0.05), the molar ratio of propionic acid was significantly decreased (P<0.05), the molar ratio of acetic acid and the ratio of ethylene to propylene in NEOH group and MIX group were significantly decreased (P<0.05), and the molar ratio of propionic acid was significantly increased (P<0.05). 3) At the bacterial genus level, there were significant differences in 10 microorganisms among the groups. Specifically, compared to the CON group, the relative abundance of Prevotella significantly decreased in the PC and NEOH groups (P<0.05) but did not change significantly in the MIX group (P>0.05). The relative abundance of Succinivibrionaceae_UCG-002 significantly decreased in the PC group (P<0.05) but did not change significantly in the NEOH and MIX groups (P>0.05). The relative abundance of Ruminobacter significantly increased in the NEOH and MIX groups (P<0.05) but did not change significantly in the PC group (P>0.05). At the archaeal genus level, there were significant differences in five microorganisms, including the relative abundance of Methanobrevibacter (P<0.05), among the groups. Specifically, compared to the CON group, the relative abundance of Methanobrevibacter significantly increased in the NEOH, PC and MIX groups (P<0.05). The relative abundance of Methanosphaera did not change significantly in the NEOH and PC groups (P>0.05) but significantly decreased in the MIX group (P<0.05). 4) LEfSe analysis results showed that at the bacterial genus level, three microorganisms such as Prevotella were significantly enriched in the CON group, while 13 microorganisms such as Christensenellaceae_R-7_group, Lachnospiraceae_NK3A20_group, and Lachnospiraceae_NK4A214_group were significantly enriched in the PC group. Four microorganisms such as Succinivibrio and Selenomonas were significantly enriched in the NEOH group, and four microorganisms such as Succinivibrionaceae_UCG-002 and Ruminococcus were significantly enriched in the MIX group. At the archaeal genus level, three microorganisms such as Methanosphaera were significantly enriched in the CON group, while one marker species was significantly enriched in the PC group. Methanobrevibacter was significantly enriched in the MIX group. The results indicate that the addition of PC and NEOH can affect the rumen flora structure. The NEOH and MIX alter the rumen fermentation pattern, shifting from acetate production to propionate production, thereby reducing CH4 production, and there is a synergistic effect between the two.

甲烷(CH4)是一种比二氧化碳(CO2)更加活跃的温室气体,增温潜势大约是CO2的28倍[1]。反刍动物瘤胃发酵过程中会产生大量的CH4,对气候变暖造成重大影响,并且造成饲料能量浪费,占总能的2%~12%[2-4]。因此,降低瘤胃CH4生成量已成为全球研究的重点[5-7]。瘤胃中CH4生成的3个主要途径是:1)氢营养型,产甲烷菌利用氢气(H2)和甲酸还原CO2形成CH4;2)甲基营养型,产甲烷菌利用甲基化合物还原形成CH4;3)乙酸裂解型,产甲烷菌利用挥发性脂肪酸(VFA),如乙酸为底物,通过裂解作用合成CH4[8]。为了解决这个问题,研究人员已经提出了各种策略来减少反刍动物CH4排放,包括调整管理措施和实施营养调控,而最直接的方法就是饲喂CH4抑制剂[1,7]。近年来,调节瘤胃发酵在降低瘤胃CH4产量方面取得了重大进展。硝基化合物因其在瘤胃发酵过程中对CH4抑制的高效、持续作用,而且添加量低,受到研究者的关注[9-10]。植物多酚是自然界中最常见的植物活性物质之一,它可通过降低纤维消化率或直接与瘤胃微生物群相互作用来减少CH4生成[11]
硝基化合物可以看作是1个碳氢分子中的1个或多个氢原子被1个硝基(-NO2)取代后形成的衍生物,根据不同的羟基可分为脂肪族硝基化合物(R-NO2)和芳香族硝基化合物(Ar-NO2)。目前能够抑制瘤胃CH4生成的硝基化合物大多是短链单脂肪族硝基化合物,如硝基乙烷(NE)、2-硝基乙醇(NEOH)及2-硝基-1-丙醇(NPOH)等[12]。NEOH的化学结构为HO-CH2-CH2-NO2,是一种浅黄色液体,密度为1.27 g/mL,熔点和沸点相对较低。Anderson等[13]研究表明,在100% CO2体外培养条件下,NEOH抑制CH4生成可达95%。此外,Zhang等[14]研究发现,NEOH可有效抑制瘤胃产甲烷菌和产CH4所需的辅酶数量,且抑制效率超过90%。虽然硝基化合物可有效抑制瘤胃发酵CH4的产生,但其含有的硝基毒素也会对不同动物产生不同程度的毒性[15]。硝基化合物抑制正常的瘤胃发酵后,可在一定程度上降低动物的采食量和生长性能[16]。而瘤胃微生物可以对这些硝基毒素进行代谢和转化,实现解毒,为硝基化合物在反刍动物CH4减排中的实际应用提供了理论依据[17]
植物多酚广泛存在于植物中,是天然抗氧化剂,具有“安全、高效”的特点,在动物生产中的应用已成为研究热点。植物多酚是具有多酚结构的次生代谢物,其基本结构为芳香环和羟基[18]。饲粮中添加植物多酚主要通过降低乙酸产量影响反刍动物中VFA的比例,提高氮的利用率,调节脂肪酸的氢化作用,影响瘤胃微生物的活性和数量,降低CH4产量[11]。根据酚类物质与糖和有机酸结合形成的异质化合物的性质,将它们分为黄酮类化合物和非黄酮类化合物[19]。原花青素(PC)是植物中广泛存在的一大类多酚类化合物的总称,是一种以碳链为骨架,以聚羟基黄烷-3-醇为单位的类黄酮水溶性多酚化合物,广泛分布于葡萄籽、蔓越莓、茄树、花生及松皮等多种植物中[20]。早在1997年,已经有试验证明PC是比维生素C和维生素E更有效的氧自由基清除剂,其抗氧化能力是维生素E的50倍,是维生素C的20倍[21]。近年来,PC在饲料添加剂领域的应用引起了人们关注。PC可调节动物肠道菌群,改善内环境的稳态[22-23]。Singh等[24]研究表明,PC可调节反刍动物的瘤胃酶活性,进而影响瘤胃发酵,提高了纤维和蛋白质的消化率。Zhang等[25]研究表明,PC可以改变瘤胃古菌群落结构,减少产甲烷菌对H2的利用,有效调节瘤胃发酵,减少CH4排放。
硝基化合物通过抑制瘤胃CH4生成、调节瘤胃发酵和微生物群落及提高饲料转化效率等方式对反刍动物产生积极影响,某些硝基化合物也可能对动物机体产生一定的毒性作用[9]。硝基化合物可直接抑制瘤胃产甲烷菌,并显著降低瘤胃产甲烷过程中甲基-辅酶M还原酶基因的表达以及F420和F430辅酶的活性[14]。植物多酚通过抑制CH4排放、影响瘤胃微生物群落、促进饲粮消化和营养吸收以及提高动物生产性能等方式对反刍动物产生积极影响,且植物多酚作为一种天然来源的添加剂,具有较高的安全性和环保性[26]。目前,关于植物多酚抑制CH4排放机制有2个:1)对纤维素分解菌(尤其是革兰氏阳性菌)和原生动物的影响也可能与纤维可降解性的降低有关,并间接与CH4排放有关;2)某些特定植物多酚与产甲烷菌之间存在直接相互作用[11]。以往的研究大多仅评估单一CH4抑制剂的效果,不同类型的CH4抑制剂可能存在不同的作用机制与效果,是否产生协同作用,更有效地抑制CH4排放仍研究较少。因此,我们推测两者在瘤胃体外发酵中的联合使用中,植物多酚的“绿色”与硝基化合物的“高效”相结合可能会产生更加积极的效果。因此,本研究通过体外模拟瘤胃发酵与16S rRNA高通量测序技术探究PC和NEOH联合使用对瘤胃CH4生成和发酵参数的影响,并从微生物角度进行机理解析。

1 材料与方法

1.1 瘤胃液供体牛及饲养管理

在奶牛场选择4头体况良好、泌乳期接近、体重接近且装有永久性瘤胃瘘管的荷斯坦泌乳奶牛作为瘤胃液供体动物,瘘管牛的使用方案得到了北京农学院动物福利委员会的批准(BUA2022052)。奶牛每日饲喂3次(06:30、13:00和18:00),饲喂全混合日粮(TMR),其组成及营养水平见表1。干物质(DM)、粗蛋白质(CP)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、粗脂肪(EE)、淀粉(Starch)含量分别根据GB/T 6435—2014、GB/T 6438—2007、GB/T 6432—2018、GB/T 20806—2022、NY/T 1459—2007、GB/T 6433—2006、GB/T 20194—2018的方法测定;根据GB/T 6438—2007测得饲粮中粗灰分含量并依据此计算有机物(OM)的含量。自由采食和饮水。收集晨饲前的供体牛瘤胃液,每头牛采集500 mL,4层纱布过滤,混合后,装入保温瓶中带回实验室。
表1 全混合日粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the TMR (DM basis) %

项目Items 含量Contents
原料Ingredients
玉米青贮Corn silage 34.59
苜蓿干草Alfalfa hay 11.85
燕麦干草Oat hay 4.33
玉米Corn 17.73
压片玉米Flaked corn 3.98
大豆粕Soybean meal 10.46
菜籽粕Rapeseed meal 2.90
甜菜颗粒粕Sugar beet pulp 0.56
全棉籽Cottonseed 7.12
脂肪粉Fat powder1) 1.33
预混料Premix2) 3.87
糖蜜Molasses 1.28
合计Total 100.00
营养水平Nutrient levels3)
有机物OM 91.12
粗蛋白质CP 17.03
中性洗涤纤维NDF 33.85
酸性洗涤纤维ADF 16.70
粗脂肪EE 4.96
淀粉Starch 25.69
泌乳净能NEL/(MJ/kg) 16.60

1)脂肪粉是一种饱和的游离脂肪酸补充剂(伯格+施密特有限责任公司及合伙公司,汉堡,德国)。Fat powder is a saturated free fatty acid supplement(Berg+Schmidt GmbH & Co. KG, Hamburg, Germany)。

2)每千克预混料含有One kilogram of premix contained as follows: Zn 1 218 mg, Fe 186 mg, Se 6.93 mg, Cu 370 mg, VA 272 000 IU, VD 75 000 IU, VE 2 080 IU。

3) NEL参照NRC(2001)计算所得,其他均为测定值。NEL was calculated with reference to NRC (2001), while others were measured values.

1.2 试验设计

发酵底物与供体牛TMR相同。试验共分为4组,分别为对照组(CON组)、添加50 mg/g的PC组(PC组)、添加10 mmol/L的NEOH组(NEOH组)、添加25 mg/g PC+5 mmol/L的NEOH组(MIX组),每组6个重复。NEOH纯度为98%,液体,分子式为C2H5NO3。PC纯度为98%,粉末状,分子式为C30H26O13

1.3 试验方法

发酵底物与供体牛TMR相同,准确称取0.5 g发酵底物于每个发酵瓶中,然后加入50 mL 39 ℃的缓冲液(每升缓冲液含有8.75 g NaHCO3,1 g NH4HCO3,1.43 g Na2HPO4,1.55 g KH2PO4,0.15 g MgSO4·7H2O,0.52 g Na2S,0.017 g CaCl2·2H2O,0.015 g MnCl2·4H2O,0.002 g CoCl2·6H2O,0.012 g FeCl3·6H2O和1.25 mg刃天青)和25 mL的瘤胃液[27]。将发酵瓶置于39 ℃水中水浴,不断搅拌使瘤胃液、缓冲液和发酵底物充分混合,整个过程中不断充入CO2保持厌氧条件,然后用盖子密封发酵瓶,将气体收集袋连接到发酵瓶上用于收集发酵产生的气体。每个发酵瓶为1个平行,每组设10个平行,重复试验3次。将所有处理好的发酵瓶放入黑暗的39 ℃恒温培养箱中,每个发酵瓶均连接AGRS-Ⅲ微生物发酵微量产气自动记录仪持续发酵24 h,另配一份相同发酵液置于气浴恒温震荡器(ZD-85;峥嵘实验仪器厂,常州)中,振荡频率设置为80 r/min,39 ℃孵育24 h,每个发酵瓶都连接产气袋收集气体,用于气体成分检测。在整个发酵过程中每隔一段时间轻摇发酵瓶,以确保发酵底物与瘤胃液充分混合。在发酵24 h后分别取出对应时间点的所有发酵瓶放入冰水中终止发酵。然后立即使用便携式pH计测量pH,收集发酵后的液体和残渣用于后续分析。从每个发酵瓶子中采集了5份8 mL液体样本,用于分析VFA和微生物。

1.4 指标测定与分析

VFA浓度或摩尔比的测定。取发酵液样品7 mL,以10 000×g离心10 min后,收集1.5 mL上清液转移到离心管中,加入0.25 mL 25%(w/v)的偏磷酸,在冰中静置30 min,然后以10 000×g离心15 min,取1.5 mL上清液,经0.22 μm滤膜过滤后转移到样品瓶中进行气相色谱分析。气相色谱条件如下:气相色谱仪(Agilent 7890B GC,美国),色谱柱为DB-FFAP(15 m×0.32 mm,0.25 L),柱温为180 ℃;检测器温度为280 ℃;进样口温度为250 ℃;空气流速为400 mL/min;总流量为54 mL/min;吹扫流量为3 mL/min;恒压为21.8 kPa;分流比为1∶50,进样为2 μL。
CH4产量的测定。通过配备火焰离子化检测器(FID)的气相色谱仪(Agilent 7890B GC,美国)分析CH4的气体产量,气相色谱条件如下:色谱柱为Agilent 19091N-133 (30 m×0.25 mm×0.25 μm),载气为高纯氮气,流速为45 mL/min,柱箱温度为80 ℃,FID温度保持在300 ℃,进样量为1 mL。计算公式如下:
CH4产量=(样品面积×标样含量)/(标样面积)。
DNA提取与Illumina MiSeq测序。使用E.Z.N.A.粪便DNA试剂盒(Omega Bio-tek,Norcross,美国)提取微生物DNA。使用Nanodrop ND-1000分光光度计(Thermo Fisher Scientific Inc,美国)评估DNA的质量。使用1%琼脂糖凝胶电泳检查DNA质量。细菌用引物524F (5'-TGYCAGCCGCCGCGGTAA-3')和958R (5'-YCCGGCGTTGAVTCCAATT-3')通过ABI GeneAmp 9700 PCR进行扩增。PCR扩增体系包括4 μL 5 × FastPfu缓冲,2 μL dNTPs(2.5 mmol/L),0.8 μL正向引物(5 μmol/L),0.8 μL反向引物(5 μmol/L),0.4 μL转运FastPfu聚合酶,0.2 μL牛血清白蛋白(BSA),10 ng的DNA模板,补充ddH2O到20 μL。扩增开始于95 ℃变性3 min,56 ℃变性30 s,进行30个循环,72 ℃变性40 s,72 ℃变性10 min,最后将温度保持在4 ℃下10 min。对于古菌,引物524F(5'-TGYCAGCCGCCGCGGTAA-3')和958R(5'-YCCGGCGTTGAVTCCAATT-3')用于扩增DNA片段。反应包含10 ng DNA模板,每个引物0.8 μL,4 μL 5 × FastPfu缓冲液,2 μL dNTPs(2.5 mmol/L),0.4 μL TransStart FastPfu聚合酶,0.2 μL BSA,补充ddH2O至20 μL。扩增开始于95 ℃变性3 min,60 ℃变性30 s,进行30个循环,72 ℃变性40 s,72 ℃变性10 min;最后将温度保持在4 ℃ 10 min。PCR反应重复进行3次。使用AxyPrep DNA凝胶提取试剂盒(Axygen Biosciences,美国)评价PCR产物质量,并使用AxyPrep DNA凝胶提取试剂盒(Axygen Biosciences,美国)进一步纯化。在Illumina MiSeq测序系统(Illumina,美国)上进行双端测序(2 × 300 bp)。

1.5 序列处理和生物信息分析

根据索引顺序区分每个样本的数据,提取的数据以fastq格式保存。使用Flash(版本1.2.11, https://ccb.jhu.edu/software/FLASH/index.shtml)和Microbial Ecology version 2进行每个数据集的质量控制,以剔除低质量碱基(质量分数<20),并移除短reads(<50 bp)和“N”记录。使用USEARCH (version 7.0, http://www.drive5.com/usearch/)软件,将reads聚类为操作分类单元(OTU),相似性阈值为97%。序列比对和聚类由核糖体数据库项目(RDP)分类(2.11版, https://sourceforge.net/projects/rdp-classifier/)和16S rRNA基因数据库的SILVA数据库(138版, https://www.arb-silva.de/)使用基本局部比对搜索工具进行。将得到的OTU归一化为每个样本的丰度。使用Majorbio I-Sanger云平台(www.i-sanger.com)分析细菌和古细菌的组成。

1.6 数据处理与分析

使用SPSS 21.0软件中方差齐性检验分析后,利用单因素方差分析来分析瘤胃发酵参数、发酵气体产量和Alpha多样性指数,采用Duncan氏法进行多重比较。P<0.05表示组间差异显著。韦恩(Venn)图、主坐标分析(PCoA)图、瘤胃细菌和古菌物种组成分析图以及LDA柱形图的绘制均在美吉生物云平台(https://cloud.majorbio.com/)进行。

2 结果与分析

2.1 PC和NEOH对体外瘤胃发酵参数和产气的影响

表2可知,相比于CON组,MIX组总产气量显著降低(P<0.05),NEOH和MIX组CH4产量则显著降低(P<0.05)。相比于CON组,PC、NEOH和MIX组发酵液中戊酸的摩尔比例和总挥发性脂肪酸(TVFA)浓度无显著差异(P>0.05),PC组异丁酸和异戊酸的摩尔比例及乙丙比显著提高(P<0.05),丙酸和丁酸的摩尔比例显著降低(P<0.05);NEOH组乙酸、丁酸的摩尔比例和乙丙比显著降低(P<0.05),丙酸的摩尔比例显著提高(P<0.05);MIX组乙酸的摩尔比例和乙丙比显著降低(P<0.05),丙酸的摩尔比例显著提高(P<0.05)。
表2 添加PC和NEOH及其组合对24 h体外瘤胃发酵参数与产气量的影响

Table 2 Effects of addition of PC and NEOH and their combination on in vitro rumen fermentation parameters and gas production at 24 h

项目
Items
组别Groups SEM P
P-value
CON PC NEOH MIX
产气量Gas production/mL
总产气量Total gas production 66.87a 60.85ab 63.03ab 56.07b 2.98 0.022
甲烷CH4 6.45a 5.69a 0.55b 0.17b 0.43 <0.001
总挥发性脂肪酸TVFA/(mmol/L) 92.81ab 100.54a 85.06b 83.57b 3.82 0.008
乙丙比Acetate/propionate 2.72b 3.13a 2.17c 2.17c 0.03 0.021
挥发性脂肪酸摩尔比例Molar proportion of VFA/%
乙酸Acetate 59.52a 59.71a 54.42b 55.18b 0.40 <0.001
丙酸Propionate 21.89b 19.10c 25.15a 25.39a 0.30 <0.001
丁酸Butyrate 12.41a 13.90b 14.56b 13.60ab 0.36 0.010
异丁酸Isobutyrate 1.31b 1.54a 1.27b 1.20b 0.09 0.003
戊酸Valerate 2.44 2.53 2.48 2.35 0.07 0.308
异戊酸Isovalerate 2.44b 3.23a 2.13b 2.28b 0.24 0.013

同行数据肩标相同小写字母或无字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with the same lowercase letter superscripts or no letter superscript mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 PC和NEOH对24 h体外发酵瘤胃菌群基因序列及多样性分析

2.2.1 OTU数量
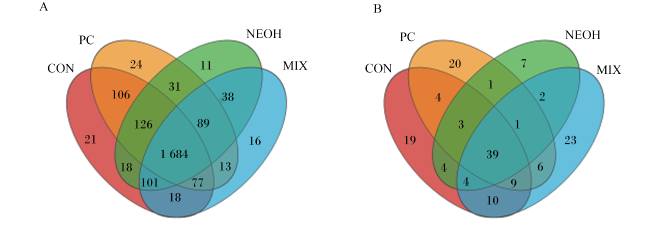
统计多组或多个样本中所共有和独有的OTU数目,可用来发现不同瘤胃液样本组中的独有物种,由图1可知,所有试验组共有1 684个OTU,CON组独占21个,PC组独占24个,NEOH组独占11个,MIX组独占16个。由图1-B可知,CON、PC、NEOH、MIX组分别占有19、20、7、23个特异性OTU,4组共有OTU 39个。
图1 样品OTUs韦恩图

CON、PC、NEOH、MIX分别代表CON、PC、NEOH、MIX组。下图同。CON, PC, NEOH, and MIX represent the CON, PC, NEOH, and MIX groups, respectively. The same as below.

A: 细菌韦恩图; B:古菌韦恩图。 A: bacterial Venn diagram; B: archaeal Venn diagram.

Fig.1 Venn diagram of sample OTUs

2.2.2 Alpha多样性分析

表3可知,相较于CON组,PC组体外发酵中瘤胃细菌的Ace和Chao指数显著降低(P<0.05),古菌的Shannon指数显著降低(P<0.05);NEOH组细菌的Shannon指数显著升高(P<0.05),古菌的Simpson指数显著降低(P<0.05);MIX组细菌的Ace、Chao和Shannon指数显著降低(P<0.05),细菌的Simpson指数显著提高(P<0.05),Shannon指数显著降低(P<0.05)。
表3 添加PC和NEOH及其组合对体外瘤胃微生物Alpha多样性的影响

Table 3 Effects of addition of PC and NEOH and their combination on in vitro ruminal microbial Alpha diversity

项目
Items
组别Groups SEM P
P-value
CON PC NEOH MIX
细菌Bacteria
Ace指数Ace index 1 872.41a 1 786.78b 1 923.94a 1 698.31c 34.09 <0.001
Chao指数Chao index 1 907.71a 1 795.67b 1 951.45a 1 705.54c 38.71 <0.001
Shannon指数Shannon index 5.51b 5.44b 5.93a 5.14c 0.10 0.008
Simpson指数Simpson index/×102 1.47bc 1.82ab 0.85c 2.53a 0.34 <0.001
古菌Archaea
Ace指数Ace index 49.60 38.91 44.71 45.73 8.72 0.682
Chao指数Chao index 47.06 35.59 35.87 46.23 7.14 0.234
Shannon指数Shannon index 1.14a 1.00b 1.14a 0.98b 0.03 0.007
Simpson指数Simpson index 0.46a 0.45a 0.41b 0.46a 0.01 0.007

2.2.3 β多样性分析

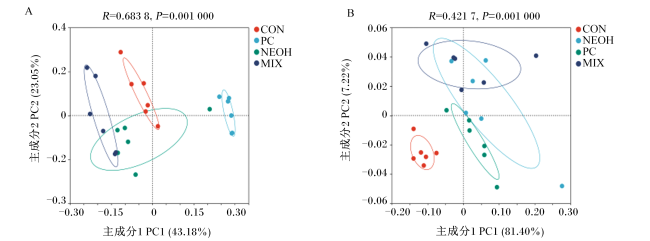
基于Bray-Curtis距离计算的PCoA的β多样性表明,细菌中主成分1(PC1)和主成分2(PC2)对样品差异的贡献值分别为43.18%和23.05%,古菌中PC1和PC2对样品差异的贡献值分别为81.40%和7.22%,添加PC、NEOH及两者的混合物均显著改变了瘤胃细菌和古菌的结构(P=0.001;图2-A图2-B)。
图2 细菌和古菌的PCoA图

A: 细菌PCoA图; B:古菌PCoA图。

Fig.2 PCoA plot of bacteria and archaea

A: bacterial PCoA plot; B: archaeal PCoA plot.

2.2.4 瘤胃菌群结构分析

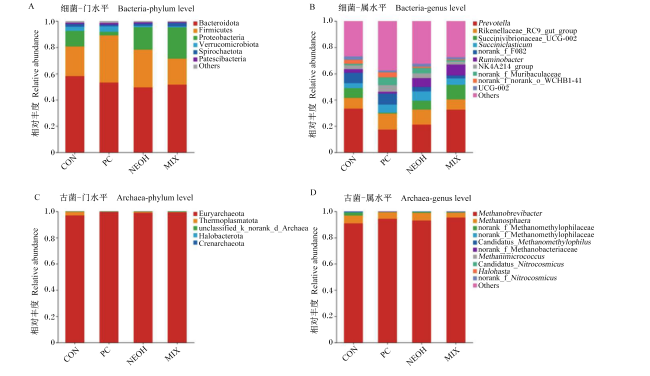
图3-A可知,相对丰度>0.01%的门共6个,CON、PC、NEOH和MIX组细菌优势菌门均为拟杆菌门(Bacteroidota)、厚壁菌门(Firmicutes)和变形菌门(Proteobacteria),三者总量占总菌门的90%以上。由图3-B可知,细菌相对丰度前10的属约占总菌属的60%以上,其中CON、PC、NEOH和MIX组优势菌属均为普雷沃氏菌属(Prevotella)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、琥珀酸弧菌科UCG-002(Succinivibrionaceae_UCG-002)、琥珀酸菌属(Succiniclasticum)、未明确科的F082(norank_f_F082)和瘤胃杆菌属(Ruminobacter)。
图3 物种组成分析图

Bacteroidota:拟杆菌门;Firmicutes :厚壁菌门;Proteobacteria:变形菌门;Verrucomicrobiota:疣微菌门;Spirochaetota :螺旋体门;Patescibacteria :髌骨菌门;Prevotella:普雷沃氏菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Succinivibrionaceae_UCG-002:琥珀酸弧菌科UCG-002; Succiniclasticum:琥珀酸菌属;norank_f_F082:未明确科的F082;Ruminobacter:瘤胃杆菌属;NK4A214_group:NK4A214群;norank_f_Muribaculaceae:未明确科的穆里氏菌科;norank_f_norank_o_WCHB1-41:未明确科的WCHB1-41目;Euryarchaeota:广古菌门;Thermoplasmatota:热原体门;Halobacterota:嗜盐菌门;Crenarchaeota:泉古菌门;Methanobrevibacter:甲烷短杆菌属;Methanosphaera:甲烷球菌属;norank_f_Methanomethylophilaceae:未明确科的甲烷甲基嗜菌科;Candidatus_Methanomethylophilus:未命名的甲烷甲基嗜菌属;norank_f_Methanobacteriaceae:未明确科的甲烷杆菌科;Methanimicrococcus:甲烷微球菌属;Halohasta:嗜盐杆菌属;Others:其他。

Fig.3 Species composition analysis

图3-C可知,古菌在门水平上共注释得到5个菌门且相对丰度都在0.1%以上,其中广古菌门(Euryarchaeota)为4组的优势菌门,占总菌门的95%以上。由图3-D可知,相对丰度前10的属占总菌属的95%以上,其中CON、PC、NEOH和MIX组主要优势菌属为甲烷短杆菌属(Methanobrevibacter)和甲烷球形菌属(Methanosphaera)。
表4可知,在细菌属水平上,CON、NEOH、PC和MIX组中普雷沃氏菌属、琥珀酸弧菌科UCG-002(Succinivibrionaceae_UCG-002)、norank_f_F082、瘤胃杆菌属、NK4A214群(NK4A214_group)、norank_f_Muribaculaceae、未明确科的WCHB1-41(norank_f_norank_o_WCHB1-41)、克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)和未明确科的拟杆菌目BS11肠道群(norank_f_Bacteroidales_BS11_gut_group)的相对丰度在细菌属水平上具有显著组间差异(P<0.05)。
表4 添加PC和NEOH及其组合对24 h体外瘤胃菌群属水平组间差异显著性的影响

Table 4 Effects of addition of PC and NEOH and their combination on significance of inter-group differences in 24 h in vitro ruminal flora at genus level %

项目
Items
组别Groups SEM P
P-value
CON PC NEOH MIX
细菌-属水平Bacterial-genus level
普雷沃氏菌属Prevotella 33.41a 17.46b 21.15b 32.46a 4.626 0.046
未明确科的F082 Norank_f_F082 7.83a 8.19a 3.24b 2.28b 0.825 0.004
琥珀酸弧菌科UCG-002
Succinivibrionaceae_UCG-002
7.43a 0.63b 6.60a 11.00a 2.542 0.016
瘤胃杆菌属Ruminobacter 2.83b 1.40b 6.74a 8.24a 1.915 0.006
NK4A214群NK4A214_group 2.88b 5.18a 3.66b 2.20b 0.446 0.008
克里斯滕森菌科R-7群
Christensenellaceae_R-7_group
1.73b 4.07a 1.48bc 0.70c 0.267 0.004
Norank_f_Muribaculaceae 1.27b 5.88a 4.19a 1.12b 0.571 0.004
未明确科的WCHB1-41
Norank_f_norank_o_WCHB1-41 2.88a 3.81a 0.85b 0.72c 0.384 0.004
未明确科的拟杆菌目BS11肠道群
Norank_f_Bacteroidales_BS11_gut_group
1.55a 2.13a 0.38b 0.23b 0.190 0.004
未明确科的UCG-011
Norank_f_UCG-011
0.90b 1.78a 0.66b 0.54b 0.175 0.007
古菌-属水平Archaeal-genus level
甲烷短杆菌属Methanobrevibacter 90.86c 93.14ab 94.43b 95.32a 0.576 0.006
甲烷球菌属Methanosphaera 6.06a 5.77a 5.00ab 3.86b 0.461 0.049
未明确科的甲烷甲基嗜菌科
Norank_f_Methanomethylophilaceae
2.32a 0.75b 0.19b 0.33b 0.227 0.008
未命名的甲烷甲基嗜菌属
Candidatus_Methanomethylophilus
0.48a 0.14b 0.04b 0.04b 0.033 0.005
未明确科的甲烷杆菌科
Norank_f_Methanobacteriaceae
0.08bc 0.03c 0.17a 0.11b 0.032 0.005
表4可知,在古菌属水平上,CON、NEOH、PC和MIX组中甲烷短杆菌属、甲烷球形菌属、未明确科的甲烷甲基嗜菌科(norank_f_Methanomethylopilaceae)、未命名的甲烷甲基嗜菌属(Candidatus_Methanomethylophilus)、未明确科的甲烷杆菌科(norank_f_Methanobacteriaceae)相对丰度在古菌属水平上具有显著组间差异(P<0.05)。
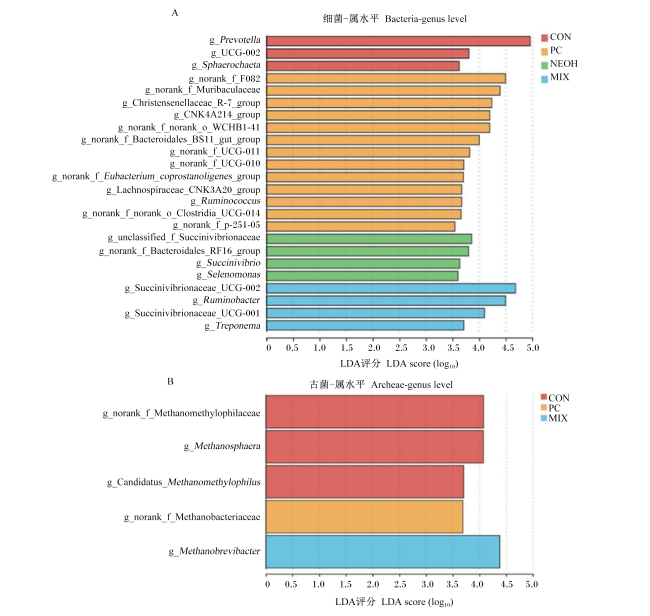
LEfSe多级物种差异判别分析在属水平级进行差异检验,分析属水平的差异物种,并用LDA值来衡量物种对差异效果影响大小。图4-A为细菌属水平的LDA判别柱形图(LDA得分>3.5,P<0.05),CON组中普雷沃氏菌属、UCG-002、鳞球菌属(Sphaerochaeta)相对丰度显著高于其他3组(P<0.05);PC组克里斯滕菌科R-7群、NK4A214群、毛螺菌科NK3A20群(Lachnospiraceae_NK3A20_group)、瘤胃球菌属(Ruminococcus)以及其余9个未命名菌属的相对丰度显著高于其他3组(P<0.05);NEOH组中琥珀酸弧菌属(Succinivibrio)、月形单胞菌属(Selenomonas)和2个未命名菌属的相对丰度较其他3组显著升高(P<0.05);MIX组中琥珀酸弧菌科_UCG-002、反刍杆菌属(Ruminobacter)、琥珀酸弧菌科_UCG-001(Succinivibrionaceae_UCG-001)、密螺旋体菌属(Treponema)的相对丰度显著高于其他3组(P<0.05)。
图4 线性判别分析效应量鉴定细菌和古菌属水平差异菌群

Prevotella:普雷沃氏菌属;Sphaerochaeta:鳞球菌属;norank_f_F082:未明确科的F082;norank_f_Muribaculaceae:未明确科的穆里氏菌科;Christensenellaceae_R-7_group:克里斯滕森氏菌科R-7群;NK4A214_group:NK4A214群;norank_f_norank_o_WCHB1-41:未明确科的WCHB1-41;norank_f_Bacteroidales_BS11_gut_group:未明确科的拟杆菌目BS11肠道群;norank_f_UCG-011:未明确科的UCG-011;norank_f_UCG-010:未明确科的UCG-010;norank_f_Eubacterium_coprostanoligenes_group:未明确科的粪固醇生成真杆菌群;Lachnospiraceae_NK3A20_group:毛螺菌科NK3A20群;Ruminococcus:瘤胃球菌属;norank_f_norank_o_Clostridia_UCG-014:未明确科未明确目的梭菌属UCG-014;norank_f_p-251-05:未明确科的p-251-05;unclassified_f_Succinivibrionaceae:未分类_科琥珀酸弧菌科;norank_f_Bacteroidales_RF16_group:未明确_科_拟杆菌目RF16群;Succinivibrio:琥珀酸弧菌属;Selenomonas:硒单胞菌属;Succinivibrionaceae_UCG-002:琥珀酸弧菌科UCG-002;Ruminobacter:瘤胃杆菌属;Succinivibrionaceae_UCG-001:琥珀酸弧菌科UCG-001; Treponema:密螺旋体菌属;norank_f_Methanomethylophilaceae:未明确科的甲烷甲基嗜菌科;Methanosphaera:甲烷球菌属;Candidatus_Methanomethylophilus:未命名的甲烷嗜甲基菌属;norank_f_Methanobacteriaceae:未明确科的甲烷杆菌科;Methanobrevibacter:甲烷短杆菌属。

A:细菌属水平线性回归分析;B:古菌属水平线性回归分析。A: linear regression analysis at bacterial genus level; B: linear regression analysis at archaeal genus level.

Fig.4 Linear discriminant analysis effect size to identify bacteria and archaea level difference flora

图4-B为古菌属水平的LDA柱形图(LDA得分>3.5,P<0.05),CON组中甲烷球形菌属和其他2个未明确的甲烷菌属相对丰度显著升高(P<0.05);PC组中1个未明确的甲烷菌属相对丰度显著升高(P<0.05);MIX组中甲烷短杆菌属相对丰度显著高于其他3组(P<0.05)。

3 讨论

3.1 添加PC和NEOH及其组合对体外发酵产气量的影响

总产气量与底物发酵程度呈正相关,总产气量的大小能够反映出底物的消化程度。瘤胃内CH4的生成,不仅加剧全球变暖,而且造成饲料的能量损失。植物多酚对体外瘤胃总产气和CH4生成的影响受其来源及添加量的影响[28]。Moate等[29]研究表明,在奶牛饲粮中添加葡萄渣能通过改变瘤胃细菌和古菌群落,降低CH4的产生。本试验中,PC的添加量为0.5 mg/g,可能是由于添加量过高而未对总产气量和CH4产量产生显著影响。硝基化合物主要通过降低瘤胃内产甲烷菌的数量和抑制瘤胃CH4生成过程中所需的甲基辅酶M来降低CH4产量[30]。早期的研究中,在体外发酵中添加9~24 mmol/L的硝基化合物(NE、NEOH、NPOH)可以抑制90%以上的CH4生成[10,13],但都缺乏对于总产气量影响的研究。本研究中,NEOH组NEOH的添加量为10 mmol/L,属于有效添加量,显著降低了CH4产量。MIX组中添加的低剂量的PC和NEOH显著降低总产气量和CH4产量,这可能是因为低剂量的PC降低了CH4和总产气量的生成,而低剂量的NEOH抑制了CH4生成但并未对总产气量产生影响。

3.2 添加PC和NEOH及其组合对VFA的影响

瘤胃发酵过程中所产生的VFA是反刍动物所需能量的主要来源,主要以乙酸、丙酸和丁酸为主,占TVFA的95%左右[31]。Ma等[32]研究表明,在断奶羔羊饲粮中添加0.6 g/d的葡萄籽提取物(PC含量50%),可以显著提高瘤胃中丙酸和丁酸的浓度,而对TVFA和其他VFA浓度没有显著影响。郝小燕等[33]研究表明,在羔羊饲粮中添加40 mg/kg BW葡萄籽原花青素后,瘤胃中异丁酸的浓度显著升高,乙酸和丁酸的浓度有下降的趋势,但对丙酸、戊酸和异戊酸浓度没有显著影响。植物多酚能够影响瘤胃VFA的产生,提高瘤胃对H2的利用率而降低CH4的产量[34]。本研究中,添加50 mg/g的PC则显著提高了体外瘤胃发酵液中异丁酸、异戊酸的摩尔比例和乙丙比。造成结果差异的原因可能主要与瘤胃液供体、添加物类型或剂量差异相关。部分CH4抑制剂,如亚硫酸钠、有机卤化物和莫能菌素为了补偿流向瘤胃CH4生成的电子流的中断,在发酵过程中会引起丙酸产量的显著增加并伴随着乙酸的减少,导致TVFA浓度下降[35]。Zhang等[25]研究指出,添加硝基化合物会导致乙酸的浓度降低和CH4产生的减少,但瘤胃发酵过程中产生的还原当量并不一定用于增加丙酸的产生。Tan等[36]的体外研究表明,对于瘤胃细菌,NEOH对参与VFA生成的关键菌属具有广泛的抑制作用,导致TVFA浓度和CH4产量显著降低。总的来说,硝基化合物在抑制CH4生成中节省下来的还原当量并没有重新用于生产更多还原的VFA(如丙酸和丁酸),但添加的硝基化合物的代谢可能影响了一些VFA的产生[30]。饲喂硝基化合物的奶牛中,乙酸的摩尔比例普遍下降和丙酸摩尔比例的普遍升高,这可能与抑制CH4合成导致的H2积累有关[37],在CH4合成受到抑制时,更多的H离子趋向于合成丙酸[38]。本研究中,NEOH与MIX组丙酸的摩尔比例显著提高,乙酸摩尔比例和乙丙比显著降低。这表明二者联用中NEOH发挥更大了作用,而低剂量的PC并未对TVFA浓度、丙酸摩尔比例和乙丙比产生显著影响,可能是低剂量的PC产生的效果不如NEOH。

3.3 添加PC和NEOH及其组合对瘤胃菌群的影响

反刍动物瘤胃菌群的相对稳定对反刍动物的生产和健康有重要意义,奶牛瘤胃微生物主要由拟杆菌门、厚壁菌门和变形菌门组成。拟杆菌门对瘤胃降解碳水化合物和蛋白质起重要作用,而厚壁菌门的主要功能是降解纤维和纤维素,变形菌门在生物膜的形成和可溶性碳水化合物的消化中起着重要作用[39-40]。研究表明,多酚类植物提取物能够降低瘤胃中拟杆菌门和变形菌门的相对丰度,提高厚壁菌门的相对丰度[11,41]。硝基化合物中存在的硝基毒素虽然能被瘤胃微生物代谢脱毒,但能抑制瘤胃中产甲烷菌和一些病原菌的活性,影响瘤胃微生物活性,降低CH4生成[17]。在本试验中,相较于CON组,细菌门水平中PC组厚壁菌门相对丰度显著升高,变形菌门相对丰度显著降低,NEOH组中的厚壁菌门相对丰度显著升高,而MIX组中厚壁菌门相对丰度未产生显著变化,变形菌门相对丰度显著升高。刘子豪[42]研究发现,在奶牛体外瘤胃模拟发酵中添加3-硝基酯-1-丙醇能够降低发酵液中普雷沃氏菌属的相对丰度,添加维生素B12能够降低普雷沃氏菌属的相对丰度,而二者联合使用时其相对丰度保持不变,当3-硝基酯-1-丙醇与延胡索酸联合添加时,拟杆菌门和厚壁菌门的相对丰度变化比单独添加3-硝基酯-1-丙醇时小得多。普雷沃氏菌属在瘤胃中发酵产物主要是乙酸、丙酸和琥珀酸,而琥珀酸通过微生物酶作用很快转化为丙酸[43]。在本试验中,NEOH组中的普雷沃氏菌属相对丰度显著下降,但MIX组中的普雷沃氏菌属的相对丰度并未发生显著变化。Zhang等[25]研究表明,在奶牛瘤胃体外发酵中添加葡萄籽原花青素后影响了瘤胃古菌群落,改变了瘤胃发酵模式,发酵液中的微生物群落LEfSe分析结果显示,CON组中甲烷短杆菌属和甲烷球形菌属显著富集。CH4的产生主要通过产甲烷菌利用CO2作为碳源,氢离子作为主要的电子供体发酵形成,抑制瘤胃产甲烷古菌属的活性,可显著降低瘤胃CH4产量,从而减少能量损耗[44]。而在本研究中,甲烷短杆菌属、甲烷球形菌属为古菌属水平中的优势菌属,但LEfSe分析结果显示,甲烷短杆菌属在CON组古菌属水平中显著富集,甲烷球形菌属在MIX组古菌属水平中显著富集。这表明二者之间存在了一定协同作用改变了瘤胃菌群的相对丰度,进而改变了瘤胃发酵模式。

4 结论

NEOH与PC均能影响瘤胃菌群,改变瘤胃发酵模式,单独添加PC对总产气量和CH4产量并无显著影响,提高了乙丙比,降低了丙酸的摩尔比例,改变了瘤胃部分瘤胃微生物的相对丰度;单独添加NEOH能显著降低CH4产量,提高了乙酸的摩尔比例,并降低了丙酸的摩尔比例和乙丙比;而MIX组总产气量和CH4产量显著降低,由乙酸生成型转变为丙酸生成型,且改变了部分瘤胃微生物的相对丰度。PC与NEOH联合使用与单独添加的结果不尽相同,二者对CH4生成、VFA和瘤胃微生物存在一定协同作用。
[1]
MIN B R, WILLIS W, CASEY K, et al. Condensed and hydrolyzable tannins for reducing methane and nitrous oxide emissions in dairy manure—a laboratory incubation study[J]. Animals, 2022, 12(20):2876.

[2]
PICKERING N K, ODDY V H, BASARAB J, et al. Animal board invited review:genetic possibilities to reduce enteric methane emissions from ruminants[J]. Animal, 2015, 9(9):1431-1440.

[3]
HILL J, MCSWEENEY C, WRIGHT A D G, et al. Measuring methane production from ruminants[J]. Trends in Biotechnology, 2016, 34(1):26-35.

DOI PMID

[4]
MORGAVI D P, FORANO E, MARTIN C, et al. Microbial ecosystem and methanogenesis in ruminants[J]. Animal, 2010, 4(7):1024-1036.

DOI PMID

[5]
HUHTANEN P, CABEZAS-GARCIA E H, UTSUMI S, et al. Comparison of methods to determine methane emissions from dairy cows in farm conditions[J]. Journal of Dairy Science, 2015, 98(5):3394-3409.

DOI PMID

[6]
KUMAR S, CHOUDHURY P K, CARRO M D, et al. New aspects and strategies for methane mitigation from ruminants[J]. Applied Microbiology and Biotechnology, 2014, 98(1):31-44.

DOI PMID

[7]
KNAPP J R, LAUR G L, VADAS P A, et al. Invited review:enteric methane in dairy cattle production:quantifying the opportunities and impact of reducing emissions[J]. Journal of Dairy Science, 2014, 97(6):3231-3261.

[8]
ZHAO Y C, TAN J, FANG L Y, et al. Harnessing meta-omics to unveil and mitigate methane emissions in ruminants:integrative approaches and future directions[J]. The Science of the Total Environment, 2024, 951:175732.

[9]
BROWN E G, ANDERSON R C, CARSTENS G E, et al. Effects of oral nitroethane administration on enteric methane emissions and ruminal fermentation in cattle[J]. Animal Feed Science and Technology, 2011, 166/167:275-281.

[10]
GUTIERREZ-BAÑUELOS H, ANDERSON R C, CARSTENS G E, et al. Effects of nitroethane and monensin on ruminal fluid fermentation characteristics and nitrocompound-metabolizing bacterial populations[J]. Journal of Agricultural and Food Chemistry, 2008, 56(12):4650-4658.

[11]
VASTA V, DAGHIO M, CAPPUCCI A, et al. Invited review:plant polyphenols and rumen microbiota responsible for fatty acid biohydrogenation,fiber digestion,and methane emission:experimental evidence and methodological approaches[J]. Journal of Dairy Science, 2019, 102(5):3781-3804.

[12]
ZHANG Z W, WANG Y L, SI X M, et al. Rumen methanogenesis,rumen fermentation,and microbial community response to nitroethane,2-nitroethanol,and 2-nitro-1-propanol:an in vitro study[J]. Animals, 2020, 10(3):479.

[13]
ANDERSON R C, CALLAWAY T R, VAN KESSEL J A S, et al. Effect of select nitrocompounds on ruminal fermentation; an initial look at their potential to reduce economic and environmental costs associated with ruminal methanogenesis[J]. Bioresource Technology, 2003, 90(1):59-63.

PMID

[14]
ZHANG Z W, WANG Y L, WANG W K, et al. The inhibitory action mode of nitrocompounds on in vitro rumen methanogenesis:a comparison of nitroethane,2-nitroethanol and 2-nitro-1-propanol[J]. The Journal of Agricultural Science, 2019, 157(6):471-479.

[15]
ANDERSON R C, MAJAK W, RASSMUSSEN M A, et al. Toxicity and metabolism of the conjugates of 3-nitropropanol and 3-nitropropionic acid in forages poisonous to livestock[J]. Journal of Agricultural and Food Chemistry, 2005, 53(6):2344-2350.

PMID

[16]
MELLER R A, ASHWORTH J M, GEHMAN A M, et al. Potential for live yeast culture to enhance nitrate mitigation of methanogenesis in Jersey dairy cattle[J]. Journal of Animal Science, 2016, 94(5):784-785.

[17]
郝增华, 刘旭日, 张海静, 等. 硝基化合物作为反刍动物潜在产甲烷抑制剂的研究进展[J]. 中国饲料, 2020(4):23-26.

HAO Z H, LIU X R, ZHANG H J, et al. Research progress on nitrocompounds as potential methanogenesis inhibitors in ruminants[J]. China Feed, 2020(4):23-26. (in Chinese)

[18]
SINGLA R K, DUBEY A K, GARG A, et al. Natural polyphenols:chemical classification,definition of classes,subcategories,and structures[J]. Journal of AOAC International, 2019, 102(5):1397-1400.

[19]
OZDAL T, SELA D A, XIAO J B, et al. The reciprocal interactions between polyphenols and gut microbiota and effects on bioaccessibility[J]. Nutrients, 2016, 8(2):78.

DOI PMID

[20]
YAMAKOSHI J, SAITO M, KATAOKA S, et al. Safety evaluation of proanthocyanidin-rich extract from grape seeds[J]. Food and Chemical Toxicology, 2002, 40(5):599-607.

DOI PMID

[21]
BAGCHI D, GARG A, KROHN R L, et al. Oxygen free radical scavenging abilities of vitamins C and E,and a grape seed proanthocyanidin extract in vitro[J]. Research Communications in Molecular Pathology and Pharmacology, 1997, 95(2):179-189.

[22]
HAN M, SONG P X, HUANG C, et al. Dietary grape seed proanthocyanidins (GSPs) improve weaned intestinal microbiota and mucosal barrier using a piglet model[J]. Oncotarget, 2016, 7(49):80313-80326.

DOI PMID

[23]
GAO Z P, WU H, ZHANG K Q, et al. Protective effects of grape seed procyanidin extract on intestinal barrier dysfunction induced by a long-term high-fat diet[J]. Journal of Functional Foods, 2020, 64:103663.

[24]
SINGH S, KOLI P, BHADORIA B K, et al. Proanthocyanidins modulate rumen enzyme activities and protein utilization in vitro[J]. Molecules, 2022, 27(18):5870.

[25]
ZHANG H, TONG J J, WANG Z, et al. Illumina MiSeq sequencing reveals the effects of grape seed procyanidin on rumen archaeal communities in vitro[J]. Asian-Australasian Journal of Animal Sciences, 2020, 33(1):61-68.

[26]
张佳, 王园, 安晓萍, 等. 植物多酚的生物活性及在反刍动物生产中的应用[J]. 饲料工业, 2022, 43(1):18-23.

ZHANG J, WANG Y, AN X P, et al. Bioactivity in rmninant of plant polyphenol and its application in ruminant[J]. Feed Industry, 2022, 43(1):18-23. (in Chinese)

[27]
MENKE K H. Estimation of the energetic feed value obtained by chemical analysis and in vitro gas production using rumen fluid[J]. Animal Research and Development, 1988, 28:7-55.

[28]
滕战伟, 陈秋楠, 王笑笑, 等. 不同来源多酚对奶牛瘤胃体外营养物质降解率和甲烷产量的影响[J]. 中国兽医学报, 2023, 43(10):2157-2161,2170.

TENG Z W, CHEN Q N, WANG X X, et al. Effects of polyphenols from different sources on in vitro ruminal nutrient degradation rate and methane production in dairy cows[J]. Chinese Journal of Veterinary Science, 2023, 43(10):2157-2161,2170. (in Chinese)

[29]
MOATE P J, WILLIAMS S R, TOROK V A, et al. Grape marc reduces methane emissions when fed to dairy cows[J]. Journal of Dairy Science, 2014, 97(8):5073-5087.

DOI PMID

[30]
ZHANG Z W, CAO Z J, WANG Y L, et al. Nitrocompounds as potential methanogenic inhibitors in ruminant animals:a review[J]. Animal Feed Science and Technology, 2018, 236:107-114.

[31]
WESTON R H, HOGAN J P. The digestion of pasture plants by sheep.Ⅱ.The digestion of ryegrass at different stages of maturity[J]. Australian Journal of Agricultural Research, 1968, 19(6):963-979.

[32]
MA J, LI T, LIN L, et al. Effects of grape seed extract supplementation on the growth performance,nutrients digestion and immunity of weaned lambs[J]. Frontiers in Veterinary Science, 2024, 11:1402637.

[33]
郝小燕, 牟春堂, 乔栋, 等. 葡萄籽原花青素对羔羊瘤胃发酵、血清炎症及抗氧化指标的影响[J]. 中国农业科学, 2021, 54(10):2239-2248.

DOI

HAO X Y, MOU C T,QIAO, et al. Effects of high-concentrate diet supplemented with grape seed proanthocyanidins on rumen fermentation, inflammatory and antioxidant indicators of rumen and serum in lambs[J]. Scientia Agricultura Sinica, 2021, 54(10):2239-2248. (in Chinese)

DOI

[34]
李家博, 王小琪, 段子渊. 植物多酚在反刍家畜中的研究进展[J]. 中国饲料, 2022(19):21-29.

LI J B, WANG X Q, DUAN Z Y. Research progress in application of plant polyphenols in ruminants[J]. China Feed, 2022(19):21-29. (in Chinese)

[35]
VAN NEVEL C J. DEMEYER D I. Control of rumen methanogenesis[J]. Environment Monitoring and Assessment, 1996, 42(1/2):73-97.

[36]
TAN J, WANG Y, NIU H Y, et al. Metagenomic insights into the mechanistic differences of plant polyphenols and nitrocompounds in reducing methane emissions using the rumen simulation technique[J]. Science of the Total Environment, 2024, 953:176135.

[37]
VAN LINGEN H J, PLUGGE C M, FADEL J G, et al. Thermodynamic driving force of hydrogen on rumen microbial metabolism:a theoretical investigation[J]. PLoS One, 2016, 11(10):e0161362.

[38]
MCALLISTER T A, NEWBOLD C J. Redirecting rumen fermentation to reduce methanogenesis[J]. Australian Journal of Experimental Agriculture, 2008, 48(2):7-13.

[39]
COMTET-MARRE S, PARISOT N, LEPERCQ P, et al. Metatranscriptomics reveals the active bacterial and eukaryotic fibrolytic communities in the rumen of dairy cow fed a mixed diet[J]. Frontiers in Microbiology, 2017, 8:67.

[40]
PITTA D W, PINCHAK W E, INDUGU N, et al. Metagenomic analysis of the rumen microbiome of steers with wheat-induced frothy bloat[J]. Frontiers in Microbiology, 2016, 7:689.

DOI PMID

[41]
吴万成, 马涛, 刘娜, 等. 白藜芦醇对不同类型底物甲烷产生、养分降解及微生物区系的影响[J]. 畜牧兽医学报, 2020, 51(6):1281-1294.

DOI

WU W C, MA T, LIU N, et al. Effect of resveratrol on methane production,nutrient degradation and microbial community under different substrates[J]. Acta Veterinaria et Zootechnica Sinica, 2020, 51(6):1281-1294. (in Chinese)

[42]
刘子豪. 三硝基丙醇与维生素B12或延胡索酸协同调控奶牛瘤胃丙酸和甲烷生成的组合效应研究[D]. 硕士学位论文. 北京: 中国农业科学院, 2022.

LIU Z H. Combinatorial effects of 3-nitrooxypropanol and vitamin B12 or fumarate in synergistic regulation of rumen propionate and methanogenesis in dairy cow[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2022. (in Chinese)

[43]
POPE P B, SMITH W, DENMAN S E, et al. Isolation of succinivibrionaceae implicated in low methane emissions from tammar wallabies[J]. Science, 2011, 333(6042):646-648.

DOI PMID

[44]
DING X Z, LONG R J, ZHANG Q, et al. Reducing methane emissions and the methanogen population in the rumen of Tibetan sheep by dietary supplementation with coconut oil[J]. Tropical Animal Health and Production, 2012, 44(7):1541-1545.

DOI PMID

文章导航

/