研究论文

槲皮素对小鼠肌内脂肪沉积的影响及其机制探究

  • 洪妍 , 1 ,
  • 刘佳琪 1, 2, 3 ,
  • 杨童寓丹 1, 2, 3 ,
  • 王新霞 , 1, 2, 3, *
展开
  • 1 浙江大学动物科学学院,杭州 310058
  • 2 浙江大学动物分子营养学教育部重点实验室,杭州 310058
  • 3 农业农村部动物营养与饲料(华东)重点实验室,杭州 310058
*王新霞,教授,博士生导师,E-mail:

洪 妍(2002—),女,浙江台州人,本科生,动物科学专业。E-mail:

Copy editor: 田艳明

收稿日期: 2024-06-14

  网络出版日期: 2025-02-16

基金资助

国家自然科学基金重点项目(32330098)

Effects of Quercetin on Intramuscular Fat Deposition in Mice and Its Mechanisms

  • HONG Yan , 1 ,
  • LIU Jiaqi 1, 2, 3 ,
  • YANG Tongyudan 1, 2, 3 ,
  • WANG Xinxia , 1, 2, 3, *
Expand
  • 1 College of Animal Science, Zhejiang University, Hangzhou 310058, China
  • 2 Key Laboratory of Molecular Animal Nutrition (Zhejiang University), Ministry of Education, Hangzhou 310058, China
  • 3 Key Laboratory of Animal Nutrition and Feed Science (Eastern of China), Ministry of Agriculture and Rural Affairs, Hangzhou 310058, China
*professor, E-mail:

Received date: 2024-06-14

  Online published: 2025-02-16

摘要

本试验旨在探究槲皮素对小鼠肌内脂肪沉积的影响及其潜在调节机制。活体试验选取24只7周龄雄性C57BL/6J小鼠,预试7 d后随机平均分为2组,即对照组(NCD组)和槲皮素组(NQ组),每组6个重复,每个重复2只小鼠。NCD组小鼠每日灌胃10 μL/g BW的磷酸盐缓冲液(PBS),NQ组小鼠每日灌胃10 μL/g BW的槲皮素溶液(10 mg/mL)。试验期42 d,期间所有小鼠均饲喂基础饲粮,自由采食和饮水。试验进行至第29天,向小鼠双侧胫骨前肌注射50%甘油以诱导构建肌肉脂肪浸润模型,并分别于造模后第7和14天取样。细胞试验选取8周龄雄性C57BL/6J小鼠,分离并培养小鼠成纤维/成脂祖细胞(FAPs),梯度槲皮素(0、1、5、10、20和40 μmol/L)处理,采用鸡尾酒法诱导细胞成脂分化。结果表明:1)100 mg/kg槲皮素抑制小鼠肌内脂肪沉积,但对小鼠体重、采食量和血清甘油三酯含量无显著影响(P>0.05)。2)槲皮素呈剂量依赖性抑制小鼠FAPs分化聚酯。3)槲皮素影响小鼠粪便菌群结构,降低厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)等的相对丰度以及厚壁菌门/拟杆菌门值,提高罗姆布茨菌属(Romboutsia)和回肠杆菌属(Ileibacterium)等的相对丰度。4)槲皮素影响小鼠粪便代谢物,差异代谢物富集在氨基酸、脂肪酸和胆汁酸代谢相关通路;其中,与NCD组相比,NQ组粪便精胺、亚精胺和肌苷等代谢物含量显著提高(P<0.05),粪便二十碳五烯酸(EPA)和20-羟基二十碳四烯酸(20-HETE)等代谢物含量显著降低(P<0.05)。5)槲皮素显著提高小鼠胫骨前肌mRNA N6-甲基腺苷(m6A)水平(P<0.05)。综上所述,槲皮素可以显著抑制小鼠肌内脂肪沉积,可能是通过改变小鼠肠道微生物群落结构和相关代谢产物以及肌肉组织m6A甲基化修饰等途径发挥调节作用。

本文引用格式

洪妍 , 刘佳琪 , 杨童寓丹 , 王新霞 . 槲皮素对小鼠肌内脂肪沉积的影响及其机制探究[J]. 动物营养学报, 2025 , 37(2) : 1298 -1311 . DOI: 10.12418/CJAN2025.112

Abstract

The experiment was conducted to investigate the effects of quercetin on intramuscular fat (IMF) deposition in mice and its potential regulatory mechanisms. Twenty-four 7-week-old male C57BL/6J mice were selected and randomly divided into two groups as control group (NCD group) and quercetin group (NQ group) with 6 replicates in each group and 2 mice in each replicate. Mice in NCD group were gavaged with 10 μL/g BW phosphate buffer solution (PBS) daily, while those in NQ group were gavaged with 10 μL/g BW quercetin solution (10 mg/mL) daily. The experimental period lasted for 42 days, during which all mice were freely fed a basic diet and drinking water. On the 29th day of the experiment, 50% glycerol was injected into the bilateral tibialis anterior of mice to induce the establishment of muscle fat infiltration model, and muscle samples were taken on the 7th and 14th day after the modeling. Male C57BL/6J mice aged at 8 weeks were selected for cell experiment, and mouse fibro/adipogenic progenitors (FAPs) were isolated and cultured. Cocktail method was used to induce adipogenic differentiation while treating with gradient quercetin (0, 1, 5, 10, 20 and 40 μmol/L). The results showed as follows: 1) 100 mg/kg BW quercetin inhibited IMF deposition in mice, but had no significant differences on mice weight, feed intake, and serum triglyceride content (P>0.05). 2) Quercetin dose-dependently inhibited FAPs differentiation polyester. 3) Quercetin altered the fecal microbiota structure of mice, reduced the relative abundances of Firmicutes and Bacteroidota as well as Firmicutes to Bacteroidota ratio, while increased the relative abundances of Romboutsia and Ileibacterium. 4) Quercetin altered the fecal metabolites of mice, and the differential metabolites were enriched in pathways related to amino acid, fatty acid and bile acid metabolism. Among them, compared with NCD group, the fecal contents of metabolites such as spermine, spermidine and inosine in NQ group were significantly increased (P<0.05), while the fecal contents of metabolites such as eicosapentaenoic acid (EPA) and 20-hydroxyeicosatetraenoic acid (20-HETE) were significantly reduced (P<0.01). 5) Quercetin significantly increased the mRNA N6-methyladenosine (m6A) level in tibialis anterior of mice (P<0.05). In summary, quercetin can inhibit IMF deposition in mice, which may exert regulatory effects through multiple pathways such as affecting the structure of mice gut microbiota and related metabolites and muscle tissue m6A methylation modification.

我国生猪养殖90%以上是外来品种“杜长大”三元杂交猪,其相较于金华猪、莱芜猪等我国地方优良品种猪而言,肌内脂肪含量低,肉品质较差[1]。2020年国务院办公厅发布关于促进畜牧业高质量发展的意见,明确提出畜牧业是关系国计民生的重要产业,肉蛋奶是百姓“菜篮子”的重要品种,优质猪肉生产是推动生猪产业高质量发展的必然要求。因此,如何在当前养殖品种现状下提升猪肉品质是亟待解决的关键问题。猪肉品质的评价指标很多,其中肌内脂肪含量既是影响猪肉品质的生物学基础,也是影响其他肉质指标的关键因素,通过营养手段提升肌内脂肪含量是改善猪肉品质的重要策略之一。
多酚、黄酮等植物提取物具有抗氧化、抗炎、抗菌以及抗肿瘤等多重生物学活性和药理学作用[2],是动物营养领域的研究热点之一。本课题组前期研究发现,饲粮中添加姜黄素、表没食子儿茶素没食子酸酯(EGCG)和甜菜碱等多酚类或黄酮类化合物均能显著提高育肥猪肌内脂肪含量[3-5]。槲皮素,又称栎精,是人类和动物摄入最多的天然黄酮类、多酚类化合物之一[6],探究槲皮素对肌内脂肪沉积的影响具有重要意义。已有研究表明,槲皮素进入胃肠道后会通过影响肠道微生物发挥功能[7];本课题组前期研究发现,姜黄素和EGCG通过影响N6-甲基腺苷(m6A)甲基化修饰促进肌内脂肪沉积[8-9]。这些都为本试验探究槲皮素对肌内脂肪沉积的内在机制提供了借鉴与方向。因此,本研究从活体和细胞2个层面探究饲粮中添加槲皮素对小鼠肌内脂肪沉积的影响,并从粪便微生物及其代谢产物、组织m6A表观遗传修饰等角度探讨槲皮素调节肌内脂肪沉积的可能机制,旨在为槲皮素在畜牧生产中的应用提供理论基础,也为动物营养与肌内脂肪沉积的研究提供新的视角。

1 材料与方法

1.1 试验材料

1.1.1 主要试剂

槲皮素(货号:Q4951)购自美国Sigma-Aldrich公司,纯度≥95%;使用磷酸盐缓冲液(PBS)配制成为10 mg/mL浓度溶液用于小鼠活体试验,并使用二甲基亚砜(DMSO)配制成为100 mmol/L浓度溶液用于细胞试验。

1.1.2 试验动物

试验动物为7或8周龄雄性C57BL/6J小鼠,购自上海斯莱克实验动物有限责任公司。

1.1.3 试验细胞

试验细胞为小鼠成纤维/成脂祖细胞(fibro/adipogenic progenitors,FAPs)。

1.2 试验方法

1.2.1 动物试验设计和样品采集

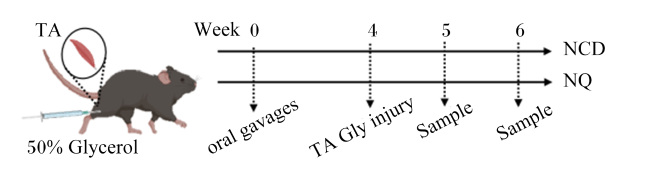
所有动物试验均经浙江大学动物护理与使用委员会和动物实验伦理委员会批准(批准号:ZJU20210188),在浙江大学实验动物中心完成。如图1所示,试验选取7周龄雄性C57BL/6J小鼠,预试7 d后随机平均分为2组,即对照组(NCD组)和槲皮素组(NQ组),每组6个重复,每个重复2只小鼠。NCD组小鼠每日灌胃10 μL/g BW的PBS,NQ组小鼠每日灌胃10 μL/g BW的浓度为10 mg/mL的槲皮素溶液。试验期42 d,期间所有小鼠均饲喂基础饲粮,自由采食和饮水。试验进行至第29天,向小鼠双侧骨骼肌分别注射80 μL 50%甘油,诱导构建肌肉脂肪浸润模型,并分别于注射甘油后第7和14天(试验第35和42天)取样。
图1 小鼠饲养及模型构建示意图

TA:胫骨前肌 tibialis anterior;Glycerol:甘油;oral gavages:口腔灌胃;NCD:对照组 control group;NQ:槲皮素组 quercetin group;TA Gly injury:胫骨前肌甘油损伤 tibialis anterior glycerol injury;Sample:采样;Week:周数。

Fig.1 Schematic diagram of mice feeding and model construction

体成分检测:取样当天,小鼠禁食4 h,使用低场核磁小动物体成分分析仪检测各组小鼠脂肪和肌肉含量。
取样:各组所有小鼠眼球取血,颈部拉伸处死,分离胫骨前肌(tibialis anterior,TA)。TA样品部分固定于多聚甲醛、包埋剂,用于苏木精-伊红(HE)和冷冻切片染色;其余部分液氮速冻后转移至-80 ℃冰箱保存。血液室温静置2 h后4 ℃、12 000×g离心15 min,取上层血清置于-80 ℃冰箱保存。

1.2.2 HE染色

将TA组织石蜡包埋并切片,脱蜡复水后,采用苏木精溶液染色5 min,自来水下冲洗反蓝;伊红溶液染色3 min,自来水充分水洗;然后在显微镜下观察脂滴并拍照记录。

1.2.3 冷冻切片染色

将TA组织包埋并冷冻切片,采用1 μmol/L Bodipy染料染色15 min,PBS溶液洗3次;采用2.5 μg/mL Hoechst染料染色15 min,PBS溶液洗3次。在荧光显微镜下观察脂滴并拍照记录。

1.2.4 甘油三酯(triglyceride,TG)含量检测

TG检测试剂盒购自南京建成生物工程研究所。参考说明书,空白孔、标准孔和样本孔分别加入2.5 μL蒸馏水、2.5 μL校准品和2.5 μL样本,随后各孔加入250 μL工作液;振荡孔板摇匀后,在37 ℃恒温箱孵育10 min,检测500 nm波长下各孔的吸光度值。计算血清TG含量,计算公式为:
C= A - A A - A ×C标准
式中:C为血清TG含量(mmol/L);A为500 nm波长下各孔的吸光度值;C标准为标准品浓度,为2.26 mmol/L。

1.2.5 小鼠FAPs的分离和培养

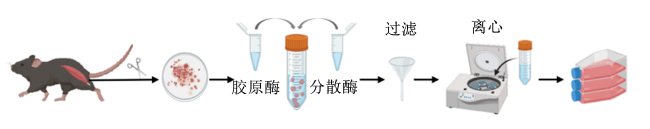
图2所示,选取2只8周龄雄性C57BL/6J小鼠,颈部拉伸处死,用75%酒精浸泡消毒;分离小鼠后肢骨骼肌,去除筋膜和肌腱后剪成粗浆;按1∶2(体积比)加入0.2%Ⅱ型胶原酶,37 ℃摇床消化60 min;按10∶1(体积比)加入分散酶,37 ℃摇床消化45 min;加入完全培养基中止消化反应;70 μm细胞筛过滤;1 100×g离心5 min后弃上清;加入PBS清洗细胞沉淀2次;加入含18%胎牛血清(FBS)的完全培养基重悬细胞沉淀;将细胞悬液接种至10 cm培养皿,在37 ℃、5%二氧化碳(CO2)的细胞培养箱中培养,4 h后换液弃去未贴壁细胞;贴壁细胞继续扩增培养,即为小鼠FAPs。
图2 小鼠FAPs分离示意图

Fig.2 Schematic diagram of mice FAPs separation

1.2.6 小鼠FAPs的分化诱导

将细胞初始状态记为Day0,接触抑制记为Day2。Day0时更换分化诱导培养基[完全培养基+磷酸二脂酶抑制剂(IBMX)+地塞米松+胰岛素+格罗列酮);Day2时更换胰岛素培养基(完全培养基+胰岛素),此后每2 d更换胰岛素培养基。分化诱导期间加入梯度浓度[0(对照)、1、5、10、20和40 μmol/L]槲皮素处理细胞,分为6组,每组3个重复。

1.2.7 细胞Bodipy和Hoechst染色

吸弃培养基,PBS润洗后,加入1 μmol/L Bodipy染料,轻摇使之完全覆盖细胞,细胞培养箱孵育45 min;吸弃染料,PBS溶液洗3次;加入2.5 μg/mL Hoechst染料,轻摇使之完全覆盖细胞,细胞培养箱孵育10 min;吸弃染料,PBS溶液洗3次。在荧光显微镜下观察脂滴并拍照记录。

1.2.8 粪便微生物16S rRNA扩增子测序分析

测序由上海美吉生物医药科技有限公司完成,利用Illumina高通量测序平台对小鼠粪便微生物进行16S rRNA测序,分析菌群多样性和组成。

1.2.9 非靶标粪便代谢物检测

代谢物检测由上海美吉生物医药科技有限公司完成,利用液相色谱-质谱联用(LC-MS)平台分析小鼠粪便微生物代谢物变化,筛选组间差异代谢物,并利用京都基因与基因组百科全书(KEGG)通路数据库对代谢物进行注释,得到不同代谢物的功能及分类。

1.2.10 Dot blot检测m6A水平

采用TRIzol试剂盒提取TA组织RNA,利用NanoDrop2000分光光度计测定RNA浓度。RNA样品变性处理后点样于硝酸纤维素膜(1 μg RNA),室温晾干;紫外交联2次;含吐温-20的磷酸盐缓冲液(PBST)浸洗,置于5%脱脂奶粉(PBST配制)中,室温摇床孵育1 h;PBST洗去封闭液;m6A一抗(HA721152,杭州华安生物技术有限公司)4 ℃摇床孵育过夜;PBST洗3次;兔抗(BL003A,Biosharp)室温摇床孵育1 h;PBST洗3次;显影并保存;亚甲基蓝溶液室温摇床孵育10 min,清水冲洗后拍照保存。

1.3 统计分析

利用ImageJ软件进行Bodipy和Hoechst图像合并及灰度分析;在Illumina高通量测序平台与LC-MS平台分析微生物组和代谢组。利用GraphPad Prism 9.0的Student’s t检验进行数据显著性分析,试验结果数据采用“平均值±标准差”形式表示,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 槲皮素对小鼠表型的影响

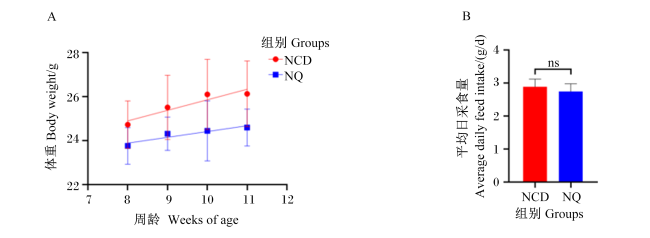
图3所示,小鼠生长曲线和采食量数据表明,NCD组和NQ组小鼠均正常生长,槲皮素对小鼠体重和采食量均无显著影响(P>0.05)。
图3 槲皮素对小鼠生长的影响

A:小鼠生长曲线;B:小鼠平均日采食量。A: growth curves of mice; B: average daily feed intake of mice.

数据柱标记ns表示无显著差异(P>0.05)。图4图7同。Data columns marked with ns mean no significant difference (P>0.05). The same as Fig.4 and Fig.7.

Fig.3 Effects of quercetin on growth of mice

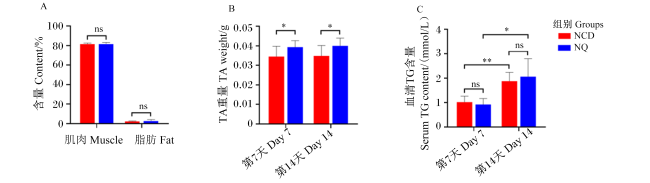
图4所示,槲皮素对小鼠体脂肪和肌肉含量无显著影响(P>0.05)(图4-A),NQ组小鼠TA重量在第7天和第14天均显著高于NCD组小鼠(P<0.05)(图4-B)。在同一取样时间点,NCD组和NQ组小鼠血清TG含量无显著差异(P>0.05);而同一组小鼠,NCD组第14天血清TG含量极显著高于第7天(P<0.01),NQ组第14天血清TG含量显著高于第7天(P<0.05)(图4-C)。
图4 槲皮素对小鼠体成分、TA重量和血清TG含量的影响

A:体成分;B:TA重量;C:血清TG含量。A: body composition; B: TA weight; C: serum TG content.

数据柱标记*表示差异显著(P<0.05),标记**表示差异极显著(P<0.01)。图13同。Data columns marked with * mean significant difference (P<0.05), and with ** mean extremely significant difference (P<0.01). The same as Fig.13.

Fig.4 Effects of quercetin on body composition, TA weight and serum TG content in mice

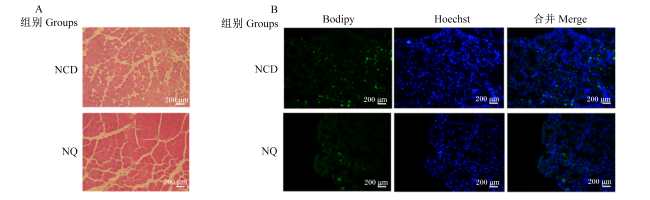
图5所示,小鼠TA的HE及冷冻切片Bodipy和Hoechst染色表明,2组小鼠TA存在肌内脂肪沉积,肌内脂肪浸润模型构建成功。其中,NQ组小鼠TA肌内脂肪沉积明显低于对照组,表明槲皮素可以明显抑制甘油诱导的小鼠肌内脂肪沉积。
图5 槲皮素对小鼠肌内脂肪沉积的影响

A:HE染色;B:Bodipy和Hoechst染色。

Fig.5 Effects of quercetin on intramuscular fat deposition in mice

A: HE staining; B: Bodipy and Hoechst staining.

2.2 槲皮素对小鼠FAPs细胞表型的影响

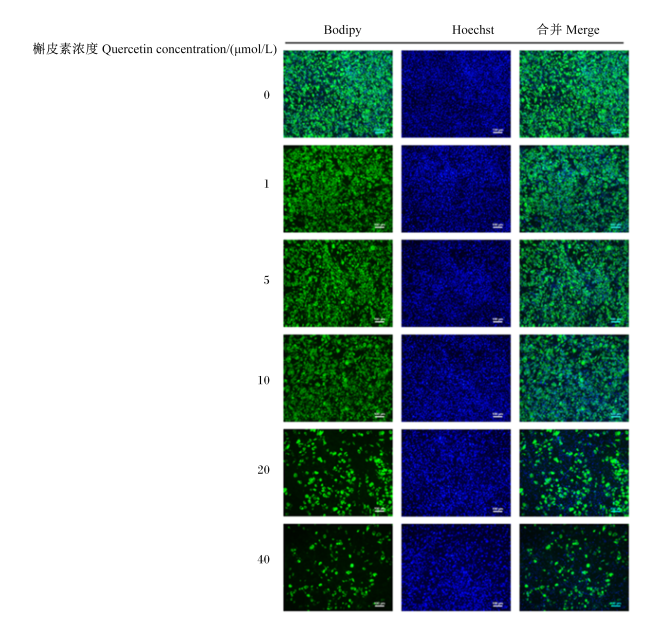
图6所示,Bodipy和Hoechst染色结果显示,0、1、5、10、20、40 μmol/L槲皮素呈剂量依赖性抑制FAPs细胞的成脂分化。
图6 槲皮素对小鼠FAPs成脂分化的影响

Fig.6 Effects of quercetin on adipogenic differentiation of mice FAPs

2.3 槲皮素对小鼠粪便微生物组的影响

利用Illumina高通量测序平台对NCD组和NQ组小鼠各6个粪便样本进行16S rRNA测序,得到1 033 049条序列。为避免测序深度差异导致的误差,所有样本按最小序列数随机抽平至33 588条序列。根据97%序列相似性,共鉴定出2 392个操作分类单元(OTU);与Silva数据库比对,分类为11个门、16个纲、16个目、37个科和135个属。
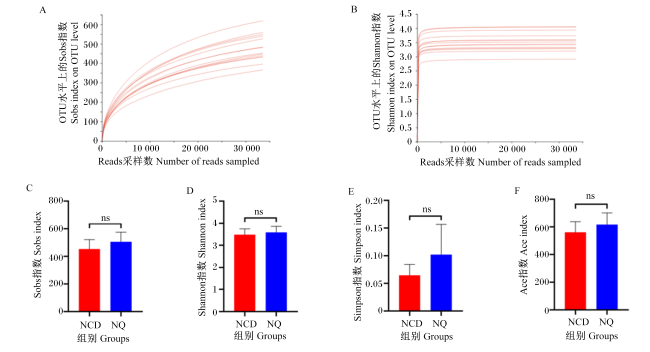
图7所示,稀释曲线结果(图7-A图7-B)显示,样本数目较大时多样性指数上升趋势变缓,表明测序数据、深度及样本量已足够进行后续分析;α多样性分析[Sobs指数(图7-C)、Shannon指数(图7-D)、Simpson指数(图7-E)和Ace指数(图7-F)]结果表明,槲皮素对小鼠粪便微生物丰富度和均匀度均无显著影响(P>0.05),但各指数均有所提高。
图7 小鼠粪便微生物α多样性分析

A:Sobs指数稀释曲线;B:Shannon指数稀释曲线;C:Sobs指数;D:Shannon指数;E:Simpson指数;F:Ace指数。

Fig.7 α diversity analysis of fecal microbiota in mice

A: Sobs index dilution curve; B: Shannon index dilution curve; C: Sobs index; D: Shannon index; E: Simpson index; F: Ace index.

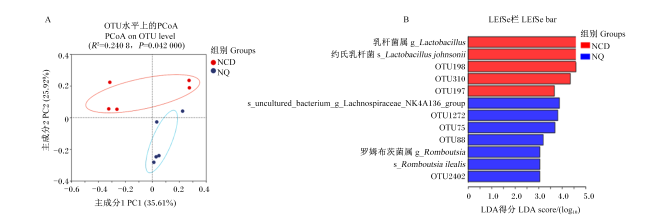
基于Bray-Curtis距离进行主坐标分析(PCoA),并采用Adonis检验组间差异。如图8所示,主成分1(PC1)和主成分2(PC2)对样品差异的贡献值分别为35.61%和25.92%,表明槲皮素可显著改变小鼠粪便菌群的结构分群(P<0.05);决定系数(R2)=0.240 8>0,表明组间差异大于组内(图8-A)。采用线性判别分析(LDA)效应大小(LEfSe)分析筛选小鼠粪便菌群中丰度差异显著的微生物(LDA得分≥3)发现,NQ组小鼠粪便中罗姆布茨菌属(Romboutsia)等微生物的丰度显著高于NCD组(P<0.05),而乳杆菌属(Lactobacillus)、约氏乳杆菌(Lactobacillus johnsonii)等微生物的丰度则显著低于NCD组(P<0.05)(图8-B)。
图8 小鼠粪便微生物差异物种分析

A:基于Bray-Curtis距离的PCoA;B:LEfSe分析。

Fig.8 Analysis of differential species in fecal microbiota in mice

A: PCoA based on Bray-Curtis distance; B: LEfSe analysis.

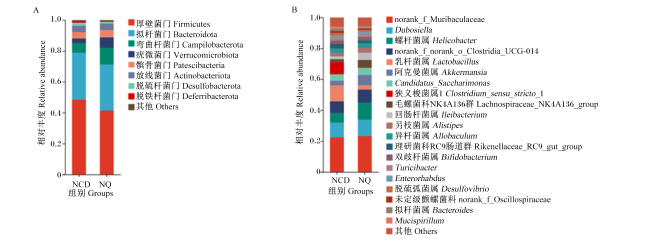
图9所示,小鼠粪便微生物组成分析结果显示,在门水平上,相比NCD组,NQ组小鼠粪便中厚壁菌门(Firmicutes)(48.5% vs 41.4%)、拟杆菌门(Bacteroidota)(30.4% vs 29.7%)、脱硫杆菌门(Desulfobacterota)(2.0% vs 1.2%)和脱铁杆菌门(Deferribacterota)(1.2% vs 0.5%)相对丰度有所降低,厚壁菌门/拟杆菌门值由1.60下降至1.39,而弯曲杆菌门(Campilobacterota)(6.0% vs 10.9%)、疣微菌门(Verrucomicrobiota)(3.3% vs 6.8%)相对丰度有所提高(图9-A);在属水平上,相比NCD组,NQ组小鼠粪便中乳杆菌属(10.1% vs 2.6%)和狭义梭菌属1(Clostridium_sensu_stricto_1)(7.9% vs 0.5%)相对丰度有所降低,而螺杆菌属(Helicobacter)(6.0% vs 10.9%)、阿克曼菌属(Akkermansia)(3.3% vs 6.8%)、毛螺菌科NK4A136群(Lachnospiraceae_NK4A136_group)(1.9% vs 4.6%)、回肠杆菌属(Ileibacterium)(1.8%vs4.6%)和异杆菌属(Allobaculum)(2.6%vs 3.0%)相对丰度有所提高(图9-B)。
图9 小鼠粪便微生物组成分析

A:门水平组成;B:属水平组成。

Fig.9 Analysis of composition of fecal microbiota in mice

A: composition at phylum level; B: composition at genus level.

2.4 槲皮素对小鼠粪便代谢组的影响

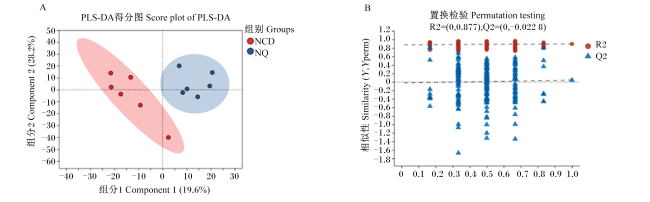
图10所示,偏最小二乘法判别分析(PLS-DA)结果表明,NCD组和NQ组小鼠粪便代谢物谱型存在明显差异(图10-A);同时,Q2回归线与Y轴的截距小于0.05,表明模型稳健可靠,未发生过拟合(图10-B)。
图10 小鼠粪便代谢物比较分析

A:粪便代谢组PLS-DA;B:PLS-DA置换检验。

Fig.10 Comparative analysis of fecal metabolites in mice

A: PLS-DA of fecal metabolome; B: PLS-DA permutation testing.

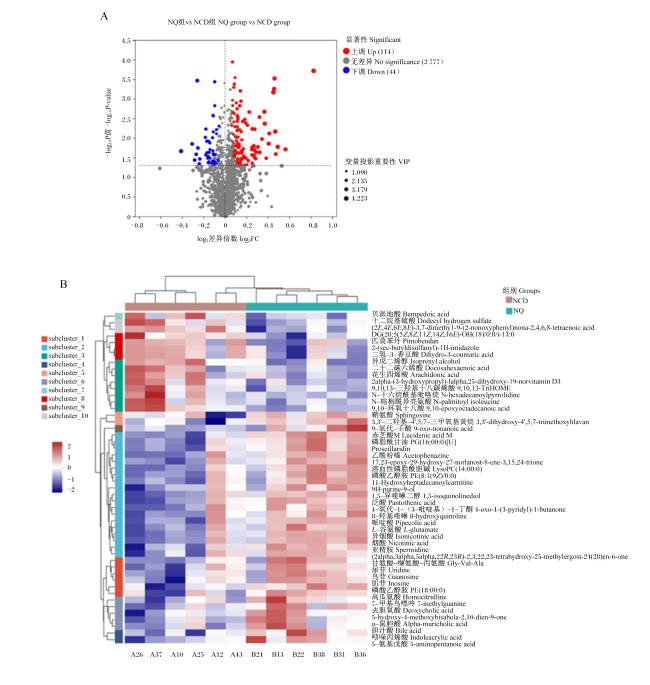
图11所示,以差异倍数(FC)>1、变量投影重要性(VIP)≥1.5、P<0.05为标准,共筛选到158种差异代谢物(图11-A),其中44种代谢物下调,114种代谢物上调。上调最显著的前10种代谢物分别为西那普利、6-氨基青霉烷酸、环莠隆、色氨酸-缬氨酸、L-β-天冬氨酸-L-丙氨酸、苄达酸、精胺、N-神经酰谷氨酰胺、2-羟基-3-(3-吲哚基)丙酸乙酯糖苷和烟酸丁氧基乙酯(P<0.05),下调最显著的前10种代谢物分别为9-氧代-十八碳二烯酸、(9E,12Z)-10-亚硝十八烷基-9,12-二烯酰基肉碱、二十碳五烯酸(EPA)、香豆素酸、二高-γ-亚麻酸乙酯、2″,6″-二-O-乙酰丙酮、吡咯酮、前列腺素E2甲酯、PA(PGE1/2∶0)和三萜内酯(P<0.05)。对差异代谢物聚类分析表明,同组样本聚类在一起,表明组间差异大于组内差异(图11-B)。
图11 小鼠粪便差异代谢物分析

A:粪便差异代谢物火山图;B:粪便代谢物聚类分析热图,其中垂直方向为代谢物聚类,水平方向为样品聚类。A: volcano plot of differential metabolites in feces; B: heatmap of fecal metabolite clustering analysis, in which metabolite clustering was in the vertical direction, and sample clustering was in the horizontal direction.

subcluster:子聚类。

Fig.11 Analysis of fecal differential metabolites in mice

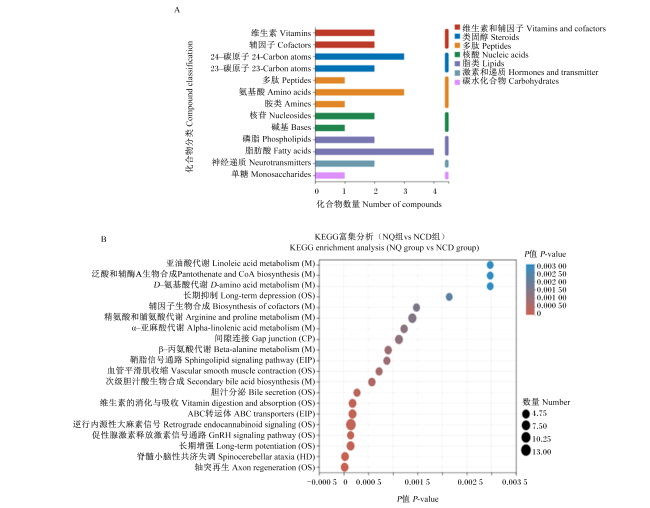
利用KEGG通路数据库对小鼠粪便代谢物进行注释,得到不同代谢物的功能及分类,结果如图12所示。结果表明,代谢物和差异代谢物主要分布在新陈代谢、生物体系统、细胞过程、环境信息加工和人类疾病5大通路,其中注释到新陈代谢和生物体系统的代谢物和差异代谢物最多,且主要分布在亚油酸代谢、泛酸和辅酶A生物合成、D-氨基酸代谢、辅因子生物合成、精氨酸和脯氨酸代谢、β-丙氨酸代谢、次生胆汁酸生物合成、胆汁分泌以及维生素的消化与吸收等途径中。
图12 小鼠粪便代谢物KEGG通路分析

A:粪便代谢物KEGG通路分类;B:粪便代谢物KEGG通路富集分析。A: KEGG pathway classification of fecal metabolites; B: KEGG pathway enrichment analysis of fecal metabolites.

M:新陈代谢 metabolism;OS:生物体系统 organismal system;CP:细胞过程 cellular processes;EIP:环境信息加工 environmental information processing;HQ:人类疾病 human diseases。

Fig.12 KEGG pathway analysis of fecal metabolites in mice

2.5 槲皮素对小鼠TA m6A水平的影响

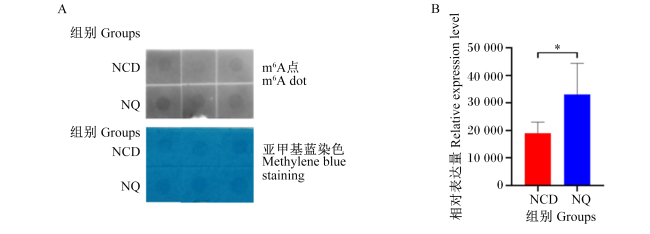
图13所示,Dot blot试验结果表明,槲皮素显著提高小鼠TA组织的mRNA m6A水平(P<0.05)。
图13 槲皮素对小鼠TA m6A水平的影响

A:m6A Dot blot结果;B:TA组织mRNA m6A水平。

Fig.13 Effect of quercetin on TA m6A level in mice

A: m6A Dot blot result; B: mRNA m6A level in TA tissues.

3 讨论

3.1 槲皮素对小鼠肌内脂肪沉积的影响

槲皮素是膳食中最丰富且分布最广的天然多酚类植物化合物之一,具有抗氧化、抗炎、调节糖和脂代谢、抑菌以及抗肿瘤等多重生物学活性,已被证实可以提高育肥猪生长性能[10],有效缓解应激状态下猪的肠道损伤[11],但其对动物肌内脂肪沉积的影响及内在调节机制尚不清晰。骨骼肌注射甘油会通过破坏质膜诱导肌纤维损伤,随后在肌肉再生修复区域伴随着肌内脂肪的沉积,这是一种常见的研究肌内脂肪浸润的模型[12]。本研究基于该模型从活体水平探究了槲皮素对小鼠肌内脂肪沉积的影响,结果发现100 mg/kg BW槲皮素在不影响小鼠正常生长的情况下显著抑制了小鼠肌内脂肪沉积。体外试验同样发现,槲皮素呈梯度抑制小鼠FAPs分化聚酯。以上结果表明,槲皮素可以有效抑制动物肌内脂肪沉积,但其对于“杜长大”猪的肌内脂肪沉积是否有影响、有怎样的影响以及如何影响还有待进一步研究。在畜牧生产中,可以考虑将槲皮素应用于我国地方猪以降低其脂肪沉积,提高经济效益;在医学方面,槲皮素或能作为治疗肌肉萎缩和脂肪浸润的一种新的治疗选择。

3.2 槲皮素对小鼠粪便微生物组的影响

已有研究发现,肠道厚壁菌门、拟杆菌门[13-14]、普雷沃氏菌属(Prevotella)[15]、单形拟杆菌(Bacteroides uniformis)[16]等都与肌内脂肪沉积密切相关,厚壁菌门/拟杆菌门值与肥胖表型呈正相关[13-14,17]。本试验中,槲皮素降低了小鼠粪便厚壁菌门和拟杆菌门相对丰度,二者比值也有所降低。此外,添加槲皮素后,小鼠粪便回肠杆菌属和罗姆布茨菌属相对丰度有所提高。研究发现,回肠杆菌属的代谢产物可保护肠道屏障[18];罗姆布茨菌属与脂质吸收密切相关,将野猪粪菌移植给小鼠,可提高小鼠肠道中罗姆布茨菌属相对丰度以及空肠组织m6A水平,有效缓解代谢紊乱[19]。以上结果表明,槲皮素可能通过改变小鼠肠道菌群结构抑制肌内脂肪沉积。

3.3 槲皮素对小鼠粪便代谢组的影响

肠道微生物主要通过代谢产物调节宿主代谢。本研究中,NCD组和NQ组小鼠粪便中共筛选到158个差异代谢物,包括精胺、亚精胺、肌苷、EPA和20-羟基二十碳四烯酸(20-HETE)等,且主要富集在脂质代谢、氨基酸代谢等相关通路。精胺是一种对细胞功能至关重要的聚阳离子化合物,Nakatani等[20]发现其可以通过抑制脂肪细胞成脂基因的表达进而抑制其脂质积聚。同属多胺类化合物的亚精胺具有调控脂质代谢、减轻炎症和保护肠道屏障的功能[21]。肌苷又称次黄苷,是一种由次黄嘌呤与核糖结合而成的核苷类化合物,细胞外的肌苷可通过激活环磷酸腺苷-蛋白激酶A信号通路促进能量消耗,并保护小鼠免受饮食诱导的肥胖[22]。EPA是一种n-3多不饱和脂肪酸,已被证明是过氧化物酶体增殖物活化受体(PPAR)的潜在激活剂,在成肌细胞转分化期间,EPA通过早期靶向PPARδ和PPARγ1抑制Wnt/β-连环蛋白β-catenin信号传导,以及后期通过PPARγ1激活启动子促进PPARγ2表达,诱导成肌细胞转分化为肌内脂肪细胞[23]。20-HETE同样与脂质代谢密切相关,用20-HETE拮抗剂20-SOLA处理20-HETE过载的Cyp4a14-/-模型小鼠,可显著减轻高脂饮食诱导的体重增加[24]。综上可知,槲皮素可能是通过改变包括精胺、亚精胺、肌苷、EPA和20-HETE等在内的微生物代谢物含量,影响机体脂肪酸、胆汁酸代谢,从而抑制小鼠肌内脂肪沉积。

3.4 槲皮素对小鼠TA m6A水平的影响

m6A是真核生物mRNA中最常见的转录后修饰,主要集中在终止密码子和3'末端非编码区附近,对基因表达调控和细胞命运决定具有重要作用。Luo等[25]发现,脂肪量和肥胖相关蛋白(fat mass and obesity associated protein,FTO)可通过YTH N6-甲基腺苷RNA结合蛋白F(YTH N6-methyladenosine RNA binding protein F,YTHDF)1提高脂肪细胞膜相关蛋白(APMAP)表达,从而提高肉兔的肌内脂肪含量,表明mRNA m6A甲基化修饰水平与肌内脂肪沉积密切相关。本课题组前期研究同样发现,YTHDF1可靶向促进脂联素(adiponectin,ADIPOQ)的mRNA翻译,进而提高猪背最长肌的肌内脂肪沉积[26];YTHDF1还可提高线粒体载体同源物2(mitochondrial carrier homolog 2,MTCH2)基因表达,从而促进肌内前脂肪细胞的脂肪生成[27]。本试验中,槲皮素可以显著提高小鼠TA组织的mRNA m6A水平,提示mRNA m6A表观遗传修饰可能是槲皮素调控肌内脂肪沉积的内在机制。
m6A可作为肠道微生物和宿主间的“信使分子”。一方面,宿主m6A甲基化修饰可通过诱导肠道炎症反应影响肠道微生物组;另一方面,肠道微生物的代谢产物影响了宿主miRNA、circRNA等的甲基化,进而调节宿主基因表达[28]。槲皮素影响了小鼠的肠道微生物组成以及氨基酸、脂肪酸代谢,产生的代谢产物丁酸、亮氨酸等可调控甲基供体S-腺苷甲硫氨酸(S-adenosylmethionine,SAM)和α-酮戊二酸(α-ketoglutaric acid,α-KG)产物含量。其中,SAM可促进甲基转移酶(methyltransferase,METTL)3/METTL14的甲基转移酶复合物进行RNA m6A甲基化[29],α-KG则是FTO和AlkB同源蛋白5(AlkB homolog 5,ALKBH5)氧化m6A N-甲基的共底物[30]。以上结果显示,槲皮素可能通过改变菌群结构影响代谢产物,进而调节TA mRNA m6A甲基化修饰,从而影响肌内脂肪沉积。

4 结论

① 100 mg/kg BW槲皮素可以有效抑制小鼠肌内脂肪沉积,体外呈剂量依赖性抑制FAPs分化聚酯。
② 槲皮素可能通过改变小鼠肠道菌群结构及代谢产物,以及提高TA mRNA m6A水平,从而抑制小鼠肌内脂肪沉积。
[1]
邹醒月, 柳禄灵, 丁鹏, 等. 地方品种猪肉品质及其膳食营养论述[J]. 猪业科学, 2021, 38(4):58-62.

ZOU X Y, LIU L L, DING P, et al. Discussion on the meat quality and pork nutrition of local pigs[J]. Swine Industry Science, 2021, 38(4):58-62. (in Chinese)

[2]
WANG W, WANG C, DING X Q, et al. Quercetin and allopurinol reduce liver thioredoxin-interacting protein to alleviate inflammation and lipid accumulation in diabetic rats[J]. British Journal of Pharmacology, 2013, 169(6):1352-1371.

DOI PMID

[3]
陈雨诗, 刘禹熙, 杨童寓丹, 等. 饲粮中添加姜黄素和二十二碳六烯酸对育肥猪生长性能、胴体性状、肉品质及血清生化、抗氧化和免疫指标的影响[J]. 动物营养学报, 2024, 36(3):1537-1548.

DOI

CHEN Y S, LIU Y X, YANG T Y D, et al. Effects of dietary curcumin and docosahexaenoic acid on growth performance,carcass traits,meat quality and serum biochemical,antioxidant and immune indexes of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1537-1548. (in Chinese)

[4]
楼芳芳, 陈雨诗, 刘禹熙, 等. 姜黄素对育肥期金华猪生长性能、肉品质、脂质代谢及肠道微生物的影响[J]. 中国畜牧杂志, 2023, 59(8):308-315.

LOU F F, CHEN Y S, LIU Y X, et al. The effects of curcumin on growth performance,meat quality,lipid metabolism,and gut microbiota of Jinhua pigs during the fattening period[J]. Chinese Journal of Animal Science, 2023, 59(8):308-315. (in Chinese)

[5]
陈雨诗, 刘禹熙, 杨童寓丹, 等. 饲粮中添加甜菜碱和表没食子儿茶素没食子酸酯对育肥猪生长性能、肉品质、血清生化和抗氧化指标的影响[J]. 动物营养学报, 2024, 36(3):1525-1536.

DOI

CHEN Y S, LIU Y X, YANG T Y D, et al. Effects of dietary betaine and epigallocatechin gallate on growth performance,meat quality,serum biochemical and antioxidant indices of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1525-1536. (in Chinese)

[6]
XIAO L, LUO G, TANG Y H, et al. Quercetin and iron metabolism:what we know and what we need to know[J]. Food and Chemical Toxicology, 2018, 114:190-203.

[7]
钟翔. 天然植物多酚助力绿色生态健康养殖之进展、挑战与未来[J]. 饲料工业, 2023, 44(13):1-13.

ZHONG X. Natural plant polyphenols contribute to the progress,challenges and future of green,ecological and healthy farming[J]. Feed Industry, 2023, 44(13):1-13. (in Chinese)

[8]
CHEN Y S, WU R F, CHEN W, et al. Curcumin prevents obesity by targeting TRAF4-induced ubiquitylation in m6A-dependent manner[J]. EMBO Reports, 2021, 22(5):e52146.

[9]
WU R F, YAO Y X, JIANG Q, et al. Epigallocatechin gallate targets FTO and inhibits adipogenesis in an mRNA m6A-YTHDF2-dependent manner[J]. International Journal of Obesity, 2018, 42(7):1378-1388.

[10]
邹轶, 向全航, 彭健. 止痢草油和槲皮素对育肥猪生长性能和运输应激的影响[C]// 中国畜牧兽医学会动物营养学分会第七届中国饲料营养学术研讨会论文集. 北京: 中国农业大学出版社, 2014.

ZOU Y, XIANG Q H, PENG J. Effects of dysentery oil and quercetin on growth performance and transport stress of fattening pigs[C]// Proceedings of the 7th China Symposium on Feed Nutrition,Animal Nutrition Branch of Chinese Association of Animal Science and Veterinary Medicine. Beijing: China Agricultural University Press, 2014. (in Chinese)

[11]
ZOU Y, WEI H K, XIANG Q H, et al. Protective effect of quercetin on pig intestinal integrity after transport stress is associated with regulation oxidative status and inflammation[J]. Journal of Veterinary Medical Science, 2016, 78(9):1487-1494.

PMID

[12]
陈婷, 李仲文, 张艳艳, 等. 甘油诱导的骨骼肌损伤修复过程肌间脂形态学及肌分泌因子表达变化[J]. 中国生物化学与分子生物学报, 2015, 31(1):64-71.

DOI

CHEN T, LI Z W, ZHANG Y Y, et al. The alterations of intermuscular fat accumulation and myokine expression during glycerol-induced muscle injury[J]. Chinese Journal of Biochemistry and Molecular Biology, 2015, 31(1):64-71. (in Chinese)

DOI

[13]
YANG Q, LIANG Q, BALAKRISHNAN B, et al. Role of dietary nutrients in the modulation of gut microbiota:a narrative review[J]. Nutrients, 2020, 12(2):381.

[14]
ETXEBERRIA U, ARIAS N, BOQUÉ N, et al. Reshaping faecal gut microbiota composition by the intake of trans-resveratrol and quercetin in high-fat sucrose diet-fed rats[J]. Journal of Nutritional Biochemistry, 2015, 26(6):651-660.

[15]
LEI L F, WANG Z B, LI J Z, et al. Comparative microbial profiles of colonic digesta between ningxiang pig and large white pig[J]. Animals :an Open Access Journal from MDPI, 2021, 11(7):1862.

[16]
XIE C L, TENG J Y, WANG X K, et al. Multi-omics analysis reveals gut microbiota-induced intramuscular fat deposition via regulating expression of lipogenesis-associated genes[J]. Animal Nutrition, 2022, 9:84-99.

DOI PMID

[17]
冯铭, 伊旭东, 庞卫军. 肠道微生物通过骨骼肌纤维类型、肌内脂肪含量和骨骼肌代谢调控猪肉质研究进展[J]. 畜牧兽医学报, 2024, 55(6):2304-2312.

DOI

FENG M, YI X D, PANG W J. Advances in intestinal microorganism regulating pork quality through skeletal muscle fiber type,intramuscular fat content and skeletal muscle metabolism[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(6):2304-2312. (in Chinese)

[18]
FANG W J, XUE H L, CHEN X, et al. Supplementation with sodium butyrate modulates the composition of the gut microbiota and ameliorates high-fat diet-induced obesity in mice[J]. Journal of Nutrition, 2019, 149(5):747-754.

DOI PMID

[19]
ZHU L Y, FU J, XIAO X, et al. Faecal microbiota transplantation-mediated jejunal microbiota changes halt high-fat diet-induced obesity in mice via retarding intestinal fat absorption[J]. Microbial Biotechnology, 2022, 15(1):337-352.

[20]
NAKATANI S, HORIMOTO Y, NAKABAYASHI N, et al. Spermine suppresses adipocyte differentiation and exerts anti-obesity effects in vitro and in vivo[J]. International Journal of Molecular Sciences, 2022, 23(19):11818.

[21]
MA L Y, NI Y H, HU L T, et al. Spermidine ameliorates high-fat diet-induced hepatic steatosis and adipose tissue inflammation in preexisting obese mice[J]. Life Sciences, 2021, 265:118739.

[22]
NIEMANN B, HAUFS-BRUSBERG S, PUETZ L, et al. Apoptotic brown adipocytes enhance energy expenditure via extracellular inosine[J]. Nature, 2022, 609(7926):361-368.

[23]
LUO H F, ZHOU Y F, HU X M, et al. Activation of PPARγ2 by PPARγ1 through a functional PPRE in transdifferentiation of myoblasts to adipocytes induced by EPA[J]. Cell Cycle, 2015, 14(12):1830-1841.

DOI PMID

[24]
GILANI A, PANDEY V, GARCIA V, et al. High-fat diet-induced obesity and insulin resistance in CYP4a14-/- mice is mediated by 20-HETE[J]. American Journal of Physiology:Regulatory, Integrative and Comparative Physiology, 2018, 315(5):R934-R944.

[25]
LUO G, HONG T, YU L, et al. FTO regulated intramuscular fat by targeting APMAP gene via an m6A-YTHDF2-dependent manner in Rex rabbits[J]. Cells, 2023, 12(3):369.

[26]
GONG H, GONG T, LIU Y, et al. Profiling of N6-methyladenosine methylation in porcine longissimus dorsi muscle and unravelling the hub gene ADIPOQ promotes adipogenesis in an m6A-YTHDF1-dependent manner[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):50.

[27]
JIANG Q, SUN B F, LIU Q, et al. MTCH2 promotes adipogenesis in intramuscular preadipocytes via an m6A-YTHDF1-dependent mechanism[J]. FASEB Journal, 2019, 33(2):2971-2981.

[28]
ZHUO R H, XU M H, WANG X Y, et al. The regulatory role of N6-methyladenosine modification in the interaction between host and microbes[J]. Wiley Interdisciplinary Reviews:RNA, 2022, 13(6):e1725.

[29]
QI Y N, LIU Z, HONG L L, et al. Methyltransferase-like proteins in cancer biology and potential therapeutic targeting[J]. Journal of Hematology & Oncology, 2023, 16(1):89.

[30]
ALEMU E A, HE C, KLUNGLAND A. ALKBHs-facilitated RNA modifications and de-modifications[J]. DNA Repair, 2016, 44:87-91.

DOI PMID

文章导航

/