研究论文

疏棉状嗜热丝孢菌脂肪酶LipA在毕赤酵母中的重组表达及产量优化

  • 郑毅恒 , 1, 2 ,
  • 侯颖 , 1, * ,
  • 赵仕达 1 ,
  • 成莉凤 3 ,
  • 李炳坤 2, 4 ,
  • 李丁 2
展开
  • 1 河南科技大学食品与生物工程学院,洛阳 471023
  • 2 江苏省农业科学院动物免疫工程研究所,南京 210014
  • 3 中国农业科学院麻类研究所,长沙 410205
  • 4 江西农业大学生物科学与工程学院,南昌 330045
*侯 颖,副教授,硕士生导师,E-mail:

郑毅恒(2000—),男,河南登封人,硕士研究生,从事毕赤酵母表达研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-03-11

  网络出版日期: 2025-02-16

基金资助

国家自然科学基金项目(32002316)

湖南省自然科学基金项目(2023JJ50315)

Recombinant Expression and Yield Optimization of Lipase LipA from Thermomyces lanuginosus in Pichia pastoris

  • ZHENG Yiheng , 1, 2 ,
  • HOU Ying , 1, * ,
  • ZHAO Shida 1 ,
  • CHENG Lifeng 3 ,
  • LI Bingkun 2, 4 ,
  • LI Ding 2
Expand
  • 1 College of Food and Bioengineering, Henan University of Science and Technology, Luoyang 471023, China
  • 2 Institute of Veterinary Immunology & Engineering, Jiangsu Academy of Agricultural Sciences, Nanjing 210014, China
  • 3 Institute of Bast Fiber Crops, Chinese Academy of Agricultural Science, Changsha 410205, China
  • 4 College of Bioscience and Bioengineering, Jiangxi Agricultural University, Nanchang 330045, China
*associate professor, E-mail:

Received date: 2024-03-11

  Online published: 2025-02-16

摘要

本研究将来源于疏棉状嗜热丝孢菌的脂肪酶LipA在毕赤酵母中进行高效表达,并通过多拷贝构建、共表达分子伴侣、高密度发酵等策略对其产量进行优化。首先,在毕赤酵母中对疏棉状嗜热丝孢菌脂肪酶LipA进行异源表达,并对表达产物进行纯化和酶学性质分析;接着,通过构建多拷贝酵母菌株提高目的基因的转录水平,通过共表达分子伴侣改善蛋白的折叠与运输,通过高密度发酵进一步挖掘酵母菌株的生产潜能。结果显示:LipA的最适pH为9,最适温度为50 ℃。LipA在温度和pH方面都具有良好的稳定性,非常适合作为饲料添加剂使用。含有2个拷贝菌株的2-α-LipA具有最高的LipA产量,酶活力可达2 453.63 U/mL,与单拷贝菌株1-α-LipA的1 753.69 U/mL相比提高了39.9%(P<0.05)。在此基础上,共表达了8种不同的分子伴侣,发现其中HAC1显著提高了LipA的产量(P<0.05),使酶活力进一步提高至3 233.2 U/mL,增幅达47.6%。通过对优化后的菌株进行高密度发酵,其最高酶活力可达28 932 U/mL。综上所述,本研究成功利用毕赤酵母对疏棉状嗜热丝孢菌脂肪酶LipA进行了异源表达,通过综合进行基因剂量优化、共表达分子伴侣和高密度发酵,LipA的最终产量相较于初始产量增加了16.49倍。

本文引用格式

郑毅恒 , 侯颖 , 赵仕达 , 成莉凤 , 李炳坤 , 李丁 . 疏棉状嗜热丝孢菌脂肪酶LipA在毕赤酵母中的重组表达及产量优化[J]. 动物营养学报, 2025 , 37(2) : 1365 -1375 . DOI: 10.12418/CJAN2025.117

Abstract

The objective of this study was to efficiently express lipase LipA from Thermomyces lanuginosus in Pichia pastoris, and to optimize its yield by a combination of strategies including multi-copy integration, co-expression with molecular chaperones, and high-density fermentation. Initially, LipA was heterologously expressed in Pichia pastoris, followed by purification and analysis of the enzymatic properties. Subsequently, the transcriptional level of target gene was improved by constructing multi-copy yeast strains, the protein folding and transport was improved through co-expression of chaperones, and the production potential of yeast strains was further explored through high-density fermentation. The findings revealed that LipA displayed optimal activity at pH 9 and temperature of 50 ℃ LipA exhibited remarkable stability at various pH and temperatures, making it highly suitable as a feed additive. The 2-copy strain 2-α-LipA demonstrated the highest yield of LipA, reaching an enzyme activity of 2 453.63 U/mL, a 39.9% increase compared with the single-copy1-α-LipA (1 753.69 U/mL) (P<0.05). Additionally, the co-expression of eight different molecular chaperones was examined, among which HAC1 significantly enhanced LipA yield (P<0.05), resulting in an enzyme activity of 3 233.2 U/mL, a 47.6% improvement. Finally, maximal enzyme activity of 28 932 U/mL was achieved through high-density fermentation following strain optimization. In conclusion, the lipase LipA from Thermomyces lanuginosus is heterogenetically expressed by Pichia pastoris successfully in this study; by optimizing gene dosage, co-expressing molecular chaperones, and utilizing high-density fermentation, the final yield of LipA has increased 16.49-fold compared with the initial yield.

脂类是能量密度最高的饲料原料。为了确保饲料中能量与蛋白质平衡,促进脂溶性维生素的吸收,油脂被广泛应用于饲料生产。脂肪酶作为饲料添加剂,可以弥补幼龄动物内源性消化酶不足,提高畜禽的代谢能力与饲料使用率,同时可在一定程度上降低肠道pH,从而抑制肠道有害微生物滋生[1]。Dierick等[2]研究发现,饲粮中添加0.1%脂肪酶可提高仔猪的日增重,并改善肠道微生物环境;Tan等[3]研究发现,在高脂饲料中添加脂肪酶可以提高肉鸡的增重速度和饲料利用率,并可以保护肠道健康,减少粪便排放量;Yang等[4]给小鼠喂食添加0.1%脂肪酶的饲粮,发现肠道有害微生物丰度显著降低。脂肪酶作为饲料添加剂在各项研究中都证实效果显著,但相对于日益发展的饲料产业,脂肪酶在天然宿主中的产量却远远无法满足实际生产需求。
异源表达是提高脂肪酶产量的有效措施。毕赤酵母为美国食品药品监督管理局(FDA)的一般公认安全(GRAS)认证菌种,具有调控严谨、表达强度高、易于高密度发酵和能进行蛋白后修饰等优点,并可通过表达优化将目的蛋白产量提高至较高水平[5]。本团队前期建立了无抗化毕赤酵母平台,借助Cre/lox系统实现了甲醇诱导的抗性基因自敲除[6]。基于该平台已实现植酸酶、犬α干扰素、猪瘟病毒E2抗原等与畜禽生产密切相关蛋白的高效酵母表达[7-10]。疏棉状嗜热丝孢菌脂肪酶具有较高的热稳定性,在酶制剂制粒过程中可以减少活性损失,因此具有广泛的应用潜力。本研究尝试将来源于疏棉状嗜热丝孢菌的脂肪酶在毕赤酵母中进行分泌表达,并通过多拷贝构建、共表达分子伴侣、高密度发酵等技术对其产量进行优化,最终提高至较理想水平。

1 材料与方法

1.1 菌株、质粒与试剂

大肠杆菌DH10B、毕赤酵母GS115、毕赤酵母表达质粒pMCO-AOXα(用于分泌表达)、pMCO-AOX(用于胞内表达)为本课题组保存;质粒提取、胶回收试剂盒购自AxyGEN公司;限制性内切酶、牛小肠碱性磷酸酯酶(CIAP)、T4连接酶、PCR试剂、DNA Marker等试剂购自宝生物工程(大连)有限公司;蛋白质分子质量标准购自Thermo Fisher Scientific公司;博莱霉素、无氨基酸酵母氮源(YNB)、生物素、酵母基因组提取试剂盒购自生工生物工程(上海)股份有限公司;去糖基化酶Endo Hf购自NEB公司;其余化学试剂均为国产或进口分析纯。

1.2 培养基

YPG培养基:1%酵母粉、2%蛋白胨、1%甘油。
YPGZ培养基:1%酵母粉、2%蛋白胨、1%甘油、100 μg/mL博莱霉素。
BMMY培养基:1%酵母粉、2%蛋白胨、100 mmol/L磷酸钾缓冲液(pH 6.0)、1.34% YNB、0.000 04%生物素、0.5%无水甲醇。

1.3 单拷贝表达载体及酵母菌株的构建

根据疏棉状嗜热丝孢菌脂肪酶的氨基酸序列(GenBank编号O59952),去除信号肽后进行密码子优化及基因合成,利用Xho Ⅰ和Pst Ⅰ位点构建至载体信号肽下游(C端融合载体上的HisTag),得到的重组质粒,命名为pMCO-AOXα-LipA。利用Sal Ⅰ对该质粒进行线性化处理及乙醇沉淀,然后电击转化至毕赤酵母GS115感受态细胞中。在YPGZ平板上筛选阳性转化子,将其命名为1-α-LipA。同时将空载载体pMCO-AOXα转化至毕赤酵母GS115感受态细胞以用作阴性对照(NC)。

1.4 摇瓶发酵及目的蛋白检测

挑取阳性转化子到含有20 mL YPG的100 mL摇瓶中,29 ℃、200 r/min培养24 h至稳定期。离心收集菌体,用等体积的BMMY液体培养基重悬,25 ℃,200 r/min诱导96 h(每隔24 h补加150 μL无水甲醇)。发酵结束后离心分离上清液。使用Endo Hf对发酵液上清进行去糖基化处理,按照标准方法对原始发酵液上清及去糖基化处理的发酵液上清进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)检测。

1.5 目的蛋白酶学性质检测

对发酵液上清进行亲和层析纯化,透析去除咪唑后得到纯化蛋白,根据《脂肪酶制剂》(GB/T 23535—2009)中方法进行酶活力检测。
将酶液稀释到最适倍数后,置于37 ℃、不同pH下处理,pH 4.0~8.0使用柠檬酸-磷酸缓冲液、pH 7.0~9.0使用Tris-HCl缓冲液、pH 9.0~12.0使用甘氨酸-NaOH缓冲液,通过测定酶活力确定最适pH。将稀释后的酶液在最适pH下分别置于20、30、40、50、60、70 ℃进行处理,通过测定酶活力确定最适温度。取适量的重组LipA加入到不同pH的缓冲液体系中,4 ℃条件下孵育24 h,加入至测活体系检测重组LipA剩余的活力,以未处理的酶液为对照测试pH稳定性。使用最适pH对应的缓冲液将酶液稀释,于70和80 ℃条件下分别处理3、5、10、15、20、30、60、90 min,然后在37 ℃下测定酶活力,以未处理的酶液为对照测试温度稳定性。将稀释后的酶液置于最适温度、最适pH环境中并添加终浓度为10 mmol/L的KCl、MgCl2、MnCl2、NiCl2、CuCl2、CaCl2、FeCl2、FeCl3或ZnCl2溶液,以等量的缓冲液为对照,评价不同金属离子对酶活力的影响。

1.6 多拷贝酵母表达载体构建及产量验证

由于Spe Ⅰ(识别ACTAGT序列)和Xba Ⅰ(识别TCTAGA序列)可产生相同的黏性末端(CTAG),二者被称为同尾酶。对重组质粒pMCO-AOXα-LipA进行Xba Ⅰ单酶切,回收分子质量为10.1 kb的载体片段;接着使用CIAP对该片段进行脱磷处理,以防止该片段的Xba Ⅰ酶切末端发生自连。对重组质粒pMCO-AOXα-LipA进行Spe Ⅰ/Xba Ⅰ双酶切,回收2.4 kb目的基因表达盒片段。使用T4连接酶将上述DNA片段进行酶连,然后经转化、提质粒、电泳验证获得分子质量增大的、含有2拷贝目的基因表达盒的重组质粒,将其命名为pMCO-AOXα-2LipA。同理构建4拷贝重组质粒pMCO-AOXα-4LipA。将上述多拷贝质粒使用Spe Ⅰ和Xba Ⅰ处理并再次进行电泳验证,观察各DNA条带分子量变化。
将重组质粒pMCO-AOXα-2LipA、pMCO-AOXα-4LipA使用Sal Ⅰ处理后,电击转化入毕赤酵母感受态细胞GS115中,在YPGZ平板上筛选阳性转化子,将其命名为2-α-LipA、4-α-LipA。按照前面所述方法进行目的蛋白产量验证及酶活力测定。

1.7 分子伴侣表达质粒及其共表达酵母菌株的构建

根据上述菌株目的蛋白产量,选择产量最高的菌株接到BMMY培养基中进行培养。蘸取过夜培养的菌液在YPG平板进行划线,29 ℃培养3 d。挑取单菌落同时转接YPG与YPGZ平板,观察菌株的抗性丢失情况,选择抗生素敏感菌株制备感受态用于后续质粒整合。共筛选8种分子伴侣HAC1、SSA1、YDJ1、SNL1、PDI、BIP、LHS1、SSO1,均来自于毕赤酵母。PCR扩增模板为毕赤酵母基因组。所有基因的5'端含有EcoR Ⅰ位点,3'端含有Not Ⅰ位点。使用表1中的引物组合扩增目的基因,然后使用EcoR Ⅰ和Not Ⅰ对PCR产物进行双酶切并替换pMCO-AOX载体的等位区域,从而获得用于胞内表达分子伴侣的重组质粒。将8个重组质粒通过Sal Ⅰ线性化,经乙醇沉淀后电转到抗性消除的多拷贝酵母菌株中,以“2-α-LipA-分子伴侣”的格式进行命名(如2-α-LipA-HAC1)。按照上述方法进行摇瓶诱导及表达验证。
表1 分子伴侣扩增引物

Table 1 Primers utilized for molecular chaperone amplifications

引物名称Primer names 引物序列Primer sequence (5'—3')
SSA1-F ACGGAATTCATGCCAGCTGTCGGTATTGAT
SSA1-R GTCTAAGGGCGGCCGCTCAATCGACTTCCTCAACAGTTGGTCC
YDJ1-F ACGGAATTCATGGTTAGAGAAACAAAGTTATAT
YDJ1-R GTCTAAGGGCGGCCGCTCACTGAGAAGCACATTGGACACC
SNL1-F ACGGAATTCATGCTTGATTTATCCCCATTC
SNL1-R GTCTAAGGGCGGCCGCTCAAAGGTCTCCGAGAACAGCTTT
PDI-F ACGGAATTCATGCAATTCAACTGGAATATT
PDI-R GTCTAAGGGCGGCCGCTCAAAGCTCGTCGTGAGCGTCTGC
BIP-F ACGGAATTCATGCTGTCGTTAAAACCATCT
BIP-R GTCTAAGGGCGGCCGCTCACAACTCATCATGATCATAGTC
LHS1-F ACGGAATTCATGAGAACACAAAAGATAGTA
LHS1-R GTCTAAGGGCGGCCGCTCACAACTCATCATGGGATGTTTG
SSO1-F ACGGAATTCATGAGTAACCAGTATAATCCG
SSO1-R GTCTAAGGGCGGCCGCTCATCTTCCCCAGTTTCCGACACC
HAC1-F GGAATTCATGCCCGTAGATTCTTCTCATAAG
HAC1-R TAGTTTAGCGGCCGCCTATTCCTGGAAGAATACAAAGTCATTTAAATCAAATGCATTAG

引物中的EcoR Ⅰ和Not Ⅰ位点用下划线表示。

The EcoR Ⅰ and Not Ⅰ sites shown in the primers are underlined.

1.8 5 L发酵罐高密度发酵

依据文献[11]报道的方法进行高密度发酵操作。每隔24 h取样,发酵结束后依照1.5方法对发酵液原液进行酶活力测定;使用1×磷酸盐缓冲液(PBS)对发酵液原液进行10倍稀释,对发酵液原液及稀释液进行SDS-PAGE检测。

1.9 统计分析

每个表达试验重复3次,进行SDS-PAGE检测时将每个泳道的上样量统一调整至20 μL。酶活力采用SPSS 17.0统计学软件进行统计分析。P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 单拷贝表达载体及酵母菌株的构建

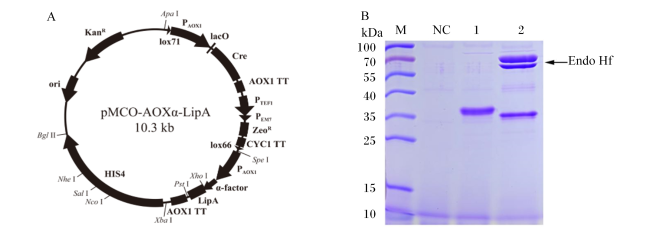
本研究在兼顾毕赤酵母密码子偏好及A/T含量优化(避免出现连续8个以上的A/T)的基础上将LipA进行全基因合成,获得重组质粒pMCO-AOXα-LipA(图1-A)。将其转入毕赤酵母GS115菌株,筛选到的阳性转化子,命名为1-α-LipA。对摇瓶培养的发酵液上清进行SDS-PAGE检测,结果显示目的蛋白大小为37 kDa(图1-B,泳道1)。鉴于其理论分子质量为35 kDa,重组蛋白的糖基化状态需要被进一步验证。使用去糖基化酶Endo Hf(图1-B,泳道2,70 kDa)处理目的蛋白,结果显示目的蛋白的分子质量降低,形成1条35 kDa左右较为单一的蛋白条带(图1-B,泳道2)。以上结果表明分泌表达的LipA以糖基化的形式存在于毕赤酵母发酵液上清中。
图1 重组质粒图谱及重组LipA的糖基化分析

A:pMCO-AOXα-LipA质粒图谱;B:重组LipA的SDS-PAGE图。

泳道M:蛋白质分子量标准;泳道NC:阴性对照;泳道1:1-α-LipA;泳道2:Endo Hf处理后的1-α-LipA。

Fig.1 Map of recombinant plasmid and glycosylation analysis of recombinant LipA

A: plasmid map of pMCO-AOXα-LipA; B: SDS-PAGE diagram of recombinant LipA.

Lane M: protein molecular weight marker; lane NC: negative control; lane 1: 1-α-LipA; lane 2: Endo Hf-treated 1-α-LipA.

2.2 LipA的酶学性质

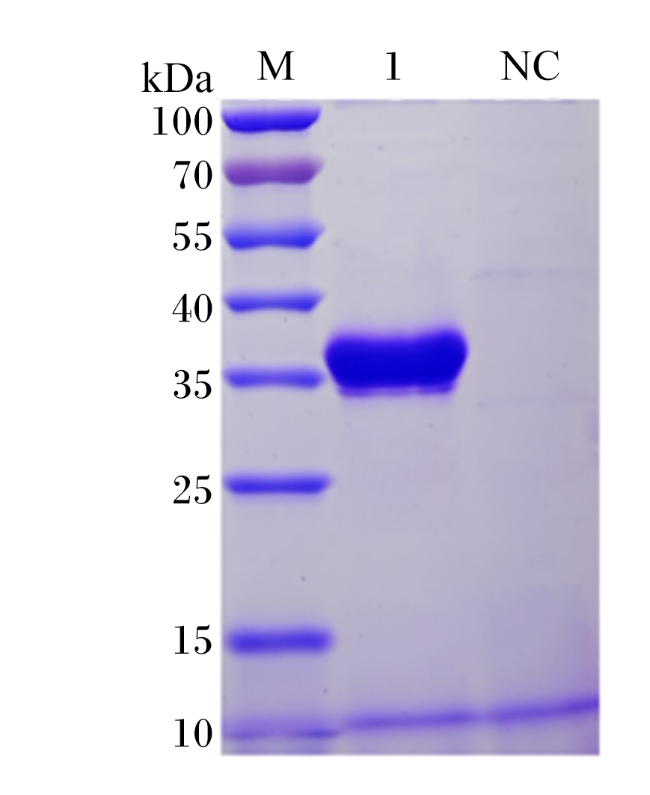
利用亲和层析对LipA进行纯化,结果如图2所示,纯化后的LipA在SDS-PAGE图上显示为特异、单一的蛋白条带,其纯度及浓度较高,可以进行后续酶学性质检测。
图2 纯化后LipA的SDS-PAGE图

泳道M:蛋白质分子质量标准;泳道1:纯化后LipA;泳道NC:阴性对照。

Fig.2 SDS-PAGE diagram of purified LipA

Lane M: protein molecular weight marker; lane 1: purified LipA; NC: negative control.

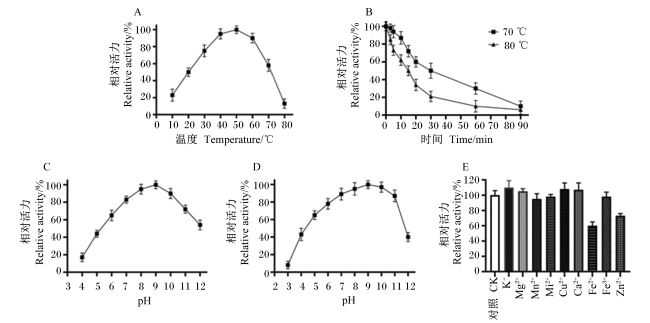
图3所示,LipA的最适pH为9,属于碱性脂肪酶,最适温度为50 ℃;LipA在pH 7~11区间较为稳定,相对活力维持在80%左右;经过70 ℃处理30 min后,其相对活力还在50%以上,证明温度稳定性较好;而金属离子测定结果显示,K+、Mg2+、Cu2+、Ca2+对LipA的活力有微弱的提高作用,相对活力提高了7%~10%不等;Mn2+、Ni2+、Fe3+对LipA的活力有微弱的抑制作用,其相对活力均保持在90%以上;而Fe2+、Zn2+对LipA的活力有较强抑制作用。
图3 LipA的酶学性质

A:最适温度;B:温度稳定性;C:最适pH;D:pH稳定性;E:金属离子的影响。

Fig.3 Enzymatic properties of LipA

A: optimal temperature; B: temperature stability; C: optimal pH; D: pH stability; E: effects of metal ions.

2.3 多拷贝酵母表达载体的构建

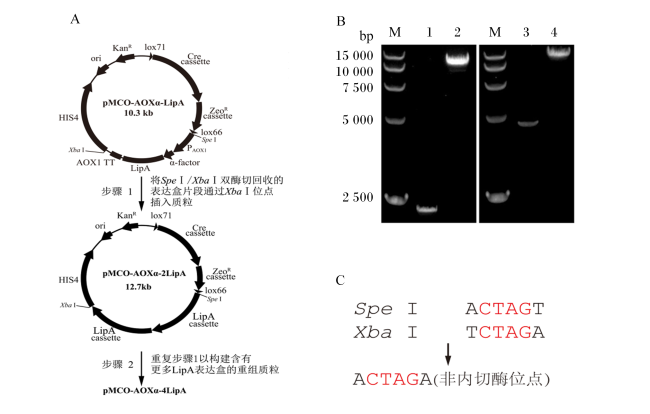
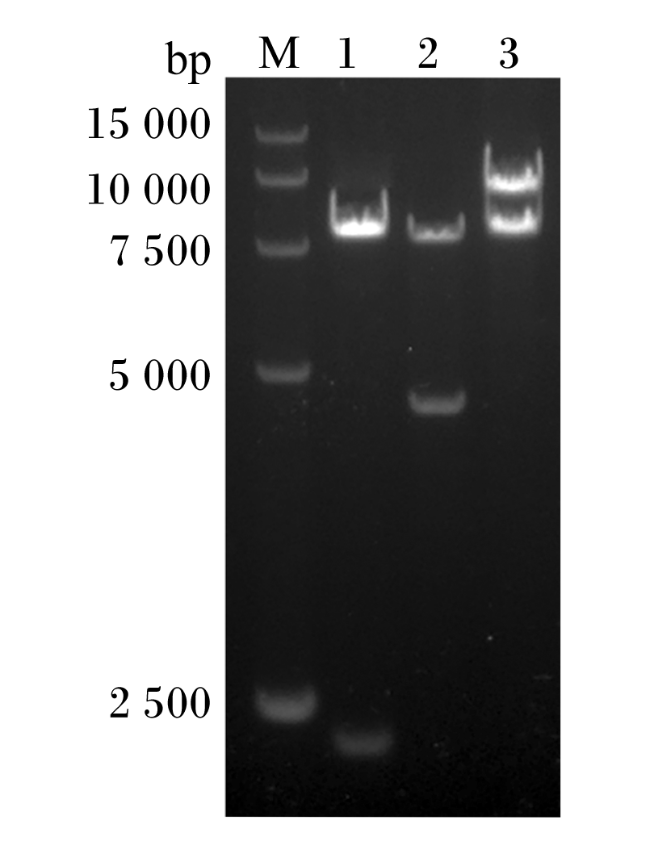
多拷贝质粒构建示意图见图4-A。首先,利用Spe Ⅰ和Xba Ⅰ对pMCO-AOXα-LipA进行双酶切,回收2.4 kb目的基因表达盒片段(图4-B,泳道1);利用Xba Ⅰ对pMCO-AOXα-LipA进行单酶切并进行脱磷处理,回收10.1 kb载体片段(图4-B,泳道2);将上述二者酶连后获得2拷贝质粒pMCO-AOXα-2LipA。同理,从pMCO-AOXα-2LipA出发制备Spe Ⅰ/Xba Ⅰ和Xba Ⅰ酶切产物(图4-B,泳道3和4),从而构建4拷贝质粒pMCO-AOXα-4LipA。对含有1、2、4拷贝目的基因的质粒进行Spe Ⅰ/Xba Ⅰ双酶切验证,图5的电泳结果显示不同质粒的框架部分分子质量保持一致(约7.5 kb),1、2、4拷贝质粒表达盒大小依次为2.4、4.8、9.6 kb,分子质量依次增大。该结果证明多拷贝酵母表达载体构建成功。
图4 多拷贝质粒构建

A:多拷贝质粒构建示意图;B:重组质粒胶回收片段的电泳验证;C:同尾酶序列展示。

泳道M:核酸分子质量标准;泳道1:Spe Ⅰ/Xba Ⅰ处理后的pMCO-AOXα-LipA;泳道2:Xba Ⅰ处理后的pMCO-AOXα-LipA;泳道3:Spe Ⅰ/Xba Ⅰ处理后的pMCO-AOXα-2LipA;泳道4:Xba Ⅰ处理后的pMCO-AOXα-2LipA。

Fig.4 Construction of multi-copy plasmids

A: schematic diagram of the construction of multi-copy plasmids; B: electrophoretic verification of digested fragments of recombinant plasmids; C: exhibition of isocaudarner sequence.

Lane M: nucleic acid molecular weight marker; lane 1: Spe Ⅰ/Xba Ⅰ digested pMCO-AOXα-LipA; lane 2: Xba Ⅰ digested pMCO-AOXα-LipA; lane 3: Spe Ⅰ/Xba Ⅰ digested pMCO-AOXα-2LipA; lane 4: Xba Ⅰ digested pMCO-AOXα-2LipA.

图5 多拷贝质粒的Spe Ⅰ/Xba Ⅰ双酶切产物

泳道M:核酸分子质量标准;泳道1:pMCO-AOXα-LipA;泳道2:pMCO-AOXα-2LipA;泳道3:pMCO-AOXα-4LipA。

Fig.5 Double enzymes Spe Ⅰ/Xba Ⅰ digest products of recombinant plasmids

Lane M: nucleic acid molecular weight marker; lane 1: pMCO-AOXα-LipA; lane 2: pMCO-AOXα-2LipA; lane 3: pMCO-AOXα-4LipA.

2.4 多拷贝酵母表达菌株的构建及验证

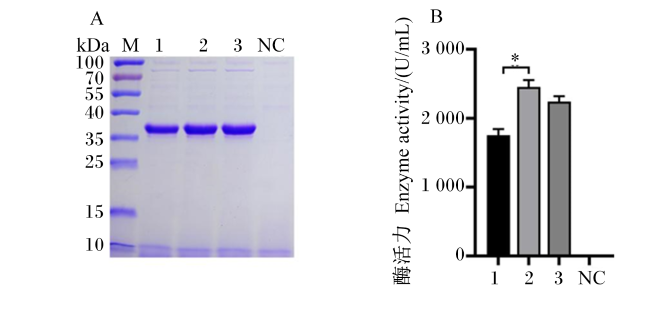
将上述质粒电转至毕赤酵母GS115感受态细胞,将酵母转化子进行摇瓶诱导,检测其发酵液上清中的目的蛋白产量。如图6所示,目的蛋白产量随LipA基因拷贝数的提高而增加。1-α-LipA菌株的酶活力为1 753.69 U/mL,2-α-LipA菌株的目的蛋白产量最高,酶活力可以达到2 453.63 U/mL,与1-α-LipA菌株相比提高了39.9%(P<0.05);4-α-LipA菌株的酶活力为2 240.97 U/mL,相较1-α-LipA菌株提高了27.7%(P>0.05),但低于2-α-LipA菌株(P>0.05)。
图6 基因拷贝数对LipA产量的影响

A:酵母转化体上清液的SDS-PAGE图;B:酶活力分析。“*”表示差异显著(P<0.05)。

泳道M:蛋白质分子质量标准;泳道1:1-α-LipA;泳道2:2-α-LipA;泳道3:4-α-LipA;泳道NC:阴性对照。

Fig.6 Effects of gene copy number on LipA production

A: SDS-PAGE diagram of supernatants of yeast transformants; B: enzyme activity analysis. “*” indicates significant difference (P<0.05).

Lane M: protein molecular weight marker; lane 1: 1-α-LipA; lane 2: 2-α-LipA; lane 3: 4-α-LipA; lane NC: negative control.

2.5 共表达分子伴侣酵母菌株的构建与验证

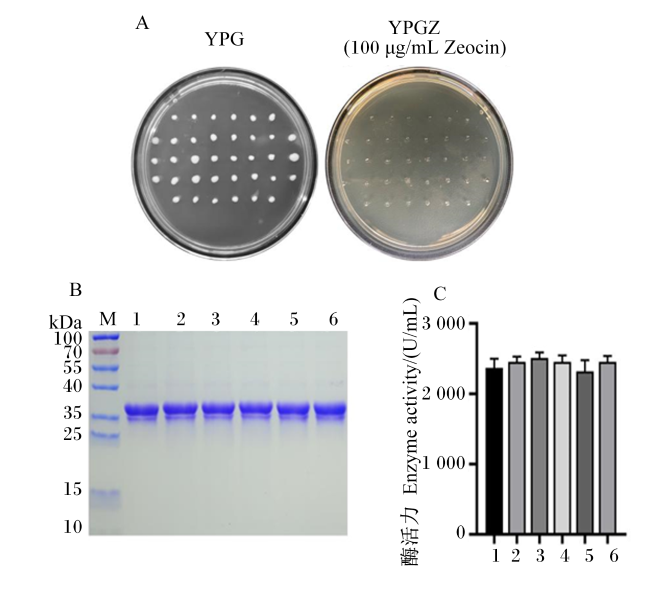
鉴于2个拷贝菌株2-α-LipA的LipA产量最高,将其重新接种至BMMY培养基中诱导过夜,平板划线培养后检测单克隆的抗性丢失情况。如图7所示,所有酵母菌株在YPG平板上生长,在YPGZ平板上没有生长,证明酵母细胞发生基因重排并丢失博莱霉素抗性基因。随机挑选若干单克隆进行摇瓶培养并检测酶活力,结果显示其LipA产量保持一致。因此选择泳道3对应菌株制备感受态细胞。
图7 菌株2-α-LipA的抗性消除及博莱霉素敏感菌株的产量鉴定

A:抗性消除结果;B:博莱霉素敏感菌株的SDS-PAGE图;C:博莱霉素敏感菌株的酶活力分析。

泳道M:蛋白质分子质量标准;泳道1:2-α-LipA;泳道2~6:2-α-LipA抗性敏感菌株。

Fig.7 Resistance elimination of strain 2-α-LipA and identification of LipA production in bleomycin-sensitive strains

A: resistance elimination result; B: SDS-PAGE diagram of bleomycin-sensitive strains; C: enzyme activity analysis of bleomycin-sensitive strains.

Lane M: protein molecular weight marker; lane 1: 2-α-LipA; lanes 2 to 6: resistance-sensitive 2-α-LipA strains.

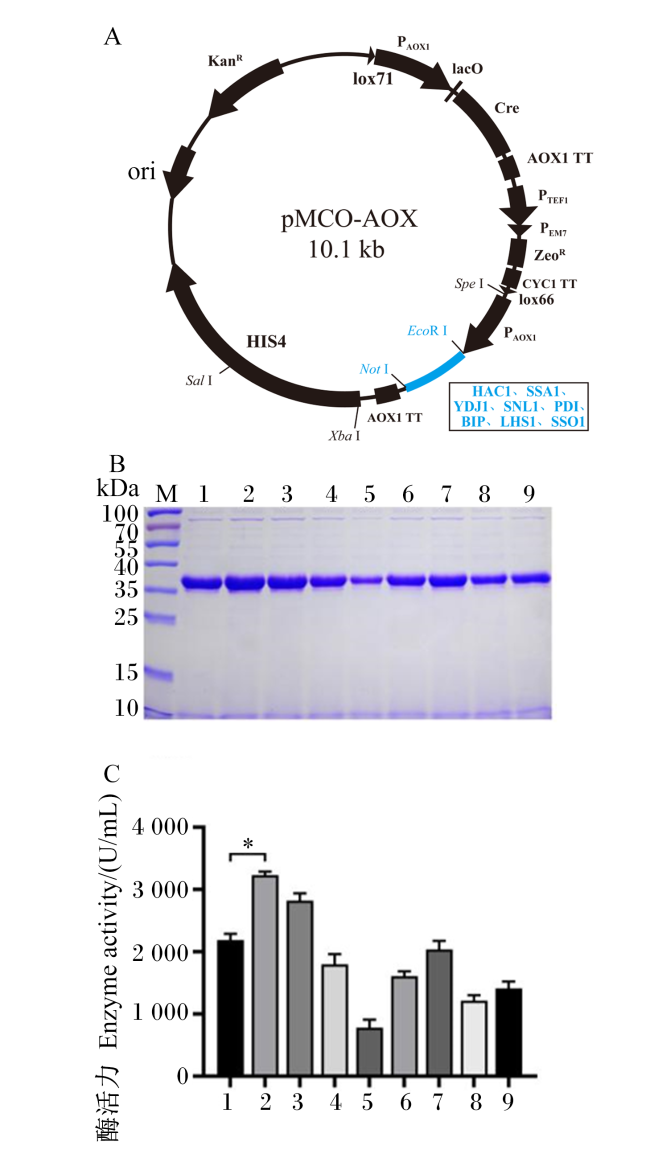
图8-A所示,将分子伴侣基因通过EcoR Ⅰ和Not Ⅰ连接至pMCO-AOX载体,从而获得8种分子伴侣共表达质粒。将其转入上述感受态细胞,并在YPGZ平板上筛选阳性转化子。对阳性转化子进行摇瓶诱导并检测目的蛋白产量。如图8-B图8-C所示,不同分子伴侣对目的蛋白产量的影响存在差异,共表达HAC1可使LipA产量达到3 233.2 U/mL,相较2-α-LipA提高了47.6%(P<0.05);共表达SSA1后酶活力为2 822.85 U/mL,与2-α-LipA相比提高了28.9%;共表达BIP后酶活力为2 038.88 U/mL,与2-α-LipA相比有少许下降;其他分子伴侣蛋白对比2-α-LipA均发生了明显下降。
图8 共表达分子伴侣对LipA产量的影响

A:分子伴侣重组质粒图谱;B:酵母转化体上清液的SDS-PAGE图;C:酶活力分析。“*”表示差异显著(P<0.05)。

泳道M:蛋白质分子质量标准;泳道1:2-α-LipA;泳道2:2-α-LipA-HAC1;泳道3:2-α-LipA-SSA1;泳道4:2-α-LipA-YDJ1;泳道5:2-α-LipA-SNL1;泳道6:2-α-LipA-PDI;泳道7:2-α-LipA-BIP;泳道8:2-α-LipA-LHS1;泳道9:2-α-LipA-SSO1。

Fig.8 Effects of co-expressing molecular chaperones on LipA production

A: map of molecular chaperone recombinant plasmids; B: SDS-PAGE diagram of supernatants of yeast transformants; C: enzyme activity analysis. “*” indicates significant difference (P<0.05).

Lane M: protein molecular weight marker; lane 1: 2-α-LipA; lane 2: 2-α-LipA-HAC1; lane 3: 2-α-LipA-SSA1; lane 4: 2-α-LipA-YDJ1; lane 5: 2-α-LipA-SNL1; lane 6: 2-α-LipA-PDI; lane 7: 2-α-LipA-BIP; lane 8: 2-α-LipA-LHS1; lane 9: 2-α-LipA-SSO1.

2.6 5 L发酵罐高密度发酵

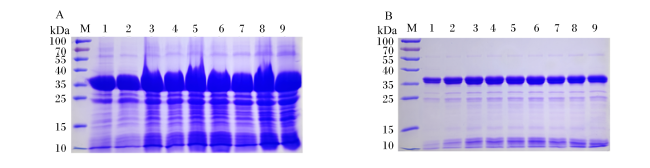
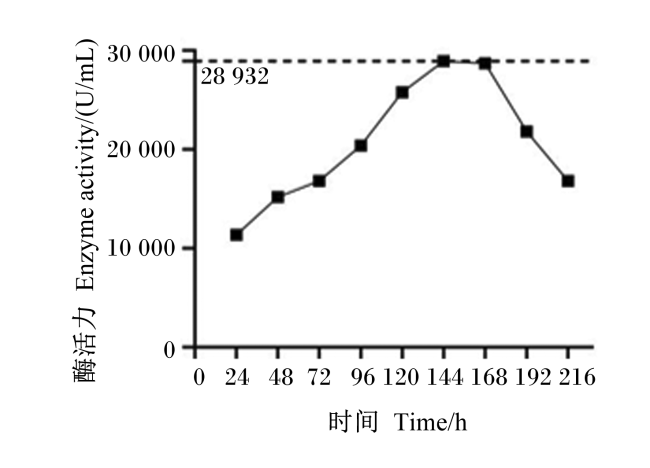
高密度发酵可通过提高菌体密度、改善诱导连续性等方面进一步提高目的蛋白产量。按照前述方法对2-α-LipA-HAC1菌株进行5 L水平的高密度发酵,间隔24 h取样。如图9所示,随着诱导时间的增加,LipA的产量逐步提高。当诱导时间达到144 h时,酶活力最高,达到28 932 U/mL(图10)。目前已报道以毕赤酵母为表达宿主的疏棉状嗜热丝孢菌脂肪酶的活力范围为610~29 000 U/mL[11-16],本研究异源表达的LipA已达到较理想水平。
图9 2-α-LipA-HAC1菌株高密度发酵

A:高密度发酵原始上清液的SDS-PAGE图;B:高密度发酵中10倍稀释上清液的SDS-PAGE图。

泳道M:蛋白质标准分子质量;泳道1:24 h;泳道2:48 h;泳道3:72 h;泳道4:96 h;泳道5:120 h;泳道6:144 h;泳道7:168 h;泳道8:192 h;泳道9:218 h。

Fig.9 High density fermentation of 2-α-LipA-HAC1 strain

A:SDS-PAGE diagram of original supernatants in high density fermentation; B: SDS-PAGE diagram of 10-fold diluted supernatants in high density fermentation.

Lane M: protein molecular weight marker; lane 1: 24 h; lane 2: 48 h; lane 3: 72 h; lane 4: 96 h; lane 5: 120 h; lane 6: 144 h; lane 7: 168 h; lane 8: 192 h; lane 9: 218 h.

图10 高密度发酵酶活力检测

Fig.10 Enzyme activity assay in high density fermentation

3 讨论

脂肪酶作为饲料添加剂,禽畜食用后可以补充内源性消化酶,帮助其更好吸收脂溶性维生素及其他维生素,避免消化不良,减少腹泻风险,提高禽畜健康水平[17];更直观的优势是,添加脂肪酶可提高饲料风味及适口性,提高饲料利用率,从而提高禽畜的日增重,增加企业的经济效益[18]。因此,提高脂肪酶产量是满足工业化生产需求的关键。疏棉状嗜热丝孢菌脂肪酶LipA具有较好的稳定性及活力,但该真菌最适生长温度较高,LipA产量有限且发酵液中存在多种杂蛋白。因此,本试验对疏棉状嗜热丝孢菌脂肪酶LipA进行异源表达,期望提高其产量以推动其实现工业化应用。
在毕赤酵母中提升外源蛋白产量的策略涉及基因水平的优化、蛋白加工的改善及发酵工艺的调整[19]。本研究的重点是通过增加基因拷贝数和共表达分子伴侣来提高目的蛋白表达水平。研究发现,当基因拷贝数增加至2拷贝时目的蛋白产量达到峰值,而达到4拷贝的目的蛋白产量反下降。类似的现象见于Zhu等[20]的报道,即构建一系列表达猪胰岛素前体(PIP)的多拷贝菌株,其中12拷贝菌株表达量最高,更高或更低的拷贝数导致PIP产量降低。这证明基因剂量和蛋白产量呈现一种钟形曲线关系,钟形曲线最高点对应拷贝数即为最佳拷贝数。在构建多拷贝酵母菌株的过程中,目的蛋白的合成过量会对细胞造成显著的胁迫,这可能干扰蛋白质的正常折叠与运输。为缓解这一压力,常常采用共表达分子伴侣的策略。本研究的共表达分子伴侣结果显示,HAC1和SSA1的共表达对提高LipA的产量具有积极作用,而其他分子伴侣则未能展现类似效果。HAC1作为转录调控因子,主要是通过促进“未折叠蛋白反应”下游靶基因的表达来改善蛋白折叠和运输[21]。也就是说,共表达HAC1能够增强一系列下游靶基因的表达,因此具有“一举多得”的效果。HAC1除对LipA有效外,还被报道对几丁质酶[22]、弹性蛋白酶[23]、葡聚糖酶[24]等多种毕赤酵母异源表达蛋白有效,HAC1可能用作毕赤酵母异源表达通用的分子伴侣。
在后续研究中若要进一步增加产量,相关优化可从如下方面进行:在基因层面,目前本研究中目的基因表达质粒的插入位点为His4位点。由于核糖体DNA(rDNA)的转录活跃度较高,选择将重组质粒插入rDNA的非编码区或有助于进一步提高产量[25]。同时,将分子伴侣表达质粒插入毕赤酵母基因组的其他位置或可避免目的基因和分子伴侣的表达之间发生干扰[26]。在信号肽方面,本研究采用α-factor信号肽,而目前已有研究指出更换其他不同信号肽如α-factor Δ57-70[27]、HL28融合信号肽[28]、nSB信号肽[29]、Dse4信号肽[30]及Msb2和Gas1信号肽[31]都可使目的蛋白产量继续提高。在分子伴侣方面,还可以尝试其他类型分子伴侣或分子伴侣组合的共表达[32]。在发酵工艺方面,山梨醇作为毕赤酵母非抑制性碳源,在发酵过程中添加该物质可增加能量供给,降低氧气消耗并改善产热[33]。已有研究发现,在毕赤酵母分批补料时成比例添加山梨醇比单独补加甲醇产率提高了62.5%[34]。借助以上优化策略或有可能进一步提高LipA产量。

4 结论

综上所述,本研究成功利用毕赤酵母对疏棉状嗜热丝孢菌脂肪酶LipA进行了异源表达,并通过密码子优化、基因剂量优化、分子伴侣共表达以及高密度发酵等策略将LipA产量提高至理想水平。
[1]
刘德海, 解复红, 贾彬, 等. 脂肪酶及其在饲料工业中的应用研究进展[J]. 河南科学, 2012, 30(7):878-881.

LIU D H, XIE F H, JIA B, et al. Research progress of lipase and its application in feed industry[J]. Henan Sciences, 2012, 30(7):878-881. (in Chinese)

[2]
DIERICK N A, DECUYPERE J A, MOLLY K, et al. The combined use of triacylglycerols (TAGs) containing medium chain fatty acids (MCFAs) and exogenous lipolytic enzymes as an alternative to nutritional antibiotics in piglet nutrition:Ⅱ.In vivo release of MCFAs in gastric cannulated and slaughtered piglets by endogenous and exogenous lipases:effects on the luminal gut flora and growth performance[J]. Livestock Production Science, 2002, 76(1/2):1-16.

[3]
TAN S H, THOMAS D V, CAMDEN B J, et al. Improving the nutritive value of full-fat rice bran for broiler chickens using a lipase-based enzyme preparation[J]. Asian-Australasian Journal of Animal Sciences, 2000, 13(3):360-368.

[4]
YANG Y S, KUMRUNGSEE T, KATO N, et al. Supplemental Aspergillus lipase and protease preparations display powerful bifidogenic effects and modulate the gut microbiota community of rats[J]. Fermentation, 2021, 7(4):294.

[5]
KARBALAEI M, REZAEE S A, FARSIANI H. Pichia pastoris: a highly successful expression system for optimal synthesis of heterologous proteins[J]. Journal of Cellular Physiology, 2020, 235(9):5867-5881.

DOI PMID

[6]
LI D, ZHANG B, LI S T, et al. A novel vector for construction of markerless multicopy overexpression transformants in Pichia pastoris[J]. Frontiers in Microbiology, 2017, 8:1698.

[7]
LI D, WU J C, CHEN J, et al. Optimized expression of classical swine fever virus E2 protein via combined strategy in Pichia pastoris[J]. Protein Expression and Purification, 2020, 167:105527.

[8]
李丁, 李炳坤, 武奇, 等. 猪圆环病毒3型Cap蛋白在毕赤酵母中的优化表达[J]. 畜牧与兽医, 2022, 54(12):80-86.

LI D, LI B K, WU Q, et al. Optimized expression of porcine circovirus type 3 Cap protein in Pichia pastoris[J]. Animal Husbandry & Veterinary Medicine, 2022, 54(12):80-86. (in Chinese)

[9]
李丁, 李兰, 安允飞, 等. 联合策略优化犬α干扰素的酵母表达[J]. 中国生物工程杂志, 2022, 42(增刊1):88-95.

LI D, LI L, AN Y F, et al. Optimized yeast expression of canine interferon-α using a combined strategy[J]. China Biotechnology, 2022,42 (Suppl.1):88-95. (in Chinese)

[10]
ZHENG Y, LI B, ZHAO S, et al. A universal strategy for the efficient expression of nanobodies in Pichia pastoris[J]. Fermentation, 2024, 10(1):37.

[11]
蔡海莺, TRISH D, 张婷, 等. 毕赤酵母重组菌高密度发酵产疏棉状嗜热丝孢菌脂肪酶[J]. 中国食品学报, 2018, 18(7):99-107.

CAI H Y, TRISH D, ZHANG T, et al. Producing of Thermomyces lanuginosus lipase using high density fermentation of recombinant Pichia pastoris[J]. Journal of Chinese Institute of Food Science and Technology, 2018, 18(7):99-107. (in Chinese)

[12]
尤逊, 杨江科, 陈祺琛, 等. 脂肪酶TLL在毕赤酵母中表达及催化制备生物柴油初探[J]. 生物技术, 2018, 28(3):278-285.

YOU X, YANG J K, CHEN Q C, et al. High-level expression of Thermomyces lanuginosus lipase in Pichia pastoris and its application in biodiesel preparation[J]. Biotechnology, 2018, 28(3):278-285. (in Chinese)

[13]
XU R, CHEN Z R, CHENG Y Y, et al. Multiple strategies for high-efficiency expression of Thermomyces lanuginosus lipase in Pichia pastoris and production of biodiesel in solvent-free system[J]. Fuel, 2023, 333:126246.

[14]
王建荣, 刘丹妮, 夏雨, 等. 密码子优化及透明颤菌血红蛋白共表达提高耐热脂肪酶在毕赤酵母的表达[J]. 食品科学, 2016, 37(19):135-140.

DOI

WANG J R, LIU D N, XIA Y, et al. Enhanced production of Thermomyces lanuginosus lipase in Pichia pastoris by codon optimization and co-expression of Vitreoscilla hemoglobin[J]. Food Science, 2016, 37(19):135-140. (in Chinese)

[15]
FANG Z G, XU L, PAN D J, et al. Enhanced production of Thermomyces lanuginosus lipase in Pichia pastoris via genetic and fermentation strategies[J]. Journal of Industrial Microbiology & Biotechnology, 2014, 41(10):1541-1551.

[16]
魏子翔. 疏棉状嗜热丝孢菌脂肪酶的理性设计及高效表达研究[D]. 硕士学位论文. 武汉: 武汉轻工大学, 2021.

WEI Z X. Improving the activity and thermal stability of Thermomyces lanuginosus lipase by rational design[D]. Master’s Thesis. Wuhan: Wuhan Polytechnic University, 2021. (in Chinese)

[17]
AGUIEIRAS E C G, GRECO-DUARTE J, DE SOUZA C P, et al. Integrated process for a new sequential valorization of corn ethanol production by-products:production of fermented solid with lipase activity,ethyl esters,and animal feed[J]. Industrial Crops and Products, 2024, 209:118028.

[18]
RODRÍGUEZ-VIERA L, PERERA E, AGREDANO PILA I M, et al. True lipase activity and in vitro digestibility of potential lipid sources for the spiny lobster Panulirus argus feeds[J]. Aquaculture, 2022, 555:738191.

[19]
DAI W L, DONG H F, ZHANG Z K, et al. Enhancing the heterologous expression of a thermophilic endoglucanase and its cost-effective production in Pichia pastoris using multiple strategies[J]. International Journal of Molecular Sciences, 2023, 24(19):15017.

[20]
ZHU T, GUO M, TANG Z, et al. Efficient generation of multi-copy strains for optimizing secretory expression of porcine insulin precursor in yeast Pichia pastoris[J]. Journal of Applied Microbiology, 2009, 107(3):954-963.

[21]
GUERFAL M, RYCKAERT S, JACOBS P P, et al. The HAC1 gene from Pichia pastoris:characterization and effect of its overexpression on the production of secreted,surface displayed and membrane proteins[J]. Microbial Cell Factories, 2010, 9:49.

[22]
SONG W, ZHANG N, YANG M, et al. Multiple strategies to improve the yield of chitinase a from Bacillus licheniformis in Pichia pastoris to obtain plant growth enhancer and GlcNAc[J]. Microbial Cell Factories, 2020, 19(1):181.

[23]
HAN M H, WANG W X, ZHOU J L, et al. Activation of the unfolded protein response via co-expression of the HAC1i gene enhances expression of recombinant elastase in pichia pastoris[J]. Biotechnology and Bioprocess Engineering, 2020, 25(2):302-307.

[24]
LI L, HUANG C, ZHAO F G, et al. Improved production and characterization of Volvariella volvacea endoglucanase 1 expressed in Pichia pastoris[J]. Protein Expression and Purification, 2018, 152:107-113.

[25]
WU Z W, WANG Q M, LIU X Z, et al. Intragenomic polymorphism and intergenomic recombination in the ribosomal RNA genes of strains belonging to a yeast species Pichia membranifaciens[J]. Mycology, 2016, 7(3):102-111.

[26]
WU X Y, CAI P, YAO L, et al. Genetic tools for metabolic engineering of Pichia pastoris[J]. Engineering Microbiology, 2023, 3(4):100094.

[27]
LIN-CEREGHINO G P, STARK C M, KIM D, et al. The effect of α-mating factor secretion signal mutations on recombinant protein expression in Pichia pastoris[J]. Gene, 2013, 519(2):311-317.

[28]
ZHANG Y F, HUANG H, YAO X H, et al. High-yield secretory production of stable,active trypsin through engineering of the N-terminal peptide and self-degradation sites in Pichia pastoris[J]. Bioresource Technology, 2018, 247:81-87.

[29]
VADHANA A K P, SAMUEL P, BERIN R M, et al. Improved secretion of Candida antarctica lipase B with its native signal peptide in Pichia pastoris[J]. Enzyme and Microbial Technology, 2013, 52(3):177-183.

[30]
LIANG S L, LI C, YE Y R, et al. Endogenous signal peptides efficiently mediate the secretion of recombinant proteins in Pichia pastoris[J]. Biotechnology Letters, 2013, 35(1):97-105.

[31]
DUAN G D, DING L M, WEI D S, et al. Screening endogenous signal peptides and protein folding factors to promote the secretory expression of heterologous proteins in Pichia pastoris[J]. Journal of Biotechnology, 2019, 306:193-202.

[32]
ZAHRL R J, PRIELHOFER R, ATA Ö, et al. Pushing and pulling proteins into the yeast secretory pathway enhances recombinant protein secretion[J]. Metabolic Engineering, 2022, 74:36-48.

DOI PMID

[33]
JUNGO C, SCHENK J, PASQUIER M, et al. A quantitative analysis of the benefits of mixed feeds of sorbitol and methanol for the production of recombinant avidin with Pichia pastoris[J]. Journal of Biotechnology, 2007, 131(1):57-66.

[34]
CELIK E, CALIK P, OLIVER S G. Fed-batch methanol feeding strategy for recombinant protein production by Pichia pastoris in the presence of co-substrate sorbitol[J]. Yeast (Chichester,England), 2009, 26(9):473-484.

文章导航

/