综述

细胞焦亡在动物肠道炎症损伤中的作用机制研究

  • 陈纪薇 , 1 ,
  • 王哲奇 2 ,
  • 高爱琴 1 ,
  • 徐元庆 , 1, *
展开
  • 1 内蒙古农业大学动物科学学院,呼和浩特 010018
  • 2 中国农业科学院草原研究所,呼和浩特 010010
*徐元庆,讲师,E-mail:

陈纪薇(2000—),女,河北张家口人,硕士研究生,从事动物环境与营养研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-08-22

  网络出版日期: 2025-03-13

基金资助

内蒙古自治区自然科学基金(2022QN03005)

内蒙古自治区自然科学基金(2023LHMS03064)

内蒙古自治区直属高校基本科研业务费项目(BR220135)

内蒙古自治区直属高校基本科研业务费项目(BR22-13-13)

内蒙古农业大学动物科学学院高水平成果培育专项(QT202214)

Study on Mechanism of Pyroptosis in Intestinal Inflammatory Injury in Animals

  • CHEN Jiwei , 1 ,
  • WANG Zheqi 2 ,
  • GAO Aiqin 1 ,
  • XU Yuanqing , 1, *
Expand
  • 1 College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
  • 2 Institute of Grassland Research of Chinese Academy of Agricultural Sciences, Hohhot 010010, China
*lecturer, E-mail:

Received date: 2024-08-22

  Online published: 2025-03-13

摘要

肠道是动物机体主要的免疫器官之一,肠道炎症常伴随肠黏膜损伤、肠壁通透性增强和腹泻等症状,且肠道炎症可能由细胞焦亡介导。细胞焦亡是由焦孔素(gasdermin)蛋白介导,以细胞膜孔形成、膜破裂、细胞肿胀和细胞内容物释放为主要特征的程序性细胞死亡。当机体肠道受到感染性和非感染性因素的干扰时,过度的细胞焦亡可能会引起肠道炎症,导致一系列疾病的发生。本文系统地总结了细胞焦亡的信号通路及在动物肠道炎症损伤中的作用,以期为后续肠道炎症的治疗提供思路。

本文引用格式

陈纪薇 , 王哲奇 , 高爱琴 , 徐元庆 . 细胞焦亡在动物肠道炎症损伤中的作用机制研究[J]. 动物营养学报, 2025 , 37(3) : 1480 -1488 . DOI: 10.12418/CJAN2025.127

Abstract

The intestine is one of the primary immune organs in animal body. Intestinal inflammation is often accompanied by symptoms such as mucosal damage, increased intestinal wall permeability and diarrhea, and may be mediated by pyroptosis. Pyroptosis is a form of programmed cell death mediated by gasdermin protein and characterized by cell membrane pore formation, membrane rupture, cell swelling and release of cell contents. When the organism,s intestinal tract is disturbed by infectious and non-infectious factors, excessive cellular pyroptosis may cause intestinal inflammation, leading to a variety of diseases. This review summarizes the signaling pathways of pyroptosis and its role in intestinal inflammatory injuries in animals aiming to provide ideas for the treatment of intestinal inflammation.

细胞增殖和细胞死亡之间的稳态平衡维持着动物机体的正常运转,在动物体内多种细胞的生理病理过程中起着重要作用。细胞死亡通常分为非程序性细胞死亡和程序性细胞死亡(programmed cell death,PCD)。Cookson等[1]在沙门氏菌诱导的细胞死亡中发现与细胞凋亡不同的特征,首次提出了细胞焦亡的概念。细胞焦亡是一种炎性PCD,其主要特征为细胞膜孔形成、膜破裂、细胞肿胀和细胞内容物释放[2]。而执行细胞焦亡的焦孔素(gasdermin,GSDM)蛋白在肠道中高度表达,并调控细胞焦亡参与细胞代谢,在肠道炎症的发生和发展中发挥重要作用[3-4]
近年来,肠道炎症严重影响动物健康及生长发育状况,但其发病机制仍在探索阶段。肠道屏障由肠道上皮细胞、肠道微生物群以及肠道黏液层组成,共同构成一个复杂的防护体系[5]。维持稳定的肠道屏障对于防止肠腔内物质和病原体进入机体内部环境引发炎症至关重要[6]。尽管病毒、病原菌或其他微生物和应激反应造成的肠道炎症发生机制各不相同,但相同点是诱导细胞焦亡,并造成过度的炎性反应,对肠道造成严重损伤。因此,本文从细胞焦亡的角度出发,分析细胞焦亡的激活机制及其调控肠道炎症的最新进展,以期为防治动物由内、外刺激引起的炎症损伤提供参考。

1 细胞焦亡

细胞死亡是维持动物机体正常生理代谢的重要生理功能。但是,当发生感染、慢性炎症和组织损伤时,机体内细胞的代谢平衡被打破,细胞通过“自我调节”的方式调整免疫反应,从而改变死亡方式以应对周围环境的影响[7]。目前,探究较为清楚的细胞死亡方式主要包括:细胞凋亡、坏死性凋亡、细胞焦亡、自噬、铁死亡、铜死亡等。机体中,大部分的细胞死亡方式都是程序性细胞死亡途径。根据激活条件的不同,细胞的死亡方式和特点也会有所不同。细胞凋亡和坏死性凋亡的激活信号存在一定程度的重合,但坏死性凋亡是具有被动和主动促炎功能的调节性细胞坏死,能够导致细胞膜破裂,伴随大量内容物以及促炎细胞因子的释放,这一点与细胞焦亡类似[8-9]。而铁死亡是由细胞抗氧化系统的破坏引起的,其可能在促进不同器官的退行疾病中发挥着重要作用[10-12]。铜死亡是一种新型调节细胞死亡方式,目前发现其在人类细胞中的激活机制是依赖于线粒体和铜,通过铜与三羧酸循环的硫辛酰化组分结合而发生的[13]。自噬是一种自我降解的过程,当细胞受到应激时,溶酶体会降解细胞质物质,更新细胞和平衡机体内的能量,并且不具有凋亡、坏死性凋亡或焦亡的细胞形态学特征[14-15]。尽管不同的原因诱导了细胞死亡过程中的独特形态变化,但由于相关分子的多效性,激活细胞死亡途径的信号分子通常是相互关联的。例如,当细胞凋亡发生过多时,若吞噬细胞不能完全清除这些凋亡细胞,则会产生危险相关分子模式(damage-associated molecular patterns,DAMPs),从而引起细胞焦亡[15];肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)和干扰素-γ(interferon-γ,IFN-γ)或病原体相关分子模式(pathogen-associated molecular patterns,PAMPs)的组合甚至诱导一种称为“PAN凋亡”的混合形式的细胞死亡,同时激活细胞焦亡、细胞凋亡和坏死性凋亡[16]。综上所述,不同的细胞死亡方式具有不同的死亡激活途径,并在其特定情况下被激活。因此也拥有不同的细胞形态学特征(表1)。
表1 程序性细胞死亡类型和特点

Table 1 Types and characteristics of programmed cell death[13,17]

项目
Items
诱导因素
Induced factors
细胞形态
Cell morphology
细胞膜
Cell membrane
细胞器
Cell organelle
凋亡Apoptosis 生理条件基因调控 细胞皱缩变圆、体积变小 膜结构完整 完整
自噬Autophagy 营养缺乏或激素诱导 产生空泡 膜结构完整 自噬体吞噬,溶酶体消化
焦亡Pyroptosis 病理性刺激 细胞膨大变形 细胞膜破裂 变形、线粒体嵴减少或消失
坏死性凋亡Necroptosis 病理变化或剧烈损伤 细胞膨大变形 细胞膜破裂 变形或肿大
铁死亡Ferroptosis 活性氧、铁 细胞变小变圆 膜结构完整 线粒体皱缩、线粒体
嵴减少或消失
铜死亡Cuproptosis 活性氧、铜 细胞皱缩 细胞膜破裂 线粒体收缩、内质网损伤
细胞焦亡是一种重要的先天性免疫反应,可特异性拮抗感染和内源性危险信号[18-20]。正常情况下,细胞焦亡对建立肠道内稳态至关重要,但过度的焦亡会导致细胞因子过度产生和持续的炎症反应,导致组织损伤和器官功能受损[21]。细胞焦亡的激活途径分为炎性小体介导和非经典炎性小体介导。在这2种途径中,GSDM家族成员作为关键执行蛋白被上游半胱天冬蛋白酶(cysteinyl aspartate specific proteinase,Caspase)切割激活,最终诱导细胞焦亡的发生。Caspase可根据功能分为炎性Caspase和凋亡Caspase,并在不同条件下执行细胞焦亡程序。Caspase-1/4/5/11等炎性Caspase在先天免疫反应中扮演关键角色,它们通过激活焦亡反应来阻断入侵病原体的复制,并参与促炎细胞因子的成熟和释放过程[22]。Caspase-3/8属于凋亡Caspase,其在特定情况下通过裂解相应GSDM家族成员诱导发生焦亡[23-24]

1.1 炎性小体介导的细胞焦亡

细胞焦亡的经典途径是由炎性小体介导及Caspase-1激活所驱动的。炎性小体为一种多蛋白复合体,是调节炎症反应和协调宿主抗菌防御的多蛋白信号转导平台,在内源性损伤和外源性病原体(如胞质双链DNA、细菌感染、晶体和毒素)的炎症反应中起重要作用[25]。目前研究较多的炎性小体主要包括核苷酸结合寡聚化结构域样受体蛋白(nucleotide-binding oligomerization domain-like receptor protein,NLRP)1、NLRP3、NLRC4、NLRP6、NLRP12和黑素瘤缺乏因子2(absent in melanoma 2,AIM2)[26]。大多数的炎性小体通常由3个部分组成:胞质模式识别受体、含有半胱天冬蛋白酶募集结构域的凋亡相关斑点样蛋白(apoptosis-associated speck-like protein containing a CARD,ASC)和半胱天冬蛋白酶-1前体(pro-cysteinyl aspartate specific proteinase-1,pro-Caspase-1)。炎性小体成功组装后,Caspase-1会水解成2个片段,形成有活性的裂解的半胱天冬蛋白酶-1(cleaved-cysteinyl aspartate specific proteinase-1,cleaved-Caspase)[27]。研究发现,焦亡执行蛋白GSDMD、白细胞介素-1β前体(pro-interleukin-1β,pro-IL-1β)和白细胞介素-18前体(pro-interleukin-18,pro-IL-18)等相关蛋白会进一步被活化后的Caspase-1剪切激活[28-29]。GSDMD属于GSDM家族,GSDM家族包括GSDMA、GSDMB、GSDMC、GSDMD、GSDME和GSDMF(PJVK/DFNB59)等,其蛋白表达在多种组织中分布,尤其是从胃肠道和皮肤到支气管上皮[30]。值得注意的是,GSDMD作为Caspase-1的底物,在激活细胞焦亡的经典途径中发挥重要作用[21,31]。而剪切后的GSDMD-N末端结构域可以快速寡聚化在细胞膜中形成稳定的孔隙结构,快速破坏质膜并调节钙蛋白酶活性,从而促进细胞结构的解体[32]。最终,细胞膜的破裂导致细胞内促炎细胞因子白细胞介素-1β(interleukin-1β,IL-1β)和白细胞介素-18(interleukin-18,IL-18)以及大分子物质释放到膜外。此外,细胞焦亡发生时,细胞还会将ASC释放到细胞外,进而促进炎性小体的激活和炎症反应的扩散[33-34]。因此,这些信号共同成为诱导、放大和延续细胞焦亡和炎症的激活因素。

1.2 非经典炎性小体介导的细胞焦亡

非炎性小体指的是不直接参与炎症介质产生和释放的细胞结构,而非经典炎性小体是一种特殊的炎症小体,其激活途径与经典炎症小体有所不同[35]。非经典炎性小体介导的细胞焦亡无需组装炎性小体复合物,而是通过相关蛋白酶激活GSDM家族成员,它们的主要功能不是防御病原体,相反它们可能在抑制肿瘤细胞和增强免疫力中起着重要作用[36]。Caspase-4/5/11不需要炎性小体等分子复合物激活,而是通过革兰氏阴性菌的脂多糖(lipopolysaccharide,LPS)直接激活,然后对GSDMD进行裂解以在非经典途径中执行细胞焦亡[37-38]。除此之外,成熟的GSDMD-N末端仍可以通过激活NLRP3炎性小体诱导IL-1β和IL-18的Caspase-1依赖性成熟[39]。Caspase-3/8诱导途径可能与TNF-α有关[40]。其中Caspase-3通过切割GSDME介导细胞焦亡,而Caspase-8则通过切割GSDMD和GSDMC介导细胞焦亡[20]。在特殊情况下,细胞缺氧同样能够促进GSDMC基因的转录,其中GSDMC在TNF-α处理下优先被Caspase-8切割,导致GSDMC-N的产生,最终引起细胞膜孔隙的形成和细胞焦亡[41]

2 肠道炎症与肠道屏障

肠道炎症与肠道屏障之间具有紧密且复杂的相互作用,并且在维持肠道健康以及在疾病的发展过程中扮演着重要角色[42-43]。正常情况下,动物肠道内的促炎细胞因子和抑炎细胞因子处于动态平衡,以避免损伤后病原和毒素的侵入。但是,当动物受到心理或生理应激刺激,导致肠道屏障功能受损时,肠道上皮细胞的炎性程序性死亡及肠道炎症的多种表达通路被激活,导致炎症反应过度表达;若这种过度炎症反应持续,最终可能会加剧肠道屏障的损伤[20,44-45]
肠黏膜屏障是肠道免疫中重要的防御屏障,其严格的调节机制是保证肠黏膜屏障完整性和协同作用的基础。各种应激因素,如中毒、环境变化、断奶等,不仅能破坏肠道结构完整性,还能影响屏障功能的免疫调控机制,致使肠道内细菌、病毒、炎症因子等通过肠壁进入循环或其他组织,最终引起宿主免疫应答异常,引发肠道炎症[46]。小肠的上皮细胞层是哺乳动物体内自我更新能力最强的组织结构,其构成了肠道的物理屏障[47]。肠道炎症发生时,导致紧密连接结构的破坏,肠道上皮细胞完整性受损,从而造成肠道通透性增加[43]。同时,肠黏膜固有层免疫细胞作为促炎细胞因子的主要来源,在炎性反应中起着关键作用[48]。当肠道受到感染时,肠上皮细胞死亡程度增加,导致固有层中的免疫细胞的激活,释放炎症介质,进一步减弱肠道屏障功能[15]。除此之外,肠道炎症发生后可能会影响肠道内微生物组成的变化,加剧肠道屏障功能的损伤[49]。总的来说,肠道炎症和肠道屏障之间的关系是相互依存的,维护肠道屏障的完整性对于控制肠道炎症和预防相关疾病至关重要。

3 细胞焦亡在肠道炎症中的调控机制

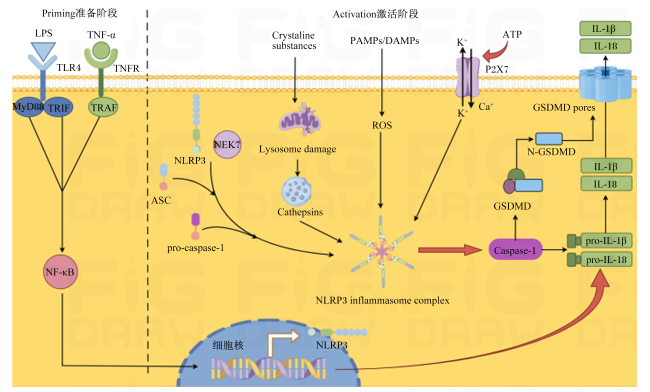
NLRP3炎性小体是激活细胞焦亡的关键驱动蛋白,通过促进炎症细胞因子的成熟和分泌,介导细胞焦亡的发生发展。NLRP3炎性小体在肠道中高度表达,与肠道免疫和炎症反应密切相关[50]。在未发生感染和炎症稳态的情况下,肠道上皮屏障中的模式识别受体(pattern recognition receptor,PRR)处于非激活状态,肠道中NLRP3的表达处于较低水平,当肠道受到感染或损伤时,LPS、PAMPs或DAMPs等可介导Toll样受体(Toll-like receptors,TLRs)通路、核因子-κB(nuclear factor kappa B,NF-κB)通路使NLRP3在肠道免疫细胞中的表达上调,随后进行组装,以应对感染或损伤[21,51](图1)。作为一种保护性宿主防御,细胞焦亡在控制多种病毒和细菌感染中起着至关重要的作用。病毒和细菌感染时PAMPs和DAMPs,包括LPS、鞭毛蛋白和脂蛋白,被不同的受体识别,从而触发细胞焦亡并促进病原体清除。细胞发生焦亡时,其细胞膜上会形成孔隙,这些孔隙促使细胞碎片化,形成细胞碎片陷阱,从而将病原体局限在其中,从而增强宿主对细胞内细菌的防御能力,除了捕获细菌外,细胞碎片还协调先天免疫反应,促进中性粒细胞的招募和吞噬作用,通过次级吞噬作用最终消灭被捕获的细菌[52]。此外,细胞焦亡还能够负反馈激活NLRP3,导致细胞膜溶胀和炎症因子释放,让机体免疫细胞再次识别病原微生物产生免疫应答[17]。NLRP3炎性小体被激活后,Caspase-1则能够通过剪切焦亡执行蛋白GSDMD,破坏质膜并将细胞内DAMPs以及促炎细胞因子IL-1β和IL-18释放到膜外,最后通过聚集免疫细胞进一步扩大炎症反应[28,53]
图1 NLRP3炎症小体调控肠道炎症路线

LPS:脂多糖 lipopolysaccharide;TNF-α:肿瘤坏死因子-α tumor necrosis factor-alpha;TLR4:Toll样受体4 Toll-like receptor4;TRFR:肿瘤因子受体相关蛋白 tumor factor receptor related protein;NF-κB:核因子-κB nuclear factor kappa B;Crystaline substances:结晶物质;Lysosome damage:溶酶体损伤;Cathepsins:组织蛋白酶类;PAMPs:病原体相关分子模式 pathogen-associated molecular patterns;DAMPs:危险相关分子模式danger-associated molecular patterns;ROS:活性氧 reactive oxygen species;NEK7:NIMA相关蛋白激酶-7 NIMA-related kinase 7;IL-1β:白细胞介素-1β interleukin-1β;pro-IL-1β:白细胞介素-1β前体 prosoma interleukin-1β;IL-18:白细胞介素-18 interleukin-18;pro-IL-18:白细胞介素-18前体 prosoma interleukin-18;ASC:含有半胱天冬酶募集结构域的凋亡相关斑点样蛋白 apoptosis-associated speck-like protein containing CARD;Caspase-1:半胱天冬蛋白酶-1 cysteinyl aspartate specific proteinase-1;pro-Caspase-1:半胱天冬蛋白酶-1前体 prosoma cysteinyl aspartate specific proteinase-1;NLRP3:寡聚化结构域样受体蛋白3 NOD-like receptor protein 3;GSDMD:焦孔素D gasdermin D。

Fig.1 NLRP3 inflammasome regulates intestinal inflammation routes[21,51]

肠道细胞焦亡主要参与调节黏膜先天免疫和肠致病性细菌感染。正常生理条件下,适度的细胞焦亡在宿主防御病原微生物中起重要作用[20]。如沙门氏菌感染易引起感染性腹泻,诱导NAIP-NLRC4炎性小体激活导致Caspase-1依赖性加工和释放促炎性IL-1β和IL-18,以及促进细胞焦亡形式的细胞裂解死亡;此外,招募嗜中性粒细胞,抑制其在巨噬细胞空泡内的增殖,同时释放活性氧(reactive oxygen species,ROS),阻断沙门菌在肠道定植,提高机体天然免疫反应[54-55]。而通过抑制巨噬细胞焦亡相关蛋白的表达,可以达到抑制盲肠细胞焦亡的发生,降低促炎细胞因子IL-1β分泌,降低机体抗感染免疫应答的效果,从而加速沙门氏菌的扩散[52]
适度的细胞焦亡是宿主防御病原菌侵染的关键环节。但是,细胞焦亡的过度激活可能引发炎症反应的失调以及细胞死亡,这些变化与多种肠道疾病的病理发展密切相关[56]。细胞焦亡在激活过程中释放大量细胞因子,这些细胞因子会诱导更多炎症因子的募集,从而增强肠道炎症反应。致病性细菌感染可能诱导肠道细胞过度焦亡,破坏肠道完整性,诱发肠道损伤或疾病。研究发现,致病性阪崎肠杆菌感染不仅诱导细胞凋亡,还通过Toll样受体4(Toll-like receptor 4,TLR4)/髓样分化因子88(myeloid differentiation protein 88,MyD88)上调NF-κB以促进NLRP3炎性小体的激活,导致下游炎性因子的上调和释放及GSDMD介导的肠道细胞焦亡,增加肠道通透性,诱发坏死性小肠结肠炎[57]。产生耶尔森菌素(Ybt)的大肠杆菌感染也会通过NLRP3途径诱导肠上皮细胞焦亡并促进肠道炎症,Ybt促进NLRP3炎性小体的组装和活化,导致GSDMD裂解为GSDMD-N,促进肠上皮细胞焦亡,加重肠道炎症。
病毒感染也会诱导肠道细胞焦亡。传染性胃肠炎病毒(TGEV)可引起仔猪致命的严重腹泻,体外试验表明,TGEV感染可诱导猪肠上皮细胞(IPEC-J2细胞)中NLRP3炎性小体的表达和组装,激活Caspase-1,促进GSDMD的产生和裂解,诱导细胞焦亡,同时诱导IPEC-J2细胞产生pro-IL-1β,并促进其活化;此外,抑制NLRP3则可阻断TGEV诱导的IL-1β释放[58]。断奶仔猪上的试验也显示,TGEV感染会激活NLRP3/Caspase-1/GSDMD轴,诱导仔猪肠道屏障损伤[59]。真菌毒素也会诱导肠道细胞焦亡,破坏肠道结构完整性,诱导肠道炎症。伏马菌素B1暴露能够激活NLRP3,上调焦亡相关基因表达,促进炎症细胞因子的分泌,加剧肠道炎症,损伤肠上皮[60]。Liu等[61]研究表明,有毒化学物质如异丙草胺(一种氯乙酰胺除草剂)摄入后也会导致小鼠肠道形态发生改变,紧密连接蛋白表达减少,黏液层厚度降低,进一步研究结果发现,结肠中的LPS浓度显著升高,NLRP3和Caspase-1等相关蛋白的表达均有不同程度地升高,表明结肠上皮细胞严重焦亡。
所有已知的NLRP3炎性小体激活剂如细菌、病毒、有毒化学制剂和颗粒金属已被证明可诱导细胞内ROS的产生[62],而抗氧化剂如槲皮素可抑制NLRP3炎性小体的激活[63],这表明ROS是触发NLRP3炎性小体形成和激活的关键机制,可作为刺激物共同的信号激活NLRP3炎性小体。Wang等[64]研究发现,当抑制剂VAS2870有效抑制ROS水平,则能够对NLRP3、ASCpro-Caspase-1的表达有明显抑制作用。体外研究也发现,脱氧雪腐镰刀菌烯醇通过增加IPEC-J2细胞ROS产生,上调硫氧还蛋白互作蛋白(TXNIP)的表达,从而活化炎性小体,上调NLRP3、ASCCaspase-1的表达,介导IL-18的成熟形式,并增加裂解形式的GSDMD,诱导IPEC-J2细胞发生焦亡[65]。因此,当动物机体发生细胞焦亡时,可以通过降低相关因子的表达有效抑制其发生发展。
作为GSDM家族的重要成员之一,GSDMD在维持肠道黏液屏障和防御病原体中还发挥着其他作用。Zhang等[66]研究发现,肠上皮细胞中GSDMD的特异性缺失会导致肠道黏液分泌减少、黏液层丢失。结肠黏液层是对抗肠道病原体(如大肠杆菌)的有效物理屏障,GSDMD表达缺失的小鼠更容易受到肠道病原体感染,使病原体侵入隐窝中[67]。综上所述,NLRP3炎性小体介导的细胞焦亡通路所引发的过度炎症反应和细胞死亡,是导致肠道炎症的机制之一。

4 小结

炎症是由有害刺激引发的,作为细胞自我保护的一种手段。在动物机体遭遇病原体侵害时,细胞焦亡被激活以抑制并清除病原体。但是,细胞焦亡的过度激活会导致细胞结构破坏,引发细胞内容物的大量释放和免疫蛋白的表达增加,致使炎症因子在动物体内不断累积,最终引起肠道炎症的发生。与此同时,细胞焦亡及肠道炎症背后的分子机制仍存在许多未解之谜,亟待进一步研究以阐明。因此,深入探究炎症小体和细胞焦亡在肠道炎症中的作用机制,对于揭示动物肠道疾病的潜在治疗靶点具有重要意义。
[1]
COOKSON B T, BRENNAN M A. Pro-inflammatory programmed cell death[J]. Trends in Microbiology, 2001, 9(3):113-114.

DOI PMID

[2]
FINK S L, COOKSON B T. Caspase-1-dependent pore formation during pyroptosis leads to osmotic lysis of infected host macrophages[J]. Cellular Microbiology, 2006, 8(11):1812-1825.

DOI PMID

[3]
SHI A A, GAO W Q, SHAO F. Pyroptosis:gasdermin-mediated programmed necrotic cell death[J]. Trends in Biochemical Sciences, 2017, 42(4):245-254.

[4]
HE W T, WAN H Q, HU L C, et al. Gasdermin D is an executor of pyroptosis and required for interleukin-1β secretion[J]. Cell Research, 2015, 25(12):1285-1298.

[5]
代程程, 李姝熠, 王茜, 等. 铁对畜禽肠道屏障的影响及作用机制研究进展[J]. 动物营养学报, 2024, 36(9):5535-5544.

DOI

DAI C C, LI S Y, WANG Q, et al. Research progress on effects and mechanisms of iron on intestinal barrier in livestock and poultry[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):5535-5544. (in Chinese)

DOI

[6]
唐歆, 李晓冰, 田颖, 等. 茶树精油对断奶仔猪生长性能、抗氧化能力、免疫功能以及肠道屏障功能的影响[J]. 动物营养学报, 2024, 36(4):2246-2261.

DOI

TANG X, LI X B, TIAN Y, et al. Effects of tea tree oil on growth performance,antioxidant capacity,immune function and intestinal barrier function of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2246-2261. (in Chinese)

DOI

[7]
BERTHELOOT D, LATZ E, FRANKLIN B S. Necroptosis,pyroptosis and apoptosis:an intricate game of cell death[J]. Cellular & Molecular Immunology, 2021, 18(5):1106-1121.

[8]
DEGTEREV A, HUANG Z H, BOYCE M, et al. Chemical inhibitor of nonapoptotic cell death with therapeutic potential for ischemic brain injury[J]. Nature Chemical Biology, 2005, 1(2):112-119.

DOI PMID

[9]
SUN L M, WANG H Y, WANG Z G, et al. Mixed lineage kinase domain-like protein mediates necrosis signaling downstream of RIP3 kinase[J]. Cell, 2012, 148(1/2):213-227.

[10]
STOCKWELL B R. Ferroptosis turns 10:emerging mechanisms,physiological functions,and therapeutic applications[J]. Cell, 2022, 185(14):2401-2421.

[11]
KAGAN V E, MAO G W, QU F, et al. Oxidized arachidonic and adrenic PEs navigate cells to ferroptosis[J]. Nature Chemical Biology, 2017, 13(1):81-90.

DOI PMID

[12]
ZOU Y L, HENRY W S, RICQ E L, et al. Plasticity of ether lipids promotes ferroptosis susceptibility and evasion[J]. Nature, 2020, 585(7826):603-608.

[13]
TSVETKOV P, COY S, PETROVA B, et al. Copper induces cell death by targeting lipoylated TCA cycle proteins[J]. Science, 2022, 375(6586):1254-1261.

DOI PMID

[14]
MIZUSHIMA N, KOMATSU M. Autophagy:renovation of cells and tissues[J]. Cell, 2011, 147(4):728-741.

[15]
魏宏逵, 吴晓宇, 崔琛彬, 等. 肠道炎症的发生机制及其营养调控研究进展[J]. 动物营养学报, 2022, 34(10):6358-6370.

DOI

WEI H K, WU X Y, CUI C B, et al. Research progress of mechanism of intestinal inflammation and its nutritional regulation[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6358-6370. (in Chinese)

DOI

[16]
KARKI R, SHARMA B R, TULADHAR S, et al. Synergism of TNF-α and IFN-γ triggers inflammatory cell death,tissue damage,and mortality in SARS-CoV-2 infection and cytokine shock syndromes[J]. Cell, 2021, 184(1):149-168.e17.

[17]
胡艳红, 张凡, 张楚焌, 等. 程序性细胞死亡形式研究进展[J]. 辽宁中医药大学学报, 2018, 20(12):85-89.

HU Y H, ZHANG F, ZHANG C J, et al. Research progress on several common forms of programmed cell death[J]. Journal of Liaoning University of Traditional Chinese Medicine, 2018, 20(12):85-89. (in Chinese)

[18]
MAN S M, KARKI R, KANNEGANTI T D. Molecular mechanisms and functions of pyroptosis,inflammatory caspases and inflammasomes in infectious diseases[J]. Immunological Reviews, 2017, 277(1):61-75.

[19]
ZHOU C C, SHEN Y M, JIN Y L, et al. A novel pyroptosis-related long non-coding RNA signature for predicting the prognosis and immune landscape of head and neck squamous cell carcinoma[J]. Cancer Medicine, 2022, 11(24):5097-5112.

DOI PMID

[20]
FANG Y, TIAN S W, PAN Y T, et al. Pyroptosis:a new frontier in cancer[J]. Biomedicine & Pharmacotherapy, 2020, 121:109595.

[21]
RAO Z P, ZHU Y T, YANG P, et al. Pyroptosis in inflammatory diseases and cancer[J]. Theranostics, 2022, 12(9):4310-4329.

DOI PMID

[22]
AI Y W, MENG Y T, YAN B, et al. The biochemical pathways of apoptotic,necroptotic,pyroptotic,and ferroptotic cell death[J]. Molecular Cell, 2024, 84(1):170-179.

[23]
KANG L L, DAI J H, WANG Y F, et al. Blocking caspase-1/gsdmd and caspase-3/-8/gsdme pyroptotic pathways rescues silicosis in mice[J]. PLoS Genetics, 2022, 18(12):e1010515.

[24]
ORNING P, WENG D, STARHEIM K, et al. Pathogen blockade of TAK1 triggers caspase-8-dependent cleavage of gasdermin D and cell death[J]. Science, 2018, 362(6418):1064-1069.

DOI PMID

[25]
LIAO J Z, HU Z Y, LI Q W, et al. Endoplasmic reticulum stress contributes to copper-induced pyroptosis via regulating the IRE1α-XBP1 pathway in pig jejunal epithelial cells[J]. Journal of Agricultural and Food Chemistry, 2022, 70(4):1293-1303.

[26]
GUO Q L, WU Y, HOU Y Y, et al. Cytokine secretion and pyroptosis of thyroid follicular cells mediated by enhanced NLRP3,NLRP1,NLRC4,and AIM2 inflammasomes are associated with autoimmune thyroiditis[J]. Frontiers in Immunology, 2018, 9:1197.

[27]
SUN L B, MA W, GAO W L, et al. Propofol directly induces caspase-1-dependent macrophage pyroptosis through the NLRP3-ASC inflammasome[J]. Cell Death & Disease, 2019, 10(8):542.

[28]
ARRÈ V, SCIALPI R, CENTONZE M, et al. The ‘speck’-tacular oversight of the NLRP3-pyroptosis pathway on gastrointestinal inflammatory diseases and tumorigenesis[J]. Journal of Biomedical Science, 2023, 30(1):90.

[29]
SHI A A, ZHAO Y, WANG K, et al. Cleavage of GSDMD by inflammatory caspases determines pyroptotic cell death[J]. Nature, 2015, 526(7575):660-665.

[30]
PRIVITERA G, RANA N, ARMUZZI A, et al. The gasdermin protein family:emerging roles in gastrointestinal health and disease[J]. Nature Reviews Gastroenterology & Hepatology, 2023, 20(6):366-387.

[31]
DAI Z, LIU W C, CHEN X Y, et al. Gasdermin D-mediated pyroptosis:mechanisms,diseases,and inhibitors[J]. Frontiers in Immunology, 2023, 14:1178662.

[32]
KESAVARDHANA S, MALIREDDI R K S, KANNEGANTI T D. Caspases in cell death,inflammation,and pyroptosis[J]. Annual Review of Immunology, 2020, 38:567-595.

[33]
FRANKLIN B S, BOSSALLER L, DE NARDO D, et al. The adaptor ASC has extracellular and ‘prionoid’ activities that propagate inflammation[J]. Nature Immunology, 2014, 15(8):727-737.

[34]
BAROJA-MAZO A, MARTÍN-SÁNCHEZ F, GOMEZ A I, et al. The NLRP3 inflammasome is released as a particulate danger signal that amplifies the inflammatory response[J]. Nature Immunology, 2014, 15(8):738-748.

[35]
YI Y S. Dual roles of the caspase-11 non-canonical inflammasome in inflammatory bowel disease[J]. International Immunopharmacology, 2022, 108:108739.

[36]
YANG F, BETTADAPURA S N, SMELTZER M S, et al. Pyroptosis and pyroptosis-inducing cancer drugs[J]. Acta Pharmacologica Sinica, 2022, 43(10):2462-2473.

DOI PMID

[37]
KAYAGAKI N, WARMING S, LAMKANFI M, et al. Non-canonical inflammasome activation targets caspase-11[J]. Nature, 2011, 479(7371):117-121.

[38]
AGLIETTI R A, ESTEVEZ A, GUPTA A, et al. GsdmD p30 elicited by caspase-11 during pyroptosis forms pores in membranes[J]. Proceedings of the National Academy of Sciences of the United States of America, 2016, 113(28):7858-7863.

DOI PMID

[39]
PAN Y H, CAI W J, HUANG J, et al. Pyroptosis in development,inflammation and disease[J]. Frontiers in Immunology, 2022, 13:991044.

[40]
LIN R T, WU W, CHEN H M, et al. GPR65 promotes intestinal mucosal Th1 and Th17 cell differentiation and gut inflammation through downregulating NUAK2[J]. Clinical and Translational Medicine, 2022, 12(3):e771.

DOI PMID

[41]
HOU J W, ZHAO R C, XIA W Y, et al. PD-L1-mediated gasdermin C expression switches apoptosis to pyroptosis in cancer cells and facilitates tumour necrosis[J]. Nature Cell Biology, 2020, 22(10):1264-1275.

DOI PMID

[42]
蒋江梅, 智慧, 胡泽华, 等. 香椿皮醇提物对溃疡性结肠炎小鼠黏膜屏障和肠道菌群的作用及机制[J]. 中国病理生理杂志, 2024, 40(9):1668-1677.

JIANG J M, ZHI H, HU Z H, et al. Effects of toona sinensis bark alcohol extract on mucosal barrier and gut microbiota in mice with ulcerative colitis[J]. Chinese Journal of Pathophysiology, 2024, 40(9):1668-1677. (in Chinese)

[43]
DI VINCENZO F, DEL GAUDIO A, PETITO V, et al. Gut microbiota,intestinal permeability,and systemic inflammation:a narrative review[J]. Internal and Emergency Medicine, 2024, 19(2):275-293.

[44]
RANA N, PRIVITERA G, KONDOLF H C, et al. GSDMB is increased in IBD and regulates epithelial restitution/repair Independent of pyroptosis[J]. Cell, 2022, 185(2):283-298.e17.

DOI PMID

[45]
LEONARDI I, LI X, ILIEV I D. Macrophage interactions with fungi and bacteria in inflammatory bowel disease[J]. Current Opinion in Gastroenterology, 2018, 34(6):392-397.

DOI PMID

[46]
MU Q H, KIRBY J, REILLY C M, et al. Leaky gut as a danger signal for autoimmune diseases[J]. Frontiers in Immunology, 2017, 8:598.

DOI PMID

[47]
匡雁玲, 万志成, 李佩, 等. 葡聚糖硫酸钠诱导小鼠空肠损伤及肠上皮细胞组成变化的研究[J]. 中国畜牧杂志, 2022, 58(6):261-265.

KUANG Y L, WAN Z C, LI P, et al. Study on jejunal injury and intestinal epithelial cell composition changes induced by dextran sodium sulfate in mice[J]. Chinese Journal of Animal Science, 2022, 58(6):261-265. (in Chinese)

[48]
CAPRARA G, ALLAVENA P, ERRENI M. Intestinal macrophages at the crossroad between diet,inflammation,and cancer[J]. International Journal of Molecular Sciences, 2020, 21(14):4825.

[49]
BROWN E M, KENNY D J, XAVIER R J. Gut microbiota regulation of T cells during inflammation and autoimmunity[J]. Annual Review of Immunology, 2019, 37:599-624.

DOI PMID

[50]
SABER S, ABD EL-FATTAH E E, YAHYA G, et al. A novel combination therapy using rosuvastatin and Lactobacillus combats dextran sodium Sulfate-Induced colitis in high-fat diet-fed rats by targeting the TXNIP/NLRP3 interaction and influencing gut microbiome composition[J]. Pharmaceuticals (Basel,Switzerland), 2021, 14(4):341.

[51]
张慧欣, 辜银萍, 胡宇声, 等. NLRP3炎性小体和细胞焦亡在消化系统疾病中的作用机制[J]. 中国兽医杂志, 2023, 59(1):96-101.

ZHANG H X, GU Y P, HU Y S, et al. Mechanism of action of NLRP3 inflammasomes and pyroptosis in digestive disorders[J]. Chinese Journal of Veterinary Medicine, 2023, 59(1):96-101. (in Chinese)

[52]
JORGENSEN I, ZHANG Y, KRANTZ B A, et al. Pyroptosis triggers pore-induced intracellular traps (PITs) that capture bacteria and lead to their clearance by efferocytosis[J]. The Journal of Experimental Medicine, 2016, 213(10):2113-2128.

DOI PMID

[53]
DE VASCONCELOS N M, VAN OPDENBOSCH N, VAN GORP H, et al. Single-cell analysis of pyroptosis dynamics reveals conserved GSDMD-mediated subcellular events that precede plasma membrane rupture[J]. Cell Death and Differentiation, 2019, 26(1):146-161.

DOI PMID

[54]
SELLIN M E, MÜLLER A A, FELMY B, et al. Epithelium-intrinsic NAIP/NLRC4 inflammasome drives infected enterocyte expulsion to restrict Salmonella replication in the intestinal mucosa[J]. Cell Host & Microbe, 2014, 16(2):237-248.

[55]
RAUCH I, DEETS K A, JI D X, et al. NAIP-NLRC4 inflammasomes coordinate intestinal epithelial cell expulsion with eicosanoid and IL-18 release via activation of caspase-1 and -8[J]. Immunity, 2017, 46(4):649-659.

[56]
SUN S Y, XU X X, LIANG L, et al. Lactic acid-producing probiotic Saccharomyces cerevisiae attenuates ulcerative colitis via suppressing macrophage pyroptosis and modulating gut microbiota[J]. Frontiers in Immunology, 2021, 12:777665.

[57]
CHEN Z H, ZHANG Y D, LIN R Q, et al. Cronobacter sakazakii induces necrotizing enterocolitis by regulating NLRP3 inflammasome expression via TLR4[J]. Journal of Medical Microbiology, 2020, 69(5):748-758.

[58]
WANG H, SHAN C L, GAO B, et al. Yersiniabactin-producing E.coli induces the pyroptosis of intestinal epithelial cells via the NLRP3 pathway and promotes gut inflammation[J]. International Journal of Molecular Sciences, 2023, 24(14):11451.

[59]
WANG K, CHEN D W, YU B, et al. Eugenol alleviates TGEV-induced intestinal injury via suppressing ROS/NLRP3/GSDMD-dependent pyroptosis[J]. Journal of Agricultural and Food Chemistry, 2023, 71(3):1477-1487.

DOI PMID

[60]
MAO X R, LIU S P, GE L, et al. mTOR-mediated autophagy regulates fumonisin B1-induced intestinal inflammation via pyroptosis in vivo and in vitro[J]. Journal of Agricultural and Food Chemistry, 2022, 70(29):9187-9200.

[61]
LIU Y L, YE L, CHEN H D, et al. Herbicide propisochlor exposure induces intestinal barrier impairment,microbiota dysbiosis and gut pyroptosis[J]. Ecotoxicology and Environmental Safety, 2023, 262:115154.

[62]
DOSTERT C, PÉTRILLI V, VAN BRUGGEN R, et al. Innate immune activation through Nalp3 inflammasome sensing of asbestos and silica[J]. Science, 2008, 320(5876):674-677.

DOI PMID

[63]
HAN X J, XU T S, FANG Q J, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via the interplay between NLRP3 inflammasome and mitophagy[J]. Redox Biology, 2021, 44:102010.

[64]
WANG F H, LIANG Q Q, MA Y X, et al. Silica nanoparticles induce pyroptosis and cardiac hypertrophy via ROS/NLRP3/caspase-1 pathway[J]. Free Radical Biology and Medicine, 2022, 182:171-181.

[65]
KANG T H, SHIN S, PARK J, et al. Pyroptosis-mediated damage mechanism by deoxynivalenol in porcine small intestinal epithelial cells[J]. Toxins, 2023, 15(4):300.

[66]
ZHANG J, YU Q Z, JIANG D L, et al. Epithelial gasdermin D shapes the host-microbial interface by driving mucus layer formation[J]. Science Immunology, 2022, 7(68):eabk2092.

[67]
COLLINS J W, KEENEY K M, CREPIN V F, et al. Citrobacter rodentium:infection,inflammation and the microbiota[J]. Nature Reviews. Microbiology, 2014, 12(9):612-623.

文章导航

/