综述

原花青素的抗炎作用机制及其在畜禽生产中的应用研究进展

  • 余爱莹 , 1, 2 ,
  • 王振江 1 ,
  • 方正锋 2 ,
  • 林森 , 1, *
展开
  • 1 广东省农业科学院蚕业与农产品加工研究所,广州 510640
  • 2 四川农业大学动物营养研究所,成都 611130
*林 森,副研究员,硕士生导师,E-mail:

余爱莹(2000—),女,河南信阳人,硕士研究生,从事猪营养研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-07-23

  网络出版日期: 2025-03-13

基金资助

国家自然科学基金青年项目(32102592)

广东省农业科学院科技创新战略专项(高水平农科院建设)(R2019YJ-YB3002)

国家现代农业产业技术体系建设专项(CARS-18-SYZ12)

广东省乡村振兴战略专项种业振兴行动项目(2023-NBH-00-003)

Research Progress on Anti-Inflammatory Mechanisms of Proanthocyanidins and Its Application in Livestock and Poultry Production

  • YU Aiying , 1, 2 ,
  • WANG Zhenjiang 1 ,
  • FANG Zhengfeng 2 ,
  • LIN Sen , 1, *
Expand
  • 1 Sericultural & Agri-Food Research Institute, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
  • 2 Animal Nutrition Institute, Sichuan Agricultural University, Chengdu 611130, China
*associate professor, E-mail:

Received date: 2024-07-23

  Online published: 2025-03-13

摘要

原花青素(PACs)又称缩合单宁,是一类广泛分布于多种植物中的多酚类化合物。近年来,PACs因其多样的生物活性引起了广泛关注。许多研究已证实了PACs在调节炎症反应和促进受损组织修复方面的显著作用,揭示了其作为抗炎活性物质的突出潜力。体内和体外等研究发现,PACs的抗炎作用机制涉及多种不同途径。首先,PACs能有效降低氧化应激水平;其次,PACs对花生四烯酸代谢途径具有调节作用;此外,PACs还能通过影响炎症相关信号通路和诱导巨噬细胞的极化来抑制炎症反应。本文旨在综述PACs的抗炎活性、作用机制及其在畜禽生产上的应用研究进展,为PACs在畜禽生产中的合理高效应用提供参考。

本文引用格式

余爱莹 , 王振江 , 方正锋 , 林森 . 原花青素的抗炎作用机制及其在畜禽生产中的应用研究进展[J]. 动物营养学报, 2025 , 37(3) : 1489 -1502 . DOI: 10.12418/CJAN2025.128

Abstract

Proanthocyanidins (PACs), also known as condensed tannins, are a class of polyphenolic compounds that are widely distributed in many plants. In recent years, PACs have attracted wide attention due to their diverse biological activities. Many studies have confirmed the significant role of PACs in regulating the inflammatory response and promoting the repair of damaged tissues, revealing its outstanding potential as an anti-inflammatory active substance. In vivo and in vitro studies have found that the anti-inflammatory mechanism of PACs involves a variety of different pathways. First of all, PACs can effectively reduce the level of oxidative stress; secondly, PACs have a regulatory effect on the arachidonic acid metabolic pathway; in addition, PACs can also inhibit the inflammatory response by affecting inflammation-related signaling pathways and inducing macrophage polarization. This review aims to review the anti-inflammatory activity, mechanism of action and the latest research progress of PACs in livestock and poultry production, so as to provide reference for the rational and efficient application of PACs in livestock and poultry production.

炎症是机体应对外界刺激的一种重要防御反应,通过产生细胞因子、活性氧(reactive oxygen species,ROS)等多种细胞源性介质以保护细胞和组织。根据持续时间的不同,炎症可分为急性炎症和慢性炎症。其中,急性炎症持续时间短,发病迅速,以粒细胞浸润为主;慢性炎症则持续时间长,以巨噬细胞、淋巴细胞等单核细胞浸润为主。当炎症持续存在并因免疫调节功能的稳态失衡时,会导致组织的永久性损伤。服用抗生素和非甾体抗炎药物是常见的抗炎措施,但在畜禽生产中这些措施常伴随经济效益降低、抗生素滥用等问题。因此,许多研究致力于寻找天然来源的抗炎药物进行替代。
多酚类化合物按结构可分为类黄酮、芪、酚酸和木酚素。黄酮类化合物又可分为黄酮、黄酮醇、黄烷醇、黄烷酮及异黄酮等。黄烷-3-醇可以以单体的形式存在,如儿茶素、表儿茶素及其衍生物等,也可以以单体或聚合物的形式存在,如原花青素(proanthocyanins,PACs)。PACs最早是由法国科学家Jacques Masquelier从松树皮提取并鉴定结构、功效,并将其命名为pycnogenols[1],之后根据其在酸性介质中加热时生成红色花青素而更名为PACs[2]。PACs是一类物质的统称,存在单聚体、低聚体和多聚体3种形式,也可以是3种形式的混合物。PACs是一类具有多种药理性质的植物多酚类物质,也称缩合单宁,广泛存在于各种植物的花、果实、种子和树皮中,其涩味能够保护植物免受病原体和捕食者的侵害。近年来多项研究表明,PACs具有多种生物学作用,如极强的抗氧化活性[3]和抗炎活性[4],对肠道具有保护作用[5],可以抗辐射并抑制癌细胞生长[6],还可以调节脂肪代谢[7]等。因此,PACs在食品、畜禽等领域具有强大的应用潜力。本文通过探讨PACs的抗炎活性以及抗炎作用机制,为深入进行PACs的开发应用提供参考依据。

1 PACs的基本特性

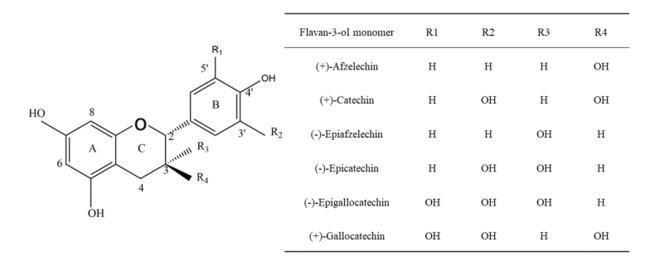
PACs又称缩合单宁,是由不同数量的儿茶素或表儿茶素通过C—C键缩合而形成的黄酮类聚合物,其基本组成单位是黄烷-3-醇[8]。PACs的单体结构如图1所示。黄烷-3-醇是一类重要的黄酮类化合物,含有2个苯环(A和B环),通过中心集团的杂环(C环)连接,且杂环是烯酮、吡喃或吡喃酮。羟基是否被取代、C3羟基位是否没食子酰化以及手性碳原子构象不同,其结构均会不同。其中,B环有2个羟基的成为儿茶素,与表儿茶素互为同分异构体。二聚体PACs中根据单体连接键的方式,可分为A型(PAC-A)和B型(PAC-B)。其中,PAC-A通过C—C键和C—O—C键双重连接;PAC-B则通过单体之间的单个C—C键(C4-C6或C4-C8黄烷间键)结合。PAC-A由于具有额外的C2-O7共价键而比PAC-B更稳定[9]。PAC-A和PAC-B在一定条件下可以相互转化[10-11]。大多数植物中只含有PAC-B,只有少数植物如蔓越莓、花生等含有PAC-A,因此PAC-B是自然界中主要的PACs类型[9]。根据聚合度(degree of polymerization,DP)的大小,PACs又可分为低聚原花青素(oligomer proanthocyanins,OPC)和多聚原花青素(polymeric proanthocyanins,PPC)。通常把DP为1的组分称为单体,单体一般是儿茶素或表儿茶素;DP小于5的组分称为OPC,DP大于5的称为PPC。PACs的DP因来源不同有很大差异,因此平均聚合度(mean degree of polymerization,mDP)是一种常用的衡量单体亚基平均数量的方法。研究表明,PACs的抗炎作用与mDP的大小相关,当mDP处于中等水平(5~10)时,PACs对巨噬细胞炎症因子的抑制功能最强;而当mDP过高和过低时,其抗炎活性显著降低[12]。PACs的抗氧化作用同样与其结构相关联,PACs的羟基结构含有大量氢供体,而氢供体是一类化学作用力很强的氧游离基清除剂和脂质过氧化抑制剂,因此PACs的抗氧化能力十分强大。
图1 PACs的单体结构

Flavan-3-ol monomer:黄烷-3-醇单体;Afzelechin:阿夫儿茶素;Catechin:儿茶素;Epiafzelechin:表阿夫儿茶素;Epicatechin:表儿茶素;Epigallocatechin:表没食子儿茶素;Gallocatechin:没食子儿茶素。

Fig.1 Monomer structure of PACs[8]

PACs广泛存在于多种植物中,在蔓越莓、蓝莓、荔枝、葡萄和苹果等水果中含量丰富。随着提取工艺的不断优化与发展,从葡萄、荔枝、花生和芒果等多种果实中提取分离纯化PACs,其提取率与纯度也在不断提高[11,13-14]。目前研究最多的是葡萄籽中提取的PACs,即葡萄籽原花青素(grape seed proanthocyanidins,GSPs),其主要成分是OPC。含PACs较多的谷物主要有荞麦、大麦、玉米以及高粱等。红酒、巧克力、坚果和豆类等常见食品中也含有丰富的PACs[15]。此外,在以植物为原料加工的饮料如啤酒、红酒和果汁中也检测到较高含量的PACs[15-16]。PACs的总含量、mDP和结构类型在不同植物中的分布差异很大[9]。例如,PAC-B在葡萄、蓝莓、可可、高粱和苹果中含量丰富,而蔓越莓、李子和牛油果是PAC-A的主要来源[9]。同一植物不同组织中PACs的含量和DP也有很大差异,如葡萄籽中PACs单体和低聚物的含量高于果皮,但果皮中PACs的DP远高于葡萄籽[17]

2 PACs的抗炎活性

多项研究表明,PACs在抗炎及缓解炎症损伤方面作用显著,PACs的抗炎活性见表1。首先,在鼠上的研究证实,PACs对消化系统中的肠道以及肝脏等部位的炎症有较好的缓解作用。在葡聚糖硫酸钠(dextran sulfate sodium,DSS)诱导的溃疡性结肠炎模型小鼠中,花生皮衣原花青素提取物(peanut skin procyanidins extract,PSPE)处理小鼠体重恢复加快,结肠杯状细胞数量增加,封闭蛋白(claudin)-1基因表达上调,结肠组织受损情况得到改善,炎症因子白细胞介素-1β(interleukin-1β,IL-1β)和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)及脂质过氧化产物丙二醛(malondialdehyde,MDA)表达均下调[13]。在饮食诱导的大鼠肠道功能障碍和代谢性内毒素血症研究中,葡萄籽原花青素提取物(grape seed proanthocyanidin extract,GSPE)能够改善长期肥胖饮食诱导的肠道通透和局部炎症,并且在每个肠段中起到了不同程度的预防作用,同时改善代谢性内毒素血症[18]。在四氯化碳(CCl4)诱导的大鼠肝脏损伤和纤维化模型中,PACs能够恢复氧化还原平衡、抑制炎症因子、正常化细胞凋亡调节蛋白和保护DNA结构,抑制肝脏纤维化[19]。因此,PACs能通过抑制炎症因子产生、控制氧化应激水平,降低肝脏、肠道组织炎症,抑制组织损伤。其次,PACs还能调节脂肪组织中的炎症反应,显著降低肥胖大鼠脂肪组织中环氧合酶-2(cyclooxygenase-2,COX-2)、白细胞介素-6(interleukin-6,IL-6)含量,并在体外下调脂肪细胞中COX-2和TNF-α的表达量[20]。蔓越莓PACs能抑制氧化应激和炎症,同时减少高脂血症和脂肪肝病,并通过这些途径预防高脂肪/高蔗糖诱导的C57BL/6J小鼠肥胖,以及改善胰岛素抵抗和高脂血症[21]。因此,PACs对肥胖等与慢性炎症相关疾病也有一定预防作用。此外,在子宫及肾脏等器官,PACs也发挥抗炎活性。在氯化镉(CdCl2)诱导的小鼠子宫炎模型中,原花青素B2(procyanidin B2,PB2)能够降低小鼠子宫组织CdCl2的浓度,降低子宫内TNF-αIL-1βIL-6的表达,降低细胞凋亡,同时提高超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)的表达量,进而缓解氧化应激和炎症[22]。OPC则能够降低糖尿病大鼠的空腹血糖、肾脏指数、尿微量白蛋白、血清肌酐和血清尿素氮含量,缓解大鼠肾脏损伤,降低肾脏中的炎症因子含量,进而缓解糖尿病引起的肾炎[23]。综上所述,在肠道、肝脏、肾脏、子宫及脂肪组织等多种器官组织中,PACs均表现出较强的抑制炎症反应的作用,对炎症引起的组织器官损伤有积极修复作用,对于肥胖等炎性代谢性疾病也有一定预防作用。值得注意的是,在多项研究中,PACs均表现出提高组织抗氧化酶活性、降低脂质代谢产物的作用[22,24]。因此,抗氧化功能可能是PACs发挥抗炎作用的基础和内在机制。除了抑制氧化应激反应,PACs还通过调节花生四烯酸途径等多种机制调控炎症反应。
表1 PACs的抗炎活性

Table 1 Anti-inflammatory activity of PACs

PACs来源
PACs sources
动物种类
Animal species
研究模型
Research model
每日剂量
Daily dosage
抗炎活性
Anti-inflammatory
参考文献
References
花生皮衣
Peanut skin
C57BL/6小鼠 葡聚糖硫酸钠(DSS)
诱导的结肠炎
200 mg/kg 下调结肠白细胞介素-1β(IL-1β)、肿瘤坏死因子-α
(TNF-α)和丙二醛(MDA)表达,提高结肠杯状
细胞数量和封闭蛋白-1(claudin-1)表达
[13]
葡萄籽
Grape seed
Wistar大鼠 高脂高糖饮食
诱导的肥胖
0、5、25、
50 mg/kg DM
降低活性氧(ROS)水平和髓过氧化物酶(MPO)活性,25和
50 mg/kg组诱导型一氧化氮合成酶(iNOS)表达量显著降低,
5 mg/kg组IL-1β表达量显著降低;显著提高
紧密连接蛋白-1(ZO-1)表达量
[18]
PACs试剂
PACs reagent
Wistar大鼠 四氯化碳(CCl4)
诱导的肝脏损伤
500 mg/kg BW 降低白细胞介素-6(IL-6)、IL-1β和TNF-α含量;
降低MDA含量,提高谷胱甘肽过氧化物酶(GSH-Px)、谷胱甘肽
还原酶(GR)活性及谷胱甘肽(GSH)含量
[19]
葡萄籽
Grape seed
大鼠 高脂饲粮
诱导的肥胖
25、50、
100 mg/d
降低脂肪组织环氧合酶-2(COX-2)、IL-6、TNF-α含量 [20]
蔓越莓
Cranberry
C57BL/6J小鼠 高脂高糖饲粮诱导的
溃疡性结肠炎
200 mg/kg DM 降低TNF-αCOX-2表达量 [21]
原花青素B2
Procyanidin B2
SD大鼠 氯化镉(CdCl2)
诱导的子宫炎
100 mg/kg BW 提高GSH-Px、超氧化物歧化酶(SOD)活性,降低IL-6、
TNF-αIL-1β的表达量
[22]
低聚原花青素
OPC
SD大鼠 高糖高脂饮食和
链脲佐菌素诱导的
糖尿病肾病
125、250、
500 mg/kg BW
降低血清和肾脏中IL-1β、IL-6和
单核细胞趋化蛋白-1(MCP-1)含量
[23]
葡萄籽
Grape seed
无特定病原体
(SPF)昆明小鼠
全氟辛烷磺酸
(PFOS)诱导的
脂肪性肝炎
150 mg/kg 降低MDA含量,提高SOD活性;抑制肝脏
IL-6和IL-1β的表达
[24]

3 PACs的抗炎作用机制

3.1 抑制氧化应激

氧化应激损伤主要是指体内自由基的过量产生,使机体的抗氧化系统急剧紊乱,导致体内自由基积累,最终造成损伤和疾病。生物体内新陈代谢会产生ROS,但当机体内ROS的生成与清除的平衡被打破,过多的ROS积累会破坏细胞结构、损坏蛋白质结构以及损伤DNA致基因突变等,引起慢性炎症、衰老、心脏病和癌症等疾病。巨噬细胞内的ROS水平能够影响信号转导与转录激活因子(signal transducer and activator of transcription,STAT)1、丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)和核因子-κB(nuclear factor-kappa B,NF-κB)的活性,并导致炎症信号的整体增加[25]。PACs的羟基结构含有大量的氢供体,能与氧化物和自由基结合,从而阻断自由基的链式反应,是一类化学作用力很强的氧游离基清除剂和脂质过氧化抑制剂。富含PACs的葡萄籽提取物(grape seed extract,GSE)不仅可以直接降低细胞内ROS水平,终止氧化反应,还可以增加线粒体膜电位和细胞氧消耗,进而缓解氧化应激[26]。GSE能够降低人颗粒细胞的ROS水平和还原型烟酰胺腺嘌呤二核苷酸磷酸氧化酶4(NOX4)mRNA表达量[27]。同时,PACs还能够通过提高抗氧化酶的表达水平来降低ROS水平,提高机体抗氧化能力。GSPs通过上调磷酸化c-Jun氨基末端激酶(p-JNK)/叉头盒蛋白O3a(FOXO3a)蛋白的表达,下调ROS水平,同时促进抗氧化蛋白的表达,从而下调线粒体自噬相关蛋白表达,降低线粒体自噬囊泡[28]
此外,(-)-表儿茶素和PB2能够抑制基质金属蛋白酶(matrix metalloproteinase,MMP)1和MMP3的表达,进而抑制炎症的进展[29]。一氧化氮(NO)是一种气态自由基,由L-精氨酸通过一氧化氮合成酶(nitric oxide synthetase,NOS)合成,包括内皮型一氧化氮合成酶(endothelial nitric oxide synthase,eNOS)、神经元型一氧化氮合成酶(neuronal nitric oxide synthasen,nNOS)和诱导型一氧化氮合成酶(inducible nitric oxide synthase,iNOS)。NO是体内重要的化学信使,参与机体生理过程的调节和宿主防御及免疫反应,同时在炎症反应中也发挥了复杂作用。在生理浓度下,NO具有多种抗炎、抗氧化、抗动脉粥样硬化和血管扩张活性。但当NO在氧化和炎症条件下过量产生时,能够产生有毒的强氧化剂——过氧亚硝基阴离子(ONOO-)。红景天OPC能够促进血清NO释放,提高主动脉iNOS表达,降低eNOS表达[30]。PSPE联合花生红衣多酚显著降低DSS诱导的溃疡性结肠炎小鼠肠道COX-2和iNOS的mRNA表达量[13]。因此,PACs能够降低机体NO水平,进而缓解炎症。
核因子红系2相关因子2(nuclear factor erythroid 2 related factor 2,Nrf2)作为细胞抵抗氧化应激的一种关键转录因子,在诱导机体的抗氧化应答中起着重要作用。PB2处理能够增加内皮祖细胞(endothelial progenitor cells,EPCs)Nrf2及其下游抗氧化基因的表达,以减弱高糖诱导的EPCs氧化应激;腹膜内注射PB2显著降低糖尿病小鼠创面皮肤ROS水平[31]。PACs处理Caco-2/15细胞抑制了Kelch样ECH相关蛋白1(Kelch like ECH associated protein 1,Keap1)的表达,促使Nrf2转运到细胞核,进而结合抗氧化基因(SODGSH-Px)启动子区域的抗氧化反应元件(antioxidant response element,ARE),从而刺激其转录并协调上调[32]。原花青素预处理降低脂多糖(lipopolysaccharide,LPS)诱导的RAW264.7细胞Keap1的表达,促进Nrf2核易位,并诱导下游血红素氧合酶-1(heme oxygenase-1,HO-1)的体外表达[33]。原花青素A2通过提高p38丝裂原激活蛋白激酶(p38 mitogen-activated protein kinases,p38)水平、促进c-Jun氨基末端激酶(c-Jun N-terminal kinase,JNK)磷酸化,进而激活Nrf2,促进HO-1和还原型烟酰胺腺嘌呤二核苷酸(磷酸)醌氧化还原酶[NAD(P)H quinone oxidoreductase 1,NQO1]的表达,缓解人胎儿肝细胞系的氧化应激[34]。原花青素C1具有较强的2,2-二苯基-1-苦味酰肼(2,2-diphenyl-1-picrylhydrazy,DPPH)自由基清除活性,能够抑制谷氨酸诱导的细胞内ROS积累和蛋白质羰基化,促进Nrf2的核易位,并提高HO-1的表达量[35]

3.2 调节花生四烯酸途径

COX-2是炎症中的关键酶,它可将花生四烯酸转化为几种经典的促炎介质,如血栓素A2(thromboxane A2,TXA2)、前列腺素F2a(prostaglandin F2a,PGF2a)和前列腺素E2(prostaglandin E2,PGE2)[36]。因此,COX-2的调节在炎症反应的调控中起着关键作用。PACs通过多种途径抑制COX-2,包括抑制COX-2基因转录和COX-2蛋白表达以及降低COX-2活性。4种转录因子NF-κB、CCAAT/增强子结合蛋白(CCAAT/enhancer binding protein,C/EBP)、激活蛋白-1(activator protein-1,AP-1)和环磷酸腺苷反应元件结合蛋白(cAMP-response element binding protein,CREB)可通过与COX-2启动子区域的顺式作用元件结合来调节COX-2的转录[37-40]。GSPs能够降低小鼠肺动脉平滑肌细胞在香烟烟雾提取物孵育后的过氧化物酶体增殖物激活受体γ(peroxisome proliferators-activated receptor γ,PPARγ)的表达,并降低COX-2的表达量[41]。GSPE能够抑制NF-κB和细胞外信号调节激酶(extracellular signal-regulated kinase,ERK)/p38 MAPK信号活性,显著降低登革病毒诱导的COX-2表达,降低乳鼠大脑单核细胞浸润以及相关炎性细胞因子的表达[42]。在LPS诱导的RAW264.7细胞模型中,PACs主要通过剂量依赖性地降低前列腺素内过氧化物合酶2(prostaglandin-endoperoxide synthase 2,PTGS2,编码COX-2)、IL-6、JNK的表达发挥抗炎作用[33]

3.3 调节炎症相关通路

NF-κB是一种重要的转录调节因子,参与机体的炎症调节,常以p65和p50异二聚体形式存在。静息状态下,核因子-κB抑制因子(inhibitor of nuclear factor-kappa B,IκB)与核内NF-κB亚基结合并停留在细胞质中。在刺激状态下,核因子-κB抑制因子激酶(inhibitor of nuclear factor-kappa B kinase,IKK)被激活并导致磷酸化依赖的蛋白酶体IκB的降解,然后释放NF-κB亚基从细胞质到细胞核。NF-κB亚基与IKK元件结合,启动炎症反应相关靶基因的表达。NF-κB不仅介导先天免疫细胞中各种促炎基因,还调节炎症T细胞的活化、分化和效应功能。研究表明,PACs通过抑制IκBα和NF-κB p65的磷酸化,增强沉默信息调节因子1(silent information regulator 1,SIRT1)与NF-κB p65的结合效应,进而降低机体的炎症水平。GSPs通过降低IκBα磷酸化程度,调控NF-κB的转录活性,进而降低小鼠肺组织炎性浸润水平[43]。对于LPS诱导处理的RAW264.7巨噬细胞,PACs处理可显著增强SIRT1与NF-κB p65的结合效应,上调SIRT1的表达,进而抑制NF-κB通路,减轻LPS诱导RAW264.7巨噬细胞的炎症反应[44]。GSPE能够抑制IKK表达和IκBα的磷酸化,从而抑制NF-κB信号通路,进而降低IL-1βIL-6、TNF-α和C反应蛋白的表达,促进IL-10的表达,最终减轻砷引起的BEAS-2B细胞的炎症损伤[45]。PB2通过改变Toll样受体(Toll-like receptor,TLR)4/NF-κB、磷脂酰肌醇3激酶(phosphatidylinositol 3 kinase)PI3K/蛋白激酶B(Akt)、Hippo和Rho信号通路的表达,降低炎性细胞因子水平,减轻炎症[46]。红米胚芽和米糠提取的PACs通过抑制NF-κB易位和下调炎性小体通路相关蛋白[NOD样受体热蛋白结构域相关蛋白3(NOD-like receptor thermal protein domain associated protein 3,NLRP3)、凋亡相关斑点样蛋白(apoptosis-associated speck-like protein,ASC)、半胱天冬酶-1前体(pro-Caspase-1)和裂解半胱天冬酶-1(cleaved-Caspase-1)]发挥其对LPS和ATP诱导的A549肺细胞炎症的调节作用[47]。PB2预处理能够显著抑制NF-κB活化,从而诱导氧化应激和炎性小体活化,进而降低高糖诱导的TR-iBRB2细胞的细胞毒性[48]。亲脂性GSPs通过抑制MAPK和NF-κB信号通路的激活,抑制RAW264.7细胞中NO和TNF-α、IL-6和IL-1β等促炎细胞因子的产生[49]
MAPK通路在炎症过程中也起着重要作用。MAPK家族成员主要包括ERK、JNK和p38 MAPK。LPS刺激可促进ERK、JNK和p38的磷酸化,进一步刺激核转移因子AP-1的核易位,并诱导一些炎症因子的表达。因此,抑制MAPK通路能够降低机体的炎症水平。原花青素C1可以阻断ERK1/2和p38的磷酸化[35]。PACs处理显著降低银屑病样细胞的增殖率和数量,以及降低ROS、炎症指标和磷酸化Janus激酶2(Janus kinase 2,JAK2)/STAT3/PI3K/Akt的水平,其效果与添加PI3K抑制剂结果相同,与添加HO-1抑制剂结果相反,故PACs能够通过抑制PI3K/Akt途径,激活HO-1来降低STAT3的表达进而抑制炎症反应[50]。通过LPS联合单钠尿酸处理小鼠腹腔巨噬细胞、小鼠骨髓源性巨噬细胞和2种小鼠痛风模型的研究发现,PB2通过抑制NLRP3炎性体途径,进而降低IL-1β和组织蛋白酶B的释放,从而抑制单钠尿酸诱导的痛风的炎症反应[51]。综上所述,PACs能够抑制NF-κB、MAPK和NLRP3途径,促进Nrf2通路,进而发挥抗炎活性。

3.4 诱导巨噬细胞极化

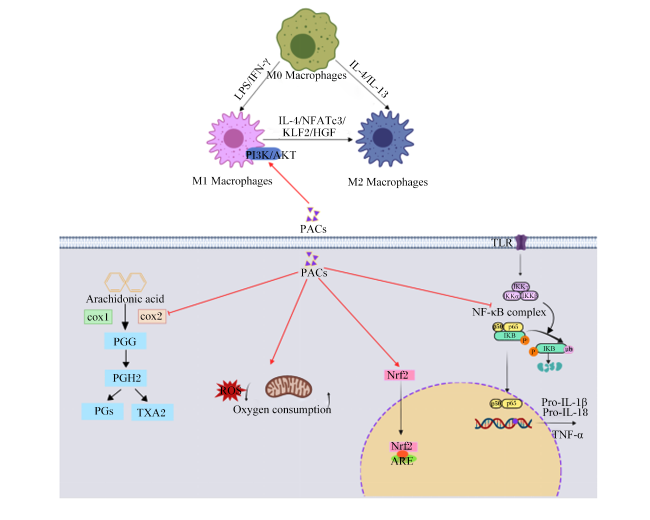
巨噬细胞极化是一个动态过程,在特定条件下M1与M2巨噬细胞之间能够相互转化,使巨噬细胞在微环境变化时仍能维持组织稳态与机体平衡。M1巨噬细胞在炎症早期承担着促炎作用,在LPS和干扰素-γ(interferon-γ,IFN-γ)的反应下分化。M1表型极化可促使巨噬细胞表面CD16/32、CD40和CD86等膜分子表达量显著提高,与T细胞作用增强,进而产生NO、IL-1β、IL-6、白细胞介素-12(interleukin-12,IL-12)和TNF-α以及ROS,促进炎症和增加组织损伤;而M2巨噬细胞则介导抗炎反应和Th2型免疫应答,起着抑制炎症反应及组织修复的作用[52]。因此,抑制M1表型巨噬细胞极化对于限制炎症反应进展至关重要。研究发现,PACs在调节巨噬细胞极化方面发挥着重要作用。GSPs通过激活PI3K/Akt途径,提高髓样细胞触发受体2的表达,调节巨噬细胞从M1到M2a的极化,并减少单核细胞源性巨噬细胞向炎症器官募集,从而减轻炎症以及器官损伤[53]。PB2通过激活PPARγ的活性,以PPARγ依赖性方式提高Arg1、Ym1和Fizz1基因的表达,进而调控巨噬细胞向M2极化[54]。此外,PACs还可以通过抑制NF-κB和STAT3的激活来抑制LPS诱导的炎性细胞因子升高和M1巨噬细胞的极化,促进向M2巨噬细胞极化[55]。因此,PACs促进向M2巨噬细胞极化提供了一种治疗炎症相关疾病的新型方法。PACs的抗炎作用机制如图2所示。
图2 PACs的抗炎作用机制(使用MedPeer绘制)

PACs:原花青素 proanthocyanins;M0 Macrophages:M0巨噬细胞;M1 Macrophages:M1巨噬细胞;M2 Macrophages:M2巨噬细胞;LPS:脂多糖 lipopolysaccharide;IFN-γ:干扰素-γ interferon-γ;IL:白细胞介素 interleukin;NFATc3:活化T细胞的核因子3 nuclear factor of activated T cells 3;KLF2:Krüppel样因子2 Krüppel-like factor 2;HGF:干细胞生长因子 hepatocyte growth factor; Arachidonic acid:花生四烯酸;cox1:环氧合酶1 cyclooxygenase 1;cox2:环氧合酶2 cyclooxygenase 2;PGG:前列腺素G prostaglandin G;PGH2:前列腺素H2 prostaglandin H2;PGs:前列腺素 prostaglandins;TXA2:血栓素A2 thromboxane A2;ROS:活性氧 reactive oxygen species;Oxygen consumption:氧消耗;Nrf2:核因子红系2相关因子2 nuclear factor erythroid 2 related factor 2;ARE:抗氧化反应元件 antioxidant response element;TLR:Toll样受体 Toll-like receptor;IKK:核因子-κB抑制因子激酶 inhibitor of nuclear factor-kappa B kinase;NF-κB complex:核因子-κB复合体 nuclear factor-kappa B complex;IKB:核因子-κB抑制因子 inhibitor of nuclear factor-kappa B;ub:泛素 ubiquitin;Pro:前体 precursor;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α。

Fig.2 Anti-inflammatory mechanisms of PACs (drawn using MedPeer)

4 PACs在畜禽生产中的应用研究进展

4.1 PACs在猪生产中的应用

研究表明,不同来源的PACs均能有效缓解仔猪断奶应激,预防仔猪肠道炎症,进而提高饲料利用率等生产性能指标。Pistol等[56]详细阐明了葡萄籽粕预防仔猪肠道炎症的作用,该研究证实,葡萄籽粕可能通过以下3个方面发挥作用:1)通过调节紧密连接蛋白(如claudin)及其调节因子(如蛋白酪氨酸磷酸酶)和黏蛋白2(MUC2)基因,恢复上皮完整性并增强黏膜屏障功能;2)降低促炎性介质MMP2和MMP9基因及其活性;3)抑制先天性免疫相关的TLR2和TLR4基因,并减轻髓样分化因子88(myeloid differentiation factor 88,MyD88)/MD-2信号分子的表达。Liu等[57]的研究则揭示了PACs作为仔猪饲料添加剂具有安全性和积极效果,其中30和300 mg/kg的添加剂量能显著降低料重比和腹泻率,提高干物质、粗脂肪和总能的消化率;此外,PACs还可以改善十二指肠和空肠的肠道发育状况,提高肠道组织黏蛋白和脂肪酸转运蛋白的表达量。另一项在断奶仔猪上的研究发现,饲粮中添加40和70 mg/kg的GSPs同样能够改善仔猪生长性能,降低腹泻率,提高血液、肝脏和肌肉中的抗氧化酶活性,缓解氧化应激[58]。研究还发现,GSPs具有增强断奶仔猪肠道淀粉酶、脂肪酶、蔗糖酶和麦芽糖酶等消化酶活性的作用[58-59],而这也可能是PACs促进仔猪饲料利用率及增重提高的重要原因。以上结果表明,PACs是提高断奶仔猪生长性能和肠道健康的安全有效补充剂。
育肥阶段添加PACs能有效改善脂肪代谢,对于猪肉品质和骨骼肌发育也具有积极作用。在育肥猪上的一项研究探讨了GSPE对育肥猪脂质代谢和抗氧化能力的影响,结果发现在基础饲粮中添加200 mg/kg GSPE可显著提高血清、肌肉和肝脏总抗氧化能力(total antioxidant capacity,T-AOC)和GSH-Px活性,并降低MDA含量;此外,GSPE还改善了育肥猪的血脂代谢,提高了血清高密度脂蛋白胆固醇含量,降低了血清甘油三酯和总胆固醇含量[60]。Zhang等[61]通过转录组学和代谢组学方法研究了生长育肥猪饲粮中添加GSPs对背最长肌脂质代谢的影响,结果发现添加200或250 mg/kg的GSPs可显著降低背最长肌总胆固醇、甘油三酯、低密度脂蛋白胆固醇及饱和脂肪酸含量,显著提高不饱和脂肪酸含量;饲喂GSPs导致生长育肥猪脂肪酸分解及氧化基因上调,脂肪酸合成基因下调,而与脂肪酸跨膜转运的肉毒碱棕榈酰基转移酶1B(carnitine palmitoyltransferase 1B,CPT1B)和分化簇36(cluster of differentiation 36,CD36)的基因表达量也显著上调,这可能是GSPs调控脂质代谢的重要原因;此外,单磷酸腺苷活化蛋白激酶(AMP-activated protein kinase,AMPK)信号通路也发挥关键作用,GSPs可能通过引起AMPK信号通路关键调节因子钙结合蛋白39的表达上调调节脂质代谢。GSPE可以通过上调AMPK磷酸化水平调控脂肪酸摄取及脂肪酸β氧化关键基因进而调控脂质代谢[62]。Xu等[63]在育肥猪饲粮中添加0、50、100和200 mg/kg的GSPE,结果发现GSPE能够有效改善猪肉的颜色、保水能力、嫩度和营养价值,提高育肥猪中慢肌纤维的比例及其抗氧化能力,从而提高猪肉的感官品质和营养价值,且200 mg/kg是最佳添加量。最近的一项研究也揭示了GSPE改善猪肉品质及骨骼肌发育的作用,在育肥猪育肥后期短期添加GSPE 30 d后,GSPE组背膘厚度显著降低,眼肌面积增加,肉色和嫩度得到改善;此外,GSPE提高了背最长肌中慢肌球蛋白重链表达和苹果酸脱氢酶活性,降低了快肌球蛋白重链表达和乳酸脱氢酶活性,同时还提高了背最长肌中SIRT1和过氧化物酶体增殖物激活受体γ辅激活子-1α(peroxisome proliferator-activated receptor gamma coactivator-1α,PGC-1α)蛋白的表达,并上调了AMPK信号通路中关键分子的表达量[64]。肉质的改善与肌纤维类型的转化关系密切,而PACs对AMPK信号通路的调控作用则是其改善育肥猪肉质的关键分子机制。

4.2 PACs在家禽生产中的应用

肉鸡和蛋鸡饲粮中添加PACs能显著提高生产性能,增强机体免疫力并有效提升经济效益。田跃等[65]研究了GSPs对肉鸡生长性能、免疫功能和经济效益的影响,分别在基础饲粮中添加50、100和200 mg/kg的GSPs,结果表明,试验组肉鸡血清的免疫球蛋白A(immunoglobulin A,IgA)、免疫球蛋白G(immunoglobulin G,IgG)、免疫球蛋白M(immunoglobulin,IgM)、补体3和补体4含量均显著高于对照组,试验组胸腺指数、脾脏指数相较于对照组有所提高,但差异不显著;该研究发现GSPs可提高肉鸡的体增重和饲料利用率,增强机体免疫力,且以添加200 mg/kg GSPs效果较明显,对免疫器官指数无不良影响,提示GSPs可能对肉鸡的免疫功能有潜在的正面影响。另一项在蛋鸡上的研究在基础饲粮中分别添加200(G2组)和300 mg/kg GSPE(G3组),开展为期60 d的饲养试验,结果发现,与对照组相比,G3组产蛋率、平均蛋重和平均日采食量显著提高,料蛋比显著降低;G3血清SOD活性显著提高,而G2组和G3组血清中的多种炎症因子含量虽有下降但差异不显著,这表明在产蛋高峰后期,适量添加GSPE能显著提高蛋鸡的生产性能和血清SOD活性,可能对蛋鸡健康产生积极影响[66]
而在鹅饲粮中添加PACs的研究主要集中在肠道微生态方面,PACs有助于提高有益菌群的丰度,提高乙酸等代谢物的含量。任继武等[67]通过微生物和代谢组学方法揭示了GSPs对鹅肠道微生态环境的调节作用,饲粮中添加GSPs对鹅的肠道菌群组成和盲肠代谢物有显著影响,具体表现为提高了有益菌属如梭菌UCG-014的相对丰度,降低了潜在有害菌的相对丰度,同时在不同剂量GSPs添加组中发现了18~23种差异代谢物,这些代谢物主要通过β-丙氨酸代谢、精氨酸和脯氨酸代谢以及丙酸盐代谢等途径发挥作用,且添加GSPs显著提高了鹅盲肠中乙酸和丙酸含量。

4.3 PACs在反刍动物生产中的应用

在反刍动物生产中,饲粮添加PACs不仅可以有效改善肠道、肝脏等的氧化应激,对肉品质具有显著改善作用,还可以改善公牛的精液品质。Mu等[68]探究了GSPs对高精饲粮饲养羔羊结肠上皮局部炎症的影响,分为4组:对照组饲喂高精料饲粮(精粗比为7∶3),试验组分别饲喂高精料饲粮+10(LGSP组)、20(MGSP组)和40 mg/kg BW(HGSP组)GSPs,结果表明MGSP组和HGSP组血浆TNF-α和IL-1β含量显著低于对照组和LGSP组,MGSP组和HGSP组结肠IL-1β含量也低于对照组;结肠组织代谢组学分析结果显示,GSPs可上调肌酸、甜菜碱、柠檬酸和谷胱甘肽含量,下调花生四烯酸、脂素B4和12(R)-羟基二十碳四烯酸[12(R)-HETE]含量;因此,GSPs通过增加能量代谢、氨基酸代谢、抗氧化代谢和抑制花生四烯酸代谢,减轻了高精饲粮诱导的结肠上皮炎症反应。而牟春堂等[69]的另一项研究评价了GSPs对高精料育肥绵羊肝脏形态结构、功能、抗氧化能力及炎症反应的影响,并通过非靶向代谢组学分析肝脏的代谢变化,结果发现饲粮中添加10~40 mg/kg GSPs能有效缓解肝脏组织损伤,随着GSPs添加量的提高,肝脏组织中髓过氧化物酶(myeloperoxidase,MPO)活性线性降低,炎症因子IL-1β、IL-6和TNF-α含量线性降低;GSPs可能通过调节肝脏脂质代谢、胆碱代谢及肝细胞自噬,共同应对肝脏的炎性反应和氧化应激,缓解炎性损伤。山羊上的一项研究表明,饲粮适量添加GSPs能显著提升海南黑山羊的生长性能和肉品质,增强其抗氧化能力,对改善肌肉品质具有积极作用,该研究在基础饲粮中添加20 mg/kg BW的GSPs,在3个月的试验期结束时,试验组黑山羊的体增重、屠宰率和熟肉率以及肌肉红度值等肉质指标均有显著改善,同时总超氧化物歧化酶等血清抗氧化酶活性提高,肌肉滴水损失和剪切力降低,肌肉粗蛋白质含量显著增加[70]。另外一项研究则揭示了GSPs在牛上应用具有改善公牛精液品质的作用,在公牛饲粮中添加20 mg/kg BW的GSPs持续60 d,然后测量公牛的生殖性能和抗氧化指标,结果显示,饲粮添加GSPs后,公牛的精子运动性提高,精子畸形率降低,血清中抗氧化酶活性增强,MDA产生被抑制[71]

5 小结与展望

PACs作为一种具有多种生物活性的绿色天然产物,在抗炎领域具有广泛的应用前景。PACs不仅能够抑制氧化应激,调节炎症因子的水平,还能够通过抑制相关炎症通路来调节炎症进程,促进巨噬细胞的极化来发挥抗炎作用,其调节肠道炎症、缓解肝脏炎症、修复肾脏验证等抗炎活性的机制,为炎症性疾病的预防和改善提供了新的可能性。同时,PACs具有来源广泛、绿色无抗以及安全高效等优点,使其在畜牧业领域具有宽广的应用前景。在幼龄阶段,PACs可缓解断奶仔猪和高精料饲养羔羊的肠道炎症,并提高生长性能;在育肥阶段,PACs能够促进育肥猪肌肉纤维的转化,显著改善黑山羊的肉质,提高肉鸡的体增重和饲料转化率;在繁殖阶段,PACs能够提高蛋鸡产蛋率和平均蛋重,降低料蛋比,提高公牛精液品质。由此可见,PACs能有效改善畜禽肠道健康,维持肠道菌群的平衡,在提高畜禽生长性能及改善畜产品品质方面也有突出作用。因此,PACs在动物饲料中具有较高的应用价值。然而,对于育肥猪、肉牛等饲养周期较长的经济动物,PACs的最适添加量及最佳补充阶段还需进一步明确,以期达到经济效益最大化。除此之外,除了从葡萄籽提取外,PACs是否还有其他更加经济、高效的来源及提取方式也值得进一步探究。
[1]
FINE A M. Oligomeric proanthocyanidin complexes:history,structure,and phytopharmaceutical applications[J]. Alternative Medicine Review, 2000, 5(2):144-151.

[2]
RAUF A, IMRAN M, ABU-IZNEID T, et al. Proanthocyanidins:a comprehensive review[J]. Biomedicine & Pharmacotherapy, 2019, 116:108999.

[3]
CHEN L, HU S L, XIE J, et al. Proanthocyanidins-mediated Nrf2 activation ameliorates glucocorticoid-induced oxidative stress and mitochondrial dysfunction in osteoblasts[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:9102012.

[4]
LOKMAN M S, ZAAFAR D, ALTHAGAFI H A, et al. Antiulcer activity of proanthocyanidins is mediated via suppression of oxidative,inflammatory,and apoptotic machineries[J]. Journal of Food Biochemistry, 2022, 46(2):e14070.

[5]
WU Y, MA N, SONG P X, et al. Grape seed proanthocyanidin affects lipid metabolism via changing gut microflora and enhancing propionate production in weaned pigs[J]. The Journal of Nutrition, 2019, 149(9):1523-1532.

[6]
XU Y, HUANG Y J, CHEN Y Y, et al. Grape seed proanthocyanidins play the roles of radioprotection on normal lung and radiosensitization on lung cancer via differential regulation of the MAPK signaling pathway[J]. Journal of Cancer, 2021, 12(10):2844-2854.

DOI PMID

[7]
YU A Y, TANG C M, WANG S T, et al. Effects of dietary supplementation with mulberry leaf powder on the growth performance,lipid metabolism parameters,immunity indicators,and gut microbiota of dogs[J]. Metabolites, 2023, 13(8):918.

[8]
NIE F X, LIU L L, CUI J M, et al. Oligomeric proanthocyanidins:an updated review of their natural sources,synthesis,and potentials[J]. Antioxidants, 2023, 12(5):1004.

[9]
GU L W, KELM M A, HAMMERSTONE J F, et al. Screening of foods containing proanthocyanidins and their structural characterization using LC-MS/MS and thiolytic degradation[J]. Journal of Agricultural and Food Chemistry, 2003, 51(25):7513-7521.

PMID

[10]
SHARMA P K, ROMANCZYK L J,Jr, KONDAVETI L, et al. Total synthesis of proanthocyanidin A1,A2,and their stereoisomers[J]. Organic Letters, 2015, 17(10):2306-2309.

[11]
KONDO K, KURIHARA M, FUKUHARA K, et al. Conversion of procyanidin B-type (catechin dimer) to A-type:evidence for abstraction of C-2 hydrogen in catechin during radical oxidation[J]. Tetrahedron Letters, 2000, 41(4):485-488.

[12]
ANDERSEN-CIVIL A I S, LEPPÄ M M, THAMSBORG S M, et al. Structure-function analysis of purified proanthocyanidins reveals a role for polymer size in suppressing inflammatory responses[J]. Communications Biology, 2021, 4(1):896.

[13]
WANG N, CHEN W X, CUI C X, et al. The peanut skin procyanidins attenuate DSS-induced ulcerative colitis in C57BL/6 mice[J]. Antioxidants, 2022, 11(11):2098.

[14]
MIRANDA-HERNÁNDEZ A M, MUÑIZ-MÁRQUEZ D B, WONG-PAZ J E, et al. Characterization by HPLC-ESI-MS2 of native and oxidized procyanidins from litchi (Litchi chinensis) pericarp[J]. Food Chemistry, 2019, 291:126-131.

[15]
GU L W, KELM M A, HAMMERSTONE J F, et al. Concentrations of proanthocyanidins in common foods and estimations of normal consumption[J]. The Journal of Nutrition, 2004, 134(3):613-617.

[16]
MERKYTĒ V, LONGO E, JOURDES M, et al. High-performance liquid chromatography-hydrogen/deuterium exchange-high-resolution mass spectrometry partial identification of a series of tetra- and pentameric cyclic procyanidins and prodelphinidins in wine extracts[J]. Journal of Agricultural and Food Chemistry, 2020, 68(11):3312-3321.

DOI PMID

[17]
YANG H X, TUO X X, WANG L B, et al. Bioactive procyanidins from dietary sources:the relationship between bioactivity and polymerization degree[J]. Trends in Food Science & Technology, 2021, 111:114-127.

[18]
GIL-CARDOSO K, GINÉS I, PINENT M, et al. Chronic supplementation with dietary proanthocyanidins protects from diet-induced intestinal alterations in obese rats[J]. Molecular Nutrition & Food Research, 2017, 61(8):1601039.

[19]
AMER M A, OTHMAN A I, EL-MISSIRY M A, et al. Proanthocyanidins attenuated liver damage and suppressed fibrosis in CCl4-treated rats[J]. Environmental Science and Pollution Research International, 2022, 29(60):91127-91138.

[20]
GAO P X, FANG L Y, PAN Y C, et al. Effect of grape seed proanthocyanidins on fat metabolism and adipocytokines in obese rats[J]. Metabolites, 2023, 13(4):568.

[21]
FELDMAN F, KOUDOUFIO M, EL-JALBOUT R, et al. Cranberry proanthocyanidins as a therapeutic strategy to curb metabolic syndrome and fatty liver-associated disorders[J]. Antioxidants, 2022, 12(1):90.

[22]
HU B H, LIU S Q, LUO Y Y, et al. Procyanidin B2 alleviates uterine toxicity induced by cadmium exposure in rats:the effect of oxidative stress,inflammation,and gut microbiota[J]. Ecotoxicology and Environmental Safety, 2023, 263:115290.

[23]
吕晓楠, 宗春辉, 宋光明. 低聚原花青素通过抑制TLR4/NF-κB通路对糖尿病肾病大鼠的肾脏保护和炎症抑制作用[J]. 武警医学, 2023, 34(4):305-309.

LV X N, ZONG C H, SONG G M. Effects of oligomeric procyanidins on renal function protection and inflammation inhibition in diabetic kidney disease rats by inhibiting TLR 4/NF-κB pathway[J]. Medical Journal of the Chinese People’s Armed Police Forces, 2023, 34(4):305-309. (in Chinese)

[24]
HUANG T, ZHANG Y R, ZHANG W J, et al. Attenuation of perfluorooctane sulfonate-induced steatohepatitis by grape seed proanthocyanidin extract in mice[J]. BioMed Research International, 2020, 2020:8818160.

[25]
GOSTNER J M, BECKER K, FUCHS D, et al. Redox regulation of the immune response[J]. Redox Report:Communications in Free Radical Research, 2013, 18(3):88-94.

[26]
NALLATHAMBI R, POULEV A, ZUK J B, et al. Proanthocyanidin-rich grape seed extract reduces inflammation and oxidative stress and restores tight junction barrier function in Caco-2 colon cells[J]. Nutrients, 2020, 12(6):1623.

[27]
BARBE A, RAMÉ C, MELLOUK N, et al. Effects of grape seed extract and proanthocyanidin B2 on in vitro proliferation,viability,steroidogenesis,oxidative stress,and cell signaling in human granulosa cells[J]. International Journal of Molecular Sciences, 2019, 20(17):4215.

[28]
CHEN L Q, HAO L, YANSHUO C, et al. Grape seed proanthocyanidins regulate mitophagy of endothelial cells and promote wound healing in mice through p-JNK/FOXO3a/ROS signal pathway[J]. Archives of Biochemistry and Biophysics, 2023, 749:109790.

[29]
LEE K E, BHARADWAJ S, YADAVA U, et al. Computational and in vitro investigation of (-)-epicatechin and proanthocyanidin B2 as inhibitors of human matrix metalloproteinase 1[J]. Biomolecules, 2020, 10(10):1379.

[30]
ZHOU Q, HAN X, LI R B, et al. Anti-atherosclerosis of oligomeric proanthocyanidins from Rhodiola rosea on rat model via hypolipemic,antioxidant,anti-inflammatory activities together with regulation of endothelial function[J]. Phytomedicine, 2018, 51:171-180.

[31]
FAN J W, LIU H R, WANG J W, et al. Procyanidin B2 improves endothelial progenitor cell function and promotes wound healing in diabetic mice via activating Nrf2[J]. Journal of Cellular and Molecular Medicine, 2021, 25(2):652-665.

DOI PMID

[32]
KOUDOUFIO M, FELDMAN F, AHMARANI L, et al. Intestinal protection by proanthocyanidins involves anti-oxidative and anti-inflammatory actions in association with an improvement of insulin sensitivity,lipid and glucose homeostasis[J]. Scientific Reports, 2021, 11(1):3878.

[33]
ZENG J Y, WENG Y M, LAI T L, et al. Procyanidin alleviates ferroptosis and inflammation of LPS-induced RAW264.7 cell via the Nrf2/HO-1 pathway[J]. Naunyn-Schmiedeberg’s Archives of Pharmacology, 2024, 397(6):4055-4067.

[34]
XU H Y, FENG X H, ZHAO P F, et al. Procyanidin A2 penetrates L-02 cells and protects against tert-butyl hydroperoxide-induced oxidative stress by activating Nrf2 through JNK and p38 phosphorylation[J]. Journal of Functional Foods, 2019, 62:103562.

[35]
SONG J H, LEE H J, KANG K S. Procyanidin C1 activates the Nrf2/HO-1 signaling pathway to prevent glutamate-induced apoptotic HT22 cell death[J]. International Journal of Molecular Sciences, 2019, 20(1):142.

[36]
ALHOUAYEK M, MUCCIOLI G G. COX-2-derived endocannabinoid metabolites as novel inflammatory mediators[J]. Trends in Pharmacological Sciences, 2014, 35(6):284-292.

DOI PMID

[37]
CAIVANO M, COHEN P. Role of mitogen-activated protein kinase cascades in mediating lipopolysaccharide-stimulated induction of cyclooxygenase-2 and IL-1 beta in RAW264 macrophages[J]. Journal of Immunology(Baltimore,Md.:1950), 2000, 164(6):3018-3025.

[38]
WADLEIGH D J, REDDY S T, KOPP E, et al. Transcriptional activation of the cyclooxygenase-2 gene in endotoxin-treated RAW 264.7 macrophages[J]. The Journal of Biological Chemistry, 2000, 275(9):6259-6266.

[39]
CHEN C C, SUN Y T, CHEN J J, et al. Tumor necrosis factor-alpha-induced cyclooxygenase-2 expression via sequential activation of ceramide-dependent mitogen-activated protein kinases,and IkappaB kinase 1/2 in human alveolar epithelial cells[J]. Molecular Pharmacology, 2001, 59(3):493-500.

[40]
DE GREGORIO R, IÑIGUEZ M A, FRESNO M, et al. Cot kinase induces cyclooxygenase-2 expression in T cells through activation of the nuclear factor of activated T cells[J]. The Journal of Biological Chemistry, 2001, 276(29):27003-27009.

[41]
LIU J T, HU S L, ZHU B Q, et al. Grape seed procyanidin suppresses inflammation in cigarette smoke-exposed pulmonary arterial hypertension rats by the PPAR-γ/COX-2 pathway[J]. Nutrition,Metabolism,and Cardiovascular Diseases, 2020, 30(2):347-354.

[42]
CHEN W C, HOSSEN M, LIU W T, et al. Grape seed proanthocyanidins inhibit replication of the dengue virus by targeting NF-κB and MAPK-mediated cyclooxygenase-2 expression[J]. Viruses, 2023, 15(4):884.

[43]
CHEN F Z, WANG H, ZHAO J, et al. Grape seed proanthocyanidin inhibits monocrotaline-induced pulmonary arterial hypertension via attenuating inflammation:in vivo and in vitro studies[J]. The Journal of Nutritional Biochemistry, 2019, 67:72-77.

[44]
王运帷, 杨花, 王志红, 等. 原花青素通过上调SIRT1表达抑制NF-κB通路减轻脂多糖诱导的小鼠RAW264.7巨噬细胞炎症反应[J]. 细胞与分子免疫学杂志, 2023, 39(10):878-883.

WANG Y W, YANG H, WANG Z H, et al. Proanthocyanidins alleviate lipopolysaccharide-induced inflammatory response by up-regulating SIRT1 expression and inhibiting NF-κB pathway in mouse RAW264.7 macrophages[J]. Chinese Journal of Cellular and Molecular Immunology, 2023, 39(10):878-883. (in Chinese)

[45]
HU Y H, WEI M, NIU Q, et al. Grape seed proanthocyanidin extract alleviates arsenic-induced lung damage through NF-κB signaling[J]. Experimental Biology and Medicine (Maywood,N.J.), 2019, 244(3):213-226.

[46]
KIM G O, PARK D H, BAE J S. Procyanidin B2 attenuates sepsis-induced acute lung injury via regulating hippo/Rho/PI3K/NF-κB signaling pathway[J]. International Journal of Molecular Sciences, 2023, 24(9):7930.

[47]
SEMMARATH W, SRISAWAD K, ARJSRI P, et al. Protective effects of proanthocyanidin-rich fraction from red rice germ and bran on lung cell inflammation via inhibition of NF-κB/NLRP3 inflammasome pathway[J]. Nutrients, 2023, 15(17):3793.

[48]
ZOU W J, LU Q Y, ZHU X, et al. Procyanidin B2 protects TR-iBRB2 cells against hyperglyc emia stress by attenuating oxidative stress and inflammasome activation via regulation of redoxosomes/NF-κB signaling[J]. Current Molecular Medicine, 2023, 23(10):1095-1103.

[49]
ZHANG L L, CHEN J, LIAO H J, et al. Anti-inflammatory effect of lipophilic grape seed proanthocyanidin in RAW 264.7 cells and a zebrafish model[J]. Journal of Functional Foods, 2020, 75:104217.

[50]
ZHAO Y M, XIE Y X, LI X L, et al. The protective effect of proanthocyanidins on the psoriasis-like cell models via PI3K/AKT and HO-1[J]. Redox Report, 2022, 27(1):200-211.

DOI PMID

[51]
QIAO C Y, LI Y, SHANG Y, et al. Management of gout-associated MSU crystals-induced NLRP3 inflammasome activation by procyanidin B2:targeting IL-1β and cathepsin B in macrophages[J]. Inflammopharmacology, 2020, 28(6):1481-1493.

[52]
VAN DEN BOSSCHE J, BAARDMAN J, OTTO N A, et al. Mitochondrial dysfunction prevents repolarization of inflammatory macrophages[J]. Cell Reports, 2016, 17(3):684-696.

DOI PMID

[53]
QIAO X, WANG H, HE Y L, et al. Grape seed proanthocyanidin ameliorates LPS-induced acute lung injury by modulating M2a macrophage polarization via the TREM2/PI3K/Akt pathway[J]. Inflammation, 2023, 46(6):2147-2164.

DOI PMID

[54]
TIAN Y, YANG C M, YAO Q Y, et al. Procyanidin B2 activates PPARγ to induce M2 polarization in mouse macrophages[J]. Frontiers in Immunology, 2019, 10:1895.

DOI PMID

[55]
SHI Y, ZHANG H J, LI S, et al. Procyanidin improves experimental colitis by regulating macrophage polarization[J]. Biomedicine & Pharmacotherapy, 2023, 165:115076.

[56]
PISTOL G C, BULGARU C V, MARIN D E, et al. Dietary grape seed meal bioactive compounds alleviate epithelial dysfunctions and attenuates inflammation in colon of DSS-treated piglets[J]. Foods, 2021, 10(3):530.

[57]
LIU J H, QIAO Y, YU B, et al. Functional characterization and toxicological study of proanthocyanidins in weaned pigs[J]. Toxins, 2023, 15(9):558.

[58]
FANG L Y, LI M Y, ZHAO L Y, et al. Dietary grape seed procyanidins suppressed weaning stress by improving antioxidant enzyme activity and mRNA expression in weanling piglets[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(4):1178-1185.

DOI PMID

[59]
LI Q H, YAN H S, LI H Q, et al. Effects of dietary supplementation with grape seed procyanidins on nutrient utilisation and gut function in weaned piglets[J]. Animal, 2020, 14(3):491-498.

DOI PMID

[60]
FENG Y D, CHEN X L, CHEN D W, et al. Dietary grape seed proanthocyanidin extract supplementation improves antioxidant capacity and lipid metabolism in finishing pigs[J]. Animal Biotechnology, 2023, 34(8):4021-4031.

[61]
ZHANG Y, ZHAI Y, WEI X X, et al. Effects of grape seed procyanidins on the lipid metabolism of growing-finishing pigs based on transcriptomics and metabolomics analyses[J]. Meat Science, 2024, 213:109504.

[62]
CRESCENTI A, DEL BAS J M, AROLA-ARNAL A, et al. Grape seed procyanidins administered at physiological doses to rats during pregnancy and lactation promote lipid oxidation and up-regulate AMPK in the muscle of male offspring in adulthood[J]. The Journal of Nutritional Biochemistry, 2015, 26(9):912-920.

[63]
XU M, CHEN X L, HUANG Z Q, et al. Effects of dietary grape seed proanthocyanidin extract supplementation on meat quality,muscle fiber characteristics and antioxidant capacity of finishing pigs[J]. Food Chemistry, 2022, 367:130781.

[64]
LI Y Q, FENG Y D, CHEN X L, et al. Dietary short-term supplementation of grape seed proanthocyanidin extract improves pork quality and promotes skeletal muscle fiber type conversion in finishing pigs[J]. Meat Science, 2024, 210:109436.

[65]
田跃, 董红刚, 沈泽锋. 葡萄籽原花青素对肉鸡生长性能、免疫功能和经济效益的影响[J]. 饲料研究, 2022, 45(12):28-31.

TIAN Y, DONG H G, SHEN Z F. Effect of grape seed proanthocyanidins on growth performance,immune function and economic benefit of broilers[J]. Feed Research, 2022, 45(12):28-31. (in Chinese)

[66]
张文辉, 李悦伊, 林柏羽, 等. 饲粮中添加葡萄籽提取物对产蛋高峰后期蛋鸡生产性能、血清抗氧化和抗炎能力的影响[J]. 饲料工业, 2024, 45(11):21-26.

ZHANG W H, LI Y Y, LIN B Y, et al. Effects of grape seed extract supplementation on production performance,serum antioxidant and anti-inflammatory capacity of laying hens in the late peak stage of egg laying[J]. Feed Industry, 2024, 45(11):21-26. (in Chinese)

[67]
任继武, 邓超, 乔君毅, 等. 基于微生物和代谢组学研究葡萄籽原花青素对鹅肠道健康的影响[J]. 动物营养学报, 2024, 36(2):968-980.

DOI

REN J W, DENG C, QIAO J Y, et al. Effects of grape seed procyanidins on intestine health of geese based on microbiology and metabolomics[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):968-980. (in Chinese)

DOI

[68]
MU C T, ZHANG X Z, ZHANG J X, et al. Procyanidins regulate colonic metabolome,inflammatory response and antioxidant capacity in lambs fed a high-concentrate diet[J]. Journal of Animal Physiology and Animal Nutrition, 2023, 107(4):1006-1018.

[69]
牟春堂, 谢蕴哲, 申玉萍, 等. 葡萄籽原花青素对高精料育肥绵羊肝脏炎症反应、抗氧化功能的影响及代谢组学分析[J]. 动物营养学报, 2024, 36(7):4447-4461.

DOI

MU C T, XIE Y Z, SHEN Y P, et al. Effects of grape seed proanthocyanidins on liver inflammation and antioxidant function of fattening sheep fed a high-concentrate diet and metabolomic analysis[J]. Chinese Journal of Animal Nutrition, 2024, 36(7):4447-4461. (in Chinese)

DOI

[70]
云艳虹, 石惠宇, 张元锌, 等. 葡萄籽原花青素对海南黑山羊生长性能、屠宰性能、肉品质及抗氧化性能的影响[J]. 饲料研究, 2023, 46(23):1-6.

YUN Y H, SHI H Y, ZHANG Y X, et al. Effect of grape seed proanthocyanidins on growth performance,slaughter performance,meat quality and antioxidant performance of Hainan black goats[J]. Feed Research, 2023, 46(23):1-6. (in Chinese)

[71]
WANG M, WU S L, YANG B S, et al. Grape seed proanthocyanidins improve the quality of fresh and cryopreserved semen in bulls[J]. Animals, 2023, 13(17):2781.

文章导航

/