研究论文

不同体重琅琊鸡盲肠菌群多样性、短链脂肪酸含量以及微生物差异功能预测分析

  • 李学冯 , 1, 2 ,
  • 胡希怡 1 ,
  • 张宁波 1 ,
  • 范自强 3 ,
  • 郑全胜 4 ,
  • 扈鹏帅 3 ,
  • 吕慎金 1 ,
  • 王慧 , 1, * ,
  • 李永洙 , 1, *
展开
  • 1 临沂大学农林科学学院,临沂 276000
  • 2 山东兰山沂蒙鸡科技小院,临沂 276000
  • 3 临沂市兰山区动物疫病预防控制中心,临沂 276000
  • 4 山东琅琊鸡种业有限公司,临沂 276000
*王 慧,教授,硕士生导师,E-mail: ;
李永洙,教授,硕士生导师,E-mail:

李学冯(2000—),男,山东临沂人,硕士研究生,从事家禽育种与营养生理研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2024-08-22

  网络出版日期: 2025-03-13

基金资助

国家自然科学基金项目(31802105)

2022年临沂大学“雁阵式”高水平学科-接续培育学科-畜牧学(51723007)

山东省农业重大应用技术创新项目重大项目(20186243)

Prediction and Analysis of Cecal Microflora Diversity, Short Chain Fatty Acids Contents and Microbial Differential Function of Langya Chickens with Different Body Weights

  • LI Xuefeng , 1, 2 ,
  • HU Xiyi 1 ,
  • ZHANG Ningbo 1 ,
  • FAN Ziqiang 3 ,
  • ZHENG Quansheng 4 ,
  • HU Pengshuai 3 ,
  • LYU Shenjin 1 ,
  • WANG Hui , 1, * ,
  • LI Yongzhu , 1, *
Expand
  • 1 College of Agriculture and Forestry Science, Linyi University, Linyi 276000, China
  • 2 Shandong Lanshan Yimeng Chicken Science and Technology Courtyard,Linyi 276000,China
  • 3 Linyi Lanshan District Animal Disease Prevention and Control Center, Linyi 276000, China
  • 4 Shandong Langya Chicken Seed Industry Co., Ltd., Linyi 276000, China
*WANG Hui, professor, E-mail: ;
LI Yongzhu, professor, E-mail:

Received date: 2024-08-22

  Online published: 2025-03-13

摘要

本试验旨在分析相同饲养条件下不同体重琅琊鸡盲肠菌群多样性、短链脂肪酸含量以及微生物功能差异性,为琅琊鸡的健康养殖提供理论依据。本研究采用单因子试验设计,将160日龄琅琊鸡母鸡450只,单笼饲养至300日龄,试验结束按照平均体重上下10%选取符合条件范围的鸡只,分3组,A组为高于平均体重10%[(1 790.00±60.00) g]、B组为平均体重[(1 630.00±60.00) g]和C组为低于平均体重10%[(1 460.00±60.00) g],每组5个重复,每个重复9只,共135只,并从每组中随机挑选6只鸡,屠宰并收集盲肠内容物,采用Illumina MiSeq测序技术检测盲肠菌群多样性,用气相色谱法测定其短链脂肪酸含量。结果表明: 1)300日龄时,各组间体重与平均日增重存在显著差异(P<0.05),且A组显著高于B组(P<0.05),B组显著高于C组(P<0.05);另外,A组平均日采食量显著高于C组(P<0.05)。2)在门水平上,A组厚壁菌门相对丰度极显著高于B组(P<0.01),脱硫杆菌门相对丰度显著高于B组(P<0.05),并且B组厚壁菌门相对丰度显著高于C组(P<0.05);A组厚壁菌门与拟杆菌门相对丰度的比值(F/B)显著高于其他组(P<0.05)。在属水平上,A组普雷沃氏菌属相对丰度极显著高于B组(P<0.01);A组丹毒梭状芽孢杆菌属相对丰度显著低于B组(P<0.05)。3)A组盲肠内容物中乙酸、丙酸、丁酸、戊酸含量显著高于其他组(P<0.05),且B组显著高于C组(P<0.05);B组异丁酸含量显著高于A组和C组(P<0.05)。另外,弯曲菌属相对丰度与乙酸含量呈显著正相关(P<0.05),且与丙酸、丁酸、异丁酸、异戊酸和戊酸含量呈极显著正相关(P<0.01);嗜麦芽窄食单胞菌属相对丰度与异丁酸含量呈显著正相关(P<0.05);硫单胞菌属相对丰度与乙酸含量呈极显著正相关(P<0.01),且与异丁酸含量呈显著正相关(P<0.05)。4)KEGG代谢通路和16S功能预测数据库对比发现,与B组和C组比较,A组在碳水化合物代谢、能量代谢、氨基酸代谢、维生素代谢等通路被显著富集(P<0.05),功能集中在β-半乳糖苷酶的K01190基因和β-葡萄糖苷酶的K05349基因以及甲基接受趋化蛋白的K03406显著上调(P<0.05)。综上所述,体重较大的琅琊鸡盲肠菌群组成的多样性和结构上较为丰富,其有机酸代谢产物的能力高于其他个体,并显著富集营养物质代谢通路,且通过酶类或功能蛋白参与特定代谢通路的调节途径,促进其生产发育。

本文引用格式

李学冯 , 胡希怡 , 张宁波 , 范自强 , 郑全胜 , 扈鹏帅 , 吕慎金 , 王慧 , 李永洙 . 不同体重琅琊鸡盲肠菌群多样性、短链脂肪酸含量以及微生物差异功能预测分析[J]. 动物营养学报, 2025 , 37(3) : 1794 -1809 . DOI: 10.12418/CJAN2025.152

Abstract

The purpose of this study was to analyze the diversity of cecum microflora, short chain fatty acid contents and microbial function of Langya chickens with different body weights under the same feeding conditions, and to provide theoretical basis for healthy breeding of Langya chickens. In this study, a single factor experimental design was adopted. A total of 450 Langya chickens at 160 days of age were raised in a single cage until 300 days of age. At the end of the experiment, chickens within the eligible range were selected according to 10% above or below the average body weight and divided into 3 groups. Group A was 10% above the average body weight [(1 790.00±60.00) g], group B was below the average body weight [(1 630.00±60.00) g], and group C was 10% below the average body weight [(1 460.00±60.00) g], with 5 replicates per group and 9 animals per replicate, a total of 135 animals. In addition, 6 chickens were randomly selected from each group, slaughtered and cecal contents were collected, Illumina MiSeq sequencing technology was used to detect the diversity of cecal microflora, and short chain fatty acid content was determined by gas chromatography. The results showed as follows: 1) at 300 days of age, there were significant differences in body weight and average daily gain among all groups (P<0.05), and group A was significantly higher than group B (P<0.05), group B was significantly higher than group C (P<0.05); in addition, the average daily feed intake of group A was significantly higher than that of group C (P<0.05). 2) At the phylum level, the relative abundance of Firmicutes in group A was significantly higher than that in group B (P<0.01), the relative abundance of Devuricobacteria was significantly higher than that in group B (P<0.05), and the relative abundance of Firmicutes in group B was significantly higher than that in group C (P<0.05). The ratio of Firmicutes to Bacteroidetes (F/B) in group A was significantly higher than that in other groups (P<0.05). At the genus level, the relative abundance of Prevotella in group A was significantly higher than that in group B (P<0.01). The relative abundance of Erysipelatoclostridium in group A was significantly lower than that in group B (P<0.05). 3) The contents of acetic acid, propionic acid, butyric acid and valeric acid in cecal contents of group A were significantly higher than those of other groups(P<0.05), and those of group B were significantly higher than those of group C(P<0.05); the content of isobutyric acid in group B was significantly higher than that in group A and group C (P<0.05). In addition, the relative abundance of Campylobacter was significantly positively correlated with the content of acetic acid (P<0.05), and was significantly positively correlated with the content of propionic acid, butyric acid, isobutyric acid, isovaleric acid and valeric acid (P<0.01). The relative abundance of Stenotrophomonas was positively correlated with the content of isobutyric acid (P<0.05). The relative abundance of Thiomonas was significantly positively correlated with acetic acid content (P<0.01) and isobutyric acid content (P<0.05). 4) KEGG metabolic pathway and 16S function prediction database comparison found that compared with group B and group C, group A was significantly enriched in carbohydrate metabolism, energy metabolism, amino acid metabolism, vitamin metabolism and other pathways, and the function was concentrated in β-galactosidase K01190 gene and β-glucosidase K05349 gene and methyl acceptor chemokine K03406 was significantly up-regulated (P<0.05). In summary, the cecal microflora of Langya chicken with larger body weight is more diverse and structurally abundant. The ability of its organic acid metabolites is higher than that of other individuals, and it is significantly enriched in nutrient metabolic pathways, and participates in the regulation of specific metabolic pathways through enzymes or functional proteins to promote its production and development.

家禽的生长受到品种、环境、营养水平等因素制约,而肠道菌群在宿主的营养物质消化吸收及生长发育方面起至关重要的作用,家畜生长速度的快慢与肠道菌群组成差异密切相关。盲肠内富含种类繁多的微生物,它们通过参与能量、碳水化合物、脂肪和氨基酸等营养物质代谢来影响个体的生长发育[1]。有研究表明,肠道菌群对宿主的物质代谢[2]、肥胖[3]和免疫功能[4-5]等均有影响。在肉鸡盲肠菌群群落特征与生长势的相关性研究中发现,相同日龄的鸡群但生长性能有显著差异的肉鸡,其菌群结构存在显著差异[6-7];另外,短链脂肪酸(SCFA)是饲粮中纤维素、未被消化的淀粉等物质由盲肠或结肠中菌群发酵产生[8],而SCFA产生的酸性环境能够抑制肠道中病原菌的生长[9],并且能够通过刺激上皮细胞的增殖来促进盲肠的发育[10]。因此,其含量变化是肠道中菌群变化的重要指标之一。以往研究虽已发现长势不同的肉鸡其肠道菌群组成也有差异,但二者相关性如何,且与肠道菌群代谢产物SCFA的相关性如何研究较少。琅琊鸡是我国优质肉鸡的宝贵地方品种资源,利用高通量测序技术对琅琊鸡生长快慢与盲肠菌群及其发酵产物SCFA相关性和代谢通路的系统研究尚未见报道。因此,本试验对笼养琅琊鸡盲肠菌群16SrDNA基因进行扩增子测序分析,探究个体生长速度差异与宿主盲肠菌群多样性及其发酵产物SCFA相关性和微生物功能差异性,为地方品种资源琅琊鸡生长发育机制研究提供理论依据。

1 材料与方法

1.1 试验动物与试验设计

动物试验伦理批准编号:LYU20240112;审批机构:临沂大学科学技术处。
试验用琅琊鸡由山东琅琊鸡种业有限公司养殖场提供。试验为单因素试验设计,将450只带有数字编号、体重相似的琅琊鸡(母鸡),从160日龄饲养至300日龄,试验结束按照平均体重上下10%选取符合条件范围的鸡只,分3组,即A组为高于平均体重10%[(1 790.00±60.00) g]、B组为平均体重[(1 630.00±60.00) g]和C组为低于平均体重10%[(1 460.00±60.00) g],每组5个重复,每个重复9只,共135只,随后于A组、B组和C组中挑选平均体重最相近的6只鸡,解剖取盲肠内容物。

1.2 试验饲粮

基础饲粮组成及营养水平见表1。饲粮中钙、总磷和粗蛋白质含量分别参照GB/T 6436—2018[11]、GB/T 6437—2018[12]、GB/T 6432—2018[13]的方法进行测定。代谢能、有效磷和氨基酸为计算值,参照《中国饲料成分及营养价值表(2022年第33版)》[14]计算。
表1 基础饲粮组成及营养水平(风干物质)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Contents
原料Ingredients
玉米Corn 58.94
豆粕Soybean meal 1.86
麸皮Rice bran 8.61
玉米胚芽粕Corn germ meal 5.00
干酒糟及其可溶物DDGS 10.00
石粉Limestone 5.07
玉米蛋白粉Corn gluten meal 5.00
磷酸氢钙CaHPO4 1.12
DL-蛋氨酸DL-Met 0.03
食盐NaCl 0.32
70%赖氨酸70% Lys 0.50
70%氯化胆碱70% choline chloride 0.05
预混料Premix1) 3.50
合计Total 100.00
营养水平Nutrient levels2)
粗蛋白质CP 16.50
代谢能ME/(MJ/kg) 12.82
钙Ca 3.90
总磷TP 0.60
有效磷AP 0.44
赖氨酸Lys 0.79
蛋氨酸Met 0.39
蛋氨酸+胱氨酸Met+Cys 0.66
苏氨酸Thr 0.59

1) 预混料为每千克饲粮提供 Premix provided the following per kilogram of the diet:VA 1 000 IU,VD 3 500 IU,VE 20 IU,VK 32 mg,硫胺素 thiamine 1 mg,核黄素 riboflavin 5 mg,泛酸钙 calcium pantothenate 6 mg,烟酸 nicotinic acid 30 mg,吡哆醇 pyridoxine 6 mg,生物素 biotin 1.5 mg,叶酸 folic acid 2.5 mg,VB12 2 mg,胆碱 choline 500 mg,Mn 65 mg,I 0.8 mg,Fe 60 mg,Cu 8 mg,Zn 80 mg,Se 0.3 mg。

2) 代谢能、有效磷和氨基酸为计算值,其余为实测值。ME, AP and AA were calculated values, while the rest were measured values.

1.3 饲养管理

饲养试验各组鸡群在全封闭式鸡舍立体3层阶梯单笼养条件下饲养,参考琅琊鸡的饲养标准[15],试验期每天饲喂2次(08:00和15:00),自由饮水,每日光照16 h,试验期免疫程序按照常规程序进行。

1.4 测定方法

1.4.1 样品的采集

试验至300日龄时在A组、B组和C组中分别随机选取6只鸡进行屠宰,屠宰时采用颈静脉放血,屠宰并打开腹腔后,立即结扎盲肠,并将其放入无菌操作台取盲肠内容物,随后放入-80 ℃冰箱保存备用。

1.4.2 生长性能测定

在160~300日龄期间,观察各组单笼鸡群的健康状况,于300日龄试验结束时08:00开始进行空腹称重(禁食12 h,饮水不断),且记录整个试验期间各组鸡耗料量,每次随机抽测各组中60只,300日龄时追溯编号为不同体重鸡群的45只鸡的初始体重(IBW)、终末体重(FBW)、采食量数据,计算平均日增重(ADG)和平均日采食量(ADFI)。计算公式如下:
ADG(g/d)=(FBW-IBW)/试验天数;
ADFI(g/d)=总采食量/试验天数。

1.4.3 盲肠细菌基因组DNA提取和PCR扩增

采用CTAB法提取样本DNA,之后利用琼脂糖凝胶电泳和Agilent 5400检测DNA的纯度和浓度,取适量的样本DNA于离心管中,使用无菌水稀释样本至1 ng/μL。以稀释后的基因组DNA为模板,使用16S V3~V4 rDNA通用引物341F(5'-CCTAYGGGRBGCASCAG-3')和806R(5'-GGACTACNNGGGTATCTAAT- 3')并带Barcode的特异引物,New England Biolabs公司的Phusion High-Fidelity PCR Master Mix with GC Buffer和高效高保真酶进行PCR,确保扩增效率和准确性,确认文库合格后,送至诺禾致源公司使用HiSeq2 500 PE250(美国)进行16S rRNA高通量测序。

1.4.4 盲肠内容物SCFA含量测定

参照Xiao等[16]方法,取0.1 g左右盲肠内容物,置于1.5 mL离心管中,加入9倍体积(mL)的超纯水,混匀后3 996×g离心10 min,取上清液0.5 mL装于1.5 mL离心管中,再加入0.2 mL的25%(质量体积分数)偏磷酸与巴豆酸混合溶液,-20 ℃过夜保存。上样前使用0.22 μm滤膜进行过滤,滤液3 996×g离心10 min,然后取500 μL上清液于气相色谱仪测定SCFA含量。

1.5 统计与分析

数据以平均值±标准差表示,用SAS 8.0统计软件进行单因子方差分析,以Duncan氏法进行多重比较;利用PROC CORR过程进行Pearson相关分析。

2 结果

2.1 不同体重对琅琊鸡生长性能的影响

表2可知,160日龄时A组、B组和C组间IBW差异不显著(P<0.05),而在300日龄时各组间ADG存在显著差异,A组显著高于B组和C组(P<0.05);此外,A组ADFI显著高于C组(P<0.05)。
表2 不同体重的琅琊鸡平均日增重及采食量的比较分析

Table 2 Comparative analysis of average daily gain and feed intake of Langya chickens with different body weights (n=45) g

项目Items 初始体重IBW 终末体重FBW 平均日增重ADG 平均日采食量ADFI
组别Groups
A 1 158.00±23.09 1 799.83±67.60a 4.58±0.50a 56.02±2.31a
B 1 165.33±24.47 1 636.17±53.86b 3.36±0.33b 52.36±5.05ab
C 1 171.33±20.74 1 400.33±31.77c 1.64±0.26c 47.56±4.69b
PP-value 0.807 6 0.032 5 0.029 5 0.041 7

同列数据肩标不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same column, values with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean significant difference (P<0.01). The same as below.

2.2 不同体重对琅琊鸡盲肠菌群组成的影响

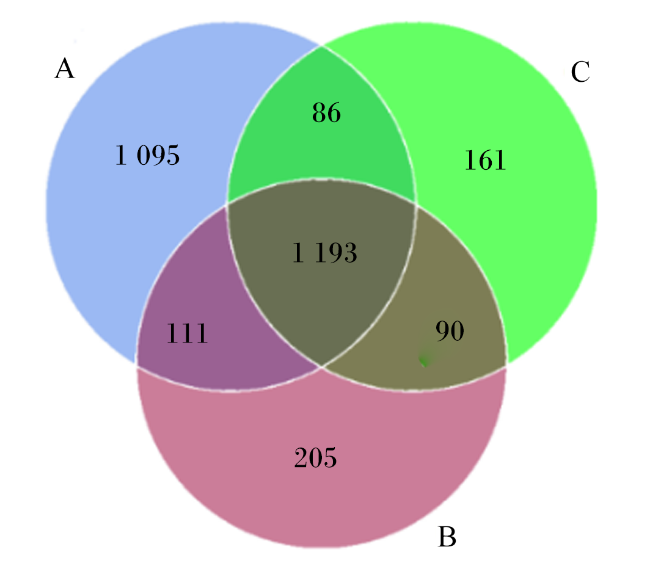
图1可知,3种不同体重下,共采集18只个体的盲肠内容物样品,测序后平均每个样品中有52 417条序列。根据97%的相似性阈值,聚类为5 378个操作分类单位(OTUs)(去除叶绿体与线粒体),注释到56门,128纲,223目,281科,403属,199种,其中,A、B、C组共有的OTUs数为1 193个,其中A组特有的OTUs数为1 095个,B组特有的OTUs数为205个,C组特有的OTUs数为161个。
图1 不同体重琅琊鸡肠道菌群韦恩图

A、B、C分别为A组、B组、C组。下图同。

Fig.1 Venn diagram of intestinal microflora of Langya chickens with different body weights

A, B and C are group A, group B and group C, respectively. The same as below.

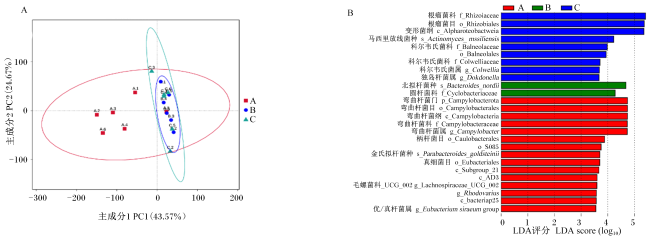
图2-A可知,在β多样性主成分分析(PCA)结果表明,主成分1(PC1)占总变异的43.57%,主成分2(PC2)占总变异的24.67%。可见,B组和C组琅琊鸡盲肠菌群更为相似,单独聚为一簇,而与A组盲肠菌群群落相距较远。这说明B组、C组和A组的肠道菌群组成有显著差异。另外,线性判别分析(LDA)默认设置LDA评分的筛选值为3.5,图2-B分析结果显示,A组、B组和C组盲肠菌群相对丰度存在差异的菌群数量分别为10种、2种和6种,其中A组弯曲杆菌门、弯曲杆菌目、弯曲杆菌纲、弯曲杆菌科和弯曲杆菌属相对丰度较高;B组北拟杆菌种和圆杆菌科相对丰度最高;C组根瘤菌科、根瘤菌目和α变形菌纲相对丰度最高。上述组间物种在相对丰度上有显著差异,可作为对应体重琅琊鸡的潜在生物标志物。
图2 不同体重琅琊鸡盲肠菌群的主成分分析(A)和线性判别分析(LDA)(B)

Fig.2 Principal component analysis (A) and linear discriminant analysis (B) of cecal microflora of Langya chickens with different body weights

2.3 不同体重对琅琊鸡盲肠菌群α多样性指数的影响

表3可知,根据α多样性分析,A组菌群群落的ACE、Chao1指数均显著高于B组(P<0.05),极显著高于C组(P<0.01);并且A组Goods_coverage指数均极显著高于B组和C组(P<0.01);而A组PD_whole_tree、Shannon指数显著高于C组(P<0.05)。这说明A组鸡盲肠菌群多样性和丰富度显著高于其他组,而B组与C组间差异不明显,且各组评价测序结果均超过0.995,能代表样本中菌群的真实状况。
表3 不同体重的琅琊鸡盲肠菌群α多样性指数分析

Table 3 Analysis of α diversity indexes of cecal microflora of Langya chickens with different body weights (n=18)

项目
Items
ACE指数
ACE index
Chao1指数
Chao1 index
Goods coverage指数
Goods coverage index
PD whole tree指数
PD whole tree index
Shannon指数
Shannon index
组别Groups
A 1 290.73±24.85Aa 1 348.51±38.57Aa 0.995±0.014Bb 91.01±2.84a 9.457±0.212a
B 1 087.76±36.74Ab 1 065.16±45.80Ab 0.996±0.032Aa 76.62±3.72ab 7.186±0.347b
C 994.49±65.21Bb 982.15±25.87Bb 0.996±0.024Aa 72.95±2.52b 6.940±0.124b
PP-value 0.003 6 0.004 5 0.008 1 0.034 5 0.039 4

2.4 不同体重对琅琊鸡盲肠菌群相对丰度的影响

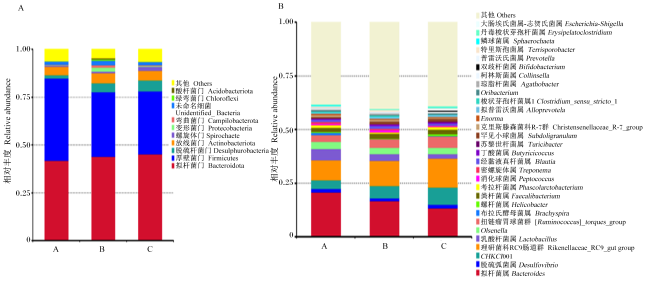
选取不同体重琅琊鸡盲肠内容物中门水平排名前5的物种进行相对丰度分析,图3-A表4结果显示,拟杆菌门(40.55%)、厚壁菌门(36.57%)、脱硫杆菌门(5.15%)、放线菌门(4.91%)、螺旋体门(1.2 %)是盲肠菌群的优势菌门,菌群比例达到所有菌群的91%以上,A组、B组、C组厚壁菌门与拟杆菌门的比值(F/B)分别为1.03、0.77、0.73,A组显著高于B组和C组(P<0.05)。A组厚壁菌门相对丰度极显著高于B组(P<0.01),并且B组显著高于C组(P<0.05)。
图3 不同体重琅琊鸡盲肠菌群门(A)、属水平(B)分布

Fig.3 Distribution of phylum (A) and genus(B) levels in cecal microflora of Langya chickens with different body weights

表4 不同体重琅琊鸡盲肠菌群门水平分布

Table 4 Horizontal distribution of cecal microflora at phylum level of Langya chickens with different body weights

项目
Items
拟杆菌门
Bacteroidota
厚壁菌门
Firmicutes
厚壁菌门/拟杆菌门
F/B
脱硫杆菌门
Desulphurobacteria
螺旋体门
Spirochaete
变形菌门
Proteobacteria
组别Groups
A 0.389±0.032 0.402±0.016A 1.03±0.04a 0.035±0.001b 0.021±0.009a 0.007±0.000b
B 0.420±0.025 0.322±0.031Ba 0.77±0.02b 0.066±0.005a 0.008±0.006b 0.012±0.005a
C 0.417±0.018 0.307±0.024Bb 0.73±0.01b 0.054±0.007ab 0.007±0.004b 0.009±0.000ab
PP-value 0.745 1 0.005 0 0.043 2 0.036 4 0.017 8 0.020 4
在属水平上,由图3-B表5可知,排名前5的物种相对丰度主要以拟杆菌属(15.59%)、脱硫弧菌属(4.94%)、CHKCI001(4.91%)、理研菌科RC9肠道群(13.01%)、乳酸杆菌属(2.00%)等为主,不同体重琅琊鸡盲肠菌群丰度存在一定的差异。其中,A组丹毒梭状芽孢杆菌属相对丰度显著低于B组(P<0.05),而普雷沃氏菌属相对丰度极显著高于B组(P<0.01)。
表5 不同体重琅琊鸡盲肠菌群属水平分布

Table 5 Horizontal distribution of cecal microflora at genus level of Langya chickens with different body weights

项目
Items
拟杆菌属
Bacteroides
脱硫弧菌属
Desulfovibrio
乳酸杆菌属
Lactobacillus
普雷沃氏菌属
Prevotella
Sphaerochaeta 丹毒梭状芽孢杆菌属
Erysipelatoclostridium
组别Groups
A 0.166±0.005a 0.043±0.006 0.020±0.005 0.006±0.000Aa 0.001±0.000c 0.004±0.000b
B 0.153±0.004ab 0.038±0.002 0.022±0.004 0.003±0.000Bb 0.002±0.000b 0.006±0.000a
C 0.139±0.007b 0.056±0.008 0.019±0.000 0.004±0.000Bb 0.005±0.000a 0.005±0.000ab
P
P-value
0.041 3 0.842 1 0.647 2 0.002 4 0.017 4 0.038 7

2.5 盲肠SCFA含量以及与菌群相关性分析

表6可知,盲肠内容物乙酸、丙酸、丁酸、异丁酸、异戊酸和戊酸含量各组间存在显著差异(P<0.05);B组异丁酸含量显著高于A组和C组(P<0.05),且A组显著高于C组(P<0.05);A组和B组异戊酸含量显著高于C组(P<0.05)。与A组相比,C组乙酸、丙酸、丁酸、戊酸含量分别降低了37.4%、38.7%、48.9%和44.2%,与B组比较,分别降低了22.8%、28.3%、27.7%和34.9%。
表6 不同体重琅琊鸡对盲肠SCFA含量的影响

Table 6 Effects of different body weight of Langya chickens on cecal SCFA contents (n=18) μg/g

项目
Items
乙酸
Acetic acid
丙酸
Propionic acid
异丁酸
Isobutyric acid
丁酸
Butyric acid
异戊酸
Isovaleric acid
戊酸
Valeric acid
组别Group
A 1 701.40±71.11a 717.94±65.43a 95.39±7.96b 330.85±10.18a 107.81±3.10a 94.97±5.99a
B 1 379.01±80.76b 613.91±42.35b 105.99±2.52a 233.60±18.45b 109.74±5.73a 81.35±4.21b
C 1 064.84±75.34c 440.27±89.20c 78.01±3.48c 169.00±17.09c 87.16±6.49b 52.99±6.71c
PP-value 0.031 1 0.024 8 0.038 5 0.014 2 0.043 6 0.020 4
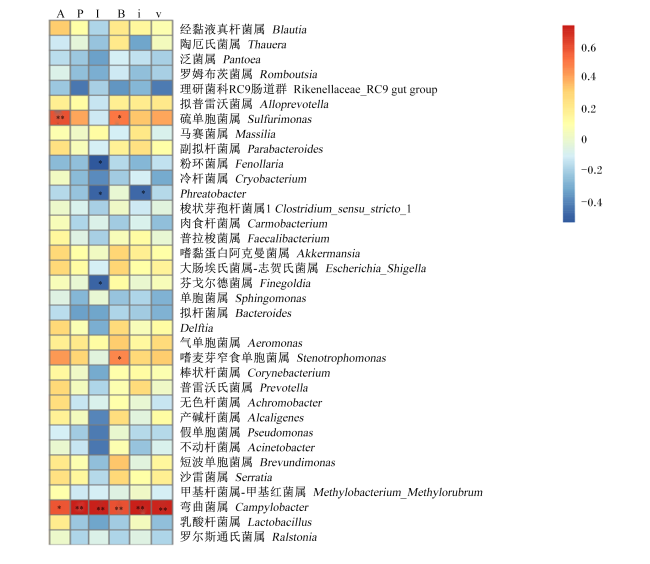
图4可知,弯曲菌属相对丰度与乙酸含量呈显著正相关(P<0.05),且与丙酸、丁酸、异丁酸、异戊酸和戊酸含量呈极显著正相关(P<0.01);单胞菌属相对丰度与异丁酸含量呈显著正相关(P<0.05);硫单胞菌属相对丰度与乙酸含量呈极显著正相关(P<0.01),且与异丁酸含量呈显著正相关(P<0.05)。
图4 300日龄琅琊鸡盲肠菌群属水平相对丰度与盲肠发酵参数的Pearson相关性分析

A、P、I、B、i、v分别代表乙酸、丙酸、丁酸、异丁酸、异戊酸、戊酸含量。*为显著相关(P<0.05),**为极显著相关(P<0.01)。

Fig.4 Pearson correlation analysis between relative abundance of cecal microflora at genus level and cecum fermentation parameters of Langya chickens at 300 days of age

A, P, I, B, I and v indicated the contents of acetic acid, propionic acid, butyrate acid, isobutyric acid, isovaleric acid and valerate acid. * was a significant correlation (P<0.05), ** was a very significant correlation (P<0.01).

2.6 不同体重琅琊鸡盲肠微生物差异功能预测分析

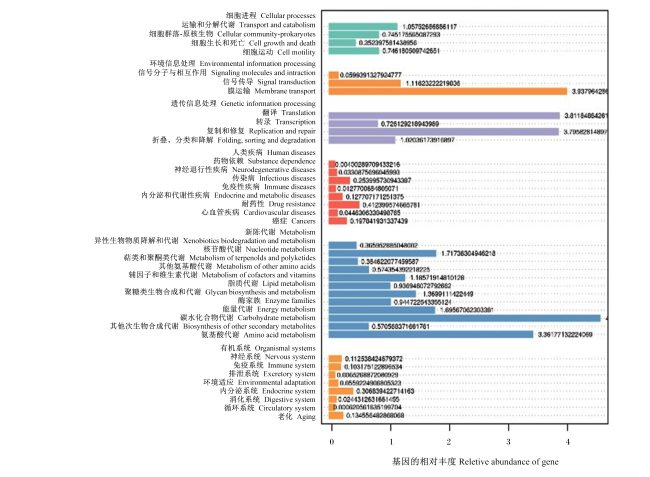
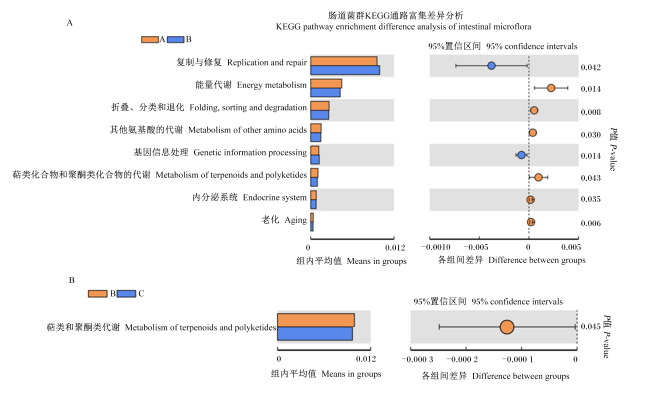
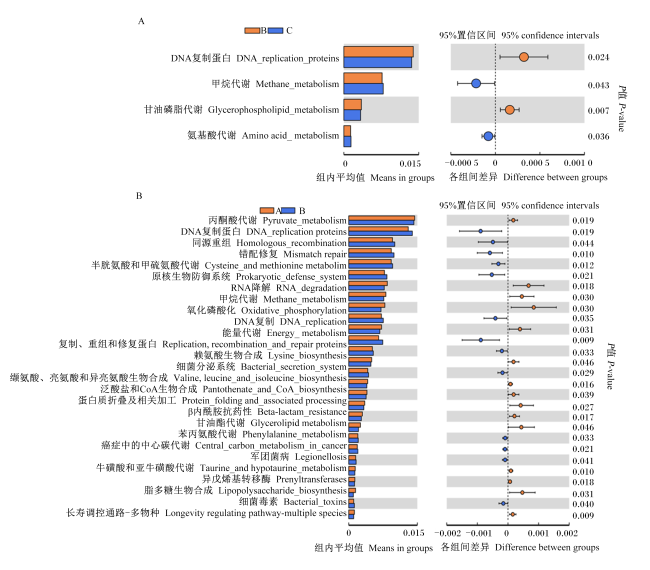
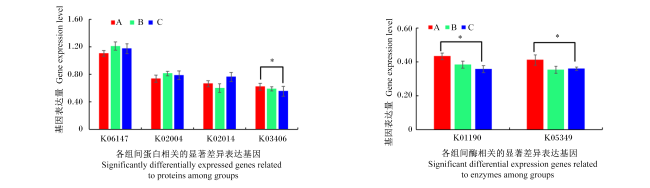
图5所示,不同体重琅琊鸡盲肠菌群KEGG通路主要富集在新陈代谢、环境信息处理、遗传信息处理等三大通路方面,功能类别主要富集在膜运输、转录、复制和修复以及碳水化合物代谢、氨基酸代谢等。与B组相比,A组KEGG(2级)类别中在遗传信息处理途径方面的复制与修复和基因信息处理较差,但在新陈代谢、遗传信息处理和有机系统方面的能量代谢、折叠、分类与退化、其他氨基酸代谢、萜类化合物和聚酮类化合物代谢、内分泌系统和老化相对丰度较高(图6-A);与C组相比,B组在新陈代谢途径方面的萜类多酮类代谢相对丰度较高(图6-B)。进一步,与C组相比,B组在新陈代谢途径方面的甲烷代谢、氨基酸代谢的相对丰度较低,但在甘油磷脂代谢和DNA复制答蛋白相对丰度较高(图6-B)。与B组相比,A组KEGG(3级)类别中在遗传信息、环境信息和人类疾病处理途径的复制和修复、运输和分解代谢、细菌耐药性、信号分子与相互作用、同源重组修复、错配修复原核生物防御、甘油代谢、碳代谢、细菌毒素等12个方面相对丰度较低,但在新陈代谢途径方面的碳水化合物代谢、降解核醣核酸、能量代谢、氨基酸代谢、维生素代谢、苯丙氨酸代谢、牛磺酸代谢、萜类多酮类代谢、聚糖生物合成和代谢等16个方面相对丰度较高(图7)。图8所示,A组β-半乳糖苷酶的K01190基因和β-葡萄糖苷酶的K05349基因以及甲基接受趋化蛋白的K03406基因表达量显著高于C组(P<0.05)。
图5 不同体重琅琊鸡盲肠菌群KEGG通路注释

Mann-Whitney U检验与Benjamini-Hochbe-rgFDR调整的多重比较一起使用,对预测的宏基因组通路分析中显著不同的通路进行排序。

Fig.5 KEGG pathway annotation of cecal microflora of Langya chickens with different body weights

Mann-Whitney U test was used in conjunction with multiple comparisons adjusted by Benjamini-Hochberg FDR to rank significantly different pathways in the predicted metagenomic pathway analysis.

图6 肠道菌群KEGG通路富集差异分析(2级)

Fig.6 Difference analysis of intestinal microflora KEGG pathway enrichment (level 2)

图7 肠道菌群KEGG通路富集差异分析(3级)

Fig.7 Difference analysis of intestinal microflora KEGG pathway enrichment (level 3)

图8 各组间蛋白和酶相关的显著差异表达基因

*表示组间差异显著(P<0.05)。

Fig.8 Significant differentially expressed genes related to proteins and enzymes among groups

* indicated significant difference between groups (P<0.05).

3 讨论

3.1 不同体重对琅琊鸡生长性能的影响

家禽的生长发育受品种、营养水平、饲养管理等因素的影响,宿主肠道健康是机体健康的必要条件,是家禽生产中不可忽略的环节,菌群的失衡会影响营养物质的消化吸收和利用,饲料效率和生长速度受到限制。有研究报道,通过长期对体重的选择探究宿主基因对肠道菌群组成和数量的影响,发现宿主遗传背景与肉鸡肠道菌群的组成和丰富度有显著的遗传相关性[17]。本试验结果显示,琅琊鸡在相同营养水平和饲养管理条件下出现体重和ADG显著差异,推测其不同体重组间肠道菌群的差异性,导致增重和饲料转换率的差异。由于鸡胃肠道中细菌数量和种类最高的位置是盲肠,其菌群一生中经历不断的演替和置换,随着肉鸡日龄的增加菌群多样性越来越丰富,在盲肠菌群及其调控下食糜发酵产生包括SCFA、胺、氨基酸、维生素和酶等产物[18],而产生的大量SCFA,降低肠道pH,起到杀菌作用,肠道菌群参与调节肠上皮细胞抗菌肽的产生,促进肉鸡的生长发育[19]

3.2 不同体重对琅琊鸡盲肠菌群组成的影响

家禽肠道内存在大量的微生物区系,这些肠道微生物群提高宿主对饲料分解和消化、促进生长发育、免疫调节和维持肠道内环境稳定免受外来病原体侵害[20]。本试验结果显示,A组盲肠菌群OTUs和多样性、丰富度指数显著高于B组和C组,说明A组盲肠内菌群种类多于其他组,反映在相同品种、相同饲养环境下,体重差异与肠道菌群作用下相关营养物质代谢产物密切相关。有研究报道,厚壁菌门和拟杆菌门目前已被广泛认识到可以通过提高宿主对食物的消化和能量吸收来促进其体重的增长,它们在能量产生和代谢中起到重要作用,其比例和体重呈正相关[21]。本试验中,不同体重琅琊鸡盲肠门水平菌群组成较为一致,包括拟杆菌门、厚壁菌门和脱硫杆菌门等。其中,拟杆菌门、厚壁菌门是相对丰度最高的细菌门,在许多动物肠道中都属常驻菌,与碳水化合物的发酵相关,可以参与到胆汁酸以及类固醇的代谢中,且两者之间存在着一种相互促进的共生关系,它们共同促进宿主吸收或储存能量,其比值的变化会影响机体内肠道菌群的代谢潜力[22]。有研究发现,肠道菌群中F/B升高可能会提高肠道对营养物质吸收和能量转化的能力,其比例和体重呈正相关[23-24]。本试验结果显示,A组、B组、C组F/B分别为1.03、0.77、0.73,这种厚壁菌门较多,拟杆菌门较少的菌群结构在分解食物和促进宿主能量吸收方面的能力更强[25],与本试验结果一致。盲肠中有众多的纤维分解菌,可以将粗纤维发酵形成SCFA,能满足机体的部分能量需要。普雷沃氏菌属、拟普雷沃菌属等纤维降解菌,具有帮助分解纤维的能力,而与肥胖呈正相关的普雷沃氏菌属和乳酸杆菌属具有调节动物免疫、维护动物健康、协助消化和提高动物生长速度的功能[26-27]。本研究结果显示,A组普雷沃氏菌属相对丰度高于其他组,说明这些菌属参与盲肠中许多重要的代谢活动,包括碳水化合物的发酵、含氮物质的利用[28],意味着它们通过碳水化合物分子的水解获得碳和能量,影响其宿主的生长发育。另外,A组丹毒梭状芽孢杆菌属相对丰度显著低于B组,这些与丹毒、肠炎以及某些代谢疾病发生有关的致病菌,影响SCFA的生成以及肠道内毒素产生,导致肠道功能紊乱,并且本研究中又发现体重小的群体盲肠菌群中脱硫弧菌属相对丰度较高,而该菌群是内毒素产生菌,且可以将硫酸盐还原成硫化物,对上皮细胞产生毒性,不仅是溃疡性结肠炎的病因之一,还与某些代谢性疾病发生有关[29-30],因此,本试验中C组鸡群的生长发育不良,与上述致病菌有一定的相关,至于其原因有待于进一步研究。
盲肠菌群差异物种分析结果显示,A组盲肠差异优势菌主要富集弯曲杆菌、柄杆菌目、金氏拟杆菌种以及优/真拟杆菌属和毛螺菌科_UCG_002;B组主要富集北拟杆菌种和圆杆菌科:C组主要富集根瘤菌科、根瘤菌目、α变形菌纲、马西放线菌种和独岛杆菌属等。研究表明,弯曲杆菌属是变形菌门的一种,对肠道健康有害[31]。金氏拟杆菌也是变形杆菌门的一种,但在减少肠道炎症、宿主氨基酸代谢以及抑制肺部炎症方面发挥重要作用[32],而真/优杆菌属是肠道菌群的核心菌属之一,对机体营养代谢和维持肠道平衡有重要的作用[33],另外,毛螺菌属是厚壁菌门的一种,是潜在的有益菌,参与多种碳水化合物的代谢[34]。由此可见,体重大的琅琊鸡盲肠富集了弯曲杆菌属这一类致病菌,同时富集了金氏拟杆菌种以及真/优杆菌属和毛螺菌科UCG_002等有益菌。且体重大的个体也富集了有益菌作为主要的优势菌群,其多样性和相对丰度明显高于致病菌,但是由于这些致病菌的存在,它们能够与肠道有益菌竞争宿主营养物质吸收,使宿主生产潜力不能得以充分发挥。然而,相比小体重琅琊鸡盲肠中所富集的根瘤菌科、α变形菌纲、马西放线菌种、独岛杆菌属等[35]大多数病菌而言,大体重的琅琊鸡盲肠富集的大多数均为有益菌,有益于生长性能的发挥。

3.3 不同体重对琅琊鸡盲肠菌群多样性的影响

α多样性反映物种的多样性和丰富度,包括ACE、Chao1、Simpsom和Shannon指数等评价指标。其中ACE和Chao1指数用于衡量物种丰富度;Shannon和Simpsom指数用于衡量物种多样性[36]。本研究结果显示,A组盲肠菌群丰富度和多样性均高于B组和C组。这说明A组盲肠菌群α多样性越高,其肠道的消化吸收能力也越强,可以通过刺激宿主对食物的消化,提高能量吸收能力来促进其体重的增长[37]。β多样性反映样品间物种多样性差异,本研究中利用PCoA分析发现,A组与B组、C组盲肠菌群能够明显分开,说明A组与其他组间的菌群分别具有较高的稳定性,且在菌群结构上具有较大差异。

3.4 不同体重对琅琊鸡盲肠SCFA含量以及菌群相关性的影响

盲肠内细菌发酵导致SCFA的形成,是肠道功能和肠道完整性所必须的[38]。这些SCFA是由家禽肠道内未消化的碳水化合物、蛋白质与脂肪等食糜在盲肠菌群发酵而产生,能够促进机体内难以消化产物的吸收[39],通常具有提供动物所需的部分能量并促进营养物质的吸收、调节脂类代谢、调控肠道内的pH、抑制肠道炎症和调节免疫应答等生理功能[40]。在本研究中发现,A组细菌代谢水平较高,尤其是乙酸、丁酸和戊酸,与C组相比,分别提高了37.4%、48.9%和44.2%。这说明不同体重下盲肠菌群SCFA相关代谢通路差异较大,这些过多的SCFA可能影响机体能量供给、葡萄糖的脂质稳态,导致能量调节失衡以及铜铝调控肠道的基因表达,进而影响宿主多种肠肽的分泌,调控宿主体重增长、脂肪沉积等生理过程[41-42],并且盲肠SCFA(特别是乙酸和丁酸)含量的升高可导致营养物质的生物利用度和吸收显著增加[43]。另外,多项研究表明,乙酸、丙酸和丁酸能够被上皮细胞吸收,为宿主提供能量来源[44],丁酸可以抑制肠杆菌科的增殖,维持肠道整体稳态[45],并参与肠道黏膜内的细胞分化和增殖,改善生长性能[46],戊酸衍生物制成甘油酯能够提高肉鸡生长性能,改善小肠黏膜形态,降低坏死性肠炎的发生率[47],异丁酸和异戊酸与蛋白质发酵有关[48],而异戊酸还被证实能够增强肉鸡黏膜免疫[49]
研究表明,SCFA(特别是丁酸和戊酸)有利于弯曲菌属在肠道中的定植[50-51]。Lin等[52]在研究中表明,硫单胞菌属存在于乙酸和琥珀酸的发酵途径中,与本试验结果基本一致。Liu等[53]在一项研究肠道菌群和SCFA预测新生儿坏死性小肠结肠炎研究表明,单胞菌属相对丰度与异丁酸含量呈显著负相关,说明单胞菌属相对丰度与SCFA含量存在相关性,但与本试验结果相反,其原因可能是由于物种差异或试验处理不同所造成的。以上研究说明肠道菌群与盲肠SCFA含量关系密切,影响SCFA的产生,这些SCFA对家禽生长和发育具有积极的作用。

3.5 不同体重琅琊鸡盲肠微生物差异功能预测分析

有研究表明,18周龄肉鸡的高体重组肠道菌群功能在能量代谢、芳香化合物降解、鞘脂代谢、半乳糖代谢、甲烷代谢、氧化磷酸化和色氨酸的生物合成等通路均出现了上调,而甘氨酸、丝氨酸和苏氨酸代谢、氰基氨基酸代谢、核黄素代谢、单巴坦生物合成和二恶英降解等通路均被下调[54]。本研究KEGG代谢通路分析显示,与B组和C组比较,A组在碳水化合物代谢、能量代谢、氨基酸代谢、维生素代谢等通路显著富集,而细菌耐药性、细菌毒素途径等通路富集不显著,说明A组中大量与菌群代谢通路调节相关的功能基因发生了显著改变,β-半乳糖苷酶的K01190基因和β-葡萄糖苷酶的K05349基因以及甲基接受趋化蛋白的K03406显著上调,通过其编码的酶类或功能蛋白参与到对特定代谢通路的调节过程,明显增强和非谷物饲料原料中某些抗营养因子和碳水化合物代谢以及多种生理生化途径的作用。这一菌群代谢过程的改变有助于盲肠重吸收水、电解质,有助于释放更多的能量供给菌群与肠道代谢需要[41]。这些结果表明,盲肠菌群的功能明显富集在碳水化合物代谢、氨基酸代谢和能量代谢等新陈代谢功能通路中[55],体重差异使得肠道菌群通过调控其代谢途径来逐渐适应新的宿主环境,并且与代谢和遗传信息相关的基因得到显著的功能富集,这些研究表明鸡肠道菌群功能的改变会直接影响到宿主的生长发育。此外,本试验KEGG代谢通路和16S功能预测数据库对比发现,在碳水化合物代谢、能量代谢、氨基酸代谢、维生素代谢等通路被显著富集。众所周知,肠道菌群在代谢方面能够帮助宿主发酵不可消化的碳水化合物,经发酵后形成SCFA,供宿主利用。反之,当肠道菌群失衡可能导致代谢性疾病发生,如肥胖、糖尿病和肠道炎症。有研究表明,肥胖和2型糖尿病有一个共同的特征,即炎症通路的激活[56]。肠道细菌被认为参与了肥胖和糖尿病患者炎症的发展,促使它们产生促炎分子,如脂多糖、鞭毛蛋白和肽聚糖[57]。在野生型小鼠中,慢性注入脂多糖可增强肥胖和促炎信号,并降低肝脏胰岛素敏感性,而缺乏糖蛋白分化簇14(CD14)的小鼠不存在高脂饮食喂养或脂多糖输入引起的大多数症状[58]。CD14结合并向受体复合物Toll样受体4(TLR4)/髓样分化因子-2(MD-2)呈递脂多糖,从而触发宿主对细菌的炎症反应[58-59]。这说明肠道菌群与代谢性疾病之间存在因果关系。见于肠道菌群对宿主生长发育具有重大影响,而疾病关系模型是研究肠道菌群与疾病之间相互关系的一种工具,该模型可以帮助研究人员更好地理解肠道菌群与疾病之间的作用机制,对于开发新的治疗方法和预防措施具有重要意义。因此,接下来我们将构建肠道疾病模型,进一步探索肠道菌群与宿主之间的关系。

4 结论

在本试验条件下,不同体重琅琊鸡盲肠菌群组成的多样性和结构差异较大,体重较大的琅琊鸡盲肠菌群多样性丰富,细菌有机酸代谢物水平较高,并富集碳水化合物代谢、能量代谢、氨基酸代谢、维生素代谢等通路,且通过其编码的酶类或功能蛋白参与到对特定代谢通路的调节过程,明显增强碳水化合物代谢以及多种生理生化途径的作用,促进生长性能的发挥。
[1]
金磊, 王立志, 王之盛, 等. 基于高通量测序技术对山羊盲肠细菌多样性的分析[J]. 微生物学通报, 2019, 46(6):1423-1433.

JIN L, WANG L Z, WANG Z S, et al. Analysis of cecum bacterial diversity of goat based on illumina MiSeq sequencing[J]. Microbiology (Reading,England), 2019, 46(6):1423-1433. (in Chinese)

[2]
XIAO Y P, XIANG Y, ZHOU W D, et al. Microbial community mapping in intestinal tract of broiler chicken[J]. Poultry Science, 2017, 96(5):1387-1393.

DOI PMID

[3]
TURNBAUGH P J, HAMADY M, YATSUNENKO T, et al. A core gut microbiome in obese and lean twins[J]. Nature, 2009, 457(7228):480-484.

[4]
IVANOV I I, LITTMAN D R. Modulation of immune homeostasis by commensal bacteria[J]. Current Opinion in Microbiology, 2011, 14(1):106-114.

DOI PMID

[5]
KUSS S K, BEST G T, ETHEREDGE C A, et al. Intestinal microbiota promote enteric virus replication and systemic pathogenesis[J]. Science, 2011, 334:249-252.

DOI PMID

[6]
李永洙. 利用PCR-DGGE方法分析不同鸡群的盲肠微生物菌群结构变化[J]. 生态学报, 2011, 31(21):6513-6521.

LI Y Z. Structural change analysis of cecal bacterial flora in different poultry breeds using PCR-DGGE[J]. Acta Ecologica Sinica, 2011, 31(21):6513-6521. (in Chinese)

[7]
PUERTOLLANO E, KOLIDA S, YAQOOB P. Biological significance of short-chain fatty acid metabolism by the intestinal microbiome[J]. Current Opinion in Clinical Nutrition and Metabolic Care, 2014, 17(2):139-144.

DOI PMID

[8]
GREGORY A L, PENSINGER D A, HRYCKOWIAN A J. A short chain fatty acid-centric view of Clostridioides difficile pathogenesis[J]. PLoS Pathogens, 2021, 17(10):e1009959.

[9]
王可鑫, 姜宁, 张爱忠. 短链脂肪酸介导的宿主肠道免疫调控机制[J]. 动物营养学报, 2020, 32(4):1544-1550.

DOI

WANG K X, JIANG N, ZHANG A Z, et al. Host intestinal immune regulation mechanism mediated by short-chain fatty acids[J]. Chinese Journal of Animal Nutrition, 2020, 32(4):1544-1550. (in Chinese).

[10]
YAO Y, CAI X Y, FEI W D, et al. The role of short-chain fatty acids in immunity,inflammation and metabolism[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(1):1-12.

[11]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中钙的测定:GB/T 6436—2018[S]. 北京: 中国标准出版社, 2015.

State Administration for Market Regulation, China National Standardization Administration. Determination of calcium in feeds:GB/T 6436—2018[S]. Beijing: Standards Press of China, 2015. (in Chinese)

[12]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中总磷的测定分光光度法:GB/T 6437—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, China National Standardization Administration. Determination of phosphorus in feeds-spectrophotometry:GB/T 6437—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[13]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, China National Standardization Administration. Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[14]
中国农业科学院北京畜牧兽医研究所, 动物营养学国家重点实验室, 中国饲料数据库情报网中心, 国家农业科学数据中心(动物科学). 中国饲料成分及营养价值表(2022年第33版)制订说明[J]. 中国饲料, 2022(23):109-119.

Beijing Institute of Animal Husbandry and Veterinary Medicine,Chinese Academy of Agricultural Sciences, State Key Laboratory of Animal Nutrition, China Feed Database Information Network Center, National Agricultural Science Data Center (Animal Science). Tables of feed composition and nutritive in China (33rd edition,2022) formulation description[J]. China Feed, 2022(23):109-119. (in Chinese)

[15]
临沂市市场监督管理局. 琅琊鸡笼养饲养管理技术规程:DB 3713/T223[S]. 临沂:[s.n.], 2021.

Linyi City market supervision Administration. Langya chicken cage breeding management technical regulations:DB3713/T223[S]. Linyi:[s.n.], 2021. (in Chinese)

[16]
XIAO Y P, LI K F, XIANG Y, et al. The fecal microbiota composition of boar Duroc,Yorkshire,Landrace and Hampshire pigs[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(10):1456-1463.

[17]
MENG H, ZHANG Y, ZHAO L L, et al. Body weight selection affects quantitative genetic correlated responses in gut microbiota[J]. PLoS One, 2014, 9(3):e89862.

[18]
CLAVIJO V, FLÓREZ M J V. The gastrointestinal microbiome and its association with the control of pathogens in broiler chicken production:a review[J]. Poultry Science, 2018, 97(3):1006-1021.

[19]
DANESHMAND A, KERMANSHAHI H, SEKHAVATI M H, et al. Antimicrobial peptide,cLF36,affects performance and intestinal morphology,microflora,junctional proteins,and immune cells in broilers challenged with E.coli[J]. Scientific Reports, 2019, 9(1):14176.

[20]
STANLEY D, HUGHES R J, MOORE R J. Microbiota of the chicken gastrointestinal tract:influence on health,productivity and disease[J]. Applied microbiology and biotechnology, 2014,984301-4310.

[21]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

[22]
BÄCKHED F, DING H, WANG T, et al. The gut microbiota as an environmental factor that regulates fat storage[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(44):15718-15723.

DOI PMID

[23]
LEY R E, TURNBAUGH P J, KLEIN S, et al. Human gut microbes associated with obesity[J]. Nature, 2006, 444(7122):1022-1023.

[24]
STOJANOV S, BERLEC A, ŠTRUKELJ B. The influence of probiotics on the firmicutes/bacteroidetes ratio in the treatment of obesity and inflammatory bowel disease[J]. Microorganisms, 2020, 8(11):1715.

[25]
CHEN L J, WANG Z H, WANG P, et al. Effect of long-term and short-term imbalanced Zn manipulation on gut microbiota and screening for microbial markers sensitive to zinc status[J]. Microbiology Spectrum, 2021, 9(3):e0048321.

[26]
YADAV S, JHA R. Strategies to modulate the intestinal microbiota and their effects on nutrient utilization,performance,and health of poultry[J]. Journal of Animal Science and Biotechnology, 2019, 10(1):2.

[27]
GUO S S, XI Y, XIA Y, et al. Dietary Lactobacillus fermentum and Bacillus coagulans supplementation modulates intestinal immunity and microbiota of broiler chickens challenged by Clostridium perfringens[J]. Frontiers in Veterinary Science, 2021, 8:680742.

[28]
MILLS R H, DULAI P S, VÁZQUEZ-BAEZA Y, et al. Multi-omics analyses of the ulcerative colitis gut microbiome link Bacteroides vulgatus proteases with disease severity[J]. Nature Microbiology, 2022, 7(2):262-276.

[29]
ROWAN F E, DOCHERTY N G, COFFEY J C, et al. Sulphate-reducing bacteria and hydrogen sulphide in the aetiology of ulcerative colitis[J]. The British Journal of Surgery, 2009, 96(2):151-158.

[30]
MA D, WANG A C, PARIKH I, et al. Ketogenic diet enhances neurovascular function with altered gut microbiome in young healthy mice[J]. Scientific Reports, 2018, 8(1):6670.

DOI PMID

[31]
ROKOSZ N, RASTAWICKI W, WOŁKOWICZ T. Microbiological diagnosis of infections caused by Campylobacter jejuni and Campylobacter coli in humans[J]. Postepy Higieny I Medycyny Doswiadczalnej (Online), 2014, 68:48-56.

[32]
LAI H C, LIN T L, CHEN T W, et al. Gut microbiota modulates COPD pathogenesis: role of anti-inflammatory Parabacteroides goldsteinii lipopolysaccharide[J]. Gut, 2022, 71(2):309-321.

[33]
ZHAO Y C, ZHONG X Q, YAN J Y, et al. Potential roles of gut microbes in biotransformation of natural products:an overview[J]. Frontiers in Microbiology, 2022, 13:956378.

[34]
LIU X M, MAO B Y, GU J Y, et al. Blautia-a new functional genus with potential probiotic properties?[J]. Gut Microbes, 2021, 13(1):1-21.

DOI PMID

[35]
卢昌丽, 熊香元, 陈力力, 等. 健康产蛋母鸭蛋内容物非致病菌与其生殖道和盲肠菌群的相关性分析[J]. 食品科学, 2023, 44(14):169-180.

LU C L, XIONG X Y, CHEN L L, et al. Relationship between non-pathogenic bacteria from eggs of healthy laying ducks and flora structure in the genital tract and cecum[J]. Food Science, 2023, 44(14):169-180. (in Chinese)

DOI

[36]
GRICE E A, KONG H H, CONLAN S, et al. Topographical and temporal diversity of the human skin microbiome[J]. Science, 2009, 324(5931):1190-1192.

DOI PMID

[37]
INDIANI C M S P, RIZZARDI K F, CASTELO P M, et al. Childhood obesity and Firmicutes/Bacteroidetes ratio in the gut microbiota:a systematic review[J]. Childhood Obesity, 2018, 14(8):501-509.

[38]
MEIMANDIPOUR A, SHUHAIMI M, SOLEIMANI A F, et al. Selected microbial groups and short-chain fatty acids profile in a simulated chicken cecum supplemented with two strains of Lactobacillus[J]. Poultry Science, 2010, 89(3):470-476.

[39]
TAN J, MCKENZIE C, POTAMITIS M, et al. The role of short-chain fatty acids in health and disease[J]. Advances in Immunology, 2014, 121:91-119.

DOI PMID

[40]
RAMAN M, AMBALAM P, DOBLE M. Short-chain fatty acids[M]//RAMAN M,AMBALAM P,DOBLE M.Probiotics and bioactive carbohydrates in colon cancer management. New Delhi: Springer, 2016:97-115.

[41]
WANG X K, HU Y F, ZHU X Y, et al. Bacteroides-derived isovaleric acid enhances mucosal immunity by facilitating intestinal IgA response in broilers[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):4.

DOI PMID

[42]
WANG Y, DILIDAXI D, WU Y, et al. Composite probiotics alleviate type 2 diabetes by regulating intestinal microbiota and inducing GLP-1 secretion in db/db mice[J]. Biomedicine & Pharmacotherapy, 2020, 125:109914.

[43]
WANG S Z, YU Y J, ADELI K. Role of gut microbiota in neuroendocrine regulation of carbohydrate and lipid metabolism via the microbiota-gut-brain-liver axis[J]. Microorganisms, 2020, 8(4):527.

[44]
YEOMAN C J, CHIA N, JERALDO P, et al. The microbiome of the chicken gastrointestinal tract[J]. Animal Health Research Reviews, 2012, 13(1):89-99.

DOI PMID

[45]
LIU L X, LI Q Q, YANG Y J, et al. Biological function of short-chain fatty acids and its regulation on intestinal health of poultry[J]. Frontiers in Veterinary Science, 2021, 8:736739.

[46]
PANDA A K, RAMA RAO S V, RAJU M V L N, et al. Effect of butyric acid on performance,gastrointestinal tract health and carcass characteristics in broiler chickens[J]. Asian-Australasian Journal of Animal Sciences, 2009, 22(7):1026-1031.

[47]
ONRUST L, VAN DRIESSCHE K, DUCATELLE R, et al. Valeric acid glyceride esters in feed promote broiler performance and reduce the incidence of necrotic enteritis[J]. Poultry Science, 2018, 97(7):2303-2311.

DOI PMID

[48]
ZDUNCZYK Z, JANKOWSKI J, MIKULSKI D, et al. Gastrointestinal morphology and function in turkeys fed diets diluted with whole grain wheat[J]. Poultry Science, 2013, 92(7):1799-1811.

DOI PMID

[49]
ZAGATO E, POZZI C, BERTOCCHI A, et al. Endogenous murine microbiota member Faecalibaculum rodentium and its human homologue protect from intestinal tumour growth[J]. Nature Microbiology, 2020, 5:511-524.

[50]
GOODMAN K N, POWERS M J, CROFTS A A, et al. Campylobacter jejuni BumSR directs a response to butyrate via sensor phosphatase activity to impact transcription and colonization[J]. Proceedings of the Na-tional Academy of Sciences, 2020, 117(21):11715-11726.

[51]
AWAD W A, DUBLECZ F, HESS C, et al. Campylobacter jejuni colonization promotes the translocation of Escherichia coli to extra-intestinal organs and disturbs the short-chain fatty acids profiles in the chicken gut[J]. Poultry Science, 2016, 95(10):2259-2265.

[52]
LIN X L, QIAO B Y, CHANG R R, et al. Characterization of two keystone taxa,sulfur-oxidizing,and nitrate-reducing bacteria,by tracking their role transitions in the benzo[a]pyrene degradative microbiome[J]. Microbiome, 2023, 11(1):139.

[53]
LIU X C, DU T T, GAO X, et al. Gut microbiota and short-chain fatty acids may be new biomarkers for predicting neonatal necrotizing enterocolitis:a pilot study[J]. Frontiers in Microbiology, 2022, 13:969656.

[54]
XIANG H, GAN J K, ZENG D S, et al. Specific microbial taxa and functional capacity contribute to chicken abdominal fat deposition[J]. Frontiers in Microbiology, 2021, 12:643025.

[55]
DIDA M F. Review paper on enzyme supplementation in poultry ration[J]. International Journal of Bioorganic Chemistry, 2016, 1(1):1-7.

[56]
HOTAMISLIGIL G S. Inflammation and metabolic disorders[J]. Nature, 2006, 444(7121):860-867.

[57]
CANI P D, OSTO M, GEURTS L, et al. Involvement of gut microbiota in the development of low-grade inflammation and type 2 diabetes associated with obesity[J]. Gut Microbes, 2012, 3(4):279-288.

DOI PMID

[58]
CANI P D, AMAR J, IGLESIAS M A, et al. Metabolic endotoxemia initiates obesity and insulin resistance[J]. Diabetes, 2007, 56(7):1761-1772.

DOI PMID

[59]
KITCHENS R L, THOMPSON P A. Modulatory effects of sCD14 and LBP on LPS-host cell interactions[J]. Journal of Endotoxin Research, 2005, 11(4):225-229.

DOI PMID

文章导航

/