研究论文

羧甲基茯苓多糖、丁酸梭菌和罗伊氏乳杆菌后生元复合物对昆明小鼠生长性能和盲肠菌群结构的影响

  • 邓清 , 1 ,
  • 黄河 1 ,
  • 文少怀 1 ,
  • 梁嘉敏 1 ,
  • 李雄英 1 ,
  • 王跃球 1, 2, 3 ,
  • 林元山 4 ,
  • 贺建华 5 ,
  • 庞一林 , 1, 2, 3, * ,
  • 熊小军 , 6, *
展开
  • 1 湖南湘农动物药业有限公司,长沙 410299
  • 2 湖南省农科集团有限公司,长沙 410125
  • 3 湖南农业发展投资集团有限责任公司,长沙 410114
  • 4 湖南农业大学生物科学技术学院,长沙 410128
  • 5 湖南农业大学动物科学技术学院,长沙 410128
  • 6 湖南省麻阳苗族自治县畜牧水产事务中心,麻阳 419499
*庞一林,畜牧师,E-mail: ;
熊小军,兽医师,E-mail:

邓 清(1981—),女,湖南岳阳人,学士,研究方向为动物营养学。E-mail:

Copy editor: 陈鑫

收稿日期: 2024-07-05

  网络出版日期: 2025-03-13

基金资助

湖南省高校创新平台开放基金项目(19k045)

Impacts of a Compound of Carboxymethylpachymaran and Clostridium butyricum and Lactobacillus reuteri Postbiotics on Growth Performance and Cecal Microflora Composition of Kunming Mice

  • DENG Qing , 1 ,
  • HUANG He 1 ,
  • WEN Shaohuai 1 ,
  • LIANG Jiamin 1 ,
  • LI Xiongying 1 ,
  • WANG Yueqiu 1, 2, 3 ,
  • LIN Yuanshan 4 ,
  • HE Jianhua 5 ,
  • PANG Yilin , 1, 2, 3, * ,
  • XIONG Xiaojun , 6, *
Expand
  • 1 Hunan Animal Pharmaceutical Company, Changsha 410299, China
  • 2 Hunan Agricultural Group Company, Changsha 410125, China
  • 3 Hunan Agricultural Development & Investment Group Company, Changsha 410114, China
  • 4 College of Bioscience and Biotechnology, Hunan Agricultural University, Changsha 410128, China
  • 5 College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
  • 6 Hunan Mayang Miao Autonomous County Animal Husbandry and Aquatic Affairs Center, Mayang 419499, China
*PANG Yilin, livestock enginee, E-mail: ;
XIONG Xiaojun, veterinary officer, E-mail:

Received date: 2024-07-05

  Online published: 2025-03-13

摘要

本试验旨在研究饲粮中添加羧甲基茯苓多糖(CMP)、丁酸梭菌和罗伊氏乳杆菌后生元(PB)复合物对昆明小鼠生长性能和盲肠菌群结构的影响。选取3周龄、体重10 g左右昆明雄性小鼠24只,随机分为4组(每组6个重复,每个重复1只):对照组饲喂基础饲粮,试验组分别饲喂在基础饲粮中添加1‰ CMP(1‰ CMP组)、5‰ PB(5‰ PB组)和6‰复合物(1‰ CMP+5‰ PB,6‰复合物组)的饲粮。试验期13 d。结果表明: 1)2和10 mg/mL的CMP对羟自由基和1,1-二苯基-2-三硝基苯肼(DPPH)自由基的清除率分别为49.83%和52.89%。然而即使10 mg/mL的CMP也只有微弱的还原力,对超氧自由基没有任何清除效果。2)采用两步发酵法制备PB,第一步发酵液中丁酸梭菌和第二步发酵液中罗伊氏乳杆菌含菌量均为5×108 CFU/mL。CMP与PB复合物配伍后,其中CMP、PB、麦芽糊精和轻质碳酸钙辅料的质量百分比为25∶5∶19∶1。3)饲喂13 d后,与1‰ CMP组和5‰ PB组对比,6‰复合物组小鼠的平均日采食量分别增加8.65%和11.44%,平均日增重分别增加12.42%和8.18%,体重分别增加了7.37%和4.63%。4)肠道菌群测序结果表明,6‰复合物促进昆明小鼠体重增长的机理可能与厚壁菌门(Firmicutes)/拟杆菌门(Bacteroidetes)(F/B)的比值显著升高(P<0.05)有关,并且小鼠盲肠内容物中螺杆菌属(Helicobacter)和肠鼠杆菌(Muribaculum intestinale)等有害菌相对丰度也显著降低(P<0.05),而亨盖特丁酸弧菌(Butyrivibrio hungatei)等有益菌相对丰度显著升高(P<0.05)。线性判别分析效应量(LEfSe)分析也提示6‰复合物组小鼠肠道中有益菌群显著富集。综上所述,CMP有较强的清除羟自由基的能力,添加6‰复合物(1‰ CMP+5‰ PB)可能通过提高肠道中F/B的比值和改善肠道菌群结构提升昆明小鼠的生长性能。

本文引用格式

邓清 , 黄河 , 文少怀 , 梁嘉敏 , 李雄英 , 王跃球 , 林元山 , 贺建华 , 庞一林 , 熊小军 . 羧甲基茯苓多糖、丁酸梭菌和罗伊氏乳杆菌后生元复合物对昆明小鼠生长性能和盲肠菌群结构的影响[J]. 动物营养学报, 2025 , 37(3) : 2003 -2018 . DOI: 10.12418/CJAN2025.170

Abstract

The objective of this research was to examine the impacts of a compound comprising carboxymethylpachymaran (CMP) and postbiotics (PB) derived from Clostridium butyricum and Lactobacillus reuteri on the growth performance and cecal microflora of Kunming mice. Twenty-four male Kunming mice, aged 3 weeks and weighing approximately 10 g, were randomly assigned to four groups with 6 replicates per group and 1 mouse per replicate. The control group received a basal diet, while the experimental groups were fed the basal diet supplemented with 1‰ CMP (1‰ CMP group), 5‰ PB (5‰ PB group) and 6‰ compound (1‰ CMP + 5‰ PB, 6‰ compound group), respectively. The experiment lasted for 13 days. The results showed as follows: 1) CMP at concentrations of 2 and 10 mg/mL exhibited scavenging rates of 49.83% and 52.89% for hydroxyl and 1, 1-diphenyl-2-trinitrophenylhydrazine (DPPH) free radicals, respectively. Despite this, even at a concentration of 10 mg/mL, CMP demonstrated only limited reducing power and no scavenging activity against superoxide free radicals. 2) The postbiotics were produced using a two-step fermentation process, resulting in a concentration of 5 × 10⁸ CFU/mL of viable Clostridium butyricum in the initial step and Lactobacillus reuteri in the subsequent step. The composition of CMP, PB, maltodextrin, and light calcium carbonate excipients in the complex was determined to be 25∶5∶19∶1 following the mixing of CMP with PB. 3) After a 13-day feeding period, it was observed that the average daily feed intake of mice increased by 8.65% and 11.44% when compared with the 1‰ CMP group and 5‰ PB group, respectively. Additionally, the average daily gain showed an increase of 12.42% and 8.18% in the same groups, while body weight exhibited a 7.37% and 4.63% increase, respectively. 4) The findings from the intestinal microflora sequencing analysis indicate that the compound’s mechanism for promoting weight gain in Kunming mice may be associated with a notable elevation in the Firmicutes to Bacteroides (F/B) ratio (P<0.05). Additionally, there was a significant reduction in the abundance of harmful bacteria, such as Helicobacter and Muribaculum intestinale, in the cecal contents of the mice (P>0.05), whereas the abundance of beneficial bacteria, such as Butyrivibrio hungatei, was significantly elevated (P<0.05). Furthermore, multilevel discriminant analysis of species difference (LEfSe) analysis revealed a significant increase in the presence of beneficial bacteria in the gut of the 6‰ compound group. In summary, CMP demonstrates a notable capacity for eliminating hydroxyl free radicals, and the incorporation of a complex consisting of 6‰ compound (1‰ CMP+5‰ PB) has the potential to enhance the growth performance of Kunming mice through the elevation of the intestinal F/B ratio and enhancement of the intestinal microflora composition.

随着畜牧业全面进入“后抗生素时代”,“营养替抗”成为动保行业最新研究热点。茯苓(Poria cocos)是我国药食同源的传统中药,茯苓多糖是从茯苓中分离出的生物活性物质,约占干重90%[1]。然而,茯苓中多糖主要为碱溶性多糖,其水溶解性和生理活性差,不易被人体和畜禽吸收与利用。研究表明,通过化学修饰提升茯苓碱性多糖的水溶性,可显著提高其生物活性。目前,羧甲基化是茯苓多糖常用的分子修饰方法之一。石清东等[2]报道,相对传统工艺,采用以茯苓粉为原料,氯乙酸为醚化剂和乙醇为反应介质的二次碱化法制备的羧甲基茯苓多糖(carboxymethylpachymaran, CMP),其取代度不低于1.0,提取率不低于85%。虽然经过化学改性后的CMP已被证明具有抗氧化、抗炎、增强免疫和改善肠道健康的功效[3],但其对动物生长性能的影响,鲜有文献报道。由于动物的生长性能是影响畜牧业经济效益的关键指标。因此,有必要在增强动物免疫力和提高其抗病毒能力的同时,筛选能够与CMP协同促生长的饲料添加剂品种,从而提高其作为饲料添加剂的应用价值。
后生元(postbiotics)是为弥补益生菌在应用过程中出现的一些不足之处而提出的新概念,是指对宿主健康有益的无生命的微生物和/或其成分(比如细胞壁中肽聚糖、壁磷壁酸、脂磷壁酸和细胞壁多糖以及细胞表面蛋白等)的制剂,也可以包括微生物的代谢产物(比如短链脂肪酸、有机酸、酶、抗菌肽和细菌素等)[4-6]。研究表明,后生元的生物活性不仅能够与“活”的益生菌效果媲美,而且其副作用甚微。其主要通过抗氧化、抗炎、调节免疫与胃肠道功能以及保护肝脏等作用[5]促进动物生长,从而提高畜牧与水产养殖效益[6-8]
丁酸梭菌(Clostridium butyricum)又名酪酸梭菌、丁酸梭状芽孢杆菌,是芽孢杆菌科、梭菌属中一种产丁酸的革兰氏阳性厌氧细菌[9]。丁酸梭菌的代谢产物中包含有短链脂肪酸(丁酸和乙酸)、抗菌肽、各种酶、维生素和氢气等多种有益物质[10],其中丁酸是大肠上皮细胞的主要供能物质[11],并且有助于肠道上皮细胞的修复和再生[12]。尤其是对于结肠黏膜细胞更为重要,丁酸是其最重要的能量来源[13]。此外,丁酸也被证明能够上调抗氧化谷胱甘肽水平,从而提高宿主对氧化应激的耐受性[14]。维生素是参与动物生长发育和代谢所必需的有机物质,丁酸梭菌代谢过程中可以产生多种B族维生素、维生素K、烟酸和泛酸等[15],而B族维生素和维生素K在补充宿主营养的同时可以促进维生素E的吸收[9]
罗伊氏乳杆菌(Lactobacillus reuteri)是国际上公认的益生乳酸菌之一,属于革兰氏阳性菌,不形成芽孢,兼性厌氧。最适生长温度为37~42 ℃,最适pH为6.5左右[16]。据文献报道,罗伊氏乳杆菌作为对宿主有益的益生菌优势突出:1)几乎天然存在于所有脊椎动物肠道内,是人和动物肠道微生物的主要成员[17];2)目前为止,罗伊氏乳杆菌是乳酸杆菌属中唯一被证实与所有宿主都存在共生关系的菌种[18];3)从不同宿主分离的所有罗伊氏乳杆菌菌株对宿主均具有益生作用[16];4)罗伊氏乳杆菌发酵产生的乳酸和罗伊氏菌素均具有直接的抑菌和杀菌活性[9];5)罗伊氏乳杆菌代谢产生的吲哚-3-乙醛及其菌体表面的表面蛋白、磷壁酸以及胞外多糖均具有免疫调节作用[17]
Chen等[19]研究表明,来源于干酪乳杆菌的胞外多糖(200 μg/mL)对猪流行性腹泻病毒具有抑制作用。Zhang等[20]研究发现,植物乳杆菌的胞外多糖EPS-T1(5 mg/mL)能够有效调节肠道微生物群,显著降低大肠埃氏菌属-志贺氏菌属(Escherichia-Shigella)和副萨特氏菌属(Parasutterella)等有害菌的相对丰度,同时显著增加双歧杆菌属(Bifidobacterium)和拟杆菌属(Bacteroides)等有益菌的相对丰度。Wang等[21]研究证明,活副干酪乳杆菌6235及其热灭活形式所提取的多糖均具备免疫活性,但两者在结构和免疫调节机制上存在差异,且来源于热灭活副干酪乳杆菌的多糖表现出更强的免疫活性。Chen等[22]研究表明,与对照组相比,含3‰地衣芽孢杆菌发酵产物的基础饲粮能显著提升1~41日龄的罗氏308品种肉鸡的最终体重和每日增重。这一效果与添加恩拉霉素的阳性对照组相当,无显著差异。张玺等[23-24]的研究显示,在基础饲粮中添加2‰黄芪多糖与3‰复合益生菌,可以在一定程度上提升保育猪的生长性能,降低腹泻率并提高成活率,其中复合组的效果显著优于单独添加黄芪多糖或复合益生菌的组别。然而,关于CMP是否可以替代益生菌胞外多糖,并与后生元(热灭活益生菌)复配作为动物保健饲料添加剂的研究尚未见相关文献报道。由于昆明小鼠体型较小且性成熟周期短(7~8周),其在探索未知浓度饲料添加剂的应用方面,相较于猪和家禽的高饲养成本,显得更为适宜。
基于以上理论研究基础,本试验首先将丁酸梭菌与罗伊氏乳杆菌进行两步发酵后制备成热灭活的丁酸梭菌和罗伊氏乳杆菌后生元(PB),然后与CMP进行复配,旨在探究CMP与PB复合物对昆明小鼠肠道健康及其生长性能的影响,从而为多糖类植物提取物与后生元复配在养殖业中应用提供理论基础。

1 材料与方法

1.1 试验材料

丁酸梭菌和罗伊氏乳杆菌由湖南湘农动物药业有限公司提供,菌种保藏编号分别为CGMCC No.27853和CGMCC No.27852。CMP以湖南怀化靖县的茯苓丁为原料,采用二次碱化法[25]制备获得CMP粗提物,其中CMP的含量不低于60%,取代度不低于0.55。昆明小鼠购于湖南斯莱克景达实验动物有限公司。
PB的制备方法如下:首先在10 L发酵罐中,按5%接种比例,将丁酸梭菌种子液接种至RCM培养基中,37 ℃静置发酵过夜后,100 ℃灭活10 min,冷却至37 ℃;然后加入2%的蔗糖,调节pH至6.5,按5%比例接种罗伊氏乳杆菌,37 ℃继续静置发酵16 h后,100 ℃灭活30 min。然后在上述两步发酵灭活的发酵液中依次加入麦芽糊精和轻质碳酸钙辅料。
CMP与PB复合物的制备方法如下:在上述已加入辅料的PB中添加CMP,搅拌混匀之后进行低温真空冷冻干燥(-80 ℃预冻过夜,真空度为4.9 Pa,干燥温度为-56 ℃,干燥时间为48 h),最后将冻干粉粉碎(粉碎细度为200目,离心10~20 min混匀)、分装与包装,得到复合饲料添加剂。本试验最终制备的PB+CMP复合饲料添加剂中CMP、PB、麦芽糊精和轻质碳酸钙辅料的质量百分比为25∶5∶19∶1。

1.2 CMP的抗氧化能力分析

1.2.1 CMP样品溶液的配制

将CMP用超纯水配制成质量浓度为10 mg/mL的多糖母液,并稀释成不同的浓度梯度:0.2、0.5、1.0、2.0、4.0、6.0和8.0 mg/mL,共7个剂量组。

1.2.2 维生素C(VC)溶液的配制

将VC分别用超纯水配制成质量浓度为4 mg/mL的母液,并稀释成不同的浓度梯度:0.01、0.05、0.10、0.20、0.30、0.40、0.50、1.00和2.00 mg/mL,共9个剂量组。

1.2.3 抗氧化能力分析

CMP和VC还原力、1,1-二苯基-2-三硝基苯肼(DPPH)自由基清除活性、羟基自由基清除活性和超氧阴离子自由基清除活性的测定均参考文献[25]。

1.2.3.1 CMP和VC还原力测定

取0.2 mL不同浓度的样品溶液,加0.5 mL pH 6.6的0.2 mol/L磷酸盐缓冲液、0.2 mL 1%铁氰化钾溶液,混合后在50 ℃下反应30 min。迅速冷却,加0.5 mL 10%三氯乙酸溶液,混合均匀后,以860×g离心10 min。取1 mL上清液,加1 mL超纯水和0.5 mL 0.1% FeCl3溶液,室温下反应5 min。使用分光光度计,在700 nm波长下测定吸光值,重复3次。以VC作为阳性对照。

1.2.3.2 DPPH自由基清除活性测定

首先取不同浓度的样品溶液0.4 mL(设置3个平行试验管),加入60 μmol/L的DPPH溶液1.2 mL(此溶液用50%乙醇配制),混合后在室温下避光静置30 min。接着,在517 nm的波长下测量吸光度值。使用VC作为对照组。DPPH自由基清除率的计算公式为:
DPPH自由基清除率(%)=[1-(A1-A2)/A0]×100。
式中:A0是未加样品的吸光度值;A1是加了样品后的吸光度值;A2是用乙醇溶液替代DPPH溶液后的吸光度值。

1.2.3.3 羟基自由基清除活性测定

首先,向反应体系中添加9 mmol/L FeSO4溶液0.4 mL和相同浓度的水杨酸溶液0.4 mL(使用无水乙醇调配)。接着,加入0.4 mL不同浓度的待测样品溶液。然后,加入0.4 mL 8.8 mmol/L的过氧化氢,于37 ℃下水浴加热30 min以启动反应。使用超纯水作为参比,于510 nm波长下测量反应液的吸光度(设置3个平行试验管)。以VC作为阳性对照。羟自由基清除率通过以下公式计算:
羟自由基清除率(%)=[1-(A1-A2)/A0]×100。
式中:A0是不加样品时的吸光度;A1是加入样品后的吸光度;A2是用超纯水替代水杨酸后的吸光度。

1.2.3.4 超氧阴离子自由基清除活性测定

首先将0.5 mL的样品溶液与2.25 mL pH 8.2的0.1 mol/L Tris-HCl缓冲液[含2 mmol/L 乙二胺四乙酸(EDTA)]和1.6 mL超纯水混合于比色管中。接着,在37 ℃水浴中加热10 min,然后加入0.2 mL的25 mmol/L邻苯三酚溶液(已预热至37 ℃),摇匀后反应5 min。反应完后立即用0.5 mL浓盐酸溶液终止,测定320 nm处的吸光度值。进行3次平行试验,以VC作为阳性对照。超氧阴离子自由基清除率通过以下公式计算:
超氧阴离子自由基清除率(%)=[1-(ΔA0A1)/ΔA0]×100。
式中:ΔA0是未加样品时的自氧化速率;ΔA1是加入样品后的自氧化速率。

1.3 试验设计

本研究所采用的基础饲粮由湖南斯莱克景达实验动物有限公司提供,原料组成为玉米、豆粕、进口鱼粉、面粉、食盐、油脂、磷酸氢钙、石粉、复合维生素、微量元素、氨基酸等,其营养水平见表1。基础饲粮中粗蛋白质、粗脂肪、粗纤维、粗灰分、钙和总磷含量分别依照GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2022、GB/T 6438—2007、GB/T 6436—2018及GB/T 6437—2018的方法测定。
表1 基础饲粮营养水平(干物质基础)

Table 1 Nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
粗蛋白质Crude protein 20.05
粗纤维Crude fibre 4.94
粗脂肪Crude fat 5.10
粗灰分Crude ash 7.66
钙Calcium 1.31
总磷Total phosphorus 0.96
选取3周龄雄性昆明小鼠24只(体重10 g左右),随机分为4组,每组6个重复,每个重复1只,各组之间体重接近(P>0.05)。对照组饲喂基础饲粮,3个试验组饲喂在基础饲粮中分别添加1‰CMP(1‰ CMP组)、5‰PB(5‰PB组)和6‰复合物(1‰ CMP+5‰ PB,6‰复合物组)的试验饲粮。试验期13 d。昆明小鼠饲养环境为12 h昼夜交替,室内温度27 ℃左右,所有动物均能自由饮食和饮水。本试验方案经湖南湘农动物药业有限公司动物管理伦理委员会批准(批准号:XNDYCS2021-004),所有动物均严格按照动物伦理程序和规范处理。

1.4 检测指标

1.4.1 生长性能

每隔3 d测定各组昆明小鼠采食量和体增重,计算平均日采食量、平均日增重和料重比(平均日采食量/平均日增重)。

1.4.2 肠道菌群样品的获取与高通量测序

在饲养第13天(禁食12 h),脱臼处死各组昆明小鼠之后,解剖采集对照组和试验组小鼠的盲肠内容物样品,放入一次性使用采样器中保存,并寄送至成都罗宁生物科技有限公司进行三代测序与结果分析。具体为采用Zymo Research BIOMICS DNA Microprep Kit(Cat# D4301)对样本的基因组DNA进行纯化,接着用通用引物8F(5'-AGAGTTTGATCATGGCTCAG-3')和1492R(5'-CGGTTACCTTGTTACGACTT-3')扩增样本的16S rDNA全长片段。PCR扩增程序为:预变性98 ℃、30 s,1个循环;变性98 ℃、5 s;退火54 ℃、15 s;延伸72 ℃、45 s,25~30个循环;最后72 ℃延伸2 min,保温于4 ℃。每个样本进行3次PCR技术重复,取线性期PCR产物等量混合后用于后续建库。最终,使用Nanopore GridION测序仪进行高通量测序。

1.4.3 肠道菌群测序数据分析

1)使用Guppy软件把fast5格式的测序数据转换成包含序列和质量信息的fastq格式。2)通过NanoFilt软件(v2.7.1)过滤掉平均质量低于10的序列,保留长度在1 400~1 600 bp的序列,并用Uchime算法和gold数据库消除嵌合体,以获得有效数据。3)利用Kraken2软件对序列进行物种注释,并创建操作分类单元(OTU)表以统计物种数量。4)用R语言(v4.0.3)的ggplot2包进行群落组成的分析。5)使用R语言进行Alpha多样性分析,计算系统发育多样性(PD)指数用Picante包,其他指数用Vegan包,Wilcoxon秩和检验和Kruaksl-Wallis秩和检验分别使用stats包的wilcox.test函数和Kruskal.test函数,多重比较使用agricolae包。6)Beta多样性分析通过GuniFrac包计算Unifrac距离,Vegan包计算Bray-Curtis和Jaccard距离,主坐标分析(PCoA)、主成分分析(PCA)和无度量多维标度法(NMDS)分别使用ape和vegan包,聚类分析用stats包的hclust函数,Anosim和PerMANOVA分析分别使用vegan包的anosim和adonis函数。7)差异物种分析采用线性判别分析效应量(LEfSe)分析工具和R语言的randomForest包进行,Metastas分析参照特定的R语言脚本(https://journals.plos.org/ploscompbiol/article?id=10.1371/journal.pcbi.1000352)。

1.5 数据统计分析

试验数据采用GraphPad Prism 5软件进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较,结果以“平均值±标准差”表示,P<0.05表示差异显著。肠道菌群采用LEfSe进行差异性检验。

2 结果与分析

2.1 PB复合物的制备

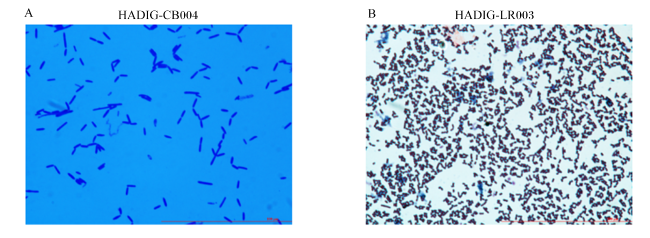
猪源丁酸梭菌HADIG-CB004和罗伊氏乳杆菌HADIG-LR003的菌体形态图如图1-A图1-B所示。采用两步发酵法制备PB复合物。分别通过TSC双层培养基[26]和MRS培养基平板计数表明,第一步发酵液中丁酸梭菌含菌量约为5 × 1l08 CFU/mL,第二步发酵液中罗伊氏乳杆菌含菌量约为5 × 108 CFU/mL。
图1 猪源丁酸梭菌HADIG-CB004和罗伊氏乳杆菌HADIG-LR003的菌体形态图

A:显微镜观察丁酸梭菌HADIG-CB004的菌体形态图(40 ×); B:显微镜观察罗伊氏乳杆菌HADIG-LR003的菌体形态图(40 ×)。

Fig.1 Morphological maps of Clostridium butyricum HADIG-CB004 and Lactobacillus reuteri HADIG-LR003 isolated from porcine sources

A: Morphological maps of Clostridium butyricum HADIG-CB004 was observed by microscope (40 ×); B: Morphological maps of Lactobacillus reuteri HADIG-LR003 was observed by microscope (40 ×).

2.2 评估CMP的抗氧化能力

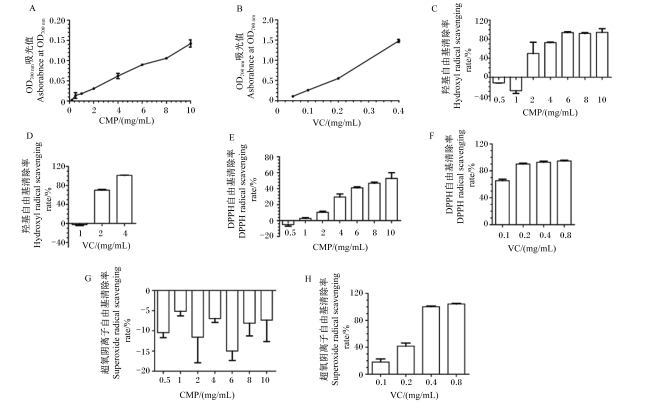
CMP的抗氧化能力分析表明,相对VC,0.5 mg/mL浓度以上CMP具有较弱的还原力(图2-A图2-B)。而如图2-C图2-D所示,2和4 mg/mL VC对羟基自由基的清除率分别为69.94%和101.13%,2、4和6 mg/mL的CMP对羟基自由基的清除率分别为49.83%、72.54%和93.79%,提示CMP对羟基自由基具有较强的清除力。如图2-E图2-F所示,0.1和0.2 mg/mL VC对DPPH自由基的清除率分别为65.26%和90.09%,2、6和10 mg/mL的CMP对DPPH自由基的清除率分别为10.34%、41.03%和52.89%,说明CMP对DPPH自由基的清除力较弱。如图2-G图2-H所示,0.2和0.4 mg/mL VC对超氧阴离子自由基的清除率分别为41.85%和100.40%,然而即使是10 mg/mL的CMP对超氧阴离子自由基也没有任何清除作用。
图2 CMP的抗氧化能力分析

CMP:羧甲基茯苓多糖 carboxymethylpachymaran;VC:维生素C vitamin C;DPPH: 1,1-二苯基-2-三硝基苯肼 1, 1-diphenyl-2-trinitrophenylhydrazine。

A-B:CMP(A)和VC(B)还原力的测定;C-D:CMP(C)和VC(D)清除羟基自由基能力的测定;E-F:CMP(E)和VC(F)清除DPPH自由基能力的测定;G-H:CMP(G)和VC(H)清除超氧阴离子自由基能力的测定。A-B: determination of reducing power of CMP (A) and VC (B); C-D: determination of the ability of CMP (C) and VC (D) to scavenge hydroxyl free radicals; E-F: determination of the ability of CMP (E) and VC (F) to scavenge DPPH free radicals; G-H: determination of the ability of CMP (G) and VC (H) to scavenge superoxide anion free radicals.

Fig.2 Analysis of antioxidant ability of CMP

2.3 饲粮中添加PB与CMP复合物对昆明小鼠生长性能的影响

小鼠采食量和料重比未做统计,仅测定数据辅助判断生长性能的变化。如表2所示,饲喂13 d后,虽然料重比未见明显改善,但是与对照组相比,1‰ CMP组、5‰ PB组以及6‰复合物组昆明小鼠平均日采食量分别增加7.00%、4.32%和16.26%,平均日增重分别增加2.00%、6.00%和14.67%,体重分别增加1.69%、4.35%和9.19%。与1‰ CMP组和5‰ PB组相比,6‰复合物组昆明小鼠的平均日采食量分别增加8.65%和11.44%,平均日增重分别增加12.42%和8.18%,体重分别增加了7.37%和4.63%。
表2 饲粮中添加PB与CMP的复合物对昆明小鼠生长性能的影响

Table 2 Impacts of dietary PB and CMP compound on growth performance of Kunming mice (n=6)

项目
Items
对照组
CON group
5‰ PB组
5‰ PB group
1‰ CMP组
1‰ CMP group
6‰复合物组
6‰ compound group
P
P-value
体重BW/g
第1天Day 1 10.98±0.85 11.08±0.57 11.12±0.50 11.03±1.10 0.992
第6天Day 6 19.08±1.37 18.63±0.35 19.22±0.93 19.53±1.48 0.621
第10天Day 10 25.24±2.46 25.08±1.49 25.17±1.15 26.33±0.87 0.604
第13天Day 13 28.96±2.76b 30.22±2.23ab 29.45±1.56b 31.62±1.43a 0.041
第1~6天Days 1 to 6
平均日采食量ADFI/(g/d) 3.82 3.74 4.15 3.960
平均日增重ADG/(g/d) 1.62±0.16 1.51±0.14 1.62±0.13 1.70±0.12 0.183
料重比F/G 2.36 2.48 2.56 2.33
第7~10天Days 7 to 10
平均日采食量ADFI/(g/d) 5.11 5.31 5.38 6.16
平均日增重ADG/(g/d) 1.54±0.41 1.62±0.32 1.49±0.10 1.70±0.21 0.662
料重比F/G 3.32 3.28 3.61 3.62
第11~13天Days 11 to 13
平均日采食量ADFI/(g/d) 6.26 6.96 6.70 7.78
平均日增重ADG/(g/d) 1.24±0.33 1.71±0.40 1.43±0.46 1.76±0.35 0.112
料重比F/G 5.05 4.07 4.69 4.42
第1~13天Days 1 to 13
平均日采食量ADFI/(g/d) 4.86 5.07 5.20 5.65
平均日增重ADG/(g/d) 1.50±0.19 1.59±0.23 1.53±0.14 1.72±0.14 0.141
料重比F/G 3.24 3.19 3.40 3.28

同行数据肩标不同小写字母表示差异显著(P<0.05)。表中PB含量是指除辅料以外的后生元净含量,CMP也指的是净含量。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05). PB content in the table refered to the net content of postbiotics except excipients, and CMP also refered to the net content. The same as below.

2.4 饲粮中添加PB与CMP复合物对昆明小鼠肠道菌群的影响

2.4.1 肠道菌群多样性分析
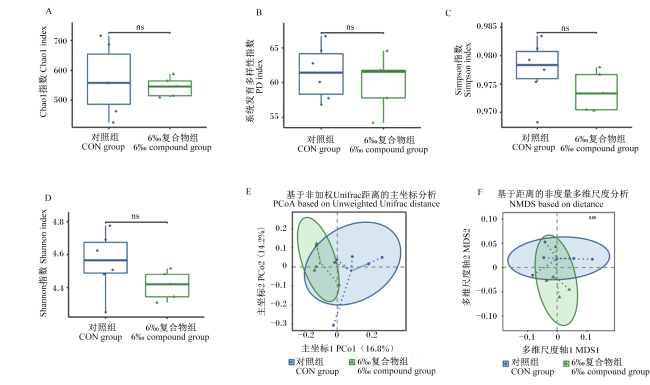
在获得OTU丰度矩阵后,对2组昆明小鼠肠道菌群进行Alpha与Beta多样性分析,使用Chao1指数衡量物种丰度,使用PD、Shannon和Simpson指数用于衡量物种多样性。如图3-A~图3-D所示,饲喂6‰复合物对昆明小鼠肠道菌群的物种多样性没有显著影响(P>0.05)。但是,分别使用Unweighted UniFrac算法与Weighted UniFrac算法进行PCoA和NMDS统计,如图3-E图3-F所示,主坐标1(PCo1)占总方差的16.8%,主坐标2(PCo2)占总方差的14.2%,6‰复合物组与对照组样品距离明显分开,说明2组样品菌群结构主成分具有显著差异。在NMDS分析中,应力值(stress)= 0.05,小于0.20,说明分组与抽样方法可靠。
图3 饲粮中添加6‰复合物对昆明小鼠盲肠内容物中菌群α多样性和β多样性的影响

ns表示组间差异不显著(P>0.05)。

A-D:α多样性的箱型图; E:不同处理样品的PCoA图; F:不同处理样品NMDS图。

Fig.3 Effects of dietary 6‰ compound on α-diversity and β-diversity of microflora in cecal contents of Kunming mice

ns indicated no significant difference between groups (P>0.05).

A-D: Box plot of alpha diversity; E: PCoA plot of different treated samples; F: NMDS plot of different treated samples.

2.4.2 肠道菌群组成及其优势菌群相对丰度分析

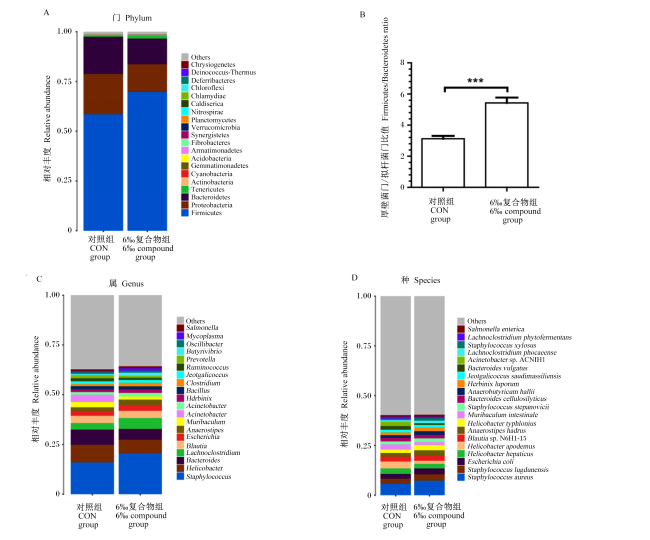
图4-A所示,昆明小鼠基础饲粮中添加6‰复合物13 d后,在门水平上,与对照组相比,6‰复合物组中厚壁菌门(Firmicutes)和软壁菌门(Tenericutes)相对丰度上调了19.14%和112.78%,而变形菌门(Proteobacteria)和拟杆菌门(Bacteroidetes)相对丰度下调了30.97%和31.28%;6‰复合物组昆明小鼠盲肠内容物中F/B比值显著升高(P<0.05)(图4-B)。
图4 饲粮中添加6‰复合物对昆明小鼠盲肠内容物中菌群组成的影响

Chrysiogenetes:产金菌门;Deinococcus-Thermus:异常球菌-栖热菌门;Deferribacteres:脱铁杆菌门;Chloroflexi:绿弯菌门;Chlamydiae:衣原体门;Caldiserica:嗜热丝菌门;Nitrospirae:硝化螺旋菌门;Planctomycetes:浮霉菌门;Verrucomicrobia:疣微菌门;Synergistetes:互养菌门;Fibrobacteres:纤维杆菌门;Armatimonadetes:装甲菌门;Acidobacteria:酸杆菌门;Gemmatimonadetes:芽单胞菌门;Cyanobacteria:蓝菌门;Actinobacteria:放线菌门;Tenericutes:软壁菌门;Bacteroidetes:拟杆菌门;Proteobacteria:变形菌门;Firmicutes:厚壁菌门;Salmonella:沙门氏菌属;Mycoplasma:支原体属;Oscillibacter:颤杆菌克属;Butyrivibrio:丁酸弧菌属;Prevotella:普雷沃菌属;Ruminococcus:瘤胃球菌属;Jeotgalicoccus:海鲜球菌属;Clostridium:梭菌属;Bacillus:芽孢杆菌属;Acinetobacter:不动杆菌属;Escherichia:埃希氏杆菌属;Blautia:布劳特氏菌属;Bacteroides:拟杆菌属;Helicobacter:螺杆菌属;Staphylococcus:葡萄球菌属;Salmonella enterica:肠道沙门氏菌;Staphylococcus xylosus:木糖葡萄球菌;Acinetobacter sp. ACNIH1:不动杆菌属ACNIH1;Bacteroides vulgatus:普通拟杆菌;Anaerobutyricum hallii:厌氧丁酸杆菌;Bacteroides cellulosilyticus:解纤维素拟杆菌;Muribaculum intestinale:肠鼠杆菌;Anaerostipes hadrus:哈氏真杆菌;Blautia sp. N6H1-15:布劳特氏菌属N6H1-15;Helicobacter apodemus:田鼠螺杆菌;Helicobacter hepaticus:肝螺旋杆菌;Escherichia coli:大肠杆菌;Staphylococcus lugdunensis:路邓葡萄球菌;Staphylococcus aureus:金黄色葡萄球菌; Helicobacter typhlonius:盲肠螺杆菌。图5同 the same as Fig.5

A:门水平肠道菌群组成;B:F/B比值;C:属水平肠道菌群组成;D:种水平肠道菌群组成。***为P<0.001。

Fig.4 Effects of dietary 6‰ compound on composition of microflora in cecum contents of Kunming mice

A: phyla-level intestinal microflora composition; B: F/B ratio; C: genus-level intestinal microflora composition; D: species-level intestinal microflora composition. *** indicates P<0.001.

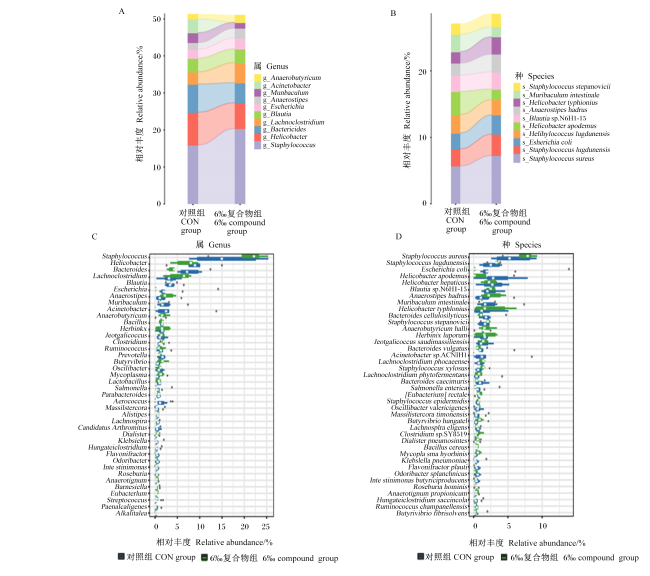
图4-C图5-A所示,在属水平上,与对照组相比,6‰复合物组中葡萄球菌属(Staphylococcus)、Lachnoclostridium、厌氧链球菌属(Anaerostipes)、厌氧丁酸菌属(Anaerobutyricum)和Herbinix相比丰度分别上调了28.22%、66.70%、47.58%、39.64%和24.93%。然而,螺杆菌属(Helicobacter)、拟杆菌属(Bacteroides)、肠鼠杆菌属(Muribaculum)和不动杆菌属ACNIH1(Acinetobacter sp. ACNIH1)相对丰度分别下调了21.73%、29.29%、42.77%和99.41%。尤其是相对对照组,6‰复合物组小鼠盲肠内容物中梭菌属(Clostridium)(P<0.05)、支原体属(Mycoplasma)(P<0.05)和链球菌属(Streptococcus)(P<0.01)的相对丰度显著或极显著升高,而气球菌属(Aerococcus)相对丰度极显著降低(P<0.05)(图5-C)。
图5 饲粮中添加6‰复合物的昆明小鼠盲肠内容物中菌群组成在属和种水平上的差异分析

Anaerostipes:厌氧链球菌属;Muribaculum:肠鼠杆菌属;Lactobacillus:乳杆菌属;Parabacteroides:副拟杆菌属;Aerococcus:气球菌属;Massilistercora:蒂氏马氏菌属;Alistipes:另枝菌属;Lachnospira:毛螺菌属;Candidatus Arthromitus:分节丝状菌属;Dialister:戴阿利斯特杆菌属;Klebsiella:克雷伯氏菌属;Flavonifractor:解黄酮菌属;Roseburia:罗斯氏菌属;Eubacterium:真杆菌属;Streptococcus:链球菌属;Lachnoclostridium phocaeense:噬海鞘氨醇梭菌;Lachnoclostridium phytofermentans:植物发酵梭菌;[Eubacterium] rectale:直肠真杆菌;Staphylococcus epidermidis:表皮葡萄球菌;Oscillibacter valericigenes:颤杆菌;Massilistercora timonensis:马塞氏杆菌;Butyrivibrio hungatei:亨盖特丁酸弧菌;Clostridium sp. SY8519:梭状芽孢杆菌属SY8519;Bacillus cereus:蜡样芽孢杆菌;Mycoplasma hyorhinis:猪鼻支原体;Klebsiella pneumoniae:肺炎克雷伯菌;Flavonifractor plautii:源自珀氏解黄酮菌;Odoribacter splanchnicus:内脏臭气杆菌;Roseburia hominis:罗斯拜瑞氏菌;Ruminococcus champanellensis:瘤胃球菌属香槟亚种;Butyrivibrio fibrisolvens:溶纤维丁酸弧菌;Herbinix luporum:哈尔滨毛螺菌。

A:高相对丰度属桑基图(按总平均丰度排序);B:高相对丰度种桑基图(按总平均丰度排序);C:对照组和6‰复合物组中40个最丰富的属之间的差异;D:对照组和6‰复合物组中40个最丰富的种之间的差异。*为差异显著(P<0.05), **为差异极显著(P<0.01)。A: Sankey map for genera with high relative abundance (sorted by total mean abundance); B: Sankey map for species with high relative abundance (sorted by total mean abundance); C: differences between the 40 most abundant genera in the CON group and the 6‰ compound group; D: differences between the 40 most abundant species in the CON group and 6‰ compound group. * was significantly different (P<0.05), ** was very significant difference (P<0.01).

Fig.5 Difference analysis of microflora composition in cecum contents at genus and species levels of Kunming mice supplemented with 6‰ compound

图4-D图5-B所示,在种水平上,相对对照组,在6‰复合物组中,肝螺旋杆菌(Helicobacter hepaticus)、田鼠螺杆菌(Helicobacter apodemus)、肠鼠杆菌(Muribaculum intestinale)、不动杆菌属ACNIH1(Acinetobacter sp. ACNIH1)等有害菌的相对丰度分别下调了17.16%、55.10%、42.77%和99.89%。而宠大真杆菌(Anaerostipes hadrus)、厌氧丁酸杆菌(Anaerobutyricum hallii)和哈尔滨毛螺菌(Herbinix luporum)等有益菌的相对丰度分别上调了47.58%、39.64%和24.93%。尤其是,如图5-D所示,相对对照组,6‰复合物组小鼠盲肠内容物中木糖葡萄球菌(Staphylococcus xylosus)(P<0.05)和亨盖特丁酸弧菌(Butyrivibrio hungatei)(P<0.05)相对丰度显著提高。不容忽视的是,相对对照组,在6‰复合物组中,金黄色葡萄球菌(Staphylococcus aureus)、大肠杆菌(Escherichia coli)、盲肠螺杆菌(Helicobacter typhlonius)和肠道沙门氏菌(Salmonella enterica)等致病菌相对丰度均有所上升,但没有统计学意义(P>0.05)。

2.4.3 差异物种分析

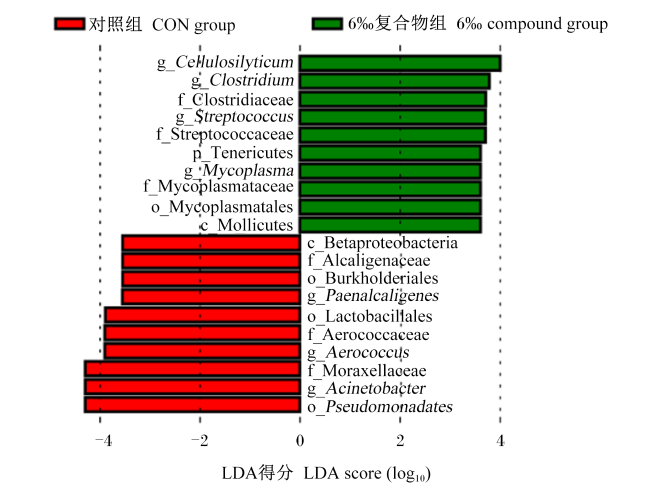
为了找到重要的并且在组之间差异显著的物种,本试验采用LEfSe分析筛选6‰复合物组和对照组之间具有统计学差异的物种[线性判别分析(LDA)值>3]。如图6所示,共有20个物种对2组间差异贡献大,且具有统计学意义,其中10个物种在对照组显著富集,包括假单胞菌目(Pseudomonadales)、不动杆菌属、莫拉氏菌科(Moraxellaceae)和气球菌属;10个物种在6‰复合物组显著富集,主要是Cellulosilyticum和梭菌属。
图6 饲粮中添加6‰复合物的昆明小鼠盲肠内容物中菌群组成的差异物种分析(LEfSe分析)

Clostridium:梭菌属;Clostridiaceae:梭菌科;Streptococcus:链球菌属;Streptococcaceae:链球菌科;Tenericutes:软壁菌门;Mycoplasma:支原体属;Mycoplasmataceae:支原体科;Mycoplasmatales:支原体目;Mollicutes:柔膜菌纲;Betaproteobacteria:变形菌纲;Alcaligenaceae:产碱杆菌科;Burkholderiales:伯克霍尔德氏菌目;Lactobacillales:乳酸杆菌科;Aerococcaceae:气球菌科;Aerococcus:气球菌属;Moraxellaceae:莫拉氏菌科;Acinetobacter:不动杆菌属;Pseudomonadates:假单胞菌目。

Fig.6 Differential species analysis of microflora composition in cecum contents of Kunming mice supplemented with 6‰ compound (LEfSe analysis)

3 讨论

3.1 饲粮中添加PB与CMP的复合物对小鼠生长性能的影响

有研究揭示多糖和益生菌的结合在提升动物健康方面展现出协同效应[27]。例如,黄芪多糖通过其抗氧化、抗炎和免疫调节作用,能有效减轻自由基对猪细胞和组织的损害,并增强猪的免疫力,进而降低发病率和死亡率。同时,复合益生菌通过改善肠道健康,如占据肠道生态位和分泌益生素(乳酸、短链脂肪酸和细菌素)等,有助于调节猪的肠道菌群平衡,提升消化吸收能力及免疫力[27]。研究还发现,1‰黄芪多糖、皂苷(10 mg/kg)和益生菌(非解乳糖链球菌、植物乳杆菌与枯草芽孢杆菌)的组合能够增强雏鸡对大肠杆菌的抵抗力,显示出替代抗生素的可能性[28]。此外,添加1‰岩藻多糖和100 mg/kg益生菌的饲粮对仔猪的生长性能影响不显著,但能有效减轻断奶仔猪的腹泻,提高其抗氧化和抗炎能力,促进肠道健康[29]
尽管益生菌制剂的健康益处被广泛认可,但其在常温下的存活率低是一个挑战[30]。将益生菌制备成后生元并添加到饲粮中,不仅能提升肠道健康[31],还能提高初产蛋鸡(海兰褐蛋鸡)的抗氧化和免疫能力[32],同时也更安全与稳定[33]。本试验采用PB与CMP复配,以昆明小鼠为试验对象,验证两者复配的协同效应,旨在提升其在动物生长性能改善方面的应用潜力。研究结果表明,虽然料重比未显著改善,但小鼠的平均日采食量、平均日增重和体重明显提升,这表明复合物可能通过提高采食量和消化吸收能力来促进动物生长。这一发现提示,进一步研究这种复合物对肠道菌群的影响是必要的。

3.2 饲粮中添加PB与CMP的复合物对小鼠肠道菌群结构的影响

肠道作为动物体内的一道重要防御屏障,其健康状况直接影响着动物的生长与生产性能。致病菌感染畜禽常导致肠道炎症及黏膜损伤,从而引发各种肠道疾病,这不仅给养殖业带来了巨大的经济损失,也对动物福利构成了威胁[34]。因此,降低肠道疾病的发病率对于养殖动物的健康至关重要。研究表明,某些中药多糖提取物如当归多糖、茯苓多糖及马齿苋多糖能够有效促进植物乳杆菌LP-2的生长,并上调其代谢产物的生成。这些代谢产物在抑制大肠杆菌和沙门氏菌的生长方面表现出显著的效果[35]。基于此,对不同饲喂组的小鼠盲肠内容物进行了菌群测序,运用LEfSe分析揭示了试验组之间存在统计学差异的微生物种类。在6‰复合物组中,显著富集的微生物种类主要包括Cellulosilyticum和梭菌属。这些微生物与肠道健康密切相关,能够产生丁酸、乙酸和乳酸等短链脂肪酸。这些代谢产物在维持肠道微生态平衡和促进肠道黏膜健康方面起着至关重要的作用[36]。进一步的种水平分类分析显示,相较于对照组,PB与CMP的复合物显著下调了有害菌如肝螺旋杆菌(Helicobacter hepaticus)和田鼠螺杆菌的相对丰度,同时显著上调了有益菌亨盖特丁酸弧菌的相对丰度。亨盖特丁酸弧菌是丁酸弧菌属中的重要严格厌氧菌,主要存在于盲肠和结肠中,其通过代谢可溶性多糖和植物纤维产生丁酸盐,还能通过产生细菌素抑制多种革兰氏阳性病原菌的生长,对维持肠道健康具有重要作用[37-39]
与本试验研究结果类似,Wang等[40]的研究表明,在基础饲粮中添加1‰甘草多糖能够显著提升断奶仔猪的生长性能、消化酶活性、肠道免疫力、屏障功能及微生物群落。Wu等[41]发现,基础饲粮中添加100 mg/kg黄芪多糖可促进鲫鱼(Crucian carps)的生长并增强其抗病能力。此外,研究表明,食用热灭活植物乳杆菌TWK10对小鼠和人类均具有益生作用,能够提高运动耐力、调节身体成分并减轻衰老相关问题[42]。Li等[43]的研究证明,在基础饲粮中添加3‰植物乳杆菌后生元可改善水貂的生长性能和免疫状态,并调节其肠道菌群结构。Humam等[44]研究使用3种不同的植物乳杆菌(RI11、RS5和UL4)添加到肉雏鸡的基础饲粮中,添加量为3‰,结果显示,饲喂植物乳杆菌组的生长性能明显优于对照组,且盲肠中有益菌数量增加,沙门氏菌数量减少。邱凯等[32]的研究表明,在饲粮中添加0.1%或0.2%嗜酸乳杆菌后生元,可以显著提升初产蛋鸡(海兰褐蛋鸡)的生产性能与鸡蛋品质。此外,这种添加剂还能够调节海兰褐蛋鸡的脂肪代谢,促进肝肾健康,增强机体免疫力及抗氧化能力。吴飞等[45]的研究发现,在基础饲粮中添加3‰~6‰来源于嗜酸乳酸杆菌CGMCC No.3614的后生元,可以提高断奶仔猪的生长性能并改善肠道菌群结构。此外,研究还发现,活的罗伊氏乳杆菌可能通过分泌罗氏菌素抑制幽门螺旋杆菌(Helicobacter pylori)的生长[46],而失活的罗伊氏乳杆菌则可能通过与幽门螺旋杆菌发生共凝集作用,有效抑制其感染[47-48]
有研究表明,肥胖患者的肠道微生物组成相较于正常体重个体,表现出拟杆菌门(易瘦菌)数量减少而厚壁菌门(易胖菌)数量增加的特征[49-50]。这一现象表明,F/B比值是评估个体肥胖趋势的重要生物标志。本试验结果表明,饲喂6‰复合物能够显著提升昆明小鼠肠道菌群中的F/B比值。此外,与刘欣等[25]提取的不同组分碱溶性CMP相比,所提取的CMP在还原力和超氧自由基清除能力上较弱,但在羟基自由基清除能力方面表现较强。冯燕茹[51]的研究表明,降解后低分子质量CMP的抗氧化活性更佳,但抗氧化活性并非单纯依赖分子质量的降低。此外,研究还发现,在0.1~1 mg/mL的浓度内,CMP对维持细胞膜稳定性、抑制脂质过氧化以及提高细胞内抗氧化酶活性效果最佳[51]。这些结果表明,CMP的空间结构、分子质量及其浓度均会影响其抗氧化活性,因此抗氧化活性可作为CMP的重要质量控制指标。
基于以上研究结果,笔者推测PB与CMP的复合物可能通过增强机体的抗氧化和免疫能力,以及显著提升昆明小鼠肠道微生物群落中的F/B比值和有益菌相对丰度,从而改善小鼠的生长性能。
Bermudez-Brito等[52]的研究表明,鼠李糖乳杆菌NRRL B-442的无细胞培养上清液对多种细菌,包括大肠杆菌、单核细胞增多性乳杆菌、金黄色葡萄球菌及鼠伤寒沙门氏菌,均展现出显著的抗菌活性。然而,值得注意的是,饲喂PB与CMP复合物的小鼠盲肠内容物中金黄色葡萄球菌、大肠杆菌和肠道沙门氏菌等致病菌相对丰度均有所上升,但没有统计学意义。并且,基础饲粮中添加6‰复合物对昆明小鼠盲肠内容物中菌群的α多样性没有显著影响,推测其原因可能为:1)饲喂周期短,复合物中有效成分可能还不足以对肠道菌群多样性造成显著影响;2)6‰浓度复合物中抑菌成分,如罗氏菌素、丁酸和乳酸等的含量,还不足以显著抑制金黄色葡萄球菌等致病菌的生长;3)可能与各组采集样品数量较少有关。以上研究结果也提示需要进一步改进发酵工艺,以显著提升发酵液中丁酸、乙酸、乳酸、细菌素和罗氏菌素等代谢产物的含量。此外,还需进一步提高具有清除幽门螺旋杆菌效果的罗伊氏乳杆菌在后生元中的比例。未来试验中将选择饲喂周期更长的经济动物进行验证,期望为PB与CMP的复合物制备工艺的进一步改进及其应用提供科学依据。

4 结论

本研究结果表明,PB与CMP复合物展现出显著的抗氧化特性及益生效应,能够有效调节肠道菌群结构,提升有益菌的相对丰度,并降低致病菌的相对丰度,同时促进小鼠的体重增加。
[1]
WU K, QIN J R, LIU M Z, et al. Bioinformatics approach and experimental validation reveal the hepatoprotective effect of pachyman against acetaminophen-associated liver injury[J]. Aging, 2023, 15(17):8800-8811.

[2]
石清东, 蒋先明. 二次碱化法制备羧甲基茯苓多糖[J]. 天然产物研究与开发, 1996, 8(2):78-81.

SHI Q D, JIANG X M. Twice alkalization method for preparation of carboxymethylpachymaran[J]. Natural Product Research and Development, 1996, 8(2):78-81. (in Chinese)

[3]
JING T T, GUO Y L, WEI Y Q. Carboxymethylated pachyman induces ferroptosis in ovarian can-cer by suppressing NRF1/HO-1 signaling[J]. Oncology Letters, 2022, 23(5):161.

[4]
SALMINEN S, COLLADO M C, ENDO A, et al. The international scientific association of probiotics and prebiotics (ISAPP) consensus statement on the definition and scope of postbiotics[J]. Nature Reviews Gastroenterology & Hepatology, 2021, 18(9):649-667.

[5]
李杨, 周湘人, 郭薇丹, 等. 后生元的研究进展[J]. 食品安全质量检测学报, 2021, 12(16):6558-6564.

LI Y, ZHOU X R, GUO W D, et al. Research progress of postbiotics[J]. Journal of Food Safety & Quality, 2021, 12(16):6558-6564. (in Chinese)

[6]
王婷, 彭敏, 童雅琴, 等. 后生元和类生元的研究进展[J]. 食品研究与开发, 2022, 43(3):216-224.

WANG T, PENG M, TONG Y Q, et al. Research progress in postbiotics and paraprobiotics[J]. Food Research and Development, 2022, 43(3):216-224. (in Chinese)

[7]
巩宇, 王小龙, 韩兴状, 等. 乳酸链球菌素后生元对育成期水貂生长性能、营养物质表观消化率、免疫功能及抗氧化能力的影响[J]. 动物营养学报, 2024, 36(11):7275-7283.

DOI

GONG Y, WANG X L, HAN X Z, et al. Effects of nisin postbiotics on growth performance,nutrient apparent digestibilities,immune function and antioxidant capacity of minks during growing period[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7275-7283. (in Chinese)

DOI

[8]
徐大海, 田茂金, 王霄, 等. 后生元对肉鸡生长性能、肠道发育和养分表观代谢率的影响[J]. 中国家禽, 2023, 45(9):45-51.

XU D H, TIAN M J, WANG X, et al. Effect of postbiotics on growth performance,intestinal development and apparent nutrient metabolic rate of broilers[J]. China Poultry, 2023, 45(9):45-51. (in Chinese)

[9]
王腾浩. 新型丁酸梭菌筛选及其对断奶仔猪生长性能和肠道功能影响的研究[D].博士学位论文. 杭州: 浙江大学, 2015.

WANG T H. Screening of a novel Clostridium butyricum and its administration on growth performance and gut function in weaning piglets[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2015. (in Chinese)

[10]
陆小昙, 王棋, 季强. 丁酸梭菌对羔羊生长性能、肝脏脂质代谢、抗氧化能力及血液指标的影响[J]. 动物营养学报, 2024, 36(5):3156-3169.

DOI

LU XT, WANG Q, JI Q, et al. Effects of Clostridium butyricum on growth performance, liver lipid metabolism, antioxidant capacity and blood indices of lambs[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):3156-3169. (in Chinese)

[11]
耿正颖, 史林鑫, 刘萍, 等. 日粮中添加丁酸梭菌对断奶仔猪生长性能、抗氧化能力和免疫功能的影响[J]. 畜牧兽医学报, 2018, 49(8):1651-1660.

GENG Z Y, SHI L X, LIU P, et al. Effects of dietary supplemented with Clostridium butyricum on growth performance,antioxidant capacity and immune function in weaned piglets[J]. Acta Veterinaria et Zootechnica Sinica, 2018, 49(8):1651-1660. (in Chinese)

[12]
刘雅婷, 郑梦莉, 阳治康, 等. 饲粮中添加丁酸梭菌和丁酸钠对蛋鸡生产性能、蛋品质及肠道健康的影响[J]. 动物营养学报, 2024, 36(8):4957-4970.

DOI

LIU Y T, ZHENG M L, YANG Z K, et al. Effects of dietary Clostridium butyricum and sodium butyrate on performance, egg quality and intestinal health of laying hens[J]. Chinese Journal of Animal Nutrition, 2024, 36(8):4957-4970. (in Chinese)

[13]
王思梦, 聂存喜, 姬琳堡, 等. 丁酸梭菌对爱拔益加肉鸡生长性能、肠道健康和抗氧化能力的影响[J]. 动物营养学报, 2024, 36(2):897-907.

DOI

WANG S M, NIE C X, JI L B, et al. Effects of Clostridium butyricum on growth performance, intestine health and antioxidant capacity of Arbor Acres broilers[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):897-907. (in Chinese)

[14]
雷春龙, 王巧娜, 曾雁鸣, 等. 丁酸梭菌生物学功能以及在鸡生产中的应用[J]. 中国家禽, 2021, 43(5):92-97.

LEI C L, WANG Q N, ZENG Y M, et al. Biological function of Clostridium butyricum and its application in chicken production[J]. China Poultry, 2021, 43(5):92-97. (in Chinese)

[15]
冯杰, 杨旸, 周莉, 等. 丁酸梭菌的生物学功能及其在家禽生产中应用的研究进展[J]. 现代畜牧兽医, 2023,(6):79-83.

FENG J, YANG Y, ZHOU L, et al. Research progress on biological function of Clostridium butyricum and its application in poultry production[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2023,(6):79-83. (in Chinese)

[16]
侯成立. 罗伊氏乳杆菌全基因组序列分析及其调节仔猪肠黏膜免疫功能的研究[D].博士学位论文. 北京: 中国农业大学, 2015.

HOU C L. Whole genome sequence analysis of Lactobacillus reuteri and its regulation in intestinal mucosal immunity of piglets[D].Ph.D.Thesis. Beijing: China Agricultural University, 2015. (in Chinese)

[17]
BRON P A, VAN BAARLEN P, KLEEREBEZEM M. Emerging molecular insights into the interaction between probiotics and the host intestinal mucosa[J]. Nature Reviews Microbiology, 2011, 10(1):66-78.

DOI PMID

[18]
CASAS I A, DOBROGOSZ W J. Validation of the probiotic concept:Lactobacillus reuteri confers broad-spectrum protection against disease in humans and animals[J]. Microbial Ecology in Health and Disease, 2000, 12(4):247-285.

[19]
CHEN S J, NAI Z D, QIN Z L, et al. The extracellular polysaccharide inhibit porcine epidemic diarrhea virus with extract and gene editing Lacticaseibacillus[J]. Microbial Cell Factories, 2023, 22(1):225.

[20]
ZHANG X L, ZHANG C L, XIAO L Y, et al. Digestive characteristics of extracellular polysaccharide from Lactiplantibacillus plantarum T1 and its regulation of intestinal microbiota[J]. International Journal of Biological Macromolecules, 2024, 259(Pt 2):129112.

[21]
WANG Y C, LIU R X, XIE Z X, et al. Structure characterization and immunological activity of capsular polysaccharide from live and heat-killed Lacticaseibacillus paracasei 6235[J]. International Journal of Biological Macromolecules, 2024, 277(Pt 1):134010.

[22]
CHEN Y C, YU Y H. Bacillus licheniformis-fermented products improve growth performance and the fecal microbiota community in broilers[J]. Poultry Science, 2020, 99(3):1432-1443.

[23]
张玺, 刘根新, 孙月华, 等. 黄芪多糖和复合益生菌对保育猪成活率和腹泻率的影响[J]. 国外畜牧学(猪与禽), 2023, 43(3):50-52.

ZHANG X, LIU G X, SUN Y H, et al. Effects of Astragalus polysaccharides and complex probiotics on survival rate and diarrhea rate of nursed pigs[J]. Animal Science Abroad-Pigs and Poultry, 2023, 43(3):50-52. (in Chinese)

[24]
张玺, 刘根新, 孙月华, 等. 黄芪多糖和复合益生菌对保育猪生长性能的影响[J]. 国外畜牧学(猪与禽), 2023, 43(6):37-38.

ZHANG X, LIU G X, SUN Y H, et al. Effects of astragalus polysaccharides and complex probiotics on growth performance of nursery pigs[J]. Animal Science Abroad-Pigs and Poultry, 2023, 43(6):37-38. (in Chinese)

[25]
刘欣. 羧甲基茯苓多糖组分的制备及其抗氧化活性研究[D].硕士学位论文. 长沙: 湖南农业大学, 2016.

LIU X. The preparation of carboxymethyl-pachymancomponent and its antioxidant effect[D].Master’s Thesis. Changsha: Hunan Agricultural University, 2016. (in Chinese)

[26]
庞一林, 熊小军, 梁嘉敏, 等. 一种丁酸梭菌的筛选分离方法及其应用:CN202310071712.1[P]. 2023-02-07.

PANG Y L, XIONG X J, LIANG J M, et al. A screening and isolation method for Clostridium butyricum and its application:CN202310071712.1[P]. 2023-02-07. (in Chinese)

[27]
杨远友, 贺成龙. 黄芪多糖和复合益生菌对保育猪成活率的影响[J]. 猪业科学, 2024, 41(2):85-87.

YANG Y Y, HE C L. Effects of astragalus polysaccharides and compound probiotics on survival rate of nursed pigs[J]. Swine Industry Science, 2024, 41(2):85-87. (in Chinese)

[28]
刘佳惠, 吴开开, 王磊, 等. 黄芪多糖、皂苷及益生菌复合物对感染大肠杆菌肉鸡肠道的保护作用[J]. 畜牧兽医学报, 2024, 55(5):2241-2252.

DOI

LIU J H, WU K K, WANG L, et al. Protective effects of Astragalus polysaccharides,saponins and probiotic compounds on intestinal tract of broilers infected with E.coli[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(5):2241-2252. (in Chinese)

[29]
姜国圆, 沈铭, 万波扬, 等. 岩藻多糖与益生菌对断奶仔猪生长、血清生化、粪便短链脂肪酸和微生物的影响[J]. 中国畜牧杂志, 2024, 60(5):247-254.

JIANG G Y, SHEN M, WAN B Y, et al. Effects of seaweed polysaccharides and probiotics on growth,serum biochemistry,fecal short-chain fatty acids and microorganisms of weaned piglets[J]. Chinese Journal of Animal Science, 2024, 60(5):247-254. (in Chinese)

[30]
SHAH N P. Probiotic bacteria:selective enumeration and survival in dairy foods[J]. Journal of Dairy Science, 2000, 83(4):894-907.

[31]
蔡旋, 刘珊, 王莹, 等. 补充后生元对犬粪便特性、血清生化指标及粪便菌群的影响[J]. 饲料研究, 2024, 47(1):131-136.

CAI X, LIU S, WANG Y, et al. Effect of postbiotic supplementation on fecal characteristics,serum biochemical indexes,and fecel flora of dogs[J]. Feed Research, 2024, 47(1):131-136. (in Chinese)

[32]
邱凯, 官小凤, 桑杨, 等. 嗜酸乳杆菌后生元对初产蛋鸡生产性能、血液指标和鸡蛋品质的影响[J]. 中国畜牧兽医, 2024, 51(11):4824-4832.

DOI

QIU K, GUAN X F, SANG Y, et al. Effects of Lactobacillus acidophilus post-biotic on production performance, blood indexes and egg quality of laying hens in the initial laying stage[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(11):4824-4832. (in Chinese)

[33]
冯光宝, 和玉丹. 后生元的益生机制及其在畜禽生产中应用的研究进展[J]. 江西畜牧兽医杂志, 2023(3):4-9.

FENG G B, HE Y D. Research progress on the prebiotic mechanism of epigenin and its application in livestock and poultry production[J]. Jiangxi Journal of Animal Husbandry & Veterinary Medicine, 2023(3):4-9. (in Chinese)

[34]
戴子延. 鼠李糖乳杆菌后生元对脂多糖体外诱导IPEC-J2细胞炎性因子释放的影响[D].硕士学位论文. 长春: 吉林农业大学, 2023.

DAI Z Y. Effect of Lactobacillus rhamnosus postbiotics on LPS-induced inflammatory factors release in vitro lPEC-J2[D].Master’s Thesis. Changchun: Jilin Agricultural University, 2023. (in Chinese)

[35]
彭晓. 植物多糖联合植物乳杆菌LP-2在大肠杆菌及沙门氏菌感染过程中的抑菌效果及机制探究[D].硕士学位论文. 武汉: 华中农业大学, 2023.

PENG X. Study on the antibacterial effect and mechanism of plant polysaccharide comined with LP-2 during the infection of Escherichla coli and Salmonella[D].Master’s Thesis. Wuhan: Huazhong Agricultural University, 2023. (in Chinese)

[36]
梁胜男, 柯楚新, 黄鹤, 等. 肠道内产丁酸细菌及其产物丁酸生理功能的研究进展[J]. 微生物学通报, 2021, 48(3):948-959.

LIANG S N, KE C X, HUANG H, et al. Butyrate-producing bacteria in the intestinal tract and the physiological function of their metabolite butyrate:a review[J]. Microbiology China, 2021, 48(3):948-959. (in Chinese)

[37]
PALEVICH N, KELLY W J, LEAHY S C, et al. The complete genome sequence of the rumen bacterium Butyrivibrio hungatei MB2003[J]. Standards in Genomic Sciences, 2017, 12(1):72.

[38]
PAILLARD D, MCKAIN N, CHAUDHARY L C, et al. Relation between phylogenetic position,lipid metabolism and butyrate production by different Butyrivibrio-like bacteria from the rumen[J]. Antonie Van Leeuwenhoek, 2007, 91(4):417-422.

[39]
PALEVICH N, KELLY W J, GANESH S, et al. Butyrivibrio hungatei MB2003 competes effectively for soluble sugars released by Butyrivibrio proteoclasticus B316T during growth on xylan or pectin[J]. Applied and Environmental Microbiology, 2019, 85(3):e02056-18.

[40]
WANG X Y, ZHAO P L, ZHANG C, et al. Effects of supplemental Glycyrrhiza polysaccharide on growth performance and intestinal health in weaned piglets[J]. Animal Biotechnology, 2024, 35(1):2362640.

[41]
WU S J. Dietary Astragalus membranaceus polysaccharide ameliorates the growth performance and innate immunity of juvenile crucian carp (Carassius auratus)[J]. International Journal of Biological Macromolecules, 2020, 149:877-881.

[42]
CHENG Y C, LEE C C, LEE M C, et al. Effects of heat-killed Lactiplantibacillus plantarum TWK10 on exercise performance,fatigue,and muscle growth in healthy male adults[J]. Physiological Reports, 2023, 11(19):e15835.

[43]
LI Y L, ZHEN S B, CAO L, et al. Effects of Lactobacillus plantarum postbiotics on growth performance,immune status,and intestinal microflora of growing minks[J]. Animals, 2023, 13(18):2958.

[44]
HUMAM A M, LOH T C, FOO H L, et al. Effects of feeding different postbiotics produced by Lactobacillus plantarum on growth performance,carcass yield,intestinal morphology,gut microbiota composition,immune status,and growth gene expression in broilers under heat stress[J]. Animals, 2019, 9(9):644.

[45]
吴飞, 刘虎, 马树良, 等. 无抗日粮中添加后生元对断奶仔猪生长性能及肠道菌群结构的影响[J]. 中国畜牧杂志, 2021, 57(z1):253-256.

WU F, LIU H, MA S L, et al. Effects of supplemental epigenin on growth performance and intestinal flora structure of weaned piglets without resistance[J]. Chinese Journal of Animal Science, 2021, 57(z1):253-256. (in Chinese)

[46]
URRUTIA-BACA V H, ESCAMILLA-GARCÍA E, DE LA GARZA-RAMOS M A, et al. In vitro antimicrobial activity and downregulation of virulence gene expression on Helicobacter pylori by reuterin[J]. Probiotics and Antimicrobial Proteins, 2018, 10(2):168-175.

[47]
MEHLING H, BUSJAHN A. Non-viable Lactobacillus reuteri DSMZ 17648 (PylopassTM) as a new approach to Helicobacter pylori control in humans[J]. Nutrients, 2013, 5(8):3062-3073.

[48]
HOLZ C, BUSJAHN A, MEHLING H, et al. Significant reduction in Helicobacter pylori load in humans with non-viable Lactobacillus reuteri DSM17648:a pilot study[J]. Probiotics and Antimicrobial Proteins, 2015, 7(2):91-100.

[49]
BÄCKHED F, DING H, WANG T, et al. The gut microbiota as an environmental factor that regulates fat storage[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(44):15718-15723.

DOI PMID

[50]
LEY R E, TURNBAUGH P J, KLEIN S, et al. Microbial ecology:human gut microbes associated with obesity[J]. Nature, 2006, 444(7122):1022-1023.

[51]
冯燕茹. 不同分子量羧甲基茯苓多糖的制备及其抗氧化活性的研究[D].硕士学位论文. 广州: 华南理工大学, 2019.

FENG Y R. Study on preparation and antioxidant activity of carboxymethyl Poria cocos polysaccharides with different molecular weight[D].Master’s Thesis. Guangzhou: South China University of Technology, 2019. (in Chinese)

[52]
BERISTAIN-BAUZA S C, MANI-LÓPEZ E, PALOU E, et al. Antimicrobial activity and physical properties of protein films added with cell-free supernatant of Lactobacillus rhamnosus[J]. Food Control, 2016, 62:44-51.

文章导航

/