研究论文

杂交构树叶片、叶柄、茎秆及全株的营养价值及分子结构特性研究

  • 江雨霏 , 1 ,
  • 毕小兵 2 ,
  • 王茜 1 ,
  • 马涛 3 ,
  • 黄艳玲 1 ,
  • 史海涛 , 1, *
展开
  • 1 西南民族大学畜牧兽医学院,青藏高原动物遗传资源保护与利用教育部重点实验室,成都 610041
  • 2 平凉市崆峒区动物疫病预防控制中心,平凉 744000
  • 3 中国农业科学院饲料研究所,农业农村部饲料生物技术重点实验室,北京 100081
*史海涛,教授,博士生导师,E-mail:

江雨霏(2000—),女,广西崇左人,硕士研究生,研究方向为反刍动物营养与饲料科学。E-mail:

Copy editor: 陈鑫

收稿日期: 2024-08-09

  网络出版日期: 2025-03-13

基金资助

国家重点研发项目(2022YFD1601605)

国家现代农业产业技术体系四川肉羊创新团队建设专项经费(SCCXTD-2024-14)

西南民族大学双一流项目(XM2023005)

国家民委中青年英才培养计划项目(2020)

Study on Nutritive Values and Molecular Structural Features of Leaf, Petiole, Stem, and Whole Plant of Hybrid Broussonetia papyrifera

  • JIANG Yufei , 1 ,
  • BI Xiaobing 2 ,
  • WANG Xi 1 ,
  • MA Tao 3 ,
  • HUANG Yanling 1 ,
  • SHI Haitao , 1, *
Expand
  • 1 Key Laboratory of Qinghai-Tibetan Plateau Animal Genetic Resource Reservation and Utilization, Ministry of Education, College of Animal Husbandry and Veterinary Medicine, Southwest Minzu University, Chengdu 610041, China
  • 2 Animal Disease Prevention and Control Center in Kongtong District of Pingliang City, Pingliang 744000, China
  • 3 Key Laboratory of Feed Biotechnology, Ministry of Agriculture and Rural Affairs, Feed Research Institute, Chinese Academy of Agricultural Science, Beijing 100081, China
*professor, E-mail:

Received date: 2024-08-09

  Online published: 2025-03-13

摘要

本研究旨在对比分析杂交构树不同部位(叶片、叶柄、茎秆上部、茎秆下部及全株)的营养价值及分子结构特性,为反刍动物非常规粗饲料资源的开发和饲粮配方设计提供基础数据。试验采用概略养分分析法和康奈尔净碳水化合物和蛋白质体系(CNCPS)评定杂交构树不同部位的营养成分含量,同时结合傅立叶变换红外光谱(FTIR)技术分析杂交构树不同部位的分子结构特性。结果表明: 1)杂交构树不同部位的营养成分和CNCPS组分存在显著差异(P<0.05)。其中,茎秆下部的中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、酸性洗涤木质素(ADL)、碳水化合物(CHO)和纤维素含量最高;叶片的粗蛋白质(CP)、可溶性纤维(CB2)、可消化纤维(CB3)和纤维结合蛋白质(PB2)含量最高。2)杂交构树不同部位的CHO和蛋白质分子结构参数存在显著差异(P<0.05)。其中,叶片的α-螺旋与β-折叠的峰高比值最高,而叶柄的α-螺旋与β-折叠的峰高比值、酰胺Ⅰ区与酰胺Ⅱ区的峰高比值最低。3)杂交构树不同部位的CHO、蛋白质分子结构参数与其对应的化学成分之间存在显著的相关性(P<0.05)。综上所述,杂交构树不同部位的营养价值及分子结构特性存在显著差异,设计饲粮配方时,应充分考虑所选用的构树部位及其相对比例。建议侧重选育叶片比例高、茎秆木质化程度低的构树品种,同时适当提高刈割高度,降低茎秆下部的比例,从而提升所收获构树原料的营养价值;营养成分与分子结构参数之间的相关性可为开发快速、无损预测杂交构树营养成分和饲用价值的模型提供数据支持。

本文引用格式

江雨霏 , 毕小兵 , 王茜 , 马涛 , 黄艳玲 , 史海涛 . 杂交构树叶片、叶柄、茎秆及全株的营养价值及分子结构特性研究[J]. 动物营养学报, 2025 , 37(3) : 2066 -2080 . DOI: 10.12418/CJAN2025.175

Abstract

This study aimed to compare and analyze the nutritive profiles and molecular structural features of different fractions (leaf, petiole, upper part of the stem, bottom part of the stem, and the whole plant) of the hybrid Broussonetia papyrifera variety, and to provide basic data for the development of unconventional roughage resources for ruminants and the design of forage formulations. This study was conducted to assess the nutrient content of different parts of hybrid Broussonetia papyrifera using probabilistic nutrient analysis and Cornell net carbohydrate and protein system (CNCPS), and to analyze the molecular structural profiles of different parts of hybrid Broussonetia papyrifera using Fourier transform infrared (FTIR) spectroscopy technique. The results showed as follows: 1) different parts of hybrid Broussonetia papyrifera exhibited varying nutrient compositions and CNCPS fractions (P<0.05). The contents of neutral detergent fiber (NDF), acid detergent fiber (ADF), acid detergent lignin (ADL), total carbohydrates (CHO), and cellulose in the bottom part of the stem were higher. The leaf had the highest value of crude protein (CP), soluble fiber (CB2), digestible fiber (CB3), and fiber-bound protein (PB2) contents. 2) Different parts of hybrid Broussonetia papyrifera exhibited varying molecular structural features of carbohydrates and protein (P<0.05). The leaf possessed the highest peak height ratio of α-helix/β-sheet while the petiole had the lowest peak height ratios for both amide Ⅰ/amide Ⅱ and α-helix/β-sheet. 3) Correlations were also observed between carbohydrate and protein molecular structural data and their corresponding chemical components and CNCPS fractions (P<0.05). In conclusion, different sections of hybrid Broussonetia papyrifera exhibit varying nutrient compositions and molecular structural properties. When designing ration formulations, full consideration should be given to the selected parts of hybrid Broussonetia papyrifera and their relative proportions. Future efforts should focus on selecting hybrid Broussonetia papyrifera varieties with higher proportion of leaves and lower degree of lignification of the stem. In addition, appropriately increasing the cutting height of the plant can improve its nutritive values to animals. The correlations between chemical components and molecular structural data can provide information for developing models for fast and non-destructiveness prediction of the nutritional value of hybrid Broussonetia papyrifera.

优质粗饲料和蛋白质饲料的匮乏是制约我国畜牧业发展的重要因素之一,因此开发非常规粗饲料资源显得尤为重要和紧迫[1]。我国很多规模化牧场长期依赖进口苜蓿和燕麦草等优质粗饲料,导致粗饲料成本居高不下,显著降低了我国牛、羊养殖业的竞争力。我国拥有丰富的非常规饲料资源,但总体利用率有待提高,很多饲料资源的营养价值尚未进行系统的评定[2]。以往的研究表明,合理利用非常规饲料资源,可以降低动物饲粮成本,而不会损害动物的健康和生产性能[2-3]。提升构树、桑树等非常规粗饲料资源的饲料化利用比例,也符合绿色生态发展的理念及可持续发展的要求[4]。构树(Broussonetia papyrifera)是一种落叶乔木或灌木,广泛分布于亚洲及欧美地区[5-6]。它具有营养价值高、生物量产量大、适应性强等特点[7-8]。近年来,中国科学院植物研究所采用现代生物技术结合传统杂交育种方法所培育的杂交构树,因其分蘖能力强、生长迅速、产量高,在我国多个省份得到了推广和种植[9]
而在杂交构树的种植和利用过程中,不同地区的养殖户和养殖场采用了多样化的利用方式[10]。一部分养殖户直接饲喂全株构树或制作全株构树青贮饲料,而更多农户仅采摘构树叶或构树植株的上半部分进行饲喂或晒干存贮。杂交构树不同部位的营养价值可能存在明显的差异,不同部位占全株的比例可能会直接影响全株构树的营养价值。刘玉等[11]对比了杂交构树叶片与茎秆的概略营养成分含量,结果表明叶片中的粗蛋白质(CP)、粗灰分(Ash)、粗脂肪(EE)及钙含量显著高于茎秆。Hao等[10]对比了构树叶片与茎秆的氨基酸含量,发现叶片的天冬氨酸、谷氨酸、亮氨酸等的含量均显著高于茎秆。而杂交构树不同部位的碳水化合物(CHO)组分、蛋白质组分和分子结构特征信息尚不明确,在一定程度上制约了动物饲粮配方设计和杂交构树的推广和应用。同时,获取杂交构树不同部位的营养价值参数及分子结构特性,也可以为构树的选育、改良、栽培和收获提供参考依据。
康奈尔净碳水化合物和蛋白质体系(Cornell net carbohydrate and protein system,CNCPS)是一种可以反映不同CHO组分和蛋白质组分的瘤胃消化降解特性,更加准确评定饲料营养价值的分析技术[12]。傅立叶变换红外光谱(Fourier transform infrared spectroscopy,FTIR)是一种用于分析物质化学组成的光谱分析技术,它主要通过测量样品对不同波段红外光的吸收情况,来识别和定量分析物质的分子结构和化学成分[13]。与传统的湿化学分析方法相比,FTIR技术具有快速、直接、无损、无需化学药品等诸多优势[14]。在饲料加工领域,FTIR技术可用于研究饲料不同组分的分子结构特性,而这些分子结构特性通常与饲料的消化利用特性密切相关[15]。Lei等[16]通过FTIR技术成功揭示了转基因苜蓿的分子结构参数与其营养成分含量之间的关系,相关研究在老芒麦[17]、中华羊茅[18]、籽用南瓜副产物[19]等饲料上也相继开展。鉴于此,本研究拟通过分子光谱技术,结合概略养分分析法和CNCPS体系,对比杂交构树不同部位的营养价值和分子结构特性,为杂交构树的选育、改良及其营养价值开发提供数据支撑。

1 材料与方法

1.1 试验材料

杂交构树样本采集自四川省成都市某杂交构树基地(东经103°29',北纬30°43',海拔532 m)。2023年5月11日,随机挑选3个不同地块的头茬全株杂交构树(生长天数为75 d,株高1.5 m,留茬高度为15~20 cm),分成4个部位:叶片(不含叶柄)、叶柄、茎秆上部(不含叶片、叶柄)和茎秆下部(距地面0.15~1.30 m的部分),并以全株作为对照。将所有样品在65 ℃下风干至恒重,粉碎后一部分样品过1.0 mm的筛用于进行常规养分分析,另一部分继续粉碎后过0.25 mm的筛用于FTIR的采集。

1.2 常规营养成分与CNCPS指标测定

干物质(DM)、CP和Ash含量分别参考AOAC(2005)[20]中的930.15、984.13和942.05方法进行测定。中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)和酸性洗涤木质素(ADL)含量根据Van Soest等[21]的方法使用全自动纤维分析仪(ANKOM,美国)进行测定。按照NRC(2001)[22]的方法计算纤维素、半纤维素和CHO的含量。可溶性蛋白质(SCP)、中性洗涤不溶蛋白质(NDICP)、酸性洗涤不溶蛋白质(ADICP)以及非蛋白氮(NPN)的含量参照Licitra等[23]的方法,利用杜马斯定氮仪(Dumathern,德国)完成测定。CNCPS中的CHO和蛋白质组分依据CNCPS(v6.5)修订版[12,24]计算得出。根据瘤胃降解情况和微生物对可利用的CHO的活性,可将CNCPS的CHO组分分为8个部分[25],根据测定值和CNCPS公式计算其中的可溶性纤维(CB2)、可消化纤维(CB3)和不可消化纤维(CC)的含量。根据蛋白质在瘤胃中的降解特点,CNCPS体系将蛋白质分为5个组分:氨(PA1)、可溶性真蛋白质(PA2)、难溶性真蛋白质(PB1)、纤维结合蛋白质(PB2)和非降解蛋白质(PC),同样根据测定值和CNCPS公式得出。

1.3 FTIR数据的采集和分析

使用FTIR仪(Nicolet iS50,Thermo Fisher Scientific Co.,美国)采集样品光谱。为了尽可能地减少大气背景中的二氧化碳噪声,先使用FTIR仪对大气背景进行256次扫描并扣除。随后在中红外区域(ca. 4 000~400 cm-1)对样品进行扫描,分辨率为4 cm-1,扫描次数为64次,每个样品采集3个平行图谱并分别保存为“CSV”文件。所采集的光谱文件都进行了归一化处理,并导入OMNIC 8.2软件进行峰高和峰面积等光谱数据的获取与分析。

1.4 数据统计分析

利用SAS 9.4软件中的PROC GLM模块对杂交构树不同部位的营养成分、CNCPS组分以及分子光谱参数进行单因素方差分析,并采用Duncan氏法进行多重比较。采用SAS 9.4软件的PROC CORR模块的PEARSON算法进行化学成分与分子光谱参数之间的相关性分析。使用R 3.4.2软件中的STATS软件包对分子光谱数据进行主成分分析(principal component analysis,PCA)。试验结果以平均值和均值标准误(SEM)表示,所有统计检验均以95%的显著性为标准,P<0.05表示差异显著。

2 结果与分析

2.1 杂交构树不同部位的营养成分及CNCPS组分

2.1.1 杂交构树不同部位的CHO成分和CNCPS的CHO组分

本研究所采集杂交构树样品的叶片、叶柄、茎秆上部和茎秆下部占全株的比例(DM基础)分别为(63.29±1.12)%、(6.60±1.17)%、(7.07±2.61)%和(23.04±3.07)%。由表1可知,杂交构树不同部位的NDF、ADF、ADL、CHO、非纤维性碳水化合物(NFC)、半纤维素和纤维素含量均存在显著差异(P<0.05)。其中,茎秆下部的NDF、ADF、ADL、CHO和纤维素含量最高,而叶片中的含量最低;叶柄的NFC含量显著高于其他部位(P<0.05),而半纤维素含量显著低于其他部位(P<0.05)。从CNCPS组分来看,杂交构树不同部位的CB2、CB3和CC含量均存在显著差异(P<0.05)。其中,叶柄和叶片的CB2含量显著高于茎秆上部和下部(P<0.05);而叶柄和叶片的CB3含量显著低于茎秆上部和下部(P<0.05);与其他部位相比,茎秆下部的CC含量最高,而叶片的CC含量最低。
表1 杂交构树不同部位的CHO成分和CNCPS的CHO组分

Table 1 CHO composition and CNCPS CHO fraction in different parts of hybrid Broussonetia papyrifera

项目
Items
叶片
Leaf
叶柄
Petiole
茎秆上部
Upper part
of the stem
茎秆下部
Bottom part
of the stem
全株
Whole
plant
均值
标准误
SEM
P
P-value
碳水化合物成分Carbohydrate composition/% DM
中性洗涤纤维NDF 38.62e 42.42d 52.60b 66.41a 49.25c 0.350 <0.001
酸性洗涤纤维ADF 18.76e 29.78c 40.02b 50.59a 27.47d 0.180 <0.001
酸性洗涤木质素ADL 0.84e 3.15d 3.57c 8.34a 6.32b 0.111 <0.001
碳水化合物CHO 62.43d 68.81c 69.94b 85.24a 68.99c 0.212 <0.001
非纤维性碳水化合物NFC 23.81b 26.39a 17.35d 18.86c 19.74c 0.285 <0.001
半纤维素Hemicellulose 19.86b 12.64d 12.58d 15.82c 21.78a 0.356 <0.001
纤维素Cellulose 17.91e 26.62c 36.46b 42.26a 21.15d 0.214 <0.001
CNCPS碳水化合物组分CNCPS carbohydrate fraction/% DM
可溶性纤维CB2 23.81b 26.39a 17.35d 18.83c 19.74c 0.285 <0.001
可消化纤维CB3 22.08c 21.62c 28.22b 36.60a 18.82d 0.453 <0.001
不可消化纤维CC 2.03e 7.56d 8.56c 20.01a 15.17b 0.266 <0.001
CNCPS碳水化合物组分CNCPS carbohydrate fraction/% CHO
可溶性纤维CB2 38.15a 38.35a 24.80c 22.09d 28.62b 0.378 <0.001
可消化纤维CB3 35.37c 31.42d 40.35b 42.94a 27.27e 0.557 <0.001
不可消化纤维CC 3.24d 11.00c 12.25c 23.48a 21.98b 0.407 <0.001

同行数据肩标不同字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。表2表4同。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as Table 2 to Table 4.

2.1.2 杂交构树不同部位的蛋白质成分和CNCPS的蛋白质组分

表2可知,杂交构树不同部位的CP、SCP、NPN、ADICP和NDICP含量均存在显著差异(P<0.05)。其中,叶片的CP、SCP、ADICP和NDICP含量在各部位中最高,显著高于叶柄、茎秆上部和茎秆下部(P<0.05);茎秆上部具有较高的NPN含量,其次是叶片和叶柄。在CNCPS组分中,茎秆上部和叶柄含有较高含量的PA1,其次是茎秆下部和叶片;叶片和茎秆上部和PA2含量高于叶柄和茎秆下部(P<0.05);茎秆下部的PB1比例最高,茎秆上部的最低;叶柄具有较高的PB2含量,其次是叶片,茎秆上部和下部的含量最低;在PC组分中,含量从高到低依次为叶片、茎秆上部、茎秆下部和叶柄。
表2 杂交构树不同部位的蛋白质成分和CNCPS的蛋白质组分

Table 2 Protein composition and CNCPS protein fraction in different parts of hybrid Broussonetia papyrifera

项目
Items
叶片
Leaf
叶柄
Petiole
茎秆上部
Upper part
of the stem
茎秆下部
Bottom part
of the stem
全株
Whole
plant
均值
标准误
SEM
P
P-value
蛋白质成分Protein composition/% DM
粗蛋白质CP 22.57a 12.37c 11.32d 6.41e 18.13b 0.071 <0.001
可溶性粗蛋白质SCP 9.15a 5.66d 6.55b 2.48e 6.20c 0.043 <0.001
非蛋白氮NPN 4.73b 4.68b 4.88a 2.25d 3.56c 0.038 <0.001
中性洗涤不溶粗蛋白质NDICP 10.77a 5.07b 4.67c 2.15d 5.18b 0.052 <0.001
酸性洗涤不溶粗蛋白质ADICP 6.24a 1.89c 2.78b 1.50d 1.85c 0.041 <0.001
CNCPS蛋白质组分CNCPS protein fraction/% DM
氨PA1 4.73b 4.68b 4.88a 2.25d 3.56c 0.038 <0.001
可溶性真蛋白质PA2 4.43a 0.99d 1.68c 0.24e 2.64b 0.016 <0.001
难溶性真蛋白质PB1 2.66b 1.64c 0.10d 1.78c 6.75a 0.049 <0.001
纤维结合蛋白质PB2 4.53a 3.19c 1.89d 0.66e 3.33b 0.085 <0.001
非降解蛋白质PC 6.24a 1.89c 2.78b 1.50d 1.85c 0.041 <0.001
CNCPS蛋白质组分CNCPS protein fraction/% CP
氨PA1 20.94d 37.81b 43.09a 34.99c 19.64e 0.200 <0.001
可溶性真蛋白质PA2 19.60a 7.96c 14.79b 3.63d 14.56b 0.107 <0.001
难溶性真蛋白质PB1 11.78d 13.24c 0.84e 27.82b 37.24a 0.374 <0.001
纤维结合蛋白质PB2 20.08b 25.75a 16.70c 10.27d 18.39bc 0.456 <0.001
非降解蛋白质PC 27.61a 15.25d 24.60b 23.29c 10.19e 0.265 <0.001

2.2 杂交构树不同部位的分子结构特性

2.2.1 杂交构树不同部位的CHO分子结构光谱参数

表3可知,杂交构树不同部位之间的CHO分子结构参数存在显著差异(P<0.05)。总碳水化合物(TC)区域由3个主要的亚峰组成,即TC亚峰Ⅰ、TC亚峰Ⅱ和TC亚峰Ⅲ。杂交构树不同部位的3个TC亚峰峰高和峰面积存在显著差异(P<0.05)。
表3 杂交构树不同部位的CHO分子光谱参数

Table 3 Spectral parameters of CHO molecular structure in different parts of hybrid Broussonetia papyrifera

项目
Items
叶片
Leaf
叶柄
Petiole
茎秆上部
Upper part
of the stem
茎秆下部
Bottom part
of the stem
全株
Whole
plant
均值
标准误
SEM
P
P-value
总碳水化合物区域参数谱Total carbohydrate region parameter profiles
总碳水化合物亚峰Ⅰ峰高
Peak height of total carbohydrate
sub-peak Ⅰ
0.148b 0.149ab 0.156a 0.133c 0.143b 0.003 <0.001
总碳水化合物亚峰Ⅱ峰高
Peak height of total carbohydrate
sub-peak Ⅱ
0.501a 0.447c 0.467b 0.372d 0.466b 0.005 <0.001
总碳水化合物亚峰Ⅲ峰高
Peak height of total carbohydrate
sub-peak Ⅲ
0.655a 0.588c 0.615b 0.537d 0.624b 0.008 <0.001
总碳水化合物亚峰Ⅰ峰面积
Peak area of total carbohydrate
sub-peak Ⅰ
4.99b 5.52a 5.73a 5.65a 4.89b 0.081 <0.001
总碳水化合物亚峰Ⅱ峰面积
Peak area of total carbohydrate
sub-peak Ⅱ
18.73b 19.34a 19.70a 18.63b 18.35b 0.173 <0.001
总碳水化合物亚峰Ⅲ峰面积
Peak area of total carbohydrate
sub-peak Ⅲ
54.53a 51.52c 52.75b 53.18b 53.01b 0.372 <0.001
总碳水化合物区域总峰面积
Total peak area of total
carbohydrate region
78.24a 76.38b 78.19a 77.45ab 76.25b 0.545 0.024
纤维性化合物区域参数谱Cellulosic-compounds region parameter profiles
纤维性化合物峰高
Peak height of cellulosic-compounds
0.056bc 0.074a 0.066ab 0.045c 0.013d 0.004 <0.001
纤维性化合物峰面积
Peak area of cellulosic-compounds
2.44d 3.84b 3.82b 4.74a 2.75c 0.077 <0.001
结构性碳水化合物区域参数谱Structural carbohydrate region parameter profiles
结构性碳水化合物亚峰Ⅰ峰高
Peak height of structural carbohydrate
sub-peak Ⅰ
0.079c 0.117a 0.099b 0.100b 0.084c 0.003 <0.001
结构性碳水化合物亚峰Ⅱ峰高
Peak height of structural carbohydrate
sub-peak Ⅱ
0.164c 0.225a 0.198b 0.116d 0.157c 0.006 <0.001
结构性碳水化合物亚峰Ⅲ峰高
Peak height of structural carbohydrate
sub-peak Ⅲ
0.150c 0.249a 0.185b 0.127d 0.158c 0.004 <0.001
结构性碳水化合物亚峰Ⅳ峰高
Peak height of structural carbohydrate
sub-peak Ⅳ
0.115d 0.198a 0.175b 0.139c 0.126cd 0.005 <0.001
结构性碳水化合物区域总峰面积
Total peak area of structural
carbohydrate region
28.77c 40.10a 33.92b 26.25d 29.05c 0.592 <0.001
杂交构树不同部位的纤维性化合物(CEC)区域的峰高和峰面积存在显著差异(P<0.05)。叶柄中的CEC峰高最高,而茎秆下部中的CEC峰面积值最高。在结构性碳水化合物(STC)区域,主要有4个亚峰:STC亚峰Ⅰ、STC亚峰Ⅱ、STC亚峰Ⅲ和STC亚峰Ⅳ。4个亚峰的峰高和峰面积值均存在显著差异(P<0.05)。与其他部位相比,叶柄的4个STC亚峰的峰高和STC区域的总峰面积最高。
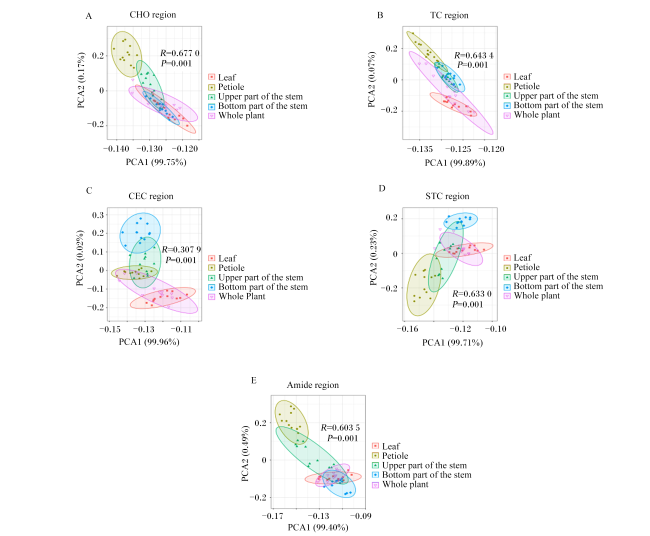
图1-A图1-B图1-C图1-D显示了3个CHO亚区(TC亚区、CEC亚区和STC亚区)以及整个CHO区域的PCA图。在整个CHO区域,叶柄的置信椭圆与杂交构树的其他部位完全分开;从TC亚区来看,茎秆上部和茎秆下部的置信椭圆重叠无法分开;在TC和CEC亚区,叶片与其他部位区分开来,第1主成分(PCA1)分别解释了99.89%和99.96%的群体变量;在整个CHO、TC和STC区域,叶柄的置信椭圆都与全株的完全分开;而在所有的CHO区域,叶片都与全株重叠。
图1 杂交构树不同部位的CHO和酰胺区的主成分分析图

Leaf:叶片;Petiole:叶柄;Upper part of the stem:茎秆上部;Bottom part of the stem:茎秆下部;Whole plant:全株;CHO region:整个碳水化合物区域(基线:ca. 1 488~940 cm-1) whole carbohydrate region (ca. 1 488 to 940 cm-1);TC region:总碳水化合物亚区(基线:ca. 1 183~940 cm-1) whole carbohydrate region (ca. 1 488 to 940 cm-1);CEC region:纤维性化合物亚区(基线:ca. 1 283~1 185 cm-1) cellulosic compounds sub-region (ca. 1 283 to 1 185 cm-1);STC region:结构性碳水化合物亚区(基线:ca. 1 488~1 185 cm-1) structural carbohydrate sub-region (ca. 1 488 to 1 185 cm-1);Amide region:酰胺区域(基线:ca. 1 717~1 486 cm-1) amide region (ca. 1 717 to 1 486 cm-1)。PCA1:第1主成分 principal component 1;PCA2:第2主成分 principal component 2。

Fig.1 Principal component analysis (PCA) plots of CHO and amide regions of different parts of hybrid Broussonetia papyrifera

2.2.2 杂交构树不同部位的蛋白质分子结构光谱参数

表4可知,杂交构树不同部位的蛋白质分子结构数据存在显著差异(P<0.05)。从蛋白质酰胺带来看,叶片和茎秆上部的酰胺Ⅰ区的峰高显著高于叶柄和茎秆下部(P<0.05);与叶柄和茎秆上部相比,茎秆下部和叶片的酰胺Ⅱ区峰高显著降低(P<0.05);茎秆下部的酰胺区域总面积、酰胺Ⅰ区峰面积和酰胺Ⅱ峰面积最低;叶柄的酰胺Ⅰ区峰面积和酰胺Ⅱ峰面积比值最低。从蛋白质二级结构参数来看,茎秆上部和叶片的α-螺旋峰高较高,而叶柄和茎秆下部显著降低(P<0.05);与叶片和茎秆下部相比,叶柄和茎秆上部的β-折叠峰高更高。因此,叶片的α-螺旋与β-折叠的峰高比值最高,而叶柄的酰胺Ⅰ区与酰胺Ⅱ区的峰高比值和α-螺旋与β-折叠的峰高比值最低。
表4 杂交构树不同部位的蛋白质分子光谱参数

Table 4 Spectral parameters of protein molecular structure in different parts of hybrid Broussonetia papyrifera

项目
Items
叶片
Leaf
叶柄
Petiole
茎秆上部
Upper part
of the stem
茎秆下部
Bottom part
of the stem
全株
Whole
plant
均值
标准误
SEM
P
P-value
蛋白质酰胺区域参数谱Protein amide region parameter profiles
酰胺Ⅰ区峰高
Peak height of amide Ⅰ region
0.226a 0.197b 0.225a 0.170c 0.212ab 0.007 <0.001
酰胺Ⅱ区峰高
Peak height of amide Ⅱ region
0.150c 0.266a 0.217b 0.096d 0.140c 0.008 <0.001
酰胺Ⅰ区峰高/酰胺Ⅱ区峰高
Peak height of amide I/
amide Ⅱ region
1.516b 0.745d 1.073c 1.807a 1.523b 0.050 <0.001
酰胺区总峰面积
Total peak area of amide region
31.76c 42.27a 37.47b 23.20d 29.53c 1.054 <0.001
酰胺Ⅰ区峰面积
Peak area of amide Ⅰ region
21.87a 23.08a 22.37a 15.86c 20.16b 0.562 <0.001
酰胺Ⅱ区峰面积
Peak area of amide Ⅱ region
9.90c 19.19a 15.14b 7.33d 9.38c 0.524 <0.001
酰胺Ⅰ区峰面积/酰胺Ⅱ区峰面积
Peak area of amide Ⅰ/
amide Ⅱ region
2.22a 1.20c 1.50b 2.20a 2.17a 0.048 <0.001
蛋白质二级结构参数谱Protein secondary structures parameter profiles
α-螺旋峰高
Peak height of α-helix
0.212b 0.191c 0.231a 0.141d 0.191c 0.006 <0.001
β-折叠峰高
Peak height of β-sheet
0.249c 0.316a 0.280b 0.198d 0.248c 0.007 <0.001
α-螺旋峰高/β-折叠峰高
Peak height of α-helix/
β-sheet
0.852a 0.604e 0.823b 0.713d 0.761c 0.008 <0.001
图1-E展示了酰胺区域的PCA图。叶柄的置信椭圆与叶片、茎秆下部和全株的完全分开,与茎秆上部的仅有一点重叠;而叶片、茎秆下部和全株的置信椭圆未能相互分离。酰胺区的第1主成分解释了99.4%的群体变量。

2.3 杂交构树不同部位的营养价值与分子结构之间的相关关系

2.3.1 杂交构树不同部位的CHO分子结构与其CHO组分之间的相关关系

表5展示了存在相关性的CHO分子结构光谱参数与CHO组分。在TC区域,TC亚峰Ⅰ的峰高与NDF、CHO及以DM为基础的CB2含量呈显著负相关(r=-0.78~-0.67,P<0.05);TC亚峰Ⅱ的峰高与NDF、ADF、ADL、CHO、纤维素及以DM为基础的CB2、CB3和以CHO为基础的CC含量呈显著负相关(r=-0.96~-0.66,P<0.05);TC亚峰Ⅲ的峰高与NDF、ADF、ADL、CHO、纤维素及以DM为基础的CB2和CB3含量呈显著负相关(r=-0.89~-0.63,P≤0.05);TC亚峰Ⅰ的峰面积与半纤维素的含量呈极显著负相关(r=-0.84,P<0.01);而TC亚峰Ⅲ的峰面积与半纤维素的含量呈极显著正相关(r=0.90,P<0.01)。在CEC区域,其峰面积与半纤维素含量呈显著负相关(r=-0.67,P<0.05),而与NDF、ADF、CHO、纤维素及以DM为基础的CB2和以CHO为基础的CB3含量呈显著正相关(r=0.65~0.90,P≤0.05)。在STC区域,STC亚峰Ⅰ和亚峰Ⅳ的峰高均与半纤维素含量呈极显著负相关(r=-0.85~-0.78,P≤0.01)。
表5 杂交构树不同部位的CHO分子结构与其CHO组分之间的相关关系

Table 5 Correlation between CHO molecular structure and its CHO components in different parts of hybrid Broussonetia papyrifera

项目
Items
总碳水化合物
亚峰Ⅰ峰高
Peak height of
TC sub-peak Ⅰ
总碳水化合物
亚峰Ⅱ峰高
Peak height of
TC sub-peak Ⅱ
总碳水化合物
亚峰Ⅲ峰高
Peak height of
TC sub-peak Ⅲ
总碳水化合物
亚峰Ⅰ峰面积
Peak area of
TC sub-peak Ⅰ
总碳水化合物
亚峰Ⅲ峰面积
Peak area of
TC sub-peak Ⅲ
纤维性化合
物峰面积
Peak area
of CEC
结构性碳水化合物
亚峰Ⅰ峰高
Peak height of
STC sub-peak Ⅰ
结构性碳水化合物
亚峰IV峰高
Peak height of
STC sub-peak IV
r P r P r P r P r P r P r P r P
碳水化合物成分Carbohydrate composition/% DM
中性洗涤纤维NDF -0.67 0.03 -0.84 <0.01 -0.73 0.02 0.26 0.47 -0.22 0.54 0.76 0.01 0.18 0.63 -0.17 0.63
酸性洗涤纤维ADF -0.56 0.09 -0.85 <0.01 -0.82 <0.01 0.51 0.13 -0.50 0.14 0.90 <0.01 0.45 0.20 0.11 0.75
酸性洗涤木质素ADL -0.59 0.07 -0.77 0.01 -0.63 0.05 0.02 0.95 -0.10 0.79 0.59 0.07 0.11 0.77 -0.19 0.59
碳水化合物CHO -0.78 0.01 -0.96 <0.01 -0.89 <0.01 0.24 0.51 -0.34 0.33 0.87 <0.01 0.37 0.29 -0.08 0.83
非纤维性碳水化合物NFC 0.17 0.63 0.25 0.50 0.11 0.77 -0.20 0.58 -0.14 0.70 -0.22 0.53 0.33 0.35 0.31 0.38
半纤维素Hemicellulose -0.07 0.84 0.33 0.35 0.51 0.13 -0.84 <0.01 0.90 <0.01 -0.67 0.03 -0.85 <0.01 -0.78 0.01
纤维素Cellulose -0.50 0.14 -0.80 0.01 -0.80 0.01 0.61 0.06 -0.57 0.08 0.90 <0.01 0.50 0.14 0.19 0.60
CNCPS碳水化合物组分CNCPS carbohydrate fraction/% DM
可溶性纤维CB2 -0.73 0.02 -0.81 <0.01 -0.80 0.01 0.36 0.30 -0.34 0.34 0.83 <0.01 0.32 0.37 -0.11 0.76
可消化纤维CB3 -0.59 0.07 -0.77 0.01 -0.63 0.05 0.02 0.95 -0.10 0.79 0.59 0.07 0.11 0.77 -0.19 0.59
不可消化纤维CC 0.17 0.63 0.25 0.50 0.11 0.77 -0.20 0.58 -0.14 0.70 -0.22 0.53 0.33 0.35 0.31 0.38
CNCPS碳水化合物组分CNCPS carbohydrate fraction/% CHO
可溶性纤维CB2 0.40 0.25 0.57 0.09 0.44 0.21 -0.28 0.43 0.07 0.85 -0.53 0.12 0.06 0.87 0.21 0.56
可消化纤维CB3 -0.54 0.11 -0.54 0.10 -0.58 0.08 0.42 0.23 -0.29 0.41 0.65 0.04 0.23 0.52 -0.09 0.81
不可消化纤维CC -0.45 0.20 -0.66 0.04 -0.50 0.14 0.01 0.98 -0.06 0.87 0.47 0.17 0.05 0.89 -0.15 0.67

r:相关系数;P:P值。表6同。

r: correlation coefficient; P: P-value. The same as Table 6.

2.3.2 杂交构树不同部位的蛋白质分子结构与其蛋白质组分之间的相关关系

表6展示了存在相关性的蛋白质分子结构光谱参数与蛋白质组分。在蛋白质的酰胺带区域,酰胺Ⅰ区的峰高与CP、SCP、NPN、NDICP、ADICP及以DM为基础的PA1、PA2、PB2、PC和以CP为基础的PA2含量呈显著正相关(r=0.66~0.88,P<0.05);酰胺Ⅱ区的峰高与NPN及以DM为基础的PA1和以CP为基础的PB2含量呈显著正相关(r=0.67~0.81,P<0.05),与以CP为基础的PB1含量呈显著负相关(r=-0.73,P<0.05);酰胺Ⅰ区与酰胺Ⅱ区的峰高比与NPN及以DM为基础的PA1和以CP为基础的PB2含量呈显著负相关(r=-0.72~-0.68,P<0.05);酰胺Ⅰ区的峰面积与SCP、NPN及以DM为基础的PA1和以CP为基础的PB2含量呈显著正相关(r=0.71~0.95,P<0.05),与CP为基础的PB1含量呈显著负相关(r=-0.71,P<0.05);酰胺Ⅱ区的峰面积与NPN及以DM为基础的PA1和以CP为基础的PA1、PB2含量呈显著正相关(r=0.65~0.74,P<0.05),与CP为基础的PB1含量呈显著负相关(r=-0.71,P<0.05);酰胺区总峰面积与NPN及以DM为基础的PA1和以CP为基础的PB2含量呈显著正相关(r=0.72~0.87,P<0.05),与CP为基础的PB1含量呈显著负相关(r=-0.75,P<0.05);酰胺Ⅰ区与酰胺Ⅱ区的峰面积比与以DM、CP为基础的PB1含量呈显著正相关(r=0.62~0.63,P≤0.05),与以CP为基础的PA1含量呈极显著负相关(r=-0.82,P<0.01)。
表6 杂交构树不同部位的蛋白质分子结构与其蛋白质组分之间的相关关系

Table 6 Correlation between protein molecular structure and its protein components in different parts of hybrid Broussonetia papyrifera

项目
Items
酰胺Ⅰ区峰高
Peak height of
amide Ⅰ region
酰胺Ⅱ区峰高
Peak height of
amide Ⅱ region
酰胺Ⅰ区峰高/
酰胺Ⅱ区峰高
Peak height
of amide I/
amide Ⅱ region
酰胺Ⅰ区
峰面积
Peak area of
amide Ⅰ
region
酰胺Ⅱ区
峰面积
Peak area of
amide Ⅱ region
酰胺区
总峰面积
Total peak area
of amide region
酰胺Ⅰ区峰面积/
酰胺Ⅱ区峰面积
Peak area of
amide Ⅰ/amide
Ⅱ region
α-螺旋峰高
Peak height
of α-helix
β-折叠峰高
Peak height
of β-sheet
α-螺旋峰高/
β-折叠峰高
Peak height
of α-helix/
β-sheet
r P r P r P r P r P r P r P r P r P r P
蛋白质成分Protein composition/% DM
粗蛋白质CP 0.67 0.03 -0.01 0.98 0.11 0.75 0.41 0.24 -0.14 0.70 0.09 0.79 0.43 0.21 0.49 0.16 0.22 0.55 0.57 0.08
可溶性粗蛋白质
SCP
0.88 <0.01 0.34 0.33 -0.20 0.57 0.71 0.02 0.21 0.56 0.44 0.20 0.09 0.80 0.79 0.01 0.50 0.14 0.66 0.04
非蛋白氮NPN 0.84 <0.01 0.81 <0.01 -0.72 0.02 0.95 <0.01 0.74 0.02 0.87 <0.01 -0.51 0.14 0.92 <0.01 0.88 <0.01 0.31 0.38
中性洗涤不溶
粗蛋白质
NDICP
0.74 0.02 0.01 0.79 0.05 0.88 0.50 0.14 -0.01 0.98 0.21 0.56 0.30 0.40 0.56 0.10 0.28 0.43 0.60 0.07
酸性洗涤不溶
粗蛋白质
ADICP
0.68 0.03 <-0.01 1.00 0.18 0.61 0.38 0.27 -0.10 0.78 0.11 0.77 0.34 0.33 0.50 0.14 0.12 0.75 0.72 0.02
CNCPS蛋白质组分CNCPS protein fraction/% DM
氨PA1 0.84 <0.01 0.81 <0.01 -0.72 0.02 0.95 <0.01 0.74 0.02 0.87 <0.01 -0.51 0.14 0.92 <0.01 0.88 <0.01 0.31 0.38
可溶性真蛋白质
PA2
0.72 0.02 -0.06 0.87 0.20 0.58 0.38 0.27 -0.20 0.58 0.05 0.90 0.49 0.15 0.53 0.12 0.13 0.72 0.75 0.01
难溶性真蛋白质
PB1
-0.08 0.82 -0.47 0.17 0.41 0.24 -0.28 0.44 -0.54 0.11 -0.45 0.19 0.62 0.05 -0.23 0.51 -0.29 0.42 0.06 0.87
纤维结合蛋白质
PB2
0.66 0.04 0.21 0.57 -0.13 0.73 0.56 0.09 0.11 0.77 0.31 0.38 0.18 0.61 0.52 0.12 0.44 0.20 0.32 0.36
非降解蛋白质
PC
0.68 0.03 <-0.01 1.00 0.18 0.61 0.38 0.27 -0.10 0.78 0.11 0.77 0.34 0.33 0.50 0.14 0.12 0.75 0.72 0.02
CNCPS蛋白质组分CNCPS protein fraction/% CP
氨PA1 -0.15 0.67 0.56 0.09 -0.60 0.07 0.19 0.59 0.65 0.04 0.48 0.16 -0.82 <0.01 0.10 0.77 0.34 0.34 -0.37 0.30
可溶性真蛋白质
PA2
0.86 <0.01 0.19 0.60 -0.05 0.89 0.57 0.08 0.03 0.93 0.27 0.45 0.25 0.48 0.75 0.01 0.33 0.36 0.83 <0.01
难溶性真蛋白质
PB1
-0.58 0.08 -0.73 0.02 0.62 0.06 -0.71 0.02 -0.71 0.02 -0.75 0.01 0.63 0.05 -0.71 0.02 -0.64 0.05 -0.27 0.45
纤维结合蛋白质
PB2
0.46 0.18 0.67 0.03 -0.68 0.03 0.74 0.01 0.65 0.04 0.72 0.02 -0.46 0.18 0.52 0.12 0.82 <0.01 -0.23 0.52
非降解蛋白质PC 0.27 0.46 -0.05 0.88 0.21 0.56 0.06 0.88 -0.06 0.86 -0.02 0.97 0.09 0.81 0.20 0.58 -0.15 0.68 0.52 0.12
在蛋白质的二级结构区域,α-螺旋的峰高与SCP、NPN及以DM为基础的PA1和以CP为基础的PA2含量呈极显著正相关(r=0.75~0.92,P≤0.01),与以CP为基础的PB1含量呈显著负相关(r=-0.71,P<0.05);β-折叠的峰高与NPN及以DM为基础的PA1和以CP为基础的PB2含量呈极显著正相关(r=0.82~0.88,P<0.01),与以CP为基础的PB1含量呈显著负相关(r=-0.64,P≤0.05);α-螺旋与β-折叠的峰高比与SCP、ADICP及以DM为基础的PA2、PC和以CP为基础的PB1含量呈显著正相关(r=0.66~0.83,P<0.05)。

3 讨论

3.1 杂交构树不同部位的营养成分及CNCPS组分

通过饲料的营养成分组成与含量可在一定程度上评价其营养价值。通常,饲料中的纤维含量及其木质化程度越高,可消化性越差。随着饲粮NDF含量上升,动物DM采食量通常会下降,而ADL的含量不仅与动物的消化率呈反比,且较高的ADL含量还会影响其他养分的消化和利用[26-27]。本研究结果表明,杂交构树的叶片纤维含量低于其他部位,这与Hao等[10]的研究结果相符。杂交构树茎秆下部的NDF、ADF、ADL和CC含量最高,这可能会抑制养分的消化和利用,降低构树的营养价值。有研究报道,植物的茎秆作为其支撑部位,在植物生长过程中会发生不同程度的木质化[10]。与叶片相比,植物茎秆部位的木质素含量通常更高,从而导致其对动物的营养价值也相对较低[28]
本研究中,构树叶片中的CP含量高于其他部位,这也与在其他植物上的研究结果相似。Debela等[29]的研究发现,辣木叶片中的CP含量也高于茎秆。在CNCPS(v6.5)修订版的蛋白质体系中,PA1代表氨,即非蛋白氮;PA2为10 h内在瘤胃中快速降解的蛋白质组分;PB1和PB2是粗饲料中蛋白质的主要组成部分,PB2含量越高,过瘤胃的CP含量就越多[10,12]。构树叶片CP中的PA1含量最低,表明叶片中真蛋白质所占比例高于其他部位。而茎秆下部的CP含量最低,且CP中PA2含量也最低,表明其瘤胃快速降解蛋白质含量较低。叶柄的CP中PB2含量较高,这可能表明叶柄的CP在瘤胃中的降解率较低,其余部分将会流向后肠段。
本研究结果显示,叶片在构树植株中所占的比重最高(DM基础),其次是茎秆下部,而叶柄所占的比例最低。从营养成分含量来看,杂交构树叶片的营养价值最高,而茎秆下部的营养价值最低,这可能是导致家畜更喜欢采食构树叶片、部分养殖户倾向于采摘构树叶片饲喂家畜的直接原因。在生产中,通常不会将叶柄和叶片分开饲喂,但由于叶柄和叶片在植株中所占的相对比重差异悬殊,在混合饲喂时可以适当参考使用叶片的营养成分数据来设计饲粮配方。为提高构树的营养价值,建议侧重选育叶片比例高、茎秆木质化程度低的构树品种。同时,在收获环节,可适当提高刈割高度,降低茎秆下部的比例,从而提高所收获构树的营养价值。

3.2 杂交构树不同部位的分子结构特性

在中红外区域,FTIR技术可以捕捉不同化合物分子官能团的伸缩振动和弯曲振动等基频振动,以获取分子结构和组成信息[30]。例如,蛋白质中的氨基酸具有C-N、N-H和C=O键,其基频振动通常出现在1 650 cm-1(酰胺Ⅰ带)和1 550 cm-1(酰胺Ⅱ带),通过这些吸收峰的强度变化可以评估蛋白质的含量和组成。纤维素和半纤维素的C-O和C-H键的基频振动在1 000~1 300 cm-1区域更明显,木质素的芳香环C-H和C=C振动通常在1 600和1 510 cm-1处表现出强吸收,这些特征可以帮助评估饲草的CHO组成及可消化性[30-32]。但不同类别饲料中化学键的分布、数量和构型差异较大,目前尚未获得普适性的评估模型,需要通过试验分别确定不同饲料的分子结构特征。
在与CHO相关的分子结构参数中,CEC峰面积通常与样品中的纤维素含量相关[33]。本研究中,叶片的CEC峰面积最低,茎秆下部最高,这与两者NDF、ADF、ADL和纤维素含量上的显著差异相符,说明该区域峰面积可能对预估构树样品的纤维含量具有重要价值。蛋白质的营养价值不仅受氨基酸组成的影响,还与其折叠方式和空间结构密切相关[34]。在中红外光谱中,酰胺Ⅰ区和酰胺Ⅱ区是反映蛋白质结构的2个关键谱段[35],其中,α-螺旋与β-折叠的吸收峰主要位于酰胺Ⅰ区,通过分析这些参数,可以识别蛋白质的二级结构特征。当蛋白质中β-折叠结构占比较高时,其抗酶解能力通常会更强,当α-螺旋与β-折叠的比值增加时,蛋白质的可消化性往往也会提高[36]。这表明蛋白质的二级结构特征对其消化特性具有重要影响[36]。本研究中,构树叶片的α-螺旋与β-折叠的比值在各部位中最高,表明其蛋白质可能具有更高的可消化性。此外,样品中的α-螺旋与β-折叠的峰高比值比具体峰高值更具参考价值,因为峰高值会受蛋白质含量的影响。尽管在构树不同部位的α-螺旋和β-折叠的峰高值上未观察到明显规律,但通过比较两者的比值,能够有效揭示不同部位之间的显著差异。
PCA结果表明,在CHO区域,叶柄的置信椭圆与其他部位完全分开,表明在该区域叶柄的分子结构特性与其他部位之间存在明显差异。在TC亚区,茎秆上部和下部的置信椭圆重叠,表明在该区域两者的分子结构较为接近。TC和CEC亚区中,叶片与其他部位区分开,表明叶片在这2个亚区的分子结构与其他部位存在差异。在所有的CHO区域,叶片都与全株样品高度重叠,这可能与叶片在全株中占的比例最高有关。在蛋白质酰胺区,叶柄样品与部分茎秆上部样品距离较近,而与其他部位均有明显区分,这进一步表明叶柄的分子结构的特异性。本研究结果同时表明,PCA作为一种线性降维算法,能够尽量保证在“信息量不丢失”的前提下,呈现出样品间相关波段的总体差异,比单纯对比特定波长处/波长间的峰高、峰面积值更能展现出样品间的差异。

3.3 杂交构树不同部位的营养价值与分子结构之间的相关关系

本研究中,构树样品半纤维素含量与CEC区域的峰面积值呈负相关,这与Xin等[28]在玉米秸秆上的研究结果相符。同时,CEC峰面积还与NDF、ADF、CHO及纤维素含量间具有强相关性,这与常规化学成分及该光谱区域的分子结构参数相印证,由此表明,该区域的峰面积可以用于快速估测杂交构树样品中纤维性成分的含量,间接评定构树的CHO含量及组成。值得注意的是,TC亚峰Ⅱ峰高与ADL含量间存在显著的负相关,该参数可能具备快速估测不同构树样品间ADL含量的潜力。
本研究中,酰胺Ⅰ区峰高与CP、SCP含量呈强正相关关系,这与Li等[19]的研究结果一致。酰胺Ⅰ区峰高、α-螺旋峰高与PA2的含量存在正相关关系,这与Gomaa等[37]在关于埃塞俄比亚芥籽粕和油菜籽粕的研究结果相符。同时,α-螺旋与β-折叠的比值与SCP和PA2含量间存在显著的正相关,表明该比值越高的构树样品,其SCP含量可能越高,而SCP被定义为瘤胃中迅速降解的蛋白质部分,在动物体内的利用率通常也比较高[38]。Lei等[16]的研究发现,紫花苜蓿中PB1的含量与β-折叠峰高、酰胺区总峰面积和酰胺Ⅰ区峰面积呈负相关,与本研究的结果相符,说明使用这些分子结构参数评估不同种类粗饲料的营养价值时可能同样有效。此外,Lei等[16]还发现,PB2的含量与酰胺Ⅰ区的峰高、酰胺区总峰面积、酰胺Ⅰ区峰面积和酰胺Ⅱ区峰面积呈正相关,这也与本研究的结果总体相符。虽然仅凭分子结构参数与营养成分含量之间的相关性评估构树的营养价值具有一定的局限性,但可以利用这些相关性建立对应营养成分含量的FTIR预测模型,以实现构树营养价值的快速、实时评价。
值得注意的是,本研究还发现分子结构相关参数与不同计算基础下(DM基础、CHO基础和CP基础)的CNCPS组分含量间会呈现出不同的相关性结果,表明在挖掘、对比样品分子结构信息时,必须明确各组分含量的计算依据,才能获得准确的信息。

4 结论

① 杂交构树不同部位的营养价值各不相同,叶片的营养价值更高,而茎秆下部营养价值最低,因此设计饲粮配方时,应充分考虑所选用的构树部位及其相对比例;此外,建议侧重选育叶片比例高、茎秆木质化程度低的构树品种,同时适当提高刈割高度,降低茎秆下部的比例,从而提高所收获构树原料的营养价值。
② 杂交构树不同部位的分子结构参数存在显著差异,通过PCA可以更直观地揭示组间的分子结构差异;部分分子结构参数与其相应化学成分和CNCPS组分之间存在较强的相关性,这可为开发快速、无损预测杂交构树营养成分和饲用价值的模型提供数据支持。
[1]
WEN Z Y, CHEN Y Y, WU L F, et al. Effects of Broussonetia papyrifera silage on rumen fermentation parameters and microbes of Holstein heifers[J]. AMB Express, 2022, 12(1):62.

[2]
TIAN H C, CHEN Y Y, ZHU N, et al. Effect of Broussonetia papyrifera silage on the serum indicators, hindgut parameters and fecal bacterial community of Holstein heifers[J]. AMB Express, 2020, 10(1):197.

[3]
ZENG B, SUN J J, CHEN T, et al. Effects of Moringa oleifera silage on milk yield, nutrient digestibility and serum biochemical indexes of lactating dairy cows[J]. Journal of Animal Physiology and Animal Nutrition, 2018, 102(1):75-81.

[4]
王强, 雷婷婷. 杂交构树与蛋白桑在安塞区适应性、产量和营养成分分析试验研究[J]. 现代畜牧科技, 2024(6):67-69.

WANG Q, LEI T T. Experimental study on the adaptability,yield,and nutritional composition of hybird Broussonetia papyrifera and protein mulberry in Ansai district[J]. Modern Animal Husbandry Science & Technology, 2024(6):67-69. (in Chinese)

[5]
CHANG C S, LIU H L, MONCADA X, et al. A holistic picture of Austronesian migrations revealed by phylogeography of Pacific paper mulberry[J]. Proceedings of the National Academy of Sciences of the United States of America, 2015, 112(44):13537-13542.

[6]
GONZALEZ-LORCA J, RIVERA-HUTINEL A, MONCADA X, et al. Ancient and modern introduction of Broussonetia papyrifera ([L.]Vent.;Moraceae) into the Pacific:genetic,geographical and historical evidence[J]. New Zealand Journal of Botany, 2015, 53(2):75-89.

[7]
ZHANG X K, WANG F F, YANG N H, et al. Bioinformatics analysis and function prediction of NBS-LRR gene family in Broussonetia papyrifera[J]. Biotechnology Letters, 2023, 45(1):13-31.

[8]
LIAO S X, DENG Z H, CUI K, et al. Genetic diversity of Broussonetia papyrifera populations in southwest China[J]. Genetics and Molecular Research, 2014, 13(3):7553-7563.

[9]
屠焰, 刁其玉, 张蓉, 等. 杂交构树叶的饲用营养价值分析[J]. 草业科学, 2009, 26(6):136-139.

TU Y, DIAO Q Y, ZHANG R, et al. Analysis on the feed nutritive value of hybrid Broussonetia papyrifera leaf[J]. Pratacultural Science, 2009, 26(6):136-139. (in Chinese)

[10]
HAO Y Y, HUANG S, LIU G K, et al. Effects of different parts on the chemical composition,silage fermentation profile,in vitro and in situ digestibility of paper mulberry[J]. Animals, 2021, 11(2):413.

[11]
刘玉, 林萌萌, 郑爱华, 等. 杂交构树不同高度及不同部位的营养价值比较[J]. 畜牧兽医杂志, 2018, 37(6):77-78, 81.

LIU Y, LIN M M, ZHENG A H, et al. Comparison of nutritive value in different height and parts of hybrid Broussonetia papyrifera[J]. Journal of Animal Science and Veterinary Medicine, 2018, 37(6):77-78, 81. (in Chinese)

[12]
HIGGS R J, CHASE L E, ROSS D A, et al. Updating the Cornell net carbohydrate and protein system feed library and analyzing model sensitivity to feed inputs[J]. Journal of Dairy Science, 2015, 98(9):6340-6360.

DOI PMID

[13]
PUMURE I, FORD S A, SHANNON J, et al. Analysis of ATR-FTIR absorption-reflection data from 13 polymeric fabric materials using chemometrics[J]. American Journal of Analytical Chemistry, 2015, 6:305-312.

[14]
PRATES L L, LEI Y G, REFAT B, et al. Effects of heat processing methods on protein subfractions and protein degradation kinetics in dairy cattle in relation to protein molecular structure of barley grain using advanced molecular spectroscopy[J]. Journal of Cereal Science, 2018, 80:212-220.

[15]
SHI H T, LEI Y G, LOUZADA PRATES L, et al. Evaluation of near-infrared (NIR) and Fourier transform mid-infrared (ATR-FT/MIR) spectroscopy techniques combined with chemometrics for the determination of crude protein and intestinal protein digestibility of wheat[J]. Food Chemistry, 2019, 272:507-513.

DOI PMID

[16]
LEI Y G, HANNOUFA A, PRATES L L, et al. Effects of TT8 and HB12 silencing on the relations between the molecular structures of alfalfa (Medicago sativa) plants and their nutritional profiles and in vitro gas production[J]. Journal of Agricultural and Food Chemistry, 2018, 66(22):5602-5611.

[17]
彭婧, 孙晓旭, 史海涛, 等. 青藏高原老芒麦不同部位的营养价值及其分子结构特性研究[J]. 动物营养学报, 2022, 34(8):5270-5282.

DOI

PENG J, SUN X X, SHI H T, et al. Nutritional value and molecular structure characteristics in different fractions of Elymus sibiricus from Qinghai-Tibet plateau[J]. Chinese Journal of Animal Nutrition, 2022, 34(8):5270-5282. (in Chinese)

DOI

[18]
孙晓旭, 彭婧, 江雨霏, 等. 青藏高原中华羊茅不同部位的营养价值及分子结构特性研究[J]. 动物营养学报, 2023, 35(3):1850-1862.

DOI

SUN X X, PENG J, JIANG Y F, et al. Nutritional value and molecular structure characteristics in different parts of Festuca sinensis from Qinghai-Tibet plateau[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1850-1862. (in Chinese)

[19]
LI Y, WU Q H, LV J Y, et al. Associations of protein molecular structures with their nutrient supply and biodegradation characteristics in different byproducts of seed-used pumpkin[J]. Animals, 2022, 12(8):956.

[20]
AOAC. Official methods of analysis of the association of analytical chemists international[S].18th ed. Maryland,USA: Association of Official Analytical Chemists International, 2005.

[21]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[22]
Subcommittee on Dairy Cattle Nutrition, Committee on Animal Nutrition, Board on Agriculture and Natural Resources, et al. Nutrient requirements of dairy cattle[S].7th ed. Washington,D.C.: National Academy Press, 2001.

[23]
LICITRA G, HERNANDEZ T M, VAN SOEST P J. Standardization of procedures for nitrogen fractionation of ruminant feeds[J]. Animal Feed Science and Technology, 1996, 57(4):347-358.

[24]
VAN AMBURGH M E, COLLAO-SAENZ E A, HIGGS R J, et al. The Cornell net carbohydrate and protein system: updates to the model and evaluation of version 6.5[J]. Journal of Dairy Science, 2015, 98(9):6361-6380.

DOI PMID

[25]
LANZAS C, SNIFFEN C J, SEO S, et al. A revised CNCPS feed carbohydrate fractionation scheme for formulating rations for ruminants[J]. Animal Feed Science and Technology, 2007, 136(3/4):167-190.

[26]
LEI Y G, HANNOUFA A, YU P Q. The use of gene modification and advanced molecular structure analyses towards improving alfalfa forage[J]. International Journal of Molecular Sciences, 2017, 18(2):298.

[27]
夏先林, 汤丽琳, 熊江林, 等. 紫花苕绿肥不同部位的营养价值研究[J]. 四川草原, 2004(12):1-3.

XIA X L, TANG L L, XIONG J L, et al. Nutrition value of different parts for hairy vetch green manure[J]. Journal of Sichuan Grassland, 2004(12):1-3. (in Chinese)

[28]
XIN H S, DING X, ZHANG L Y, et al. Investigation of the spectroscopic information on functional groups related to carbohydrates in different morphological fractions of corn stover and their relationship to nutrient supply and biodegradation characteristics[J]. Journal of Agricultural and Food Chemistry, 2017, 65(20):4035-4043.

DOI PMID

[29]
DEBELA E, TOLERA A. Nutritive value of botanical fractions of Moringa oleifera and Moringa stenopetala grown in the mid-rift valley of southern Ethiopia[J]. Agroforestry Systems, 2013, 87(5):1147-1155.

[30]
SMITH B C. Fundamentals of fourier transform infrared spectroscopy[M].2nd ed. Boca Raton: CRC Press, 2011.

[31]
XIN H S, YU P Q. Chemical profile,energy values,and protein molecular structure characteristics of biofuel/bio-oil co-products (Carinata meal) in comparison with canola meal[J]. Journal of Agricultural and Food Chemistry, 2013, 61(16):3926-3933.

[32]
DOIRON K, YU P, MCKINNON J J, et al. Heat-induced protein structure and subfractions in relation to protein degradation kinetics and intestinal availability in dairy cattle[J]. Journal of Dairy Science, 2009, 92(7):3319-3330.

DOI PMID

[33]
LEI Y G, HANNOUFA A, CHRISTENSEN D, et al. Molecular structural changes in alfalfa detected by ATR-FTIR spectroscopy in response to silencing of TT8 and HB12 genes[J]. International Journal of Molecular Sciences, 2018, 19(4):1046.

[34]
THEODORIDOU K, YU P Q. Application potential of ATR-FT/IR molecular spectroscopy in animal nutrition:revelation of protein molecular structures of canola meal and presscake,as affected by heat-processing methods,in relationship with their protein digestive behavior and utilization for dairy cattle[J]. Journal of Agricultural and Food Chemistry, 2013, 61(23):5449-5458.

[35]
YU P Q, MCKINNON J J, CHRISTENSEN C R, et al. Using synchrotron-based FTIR microspectroscopy to reveal chemical features of feather protein secondary structure:comparison with other feed protein sources[J]. Journal of Agricultural and Food Chemistry, 2004, 52(24):7353-7361.

[36]
YU P Q. Protein secondary structures (alpha-helix and beta-sheet) at a cellular level and protein fractions in relation to rumen degradation behaviours of protein:a new approach[J]. British Journal of Nutrition, 2005, 94(5):655-665.

[37]
GOMAA W M S, ZHANG X, DENG H, et al. Vibrational spectroscopic study on feed molecular structure properties of oil-seeds and co-products from Canadian and Chinese bio-processing and relationship with protein and carbohydrate degradation fractions in ruminant systems[J]. Spectrochimica Acta. Part A: Molecular and Biomolecular Spectroscopy, 2019, 216:249-257.

[38]
ZHANG Z B, WEI W J, YANG S H, et al. Regulation of dietary protein solubility improves ruminal nitrogen metabolism in vitro: role of bacteria-protozoa interactions[J]. Nutrients, 2022, 14(14):2972.

文章导航

/