研究论文

噬菌体VB_SauM_Lm44穿孔素HolLm44的克隆表达及其抑菌效果研究

  • 张欣然 ,
  • 廖毅婷 ,
  • 熊东炜 ,
  • 李鹏 ,
  • 杨淑华 ,
  • 龙淼 , *
展开
  • 沈阳农业大学动物科学与医学学院,重要家畜疫病研究教育部重点实验室,农业农村部反刍动物重大疫病防控重点实验室(东部),沈阳 110866
*龙 淼,教授,博士生导师,E-mail:

张欣然(2000—),女,河北唐山人,硕士研究生,研究方向为畜禽临床疾病防治。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-07-15

  网络出版日期: 2025-03-13

基金资助

辽宁省教育厅基本科研项目(JYTYB2024027)

Study on Cloning and Expression of Holin HolLm44 of Bacteriophage VB_SauM_Lm44 and Its Antibacterial Effect

  • ZHANG Xinran ,
  • LIAO Yiting ,
  • XIONG Dongwei ,
  • LI Peng ,
  • YANG Shuhua ,
  • LONG Miao , *
Expand
  • Key Laboratory of Ruminant Infectious Disease Prevention and Control (East), Ministry of Agriculture and Rural Affairs, Key Laboratory of Livestock Infectious Diseases, Ministry of Education, College of Animal Science and Veterinary Medicine, Shenyang Agricultural University, Shenyang 110866, China
*professor, E-mail:

Received date: 2024-07-15

  Online published: 2025-03-13

摘要

本试验旨在克隆表达金黄色葡萄球菌噬菌体VB_SauM_Lm44穿孔素并研究其抑菌效果。首先,通过分析VB_SauM_Lm44基因组,获得穿孔素基因序列,并利用PCR扩增穿孔素基因(命名为HolLm44,其表达的穿孔素蛋白命名为HolLm44);然后,将目的基因片段与双酶切处理后的线性pET-28a(+)质粒连接、转化入大肠杆菌DH5α克隆感受态细胞,提取重组质粒并转化入大肠杆菌表达菌株BL21(DE3)及BL21(DE3)plysS,进行目的蛋白诱导表达和纯化;最后,通过平板抑菌法及刃天青染色法验证穿孔素的抑菌效果,探究穿孔素HolLm44发挥其活性的最适作用条件。结果显示: 穿孔素HolLm44具有2个跨膜区,其N-端和C-端都分布于细胞质内,属于Ⅱ类穿孔素。穿孔素HolLm44最适作用温度为37 ℃,最适作用pH为5.2。在作为指示菌的20株金黄色葡萄球菌中,只有1株为对穿孔素HolLm44表现出敏感性。本研究成功克隆表达出了噬菌体VB_SauM_Lm44中具有活性的穿孔素HolLm44,并证实其具有良好的抑制金黄色葡萄球菌的效果。

本文引用格式

张欣然 , 廖毅婷 , 熊东炜 , 李鹏 , 杨淑华 , 龙淼 . 噬菌体VB_SauM_Lm44穿孔素HolLm44的克隆表达及其抑菌效果研究[J]. 动物营养学报, 2025 , 37(3) : 2081 -2089 . DOI: 10.12418/CJAN2025.176

Abstract

This experiment aimed to clone and express of holin of Staphylococcus aureus phage VB_SauM_Lm44 and to study its antibacterial effect. Firstly, the holin gene sequence was obtained by analyzing the VB_SauM_Lm44 genome, and the holin gene (named HolLm44, the expressed perforin protein was named HolLm44) was amplified by PCR. Then, the target gene fragment was ligated with the linear pET-28a(+) plasmid after double enzyme digestion and transformed into the Escherichia coli DH5α cloned competent cells; the recombinant plasmid was extracted and then transformed into the expression strains BL21(DE3) and BL21(DE3)plysS of Escherichia coli to enable the induced expression and subsequent purification of the target protein. The antibacterial effect of holin HolLm44 was evaluated through both the plate inhibition assay and the resazurin staining technique, thereby establishing the optimal conditions under which holin HolLm44 exerts its activity. The results showed that holin HolLm44 had two transmembrane regions, and its N-terminal and C-terminal were distributed in the cytoplasm, which belonged to class Ⅱ holin. The optimal temperature and pH of holin HolLm44 were 37 ℃ and 5.2, respectively. Of the 20 Staphylococcus aureus strains used as indicator bacteria, only one was sensitive to the holin HolLm44. The results demonstrate that this study successfully cloned and expressed the active holin HolLm44 from phage VB_SauM_Lm44, confirming its potent inhibitory effect against Staphylococcus aureus.

2021年我国奶类产量在3 778万t,同比增长7.0%,乳制品产量突破3 000万t,我国现代奶牛养殖业迅速发展,生产能力持续提升,产业综合素质持续增强,从单纯追求数量的增长,发展到数量和质量并重[1-2]。奶牛乳房炎是奶牛最常见的疾病之一,它大大降低了牛奶的质量和产量,给养殖场造成经济损失[3]。目前在规模化牧场中,导致奶牛感染乳房炎的病原菌主要有金黄色葡萄球菌、大肠杆菌、克雷伯氏菌、链球菌(如无乳链球菌、停乳链球菌)以及支原体等,其中金黄色葡萄球菌是最常见的病原菌之一[4-5]。奶牛乳房炎目前主要的治疗方法是抗生素疗法,但是滥用抗生素且剂量过大或单一抗生素的使用时间过长会使细菌产生耐药性,甚至产生多重耐药菌株[6]。因此,寻找替代抗生素治疗乳房炎的方法成为目前的研究重点。
噬菌体是一种能特异性侵染细菌的病毒,与抗生素相比,细菌不易对噬菌体产生抗性,其特异性相对于抗生素也更高[7]。大量的研究数据表明,噬菌体及其产生的具有抑菌效果的蛋白在抗菌方面存在巨大潜力。因此,分离鉴定某些特定病原菌的噬菌体,并克隆表达其抑菌蛋白,研究其抑菌特性,对致病菌引起的疾病防控具有重要意义。绝大多数的噬菌体是遗传物质为双链DNA的有尾噬菌体,它们中的大多数通常是通过穿孔素-裂解酶系统实现破坏细菌细胞壁肽聚糖成分,从而导致宿主菌裂解[8]。穿孔素是由噬菌体基因组编码的小分子疏水蛋白,作用于细菌细胞的内膜,其功能是在细胞膜上形成孔,从而允许裂解酶释放出来[9]。因此,研究穿孔素对致病菌的抑菌效果具有重要意义。本研究的主要目的是对本实验室分离鉴定出的噬菌体VB_SauM_Lm44的穿孔素蛋白进行克隆表达,研究其抑菌特性,为防控奶牛乳房炎提供理论基础。

1 材料与方法

1.1 试验材料

菌种、噬菌体与质粒:试验所用金黄色葡萄球菌m44为沈阳农业大学临床兽医学实验室保存。试验所用噬菌体VB_SauM_Lm44为沈阳农业大学临床兽医学实验室保存。表达质粒pET-28a(+)为沈阳农业大学临床兽医学实验室保存;大肠杆菌DH5α克隆感受态细胞购自湖南艾科瑞生物工程有限公司,大肠杆菌BL21(DE3)化学感受态细胞、BL21(DE3)plysS化学感受态细胞购自北京全式金生物技术股份有限公司。抑菌试验所用的20株金黄色葡萄球菌菌株均为沈阳农业大学临床兽医学实验室保存。

1.2 试验方法

1.2.1 噬菌体VB_SauM_Lm44的复苏

将金黄色葡萄球菌m44菌株接种于LB固体培养基上,并挑取合适的单菌落接种于5 mL LB液体培养基,培养至对数期。通过双层平板点样法对VB_SauM_Lm44进行复苏,使用无菌巴氏吸管挑取1个单噬斑接种到5 mL对数期金黄色葡萄球菌m44菌液中,37 ℃、150 r/min恒温摇床过夜培养。之后将培养物分装至1.5 mL EP管中,10 000×g离心10 min去除细菌碎片,使用5 mL无菌注射器吸取上清液,并使用0.22 μm滤膜过滤。重复该过程3次,得到新鲜噬菌体液。

1.2.2 穿孔素基因的分析

对VB_SauM_Lm44基因组(GenBank登录号为OQ687052)中穿孔素基因进行预测和分析,并使用ProtParam在线工具(https://web.expasy.org/protparam/)预测穿孔素的分子质量、理论等电点(pI)值等数据;使用Pfam数据库(http://pfam.xfam.org/)对穿孔素结构域进行预测并采用IBS在线工具(http://ibs.biocuckoo.org/)绘制穿孔素结构域;采用SWISS-MODEL软件(https://www.swissmodel.expasy.org/)预测蛋白质三维结构;采用SignalP(version 4.1)软件(http://www.cbs.dtu.dk/services/SignalP/)预测蛋白质编码基因中存在的信号肽序列;采用TMHMM(Server v. 2.0)预测蛋白质编码基因中的跨膜螺旋结构;使用信号肽预测工具SignalP筛选具有信号肽结构并且不含有跨膜结构的分泌蛋白,此穿孔素基因命名为HolLm44,其表达的穿孔素蛋白为HolLm44。

1.2.3 穿孔素基因HolLm44的克隆

以噬菌体VB_SauM_Lm44基因组为模板对目的基因进行PCR扩增,使用OK Clon引物设计工具(https://agbio.com.cn/soft/singlefragment.html)设计无缝克隆引物,引物序列如下:F为5'-CAGCAAATGGGTCGCGGATCCATGGCAATTC-AAACTGAATTACAGA-3';R为5'-GTGGTGGTGGTGGTGCTCGAGTTAGTTAGTTTTGCTTG-CATTGTCG-3',然后使用琼脂糖凝胶电泳鉴定PCR产物并对产物进行回收(PCR条件:94 ℃预变性5 min,98 ℃变性10 s,58 ℃退火5 s,72 ℃延伸1 min,进行34个循环,72 ℃终延伸5 min)。使用OK Clon DNA连接试剂盒将纯化的PCR产物与双酶切处理后的线性pET-28a质粒连接,最终获得连接产物。将连接产物转化至大肠杆菌DH5α克隆感受态细胞中,取50 μL转化后的菌液均匀涂布于含有硫酸卡那霉素的LB固体培养基上,37 ℃倒置培养约16 h,筛选阳性克隆。从平板上挑取单菌落,接种至LB肉汤培养基(含卡那霉素50 μg/mL)中,37 ℃下160 r/min培养4 h,至少4个重复。以1 μL菌液为模板,使用穿孔素无缝克隆引物进行菌液PCR。通过凝胶成像观察目的片段大小确定需要的阳性克隆,提取重组质粒进行双酶切验证,并送往上海生物工程有限公司进行测序鉴定。

1.2.4 穿孔素基因HolLm44的诱导表达

大量培养阳性克隆菌液并提取重组质粒,将重组质粒转化至大肠杆菌BL21(DE3)化学感受态细胞并进行涂板验证。将阳性克隆的菌液以1%的接种量接种至15 mL LB肉汤培养基(含Kan 50 μg/mL)中,37 ℃、160 r/min振荡培养过夜。同上接种量将过夜的菌液接种到30 mL的培养基中,培养6~7 h[600 nm处吸光度(OD600 nm)=0.4~0.6],再加入异丙基-β-D-硫代半乳糖苷(IPTG)溶液至终浓度为0.5 mmol/L,在25 ℃、160 r/min的条件下振荡培养。在诱导过程中每隔30 min取菌液样品,并测定菌液的OD600 nm值,确定穿孔素对大肠杆菌BL21(DE3)化学感受态细胞生长的影响。离心收集在最佳条件下诱导表达的菌体,磷酸盐缓冲液(PBS)重悬后,在冰浴条件下超声破碎细胞。取上清做100 ℃金属浴变性10 min,进行十二烷基硫酸钠-聚丙烯酰胺电泳(SDS-PAGE),取出凝胶,使用Western Blot法进行蛋白检测(抗体购自武汉伊莱瑞特生物科技股份有限公司)。挑取宿主菌金黄色葡萄球菌m44单克隆于LB肉汤培养基,振荡培养至对数期(OD600 nm=0.4~0.6),制作双层平板,晾干,取4 μL破碎液上清滴在平板上,静置晾干后37 ℃倒置培养观察有无空斑形成,初步验证穿孔素活性。用大肠杆菌BL21(DE3)plysS化学感受态细胞表达穿孔素HolLm44,并对BL21(DE3)plysS的生长情况进行检测,将取样时间设为达到对数期后(OD600 nm=0.4~0.5)每10 min取样1次,研究穿孔素对大肠杆菌BL21(DE3)plysS化学感受态细胞生长的影响。

1.2.5 穿孔素HolLm44的大量表达与纯化

通过小量表达验证蛋白的表达后,根据最适条件,即37 ℃振荡培养至OD600 nm达到0.4~0.6后诱导30 min,诱导表达2 L菌液,并收集胞内液。使用Ni Sepharose 6 FF亲和层析填料纯化上清中带有His标签的HolLm44蛋白。通过不同浓度(10、100、150、200和300 mmol/L)咪唑洗脱,经超滤脱盐后确定进行SDS-PAGE,采用考马斯亮蓝染色法检测HolLm44蛋白的纯度。使用BCA蛋白浓度测定试剂盒测定穿孔素HolLm44蛋白浓度。

1.2.6 穿孔素HolLm44蛋白活性验证

使用平板抑菌试验以及刃天青染色验证穿孔素HolLm44蛋白活性。挑宿主菌金黄色葡萄球菌m44单克隆于LB肉汤培养基,摇至对数期(OD600 nm=0.4~0.6),取200 μL加入到5 mL LB半固体培养基中制作双层平板,晾干,取10 μL纯化穿孔素HolLm44蛋白溶液滴在平板上,静置晾干后37 ℃倒置培养观察有无抑菌圈形成。取100 μL对数期金黄色葡萄球菌m44菌液加入到96孔板中,HolLm44组每孔加入100 μL表达的穿孔素HolLm44蛋白,PBS对照组每孔加入100 μL PBS,37 ℃孵育1 h,每组设置3个重复。随后每孔加入3 μL 2%刃天青溶液混匀,继续在37 ℃孵育,60 min后观察颜色变化。

1.2.7 穿孔素HolLm44最小抑菌浓度测定

参照美国国家临床实验室标准化委员会(NCCLS)推荐的肉汤微量稀释法进行测定。以LB培养基对纯化穿孔素HolLm44蛋白进行倍比稀释,向96孔微量培养板中对应孔中加入100 μL稀释后的蛋白溶液,同时每孔加入100 μL浓度约为5×10⁵ CFU/mL的金黄色葡萄球菌m44菌液,设立阳性对照(金黄色葡萄球菌m44菌液)和阴性对照(无菌培养基)。将96孔微量培养板置于37 ℃培养箱中过夜培养,每个梯度设置3个重复。判定标准:以没有肉眼可见的细菌生长的最低浓度为穿孔素HolLm44的最小抑菌浓度。

1.2.8 穿孔素HolLm44对宿主菌金黄色葡萄球菌m44的影响

将金黄色葡萄球菌m44培养至对数生长期,4 ℃ 2 400×g离心10 min,并用PBS(pH 7.2)洗涤3次,加入穿孔素HolLm44至终浓度为最小抑菌浓度,37 ℃条件孵育,待穿孔素HolLm44对金黄色葡萄球菌m44作用30 min后取样进行革兰氏染色,显微镜下观察细菌染色及形态变化,同时以未受穿孔素HolLm44作用(以PBS替代穿孔素HolLm44)的金黄色葡萄球菌m44作为对照。

1.2.9 穿孔素HolLm44的最适作用温度及pH测定

参考文献[10]的方法,选用不同温度条件、不同pH条件进行诱导表达,以确定穿孔素HolLm44的最适作用温度及pH。

1.2.10 穿孔素HolLm44对20株金黄色葡萄球菌的抑菌效果

将本实验室保存的20株金黄色葡萄球菌作为指示菌测定穿孔素HolLm44的抗抑菌谱。将指示菌培养至对数期(OD600 nm=0.4~0.6),各取200 μL菌液与融化的0.6% LB半固体培养基混合制成双层平板,室温晾干后将8 μL穿孔素HolLm44蛋白滴于双层平板上,静置晾干后倒置于37 ℃培养箱中观察有无抑菌圈形成,并评价穿孔素对HolLm44金黄色葡萄球菌的抑菌能力。

1.3 数据统计与分析

试验中的数据均为3次重复,数据结果用平均值±标准差(mean±SD)的形式表示。使用IBS在线工具绘制穿孔素结构域,使用SWISS-MODEL软件得到穿孔素的三维模型。折线图和柱状图利用绘图软件GraphPad Prism 8.0进行绘制。

2 结果与分析

2.1 噬菌体VB_SauM_Lm44的复苏

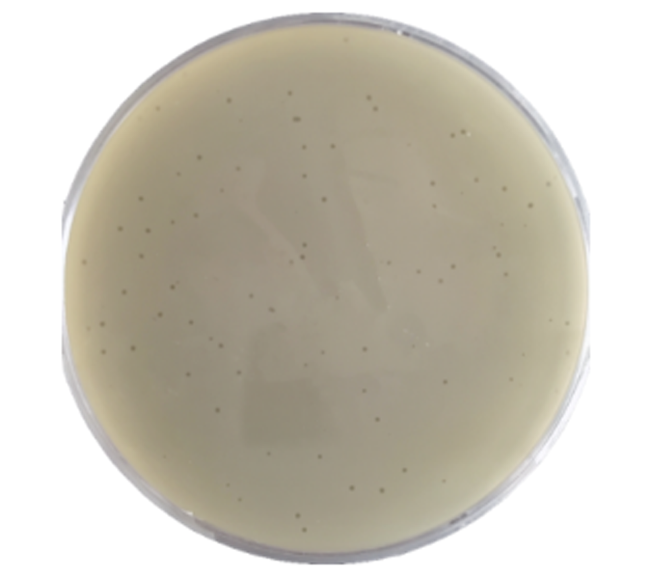
通过双层平板点样法复苏VB_SauM_Lm44,结果如图1所示,在LB双层平板上形成了圆形透明、大小均一的直径大约为1 mm的噬菌斑。
图1 复苏噬菌体单噬斑

Fig.1 Revival phage monophage plaque

2.2 噬菌体VB_SauM_Lm44穿孔素HolLm44蛋白预测

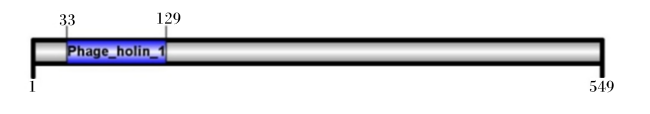
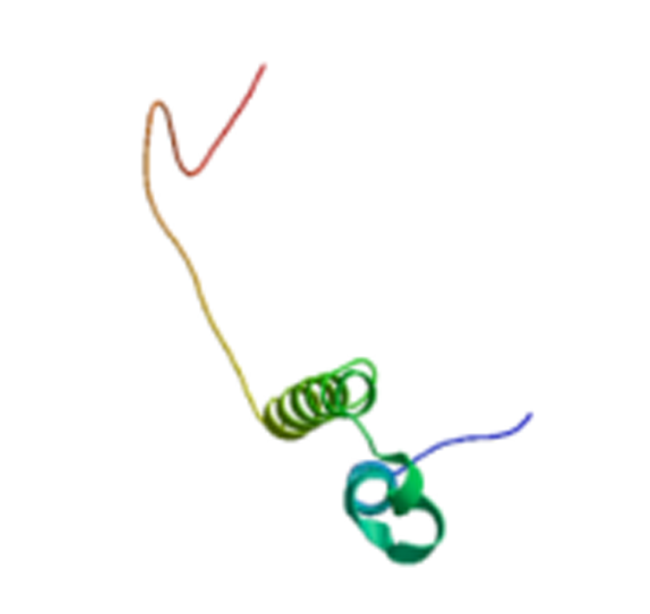
使用ProtParam在线工具对穿孔素HolLm44蛋白进行预测,结果见表1。通过使用Pfam数据库对VB_SauM_Lm44基因组进行预测,发现HolLm44所匹配到的target_identifier为Phage_holin_1(PF04531),与蛋白注释结果相符,所绘制结构域示意图如图2所示。使用SWISS-MODEL在线软件得到穿孔素的三维模型,如图3所示。使用SignalP(version 4.1)软件(http://www.cbs.dtu.dk/services/SignalP/)预测蛋白编码基因中存在的信号肽序列,但未注释到相关基因。使用TMHMM(Server v.2.0)预测蛋白编码基因中的跨膜螺旋结构,结果表明,穿孔素HolLm44具有2个跨膜区,其N-端和C-端都分布于细胞质内,属于Ⅱ类穿孔素。
表1 穿孔素HolLm44蛋白预测结果

Table 1 Holin HolLm44 protein prediction results

名称
Name
氨基酸数量
Amino acid
number/个
分子质量
Molecular
weight/
kDa
理论等
电点pI
Theoretical
pI
带负电荷残基
(Asp+Glu)总数
Total number
of negatively
charged residues
(Asp+Glu)
带正电荷残基
(Arg+Lys)总数
Total number
of positively
charged residues
(Arg+Lys)
半衰期
Half-life
period
不稳定性
指数
Instability
index
HolLm44 182 20 122.8 6.74 20 20 30 h(哺乳动物网
织红细胞,体外);
>20 h(酵母,体内);
>10 h(大肠杆菌,体内)
35.82
图2 穿孔素HolLm44结构域示意图

Fig.2 Schematic diagram of holin HolLm44 domain

图3 穿孔素HolLm44的三维模型

Fig.3 3D modeling of holin HolLm44

2.3 VB_SauM_Lm44穿孔素基因克隆结果

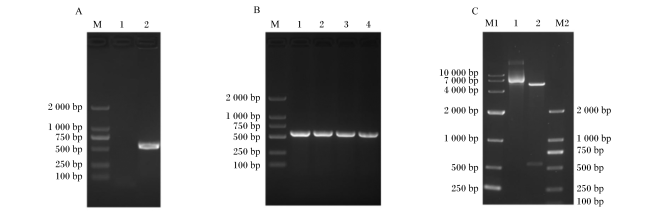
用凝胶电泳检测PCR扩增片段,确定获得穿孔素基因扩增产物(图4-A图4-B),转化后提取阳性单克隆菌液中的重组质粒,对其进行Bam H Ⅰ和Xho Ⅰ双酶切验证,结果如图4-C所示,双酶切片段与目的片段大小相符。
图4 穿孔素基因克隆结果

A:PCR扩增穿孔素基因片段的电泳结果(M:DNA Marker 2 000 bp;1:阴性对照;2:HolLm44基因PCR产物);B:菌液PCR验证穿孔素基因(M:DNA Marker 2 000 bp;1、2、3、4:转化子菌落PCR产物);C:重组质粒的Bam H Ⅰ和Xho Ⅰ双酶切验证(M1:DNA Marker 10 000 bp;M2:DNA Marker 2 000 bp;1:重组质粒;2:重组质粒双酶切产物)。

Fig.4 Cloning results of holin gene

A: electrophoretic results of PCR amplification of the holin gene fragment (M: DNA Marker 2 000 bp; 1: negative control; 2: HolLm44 gene PCR product; B: bacterial solution PCR verifies holin gene (M: DNA Marker 2 000 bp; 1, 2, 3, 4: transformant colony PCR product; C: Bam H Ⅰ and Xho Ⅰ double digestion validation of recombinant plasmids (M1: DNA Marker 10 000 bp; M2: DNA Marker 2 000 bp; 1: recombinant plasmid; 2: recombinant plasmid double digestion product).

2.4 VB_SauM_Lm44穿孔素基因表达结果

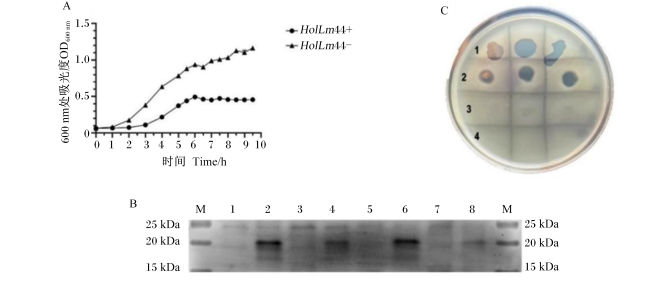
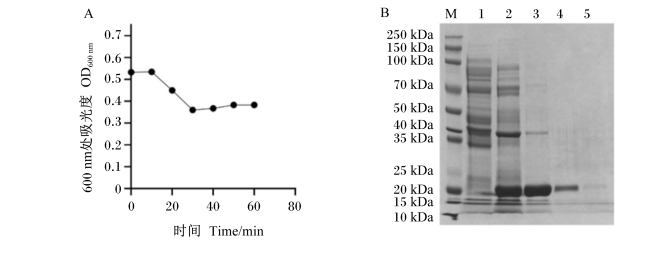
图5-A所示,在未进行诱导时携带HolLm44基因重组质粒的转化株BL21(DE3)的生长速度相比于携带空质粒的转化株BL21(DE3)更慢,这说明穿孔素表达可能对菌株造成了一定的毒性,导致部分宿主细胞死亡。随着穿孔素的诱导表达,携带穿孔素基因重组质粒的转化株BL21(DE3)在前30 min的OD600 nm略有上升,在大约1 h后下降然后趋于平稳,说明其生长缓慢甚至停滞,诱导穿孔素基因表达的大肠杆菌BL21(DE3)的OD600 nm从0.49下降至0.45。使用Western-Blot法鉴定穿孔素蛋白的表达情况,结果如图5-B所示,在诱导30 min及1.5 h后穿孔素蛋白均有表达,通过对比不同诱导时间蛋白条带的灰度值可以发现诱导30 min后获得的蛋白量更高;双层平板点样检测穿孔素蛋白活性结果如图5-C所示,显示其具有穿孔素活性。进一步测定携带HolLm44基因重组质粒的转化株BL21(DE3)plysS的生长曲线(图6-A),结果表明,携带HolLm44基因重组质粒的转化株BL21(DE3)plysS在诱导后OD600 nm立即下降,大约30 min后生长缓慢甚至停滞逐渐趋于平稳,以25 ℃、30 min的条件诱导2 L携带HolLm44基因重组质粒的转化株BL21(DE3)plysS,表达穿孔素HolLm44,并对表达的蛋白进行亲和层析纯化和考马斯亮蓝染色,结果如图6-B所示,梯度洗脱至咪唑浓度为200 mmol/L时,纯化得到的穿孔素HolLm44经SDS-PAGE检测几乎没有杂带。采用BCA蛋白浓度测定试剂盒测定穿孔素HolLm44蛋白浓度,纯化后蛋白浓度为1.423 mg/mL。
图5 穿孔素BL21 (DE3)表达

A:表达菌株BL21(DE3)的生长速度(HolLm44+:携带HolLm44;HolLm44-:不携带HolLm44);B:不同菌液中穿孔素蛋白在诱导30 min及1.5 h后的表达情况(M:蛋白质分子质量标准;1:诱导30 min空质粒转化子全菌体;2:诱导30 min HolLm44+转化子全菌体;3:诱导1.5 h空质粒转化子全菌体;4:诱导1.5 h HolLm44+转化子全菌体;5:诱导30 min空质粒转化子胞内液;6:诱导30 min HolLm44+转化子胞内液;7:诱导1.5 h空质粒转化子胞内液;8:诱导1.5 h HolLm44+转化子胞内液);C:双层平板点样法验证蛋白活性(1:噬菌体液;2:诱导HolLm44+转化子胞内液;3:诱导空质粒转化子胞内液;4:磷酸盐缓冲液)。

Fig.5 Holin BL21 (DE3) expression

A: growth rate of the expression strain BL21(DE3) (HolLm44+: carried HolLm44; HolLm44-: did not carry HolLm44); B: expression of pore-forming protein in various bacterial lysates induced for 30 min and 1.5 h (M: protein molecular weight standard; 1: induction of 30 min empty plasmid transformer whole bacteria; 2: induction of 30 min HolLm44+transformant whole bacteria; 3: induction of 1.5 h empty plasmid transformant whole bacteria; 4: induction of 1.5 h HolLm44+transformant whole bacteria; 5: induction of 30 min empty plasmid transformant intracellular fluid; 6: induce 30 min HolLm44+transformant intracellular fluid; 7: induction of 1.5 h empty plasmid transformant intracellular fluid; 8: induction of 1.5 h HolLm44+transformant intracellular fluid); C: assessment of protein activity via the double-layered agar well diffusion assay (1: phage fluid; 2: intracellular fluid of induced HolLm44+transformants; 3: intracellular fluid of induced empty plasmid transformants; 4: PBS).

图6 穿孔素BL21(DE3)plysS表达

A:BL21(DE3)plysS的生长曲线;B:纯化洗脱蛋白液考马斯亮蓝染色情况(M:蛋白质分子质量标准10~250 kDa;1:10 mmol/L咪唑洗脱;2:100 mmol/L咪唑洗脱;3:150 mmol/L咪唑洗脱;4:200 mmol/L咪唑洗脱;5:300 mmol/L咪唑洗脱)。

Fig.6 Holin BL21 (DE3) plysS expression

A: growth curve of BL21(DE3) plysS; B: Coomassie brilliant blue staining of purified eluted protein solution ( M: protein molecular weight standard 10-250 kDa; 1: 10 mmol/L imidazole elution; 2: 100 mmol/L imidazole elution; 3: 150 mmol/L imidazole elution; 4: 200 mmol/L imidazole elution; 5: 300 mmol/L imidazole elution).

2.5 穿孔素HolLm44的抑菌效果

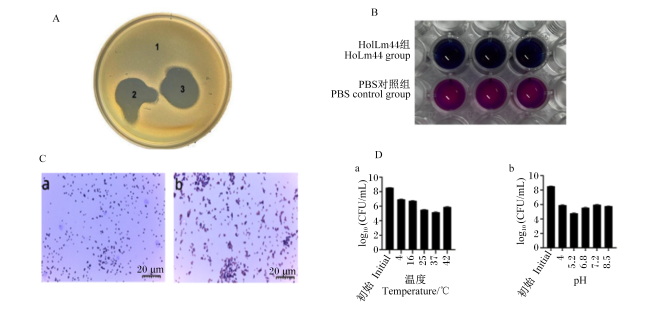
选择双平板法检测纯化后穿孔素HolLm44的抑菌效果,结果如图7-A所示,观察点样培养后的双平板,可以发现纯化后穿孔素HolLm44的抑菌效果良好,空斑明显。经刃天青染色后,肉眼可见穿孔素HolLm44处理过的金黄色葡萄球菌m44与未经穿孔素HolLm44处理的PBS对照组相比颜色差异明显,HolLm44组显色后液体呈蓝紫色,PBS对照组为粉红色(图7-B),说明穿孔素HolLm44对金黄色葡萄球菌m44具有杀灭作用。从穿孔素HolLm44对不同来源的金黄色葡萄球菌的抑菌能力测定结果(表2)来看,除金黄色葡萄球菌F26以外的其他菌株均对穿孔素HolLm44表现出敏感性。使用96孔板测定其最小抑菌浓度为178 μg/mL。使用革兰氏染色研究穿孔素HolLm44对宿主菌金黄色葡萄球菌m44的影响(图7-C),结果显示穿孔素HolLm44影响了金黄色葡萄球菌m44细胞通透性,破坏了其完整性。穿孔素HolLm44的最适作用温度为37 ℃,最适作用pH为5.2(图7-D)。
图7 穿孔素HolLm44的抑菌效果及最适作用条件(温度和pH)

A:双层平板点样结果(1:磷酸盐缓冲溶液;2、3:纯化蛋白);B:刃天青染色结果;C:HolLm44作用前后金黄色葡萄球菌m44的革兰氏染色结果(a:未经HolLm44处理的金黄色葡萄球菌m44菌体;b:经HolLm44处理的金黄色葡萄球菌m44菌体);D:HolLm44最适作用条件结果(a:HolLm44在不同温度下的抑菌效果;b:HolLm44在不同pH下的抑菌效果)。

Fig.7 Bacteriostatic effect and optimal action conditions (temperature and pH) of holin HolLm44

A: double-layer plate spotting results (1: PBS; 2, 3: purified protein; B: Gram stain results of S. aureus m44 before and after HolLm44 action; C: Gram stain results of S. aureus m44 before and after HolLm44 action ( a: S. aureus m44 bacteria not treated with HolLm44; b: S. aureus m44 bacteria treated with HolLm44); D: results of HolLm44 optimal conditions of action (a: bacteriostatic effect of HolLm44 at different temperatures; b: bacteriostatic effect of HolLm44 at different pH).

表2 穿孔素HolLm44对不同来源金黄色葡萄球菌的抑菌能力

Table 2 Bacteriostatic ability of holin HolLm44 against S. aureus from different sources

菌株
Strains
敏感性
Sensibility
菌株
Strains
敏感性
Sensibility
金黄色葡萄球菌CVCC 3056 S. aureus CVCC 3056 + 金黄色葡萄球菌F7 S. aureus F7 +
金黄色葡萄球菌ATCC 25923 S. aureus ATCC 25923 + 金黄色葡萄球菌JII S. aureus JII +
金黄色葡萄球菌ATCC 29213 S. aureus ATCC 29213 + 金黄色葡萄球菌CD S. aureus CD +
金黄色葡萄球菌F24 S. aureus F24 + 金黄色葡萄球菌E21 S. aureus E21 +
金黄色葡萄球菌E63 S. aureus E63 + 金黄色葡萄球菌F1 S. aureus F1 +
金黄色葡萄球菌E1 S. aureus E1 + 金黄色葡萄球菌F26 S. aureus F26 -
金黄色葡萄球菌F9 S. aureus F9 + 金黄色葡萄球菌m44 S. aureus m44 +
金黄色葡萄球菌E44 S. aureus E44 + 金黄色葡萄球菌m48 S. aureus m48 +
金黄色葡萄球菌CX S. aureus CX + 金黄色葡萄球菌m34 S. aureus m34 +
金黄色葡萄球菌F76 S. aureus F76 + 金黄色葡萄球菌m43 S. aureus m43 +

“+”表示敏感,“-”表示不敏感。

“+” mean sensitive, and “-” mean insensitive.

3 讨论

通过对噬菌体VB_SauM_Lm44穿孔素序列分析,我们发现本研究表达的穿孔素蛋白为Ⅱ类穿孔素,此结果与前人发现的金黄色葡萄球菌噬菌体穿孔素序列相似,具有Ⅱ类穿孔素特征[11],属于Ⅱ类穿孔素[12]。在工程菌株的诱导条件上,本试验参考实验室过去经验及有关穿孔素诱导表达文献[11-13],选择0.5 mmol/L的IPTG作为诱导剂,诱导温度选择25 ℃,结果显示该穿孔素蛋白为可溶性表达,对诱导表达后感受态细胞的胞内液使用点样法验证活性,可发现其抑菌效果良好,双平板上会出现空斑;再对BL21(DE3)感受态细胞生长情况进行观察,发现在没有诱导剂的情况下存在穿孔素HolLm44的表达,即发生渗漏表达。为防止发生渗漏表达的情况,最终选择使用大肠杆菌BL21(DE3)plysS感受态细胞表达穿孔素HolLm44,该菌株带有质粒plysS,具有氯霉素抗性。此质粒含有表达T7溶菌酶的基因,T7溶菌酶能够降低目的基因的背景表达水平,但不干扰IPTG诱导的表达。在小量表达时使用0.5 mmol/L的IPTG作为诱导剂、25 ℃诱导的条件对蛋白进行表达,发现穿孔素HolLm44表达量相对较高。关于噬菌体穿孔素的研究不是很多,如大肠杆菌噬菌体EC-p9和沙门氏菌噬菌体SM-p2的穿孔素(Hol 9、Hol 2)分别具有较强的杀菌能力,Hol 9、Hol 2的最高的裂解活性分别为81.120%、83.356%[13];猪链球菌噬菌体SMP穿孔素对金黄色葡萄球菌及枯草芽孢杆菌均具有裂解活性,并且将该噬菌体的穿孔素与裂解酶联合应用时可以拓宽其裂解谱[14]。这些结果表明,穿孔素单独使用也具有抗菌活性,有着成为抗菌药物的前景。结果显示,本研究中表达的穿孔素HolLm44具有良好的抑菌效果,其最适作用温度为37 ℃,最适作用pH为5.2,条件要求较温和。先前本实验室研究发现,在22株金黄色葡萄球菌中仅有4株对噬菌体VB_SauM_Lm44表现敏感,与其来源噬菌体VB_SauM_Lm44相比,穿孔素HolLm44的抑菌能力大大增强,在作为指示菌的20株金黄色葡萄球菌中只有1株表现出不敏感,这表明了穿孔素HolLm44具有作为抗菌剂的潜力,但穿孔素HolLm44的安全性及作用机制等仍需要进一步试验深入研究。

4 结论

本研究从噬菌体VB_SauM_Lm44成功克隆表达出具有活性的穿孔素,并命名其为HolLm44。该穿孔素HolLm44最适作用温度为37 ℃,最适作用pH为5.2,且与噬菌体VB_SauM_Lm44相比具有更好的抑制金黄色葡萄球菌的效果。
[1]
中国奶业协会, 农业农村部奶及奶制品质量监督检验测试中心(北京). 中国奶业质量报告(2022)[M]. 北京: 中国农业科学技术出版社, 2022.

Dairy Association of China, Milk and Milk Products Inspection Center of China Ministry of Agriculture and Rural Affairs (Beijing). China dairy quality report (2022)[M]. Beijing: China Agricultural Science and Technology Press, 2022. (in Chinese)

[2]
金迪, 彭华. 我国规模奶牛场奶牛营养与饲喂管理现状分析[J]. 中国乳业, 2023(12):16-21.

JIN D, PENG H. Analysis of nutrition and feeding management status of dairy cows in scale dairy farms in China[J]. China Dairy, 2023(12):16-21. (in Chinese)

[3]
ZALEWSKA M, BRZOZOWSKA P, RZEWUSKA M, et al. The quality and technological parameters of milk obtained from dairy cows with subclinical mastitis[J/OL]. Journal of Dairy Science, 2024,doi:10.3168/jds.2024-25346.

[4]
蒋维, 刘俊琦, 周望平. 奶牛乳房炎病原菌研究进展[J]. 湖南畜牧兽医, 2024(2):52-55.

JIANG W, LIU J Q, ZHOU W P. Advances in research on bovine mastitis pathogens[J]. Hunan Animal Science and Veterinary Medicine, 2024(2):52-55. (in Chinese)

[5]
KOTZAMANIDIS C, VAFEAS G, GIANTZI V, et al. Staphylococcus aureus isolated from ruminants with mastitis in Northern Greece dairy herds:genetic relatedness and phenotypic and genotypic characterization[J]. Toxins, 2021, 13(3):176.

[6]
马晓姣, 赵艳坤, 邵伟, 等. 新疆部分地区生乳中金黄色葡萄球菌的分离鉴定及耐药性分析[J]. 中国畜牧兽医, 2023, 50(2):789-797.

DOI

MA X J, ZHAO Y K, SHAO W, et al. Isolation,identification and drug resistance analysis of Staphylococcus aureus in raw milk in some areas of Xinjiang[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(2):789-797. (in Chinese)

[7]
PIEL D, BRUTO M, LABREUCHE Y, et al. Phage-host coevolution in natural populations[J]. Nature Microbiology, 2022, 7:1075-1086.

[8]
梁文锐, 王雨露, 陈碧莹, 等. 噬菌体裂解系统的研究进展综述[J]. 科技视界, 2023(4):44-47.

LIANG W R, WANG Y L, CHEN B Y, et al. A review of the research progress on bacteriophage lysis systems[J]. Science & Technology Vision, 2023(4):44-47. (in Chinese)

[9]
YOUNG R. Bacteriophage lysis:mechanism and regulation[J]. Microbiological Reviews, 1992, 56(3):430-481.

[10]
SHI Y B, LI N, YAN Y X, et al. Combined antibacterial activity of phage lytic proteins holin and lysin from Streptococcus suis bacteriophage SMP[J]. Current Microbiology, 2012, 65(1):28-34.

[11]
宋军. 金黄色葡萄球菌噬菌体GH15穿孔素功能研究[D].博士学位论文. 长春: 吉林大学, 2016.

SONG J. Functional study of holin from Staphylococcus aureus bacteriophage GH15[D].Ph.D.Thesis. Changchun: Jilin University, 2016. (in Chinese)

[12]
喻鑫婷. 金黄色葡萄球菌噬菌体裂解酶和穿孔素的克隆表达及抗菌活性研究[D].硕士学位论文. 合肥: 安徽医科大学, 2022.

YU X T. Cloning, expression and antibacterial activity of endolysin and holin against Staphylococcus aureus phage[D].Master’s Thesis. Hefei: Anhui Medical University, 2022. (in Chinese)

[13]
戚斌, 解天慧, 石慧. 沙门氏菌噬菌体SM-p2内溶酶及穿孔素的生物信息学分析和克隆表达[J]. 中国食品学报, 2022, 22(8):32-39.

QI B, XIE T H, SHI H. Bioinformatics analysis and cloning expression of endolysin and holin in Salmonella phage SM-p2[J]. Journal of Chinese Institute of Food Science and Technology, 2022, 22(8):32-39. (in Chinese)

[14]
SHI Y B, YAN Y X, JI W H, et al. Characterization and determination of holin protein of Streptococcus suis bacteriophage SMP in heterologous host[J]. Virology Journal, 2012, 9:70.

文章导航

/