研究论文

不同蛋白质来源饲粮对育肥猪生长性能、营养物质表观消化率、血清指标和肠道微生物菌群的影响

  • 何振涛 ,
  • 刘帅 * ,
  • 肖华钦 ,
  • 赵英杰 ,
  • 陈少珍 ,
  • 王瑞 ,
  • 杨晗潇 ,
  • 郑华昱 ,
  • 林智健 ,
  • 温晓鹿 ,
  • 吴绮雯 ,
  • 杨雪芬 ,
  • 高开国 ,
  • 曹舒婷 , ** ,
  • 蒋宗勇 ,
  • 王丽 , **
展开
  • 广东省农业科学院动物科学研究所,猪禽种业全国重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室,广州 510640
** 曹舒婷,副研究员,E-mail: ;
王 丽,研究员,硕士生导师,E-mail:

* 同等贡献作者

何振涛(1998—),男,广东佛山人,硕士研究生,畜牧专业。E-mail:

Copy editor: 武海龙

收稿日期: 2024-08-23

  网络出版日期: 2025-04-15

基金资助

国家重点研发计划(2021YFD1300402)

广东省农业科学院科技计划(R2020PY-JG009)

广东省农业科学院科技计划(202106TD)

国家生猪产业技术体系(CARS-35)

广东省乡村振兴战略专项资金(2023TS-3-1)

国家现代农业产业技术体系建设项目和茂名实验室发展项目(2021ZZ003)

广东省基础与应用基础研究基金(2021A151110636)

广东省基础与应用基础研究基金(2021A1515110636)

Effects of Diets with Different Protein Sources on Growth Performance, Nutrient Apparent Digestibility, Serum Indices and Gut Microbiota of Finishing Pigs

  • HE Zhentao ,
  • LIU Shuai * ,
  • XIAO Huaqin ,
  • ZHAO Yingjie ,
  • CHEN Shaozhen ,
  • WANG Rui ,
  • YANG Hanxiao ,
  • ZHENG Huayu ,
  • LIN Zhijian ,
  • WEN Xiaolu ,
  • WU Qiwen ,
  • YANG Xuefen ,
  • GAO Kaiguo ,
  • CAO Shuting , ** ,
  • JIANG Zongyong ,
  • WANG Li , **
Expand
  • Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Swine and Poultry Breeding Industry, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
** CAO Shuting, associate professor, E-mail: ;
WANG Li, professor, E-mail:

* Contributed equally

Received date: 2024-08-23

  Online published: 2025-04-15

摘要

本研究旨在研究不同蛋白质来源饲粮对育肥猪生长性能、营养物质表观消化率、血清免疫指标、血清生化指标、结肠内容物短链脂肪酸含量和结肠微生物菌群的影响。选择初始体重为(97.27±0.22) kg的72头健康“杜×长×大”育肥猪,随机分为4组,每组6个重复,每个重复3头猪。4组分别饲喂玉米-豆粕-菜籽粕(CSR组)、玉米-豆粕-棉籽粕(CSC组)、玉米-豆粕-葵花籽粕(CSS组)和玉米-混合杂粕(CMM组)饲粮,各组饲粮粗蛋白质水平一致。结果表明: 1)CSS组的料重比显著低于CSR组(P<0.05)。2)CSS组的粗蛋白质表观消化率显著高于CMM组(P<0.05),CSR组的粗脂肪表观消化率显著高于CMM组(P<0.05),CSR组和CSS组的总能表观消化率显著高于CMM组(P<0.05)。3)各组之间血清炎症因子和免疫球蛋白含量无显著差异(P>0.05)。CMM组的血清肌酐含量显著高于CSR组(P<0.05),CMM组的血清甘油三酯含量显著高于CSR组和CSS组(P<0.05),CSS组的血清低密度脂蛋白胆固醇含量显著高于CSR组和CSC组(P<0.05),CMM组的血清总胆红素含量显著高于其他各组(P<0.05)。4)各组之间结肠内容物短链脂肪酸含量无显著差异(P>0.05)。5)4组相对丰度排行前3的肠道优势菌门均为厚壁菌门(Firmicutes)、变形菌门(Proteobacteria)和拟杆菌门(Bacteroidetes)。综上所述,不同蛋白质来源饲粮对育肥猪血清炎症因子和免疫球蛋白含量、结肠内容物短链脂肪酸含量和肠道菌群多样性未表现出显著影响。这些结果有助于进一步开发杂粕(菜籽粕、棉籽粕+葵花籽粕)在育肥猪饲粮中的应用。

本文引用格式

何振涛 , 刘帅 , 肖华钦 , 赵英杰 , 陈少珍 , 王瑞 , 杨晗潇 , 郑华昱 , 林智健 , 温晓鹿 , 吴绮雯 , 杨雪芬 , 高开国 , 曹舒婷 , 蒋宗勇 , 王丽 . 不同蛋白质来源饲粮对育肥猪生长性能、营养物质表观消化率、血清指标和肠道微生物菌群的影响[J]. 动物营养学报, 2025 , 37(4) : 2296 -2308 . DOI: 10.12418/CJAN2025.195

Abstract

This study aimed to investigate the effects of diets with different protein sources on growth performance, nutrient apparent digestibility, serum immune indices, serum biochemical indices, contents of short-chain fatty acids in colonic contents and intestinal microbiota of finishing pigs. A total of 72 healthy finishing pigs (Duroc×Landrace×Large White) with an initial body weight of (97.27±0.22) kg were randomly divided into 4 groups with 6 replicates per group and 3 pigs per replicate. The 4 groups fed the corn-soybean meal-rapeseed meal (CSR group), corn-soybean meal-cottonseed meal (CSC group), corn-soybean meal-sunflower meal (CSS group) and corn-mixed meal (CMM group) diet, respectively, and the dietary crude protein levels of each group were consistent. The results showed as follows: 1) the feed to gain ratio of CSS group was significantly lower than that of CSR group (P<0.05). 2) the crude protein apparent digestibility of CSS group was significantly higher than that of CMM group (P<0.05), the ether extract apparent digestibility of CSR group was significantly higher than that of CMM group (P<0.05), and the gross energy apparent digestibility of CSR and CSS groups was significantly higher than that of CMM group (P<0.05). 3) There were no significant differences in serum inflammatory factors and immunoglobulin contents among all groups (P>0.05). The serum creatinine content of CMM group was significantly higher than that of CSR group (P<0.05), the serum triglyceride content of CMM group was significantly higher than that of CSR and CSS groups (P<0.05), the serum low density lipoprotein cholesterol content of CSS group was significantly higher than that of CSR and CSC groups (P<0.05), and the serum total bilirubin content of CMM group was significantly higher than that of other groups (P<0.05). 4) There were no significant differences in contents of short-chain fatty acids in colonic contents among all groups (P>0.05). 5) The relative abundant top 3 intestinal dominant bacteria phylum of 4 groups were Firmicutes, Proteobacteria and Bacteroidetes. In conclusion, the diets with different protein sources do not significantly affect serum inflammatory factors and immunoglobulin contents, contents of short-chain fatty acids in colonic contents and the gut microbiota diversity of finishing pigs. These results contribute to the further exploration and application of miscellaneous meals (rapeseed meal, cottonseed meal and sunflower meal) in diets for finishing pigs.

饲料成本在整体生猪养殖经济中占据60%~70%,对生产效益产生显著影响。在我国,随着生猪产能的持续增长,饲料原料的供给紧张与环境排放问题日益凸显。当前,国内养猪业主要依赖玉米-豆粕型饲料体系,这不仅加剧了人畜之间的粮食竞争(占国家粮食消费总量超过50%),而且由于豆粕资源的短缺、进口依赖度高以及价格波动,推高了养猪成本。其中,为增强养猪业的可持续性和自给力,开发本地蛋白质原料变得尤为重要。在生长育肥猪饲养实践中,推广低蛋白质饲粮的使用、开发和利用非传统蛋白质饲料原料,能够减少蛋白质原料的整体消耗及氮的排放,这是提升商品猪养殖效益和减轻养殖环境压力的关键措施。在国家层面推动饲料减量和替代策略的背景下,由谯仕彦院士领衔的团队制定并发布了《生猪低蛋白低豆粕多元化日粮生产技术规范》(T/CFIAS 8001—2022)团体标准,于2022年正式实施[1]。该标准建议对于体重50~75 kg、75~100 kg和100 kg~出栏的生长育肥猪饲粮粗蛋白质(CP)水平分别为13%~15.5%、11%~14%和10%~13%,并对非传统饲料原料在不同生理阶段的最高使用比例提出了建议。这一标准的实施将促进饲料资源的多样化利用,为我国猪肉产业的可持续发展提供技术支撑。
菜籽粕、棉籽粕和葵花籽粕是我国农业生产的典型副产品[2-3]。这些副产品具有蛋白质含量高、产量大、成本低等优点。作为植物性蛋白质原料,它们有望在养猪生产中替代豆粕。以往的研究表明,科学合理地应用这类蛋白质原料,可有效减少饲粮中的豆粕用量,对缓解对豆粕的依赖具有积极意义[4-5]。在生长育肥猪阶段,菜籽粕、棉籽粕和葵花籽粕的使用也存在差异。先前的研究表明,在低蛋白质饲粮的基础上使用发酵菜籽粕部分替代豆粕,对60~110 kg阶段育肥猪的生长性能和胴体性状无负面影响,但可显著提高猪肉的肌苷酸含量和感官评分,并具有改善猪肉脂肪酸组成的作用[6]。还有研究强调了在生长猪[最终体重为(108.7±4.2) kg]的饲粮中添加菜籽粕和蚕豆的潜在益处,可提高育成期的饲料转化率,并增加血液中游离氨基酸含量[7]。棉籽粕的粗蛋白质、矿物质和维生素含量与豆粕相似。研究表明,在生长猪(13.18~39.81 kg)的饲粮中用棉籽粕部分替代2.5%的豆粕不会对生长性能产生显著影响[5]。还有研究发现,使用棉籽粕和玉米胚芽粕部分替代豆粕不会对育肥猪[(58.65±1.71) kg]的生长性能产生负面影响[8]。此外,Kim等[9]观察到,生长猪[初始体重为(19.3±1.8) kg]在饲喂高蛋白质葵花籽粉时,营养物质消化利用效率得到提高。上述研究表明,菜籽粕、棉籽粕和葵花籽粕在生长育肥猪阶段可以作为优质的蛋白质原料。然而,在饲粮中不同蛋白质来源的使用是否对育肥猪的生长性能、营养物质表观消化率和肠道微生物菌群等的影响有关,目前仍不清楚。因此,本试验旨在研究不同蛋白质来源饲粮对育肥猪生长性能、营养物质表观消化率、血清免疫和生化指标、结肠内容物短链脂肪酸含量及肠道微生物菌群的影响,为菜籽粕、棉籽粕和葵花籽粕在育肥猪饲粮中的应用提供理论依据。

1 材料与方法

1.1 试验设计和饲养管理

本研究的所有动物试验方案均经广东省农业科学院动物保育与使用委员会批准,并遵循《科研与教学用动物保育和使用指南》(授权编号:GAIASIAS-2022-022)。
试验选择72头健康的“杜×长×大”育肥猪,初始体重为(97.27±0.22) kg,随机分为4组,每组6个重复,每个重复3头猪。4组分别为玉米-豆粕-菜籽粕(corn-soybean meal-rapeseed meal,CSR)组、玉米-豆粕-棉籽粕(corn-soybean meal-cottonseed meal,CSC)组、玉米-豆粕-葵花籽粕(corn-soybean meal-sunflower seed meal,CSS)组和玉米-混合杂粕(corn-mixed meal,CMM)组。CSR组的饲粮以菜籽粕部分替代豆粕,CSC组的饲粮以棉籽粕部分替代豆粕,CSS组的饲粮以葵花籽粕部分替代豆粕,CMM组的饲粮以混合杂粕(菜籽粕、棉籽粕+葵花籽粕)完全替代豆粕。4组饲粮的粗蛋白质水平保持在10.5%,饲粮中添加0.4%的二氧化钛作为指示剂,试验采用颗粒料。饲粮根据《猪营养需要量》(GB/T 39235—2020)推荐的营养水平制定,试验饲粮组成及营养水平见表1。菜籽粕根据GB/T 23736—2009的2级标准选取,棉籽粕根据GB/T 21264—2007的1级标准选取,葵花粕根据GB 10377—1989的T2级标准选取,菜籽粕、棉籽粕和葵花籽粕的营养水平见表2。试验期26 d,在整个试验期间猪只自由采食和饮水。
表1 试验饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis) %

项目
Items
组别Groups
CSR CSC CSS CMM
原料Ingredients
玉米Corn 59.96 61.91 56.62 58.77
木薯Cassava 25.00 25.00 25.00 25.00
豆粕Soybean meal 3.70 3.70 3.70
菜籽粕Rapeseed meal 8.46 4.05
棉籽粕Cottonseed meal 6.24 4.05
葵花籽粕Sunflower seed meal 9.74 4.05
大豆油Soybean oil 1.98 0.99
石粉Limestone 0.57 0.66 0.60 0.60
磷酸氢钙CaHPO4 0.11 0.15 0.15 0.13
氯化钠NaCl 0.40 0.40 0.40 0.40
L-赖氨酸L-lysine 0.32 0.39 0.37 0.42
DL-蛋氨酸DL-methionine 0.01 0.03 0.01
L-苏氨酸L-threonine 0.10 0.12 0.10 0.12
L-色氨酸L-tryptophan 0.03 0.02 0.02 0.03
L-缬氨酸L-valine 0.02 0.03 0.01 0.03
L-异亮氨酸L-isoleucine 0.01 0.04 0.04
二氧化钛TiO2 0.40 0.40 0.40 0.40
预混料Premix1) 0.91 0.91 0.91 0.91
合计Total 100.00 100.00 100.00 100.00
营养水平Nutrient levels2)
总能Gross energy/(MJ/kg) 15.75 15.62 16.05 15.94
消化能Digestible energy/(MJ/kg) 14.05 13.95 13.94 13.91
代谢能Metabolizable energy/(MJ/kg) 13.74 13.65 13.64 13.62
净能Net energy/(MJ/kg) 10.50 10.50 10.50 10.50
粗蛋白质Crude protein 10.68 10.53 10.62 10.37
粗脂肪Ether extract 2.87 2.75 3.29 2.99
钙Calcium 0.49 0.49 0.49 0.49
总磷Total phosphorus 0.42 0.40 0.42 0.43
标准回肠可消化赖氨酸SID lysine 0.61 0.61 0.61 0.61
标准回肠可消化蛋氨酸SID methionine 0.18 0.18 0.19 0.18
标准回肠可消化苏氨酸SID threonine 0.40 0.40 0.40 0.40
标准回肠可消化色氨酸SID tryptophan 0.11 0.11 0.11 0.11
标准回肠可消化缬氨酸SID valine 0.41 0.41 0.41 0.41
标准回肠可消化异亮氨酸SID isoleucine 0.33 0.33 0.34 0.33

1) 预混料为每千克饲粮提供 The premix provides the following per kilogram of diets:VA 4 500 IU,VD 2 100 IU,VE 22.5 mg,VK 3.75 mg,VB1 2.25mg,VB2 7.5 mg,烟酸 niacin 30 mg,泛酸钙 calcium pantothenate 11.25 mg,叶酸 folic acid 0.75 mg,VB6 3 mg,VB12 0.03 mg,生物素 biotin 0.08 mg,Fe (FeSO4·H2O) 112.5 mg,Cu (CuSO4·5H2O) 6 mg,Mn (MnSO4·H2O) 4.5 mg,Zn (ZnSO4·H2O)60 mg,I (CaI2O6)0.14 mg,Se (Na2SeO3) 0.3 mg。

2) 粗蛋白质、粗脂肪和总能为实测值,其他营养水平为计算值,参照《中国饲料成分及营养价值表》(2020年第31版)。Crude protein, ether extract and gross energy are measured values, while other nutrient levels are calculated values, according to Tables of Feed Composition and Nutritive Values in China (31st edition, 2020).

表2 菜籽粕、棉籽粕和葵花籽粕的营养水平(风干基础)

Table 2 Nutrient levels of rapeseed meal, cottonseed meal and sunflower seed meal (air-dry basis) %

项目
Items
粗蛋白质
Crude protein
粗脂肪
Ether extract
粗灰分
Crude ash

Ca
总磷
Total P
菜籽粕Rapeseed meal 38.6 1.4 11.8 0.65 1.02
棉籽粕Cottonseed meal 47.0 0.5 10.2 0.25 1.10
葵花籽粕Sunflower seed meal 36.5 1.0 10.5 0.27 1.13

数据来源于《中国饲料成分及营养价值表》(2020年第31版)。

Data are sourced from Tables of Feed Composition and Nutritive Values in China (31st edition,2020).

1.2 样品采集

在试验的第1天和第26天,对每组的试验猪进行称重。在试验中期,连续3 d在早晨饲喂前采集猪的新鲜粪便样品,并将新鲜、无污染的粪便样品装入密封袋中,储存在-20 ℃的冰箱中待测。粪便样品收集在猪圈中,经过干燥、取样和储存后进行检测。在试验的第26天,选择每个重复中接近平均体重的1头猪进行采血和屠宰。禁食12 h后,从猪的耳朵上采集血液(20 mL),在1 501×g条件下离心10 min,得到血清样品后放置于-80 ℃冰箱中保存,并且结束饲养试验,对所选择的试验猪实施屠宰取样。试验猪击晕后进行放血,直至育肥猪休克死亡,随后开膛及解剖分离结肠,并进行无菌结扎,低温储存备用。取远端结肠内容物于冻存管中,液氮速冻,-80 ℃保存,用于16S rRNA基因微生物测序。所有屠宰程序和采样程序均在屠宰场(距离猪舍约100 m)、屠宰场内的冷藏室和屠宰场内的实验室完成。

1.3 指标测定

1.3.1 生长性能

所有试验猪作为1个单独的单位在试验开始和试验结束时进行空腹称重。试验期间,准确记录每个猪栏的采食量。据此计算平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)。计算公式如下:
ADG=(末重-初重)/饲喂天数;
ADFI=(总投料量-剩料量)/(饲喂天数×饲养头数);
F/G=ADFI/ADG。

1.3.2 营养物质表观消化率

饲粮和粪样中粗蛋白质和粗脂肪(EE)含量分别按照中华人民共和国国家标准GB/T 6435—2014和GB/T 6433—2006的方法,分别使用Kjeltec 8400分析仪(FOSS Analytical AB 公司,瑞典)和全自动脂肪分析仪(XT 15i,Ankom Technology公司,美国)进行测定;饲粮和粪样中总能(GE)参照国际标准ISO 9831:1998的方法,使用氧弹式热量计(6400,Parr Instrument公司,美国)进行测定;饲粮和粪样中的钛含量采用分光光度法进行测定。营养物质表观消化率的计算公式为:
营养物质表观消化率(%)=[1-(饲粮中钛含量/粪样中钛含量)×(粪样中营养物质含量/饲粮中营养物质含量)]×100。

1.3.3 血清炎症因子和免疫球蛋白含量

使用江苏酶免实业有限公司提供的试剂盒检测血清炎症因子和免疫球蛋白含量,包括白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、白细胞介素-10(IL-10)、肿瘤坏死因子-α(TNF-α)、免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)含量,按照试剂盒提供的说明书进行测定。

1.3.4 血清生化指标

使用中生北控生物科技股份有限公司提供的试剂盒检测血清生化指标,包括血清总蛋白(TP)、肌酐(CRE)、白蛋白(ALB)、尿素(UREA)、葡萄糖(GLU)、甘油三酯(TG)、胆固醇(CHO)、高密度脂蛋白胆固醇(HDL-C)、低密度脂蛋白胆固醇(LDL-C)、总胆红素(TBIL)含量和碱性磷酸酶(ALP)、天门冬氨酸氨基转移酶(AST)、丙氨酸氨基转移酶(ALT)活性,使用全自动生化分析仪(SELECTRA ProXL,VITAL公司,荷兰)进行测定。

1.3.5 结肠内容物短链脂肪酸含量

结肠内容物根据Xiong等[10]的方法进行预处理,并使用液相色谱质谱仪测定结肠内容物短链脂肪酸(乙酸、丙酸、丁酸、戊酸、异丁酸和异戊酸)含量。

1.3.6 肠道微生物组成和多样性

采用16S rRNA基因测序技术,根据He等[11]的方法,从回肠内容物中提取总DNA、利用PCR技术扩增16S rRNA基因,并选用特异引物(341F,5'-CCTAYGGGRBGCASCAG-3';806R,5'-GGACTACNNGGGTATCTAAT-3')针对16S rRNA基因的V3~V4可变区进行检测。随后构建测序文库,并在北京诺禾致源生物信息有限公司的Illumina HiSeq 2500 PE250平台上进行测序。对测序数据的生物信息分析依据Zhan等[12]的方法进行,通过计算α-多样性参数包括香农指数(Shannon index)、辛普森指数(Simpson index)、Chao1指数(Chao1 index)和Ace指数(Ace index),评估物种多样性和均匀度。β多样性分析用于探讨不同样品组内及组间的微生物差异。样本间的空间分布通过基于Weighted Unifrac距离的主坐标分析(PCoA)和非度量多维缩放(NMDS)分析揭示,同时使用Wilcox检验来评定β多样性指数的差异。

1.4 数据分析

试验数据使用SPSS 27.0统计软件进行单因素方差分析(one-way ANOVA),并用Tukey氏法进行多重比较。结果以平均值±标准误表示,P<0.05表示差异显著。

2 结果

2.1 不同蛋白质来源饲粮对育肥猪生长性能和营养物质表观消化率的影响

表3所示,与CSR组相比,CSS组的F/G显著降低(P<0.05)。不同蛋白质来源饲粮对育肥猪的末重、ADG和ADFI无显著影响(P>0.05)。
表3 不同蛋白质来源饲粮对育肥猪生长性能的影响

Table 3 Effects of diets with different protein sources on growth performance of finishing pigs

项目
Items
组别Groups P
P-value
CSR CSC CSS CMM
初重Initial weight/kg 97.56±0.49 97.22±0.44 97.16±0.44 97.17±0.45 0.92
末重Final weight/kg 123.09±1.01 122.83±1.07 126.27±1.22 123.54±1.83 0.26
平均日增重ADG/(kg/d) 0.98±0.04 0.99±0.03 1.12±0.03 1.02±0.06 0.09
平均日采食量ADFI/(kg/d) 3.39±0.07 3.34±0.06 3.50±0.11 3.37±0.14 0.67
料重比F/G 3.46±0.08a 3.40±0.07ab 3.13±0.08b 3.34±0.07ab 0.03

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

表4所示,与CMM组相比,CSS组的粗蛋白质表观消化率显著升高(P<0.05)。与CMM组相比,CSR组的粗脂肪表观消化率显著升高(P<0.05)。与CMM组相比,CSR组和CSS组的总能表观消化率显著升高(P<0.05)。
表4 不同蛋白质来源饲粮对育肥猪营养物质表观消化率的影响

Table 4 Effects of diets with different protein sources on nutrient apparent digestibility of finishing pigs %

项目
Items
组别Groups P
P-value
CSR CSC CSS CMM
粗蛋白质Crude protein 71.91±0.74ab 70.04±1.71ab 75.78±2.07a 65.61±1.72b <0.01
粗脂肪Ether extract 85.75±0.49a 80.91±1.57ab 84.04±2.00ab 79.16±1.85b <0.01
总能Gross energy 85.29±0.47a 83.44±0.86ab 85.05±0.53a 81.95±0.85b <0.01

2.2 不同蛋白质来源饲粮对育肥猪血清炎症因子和免疫球蛋白含量的影响

表5所示,不同蛋白质来源饲粮对育肥猪血清炎症因子和免疫球蛋白含量无显著影响(P>0.05)。
表5 不同蛋白质来源饲粮对育肥猪血清炎症因子和免疫球蛋白含量的影响

Table 5 Effects of diets with different protein sources on contents of inflammatory factors and immunoglobulins in serum of finishing pigs

项目
Items
组别Groups P
P-value
CSR CSC CSS CMM
白细胞介素-1β IL-1β/(ng/L) 27.76±0.54 25.67±1.18 29.80±1.61 29.00±0.84 0.08
白细胞介素-6 IL-6/(ng/L) 477.38±39.32 507.07±37.88 598.87±104.57 498.63±36.69 0.53
白细胞介素-8 IL-8/(ng/L) 305.61±22.78 286.50±19.40 358.59±59.45 320.48±5.29 0.49
白细胞介素-10 IL-10/(ng/L) 85.54±7.08 90.89±6.82 107.41±18.83 89.37±6.61 0.53
肿瘤坏死因子-α TNF-α/(pg/mL) 180.85±4.47 201.57±13.00 272.61±42.73 205.60±11.36 0.06
免疫球蛋白A IgA/(μg/mL) 28.08±1.88 25.11±0.82 35.16±6.52 29.14±0.96 0.25
免疫球蛋白G IgG/(μg/mL) 315.09±17.08 350.56±35.44 387.40±39.88 319.23±24.99 0.34
免疫球蛋白M IgM/(μg/mL) 34.46±1.39 32.33±1.08 37.08±4.33 31.53±0.70 0.37

2.3 不同蛋白质来源饲粮对育肥猪血清生化指标的影响

表6所示,与CSR组相比,CMM组的血清肌酐含量显著升高(P<0.05)。与CSR组和CSS组相比,CMM组的血清甘油三酯含量显著升高(P<0.05)。与CSR组和CSC组相比,CSS组的血清低密度脂蛋白胆固醇含量显著升高(P<0.05)。与CSR组、CSC组和CSS组相比,CMM组的血清总胆红素含量显著升高(P<0.05)。不同蛋白质来源饲粮对育肥猪其他血清生化指标无显著影响(P>0.05)。
表6 不同蛋白质来源饲粮对育肥猪血清生化指标的影响

Table 6 Effects of diets with different protein sources on serum biochemical indices of finishing pigs

项目
Items
组别Groups P
P-value
CSR CSC CSS CMM
总蛋白TP/(g/L) 48.96±3.22 54.66±3.69 51.24±4.62 50.19±4.54 0.78
谷丙转氨酶ALT/(U/L) 61.29±4.75 68.46±0.53 68.11±1.88 69.93±2.06 0.16
肌酐CRE/(μmol/L) 145.10±7.90b 155.41±3.03ab 149.98±2.21ab 167.66±6.24a 0.04
天门冬氨酸氨基转移酶AST/(U/L) 40.07±5.32 44.12±2.80 38.39±1.86 36.15±4.64 0.54
丙氨酸氨基转移酶ALP/(U/L) 108.78±6.49 132.22±15.53 111.03±3.61 110.94±11.47 0.36
白蛋白ALB/(g/L) 37.55±2.28 40.45±1.50 38.16±2.32 40.52±2.46 0.69
尿素Urea/(mmol/L) 2.51±0.21 2.76±0.43 2.41±0.21 2.89±0.34 0.68
葡萄糖GLU/(mmol/L) 2.77±0.11 2.82±0.08 2.83±0.17 3.02±0.14 0.55
甘油三酯TG/(mmol/L) 0.50±0.06b 0.62±0.03ab 0.54±0.06b 0.80±0.05a <0.01
胆固醇CHO/(mmol/L) 10.81±0.39 10.67±0.41 11.00±0.51 10.48±0.45 0.86
高密度脂蛋白胆固醇HDL-C/(mmol/L) 0.94±0.04 1.05±0.01 1.14±0.08 1.08±0.07 0.12
低密度脂蛋白胆固醇LDL-C/(mmol/L) 1.73±0.04b 1.93±0.13b 2.41±0.16a 2.10±0.11ab <0.01
总胆红素TBIL/(μmol/L) 6.99±0.43b 6.89±0.73b 6.36±0.26b 11.36±1.00a <0.01

2.4 不同蛋白质来源饲粮对育肥猪结肠内容物短链脂肪酸含量的影响

表7所示,不同蛋白质来源饲粮对育肥猪结肠内容物短链脂肪酸含量无显著影响(P>0.05)。
表7 不同蛋白质来源饲粮对育肥猪结肠内容物短链脂肪酸含量的影响

Table 7 Effects of diets with different protein sources on contents of short chain fatty acids in colon content of finishing pigs nmol/g

项目
Items
组别Groups P
P-value
CSR CSC CSS CMM
乙酸Acetic acid 16.15±1.89 19.13±1.79 25.87±6.10 17.67±1.79 0.23
丙酸Propionic acid 12.13±1.24 15.11±1.44 15.29±1.62 13.62±1.56 0.41
丁酸Butyric acid 6.77±0.74 7.94±0.73 7.90±1.14 7.43±0.57 0.72
戊酸Valeric acid 1.37±0.08 1.67±0.27 1.83±0.41 1.65±0.39 0.78
异丁酸Isobutyric acid 3.07±0.26 2.98±0.25 4.44±0.78 2.73±0.60 0.13
异戊酸Isovaleric acid 4.01±0.30 3.94±0.45 4.96±0.71 3.42±0.86 0.38

2.5 不同蛋白质来源饲粮对育肥猪肠道微生物组成和多样性的影响

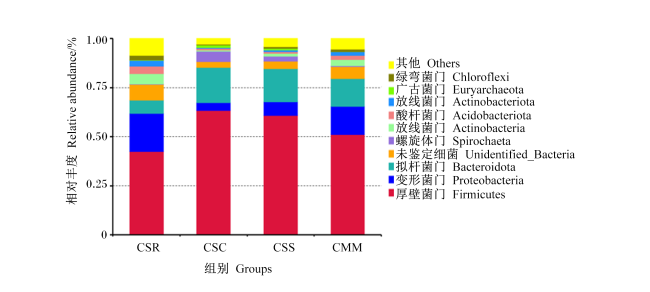
图1可知,在门水平上,4组相对丰度排行前3的肠道优势菌门均为厚壁菌门(Firmicutes)、变形菌门(Proteobacteria)和拟杆菌门(Bacteroidetes)。
图1 门水平下肠道菌群相对丰度

Fig.1 Relative abundance of intestinal flora at phylum level

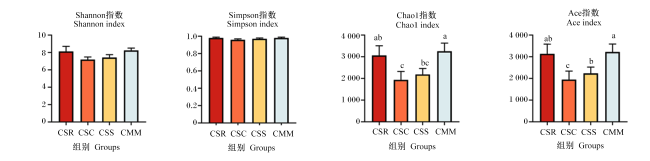
图2可知,不同蛋白质来源饲粮对育肥猪结肠内容物微生物α多样性的香农指数和辛普森指数无显著影响(P>0.05)。与CSC组相比,CSR组和CMM组的Chao1指数显著升高(P<0.05)。与CSC组相比,CSR组、CSS组和CMM组的Ace指数显著升高(P<0.05)。
图2 不同蛋白质来源饲粮对育肥猪结肠微生物α多样性的影响

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of diets with different protein sources on colonic microbiota α diversity of finishing pigs

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

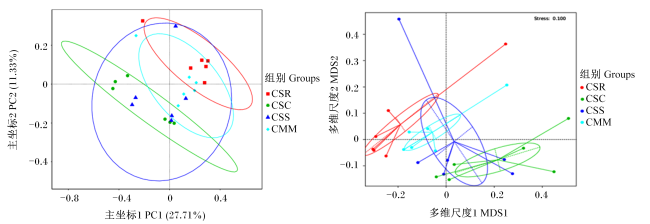
图3可知,PCoA和NMDS分析表明,4组之间的距离在分布上未表现出明显的分离。
图3 不同蛋白质来源饲粮对育肥猪结肠微生物β多样性的影响

Fig.3 Effects of diets with different protein sources on colonic microbiota β diversity of finishing pigs

3 讨论

饲料成本是影响猪肉养殖户盈利能力的关键因素,占据养猪总支出的主要部分。为提高商品猪养殖效益并减轻环境压力,需要开发和利用非传统蛋白质原料。菜籽粕富含易消化的蛋白质和氨基酸[13]。同样,棉籽粕和葵花籽粕则是有价值的副产品,常被用作豆粕的替代品。然而,关于不同蛋白质来源(菜籽粕、棉籽粕和葵花籽粕)饲粮对育肥猪生长性能、营养物质表观消化率、血清指标、肠道短链脂肪酸含量和肠道微生物菌群影响的研究仍然相对缺乏。本研究结果表明,不同蛋白质来源饲粮对育肥猪的末重、ADG和ADFI无显著影响。Peng等[14]研究表明,用13%的双低菜籽粕替代饲粮中11%的豆粕,对体重62 kg的生长猪的生长性能没有不良影响。类似的研究还发现,用菜籽粕和棉籽粕部分替代5%的豆粕,对生长猪的生长性能没有显著影响[5]。此外,Li等[15]研究表明,在饲粮中添加5%、10%和15%的葵花籽粕替代豆粕,对体重62 kg的生长猪的生长性能没有显著影响。Sevillano等[16]研究指出,妊娠期母猪体重变化、产后第1天母猪体重变化和断奶时母猪体重变化均不因饲粮处理而存在差异,妊娠期饲粮和哺乳期饲粮之间的ADFI也不存在差异。饲喂含菜籽粕的饲粮时,对体重为(29.94±0.06) kg的生长育成猪的体重和ADG没有显著影响[17]。因此,本试验结果证实了上述饲料成分与生长性能结果之间的相关性。
然而有研究发现,从生长第13周开始,饲粮中油菜籽添加量的增加会降低体重和ADG[17]。这可能是由于油菜籽含量的增加导致了饲粮中纤维含量的增加[18]。由于油菜籽的纤维和低聚糖含量很高,约为2.5%[19],因此在单胃动物饲粮中添加油菜籽受到一定限制。研究发现,在饲粮中逐渐添加0~30%的菜籽粕会线性降低生长猪的ADFI,并有线性降低ADG的趋势[20]。Hong等[21]研究发现,ADG总体上对饲粮菜籽粕水平的增加呈二次反应,当饲粮菜籽粕水平从0增加到20%时,ADG增加17%;当饲粮菜籽粕水平从20%增加到40%时,ADG减少16%。这些结果的差异可能是由于饲粮中豆粕、菜籽粕、棉籽粕和葵花籽粕的比例不同,以及其中抗营养因子的含量不同造成的。
营养物质表观消化率是衡量动物对饲料营养物质消化吸收能力的重要指标。影响饲料营养物质表观消化率的因素众多,包括蛋白质源的种类、抗营养因子含量以及动物自身的消化能力等。尽管本研究未检测饲料中抗营养因子的含量,但已有研究表明,抗营养因子对仔猪营养物质表观消化率的影响较大[22-24],但对生长育肥猪的营养物质表观消化率的影响较小[11,25]。本研究结果显示,CSS组的粗蛋白质表观消化率和CSR组的粗脂肪表观消化率最高,且这2组的总能表观消化率也显著高于CMM组,但育肥猪的生长性能并未显著下降。这一结果可能与多个因素有关。首先,不同蛋白质来源各具独特的营养特点,这些差异可在一定程度上相互补充,满足猪生长所需的营养需求。例如,葵花籽粕富含可消化蛋白质,而菜籽粕脂肪酸含量较高,有助于提高粗脂肪表观消化率[26]。此外,即使混合杂粕饲粮的营养物质表观消化率较低,育肥猪仍可能通过自身代谢调节机制有效利用可吸收的营养物质。Shim等[5]研究发现,在不同阶段用不同比例的菜籽粕和棉籽粕替代豆粕并不会显著改变生长猪的营养物质表观消化率,包括粗蛋白质、粗脂肪和总能。类似地,有研究表明用菜籽粕替代豆粕会导致育肥猪粗蛋白质表观消化率下降,但不会影响粗脂肪的表观消化率[27]。然而,不同品种的葵花籽粕替代豆粕会对生长猪的总能表观消化率产生不同的影响[4],这种差异可能是由于加工条件的不同,如温度、压力或处理时间的变化,会改变葵花籽粕的化学成分,从而影响其能量水平[28]。此外,饲粮中不同蛋白质源的配比差异也可能是导致结果不同的原因。
炎症细胞因子对免疫挑战的反映是评估细胞免疫水平的重要指标。3种细胞因子,即肿瘤坏死因子-α、白细胞介素-1和白细胞介素-6,对行为、神经内分泌和新陈代谢有显著影响[29]。细胞因子(包括白细胞介素-1β)的过度产生会导致营养物质从生长过程转移到支持免疫系统[30]。本研究结果表明,不同蛋白质来源饲粮对育肥猪的血清炎症因子和免疫球蛋白含量无显著影响。Hong等[21]研究发现,用菜籽粕替代豆粕不会显著改变仔猪血清肿瘤坏死因子-α含量[21]。与上述研究结果相反,有研究显示,与对照组相比,在饲粮中添加8%的发酵菜籽粕和饲料添加剂不会导致血清白细胞介素-6含量的显著差异;然而,在饲粮中添加8%的发酵菜籽粕而未添加饲料添加剂时,血清白细胞介素-6含量显著升高[31]。此外,之前的一项研究也表明,与对照组相比,给仔猪饲喂含8%或6%发酵菜籽粕的饲粮可显著降低血浆中白细胞介素-6含量[32]
IgA、IgG和IgM是猪体液免疫的重要成分。测量血清中这些免疫球蛋白的含量可用于评估饲料对动物免疫状态的影响。研究表明,在猪饲粮中添加发酵油菜籽饲料和其他饲料添加剂28 d后,血清免疫球蛋白含量显著增加;相较于对照组,血清IgG、IgA和IgM含量分别提高了42.7%、75.7%和44.1%[31]。这些结果表明,发酵菜籽粕可刺激猪的免疫系统并促进免疫球蛋白的合成[32]。然而,另一些研究表明,在饲粮中添加菜籽粕不会在饲养期(7 d)后显著改变猪血清IgA、IgG和IgM含量[21]。本研究结果也显示,不同蛋白质来源饲粮并不会显著影响育肥猪血清IgA、IgG和IgM含量。
血清生化指标通常用于反映动物的生理和健康状况。本研究结果表明,与CSR组相比,CMM组的血清肌酐含量显著升高;与CSR组和CSS组相比,CMM组的血清甘油三酯含量显著升高;与CSR组和CSC组相比,CSS组的血清低密度脂蛋白含量显著升高;与CSR组、CSC组和CSS组相比,CMM组的血清总胆红素含量显著升高。甘油三酯是血脂的一种,其含量反映了体内脂质代谢的状态,过高的甘油三酯含量常被视为脂质代谢紊乱[33]。低密度脂蛋白是一种重要的血脂,负责将胆固醇和脂肪从肝脏运送到体内各组织[34]。然而,饲喂含发酵菜籽粕的饲粮对仔猪血浆中低密度脂蛋白的含量没有显著影响[32],这可能与猪的不同生长阶段有关。胆红素来源于血红素代谢,是一种四吡咯化合物,具有多种功能,包括细胞信号传导、代谢调节和免疫调节。胆红素的这些多方面作用具有重要的临床和治疗意义[35]。与本试验结果不同,之前的研究表明,添加发酵油菜籽饲料和其他饲料添加剂会显著增加仔猪血浆总胆红素含量[31]。这些差异可能与试验设计、饲料成分以及动物生理状态等因素有关。
短链脂肪酸是由肠道细菌通过发酵不易消化的膳食纤维产生的代谢产物,能够促进结肠对水和电解质的吸收,维持肠道屏障的完整性,并缓解腹泻[36-37]。短链脂肪酸被认为是肠道微生物组和免疫系统之间交流的重要介质[38]。Zhan等[12]研究发现,使用葵花籽粕替代豆粕会显著提高育肥猪结肠内容物中丁酸和戊酸含量,但使用混合杂粕(菜籽粕、棉籽粕和葵花籽粕)替代豆粕则会显著降低育肥猪结肠内容物中乙酸、丙酸和异丁酸含量。还有研究结果表明,杂粕(菜籽粕、棉籽粕和葵花籽粕)替代豆粕对育肥猪结肠内容物短链脂肪酸含量无显著影响[25]。本研究结果显示,不同蛋白质源饲粮对育肥猪结肠内容物中短链脂肪酸含量无显著影响。
肠道菌群及其代谢产物对动物健康起着重要作用,而饲粮是影响肠道菌群组成的重要因素之一。以往的研究表明,厚壁菌门和拟杆菌门是猪肠道中的主要细菌门[39]。值得注意的是,添加20%油菜籽粕的饲粮显著降低了拟杆菌门的相对丰度,同时增加了真细菌门的相对丰度[21]。本研究结果显示,厚壁菌门是育肥猪结肠中最主要的菌门。此外,微生物α多样性分析表明,不同蛋白质来源饲粮对育肥猪微生物香农指数和辛普森指数均无显著影响。其他研究也发现,用菜籽粕100%替代豆粕的生长猪结肠中的香农指数、Chao1和全树系统发育多样性相似[40]。尽管从小肠到大肠的细菌负荷增加导致肠道各部位的菌群结构有所不同,但各饮食组在每个位置的多样性相似。特别是研究表明,用发酵豆粕代替普通豆粕喂养生长猪,可显著减少结肠中大肠埃希氏菌的数量,同时显著增加乳酸杆菌的数量[25]。此外,研究还发现,添加发酵豆粕代替豆粕可以显著增加仔猪粪便中的乳酸菌数量,同时减少大肠菌群和产气荚膜梭菌的总数[41]。这归因于菜籽粕的发酵效果。然而,目前关于使用棉籽粕和葵花籽粕对猪肠道菌群影响的研究较少,因此有必要进行更多的研究。总之,本试验结果显示,不同蛋白质来饲粮对育肥猪结肠菌群组成没有显著影响,这表明其不会对育肥猪的肠道环境产生负面影响。

4 结论

不同蛋白质来源(菜籽粕、棉籽粕和葵花籽粕)饲粮对育肥猪的生长性能、结肠内容物短链脂肪酸含量、血清炎症因子和免疫球蛋白含量及肠道菌群多样性未表现出显著影响。这些结果为进一步开发杂粕在育肥猪饲粮中的应用提供了支持,显示出作为优质蛋白质来源的潜力。
[1]
中国饲料工业协会. 生猪低蛋白低豆粕多元化日粮生产技术规范:T/CFIAS 8001—2022[S]. 北京: 中国饲料工业协会, 2022.

China Feed Industry Association. Specification of practice for the diversified diets with low protein and low soybean meal for pigs:T/CFIAS 8001—2022[S]. Beijing: China Feed Industry Association, 2022. (in Chinese)

[2]
宋佳纯, 芦春莲, 李尚, 等. 基于Meta分析评估豆粕替代品对猪生长性能的影响[J]. 动物营养学报, 2023, 35(9):6042-6054.

DOI

SONG J C, LU C L, LI S, et al. Effects of soybean meal substitutes on pig growth performance based on Meta-analysis[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):6042-6054. (in Chinese)

DOI

[3]
夏明亮, 程璐. 葵花籽粕的营养价值及其在养猪生产中的合理使用[J]. 饲料研究, 2019, 42(4):87-90.

XIA M L, CHENG L. Nutrition value and the proper application of sunflower seed meal in pig diet[J]. Feed Research, 2019, 42(4):87-90. (in Chinese)

[4]
LIU J D, XIAO X, PAN F Z, et al. Evaluation of energy digestibility and prediction of digestible and metabolisable energy in sunflower seed meal fed to growing pigs[J]. Italian Journal of Animal Science, 2015, 14(1):3533.

[5]
SHIM Y H, CHAE B J, LEE J H. Effects of phytase and carbohydrases supplementation to diet with a partial replacement of soybean meal with rapeseed meal and cottonseed meal on growth performance and nutrient digestibility of growing pigs[J]. Asian-Australasian Journal of Animal Sciences, 2003, 16(9):1339-1347.

[6]
顾方, 刘世龙, 李红胜, 等. 低蛋白质饲粮中添加发酵菜籽粕对育肥猪生长性能和肉品质的影响[J]. 动物营养学报, 2023, 35(3):1489-1500.

DOI

GU F, LIU S L, LI H S, et al. Effects of low protein diet supplemented with-fermented canola meal on growth performance and meat quality of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1489-1500. (in Chinese)

DOI

[7]
GRABEŽ V, EGELANDSDAL B, KJOS N P, et al. Replacing soybean meal with rapeseed meal and faba beans in a growing-finishing pig diet:effect on growth performance,meat quality and metabolite changes[J]. Meat Science, 2020,166:108134.

[8]
白晓鹭, 孙会, 曹克飞, 等. 不同蛋白源低蛋白日粮对肥育猪生长性能、氮平衡及小肠氨基酸消化规律的影响[J]. 中国畜牧杂志, 2017, 53(4):98-102, 126.

BAI X L, SUN H, CAO K F, et al. Effects of low protein diet with different sources on growing performance,nitrogen balance and amino acid digestion pattern in small intestine of finishing pigs[J]. Chinese Journal of Animal Science, 2017, 53(4):98-102, 126. (in Chinese)

[9]
KIM J W, LEE J, NYACHOTI C M. Net energy of high-protein sunflower meal fed to growing pigs and effect of dietary phosphorus on measured values of NE[J]. Journal of Animal Science, 2020, 98(1):skz387.

[10]
XIONG Y X, LIU S, XIAO H, et al. Dietary stevia residue extract supplementation improves the performance and antioxidative capacity of growing-finishing pigs[J]. Journal of the Science of Food and Agriculture, 2022, 102(11):4724-4735.

DOI PMID

[11]
HE Z T, ZHAN X A, CAO S T, et al. Effect of miscellaneous meal replacements for soybean meal on growth performance,serum biochemical parameters,and gut microbiota of 50-75 kg growing pigs[J]. Animals, 2023, 13(22):3499.

[12]
ZHAN X A, HOU L, HE Z T, et al. Effect of miscellaneous meals replacing soybean meal in feed on growth performance,serum biochemical parameters,and microbiota composition of 25-50 kg growing pigs[J]. Animals, 2024, 14(9):1354.

[13]
GATLIN D M, BARROWS F T, BROWN P, et al. Expanding the utilization of sustainable plant products in aquafeeds:a review[J]. Aquaculture Research, 2007, 38(6):551-579.

[14]
PENG X, HUANG H L, DONG X Y, et al. Evaluation of extruded or unextruded double-low rapeseed meal and multienzymes preparation in pigs nutrition during the finishing phase of production[J]. Italian Journal of Animal Science, 2012, 11(2):e34.

[15]
LI D, YI G F, QIAO S Y, et al. Use of Chinese sunflower meal as a nonconventional protein feedstuff for growing-finishing pigs[J]. Asian-Australasian Journal of Animal Sciences, 2000, 13(5):666-672.

[16]
SEVILLANO C A, NICOLAICIUC C V, MOLIST F, et al. Effect of feeding cereals-alternative ingredients diets or corn-soybean meal diets on performance and carcass characteristics of growing-finishing gilts and boars[J]. Journal of Animal Science, 2018, 96(11):4780-4788.

DOI PMID

[17]
CHOI H B, JEONG J H, KIM D H, et al. Influence of rapeseed meal on growth performance,blood profiles,nutrient digestibility and economic benefit of growing-finishing pigs[J]. Asian-Australasian Journal of Animal Sciences, 2015, 28(9):1345-1353.

[18]
MCDONNELL P, O’SHEA C, FIGAT S, et al. Influence of incrementally substituting dietary soya bean meal for rapeseed meal on nutrient digestibility, nitrogen excretion, growth performance and ammonia emissions from growing-finishing pigs[J]. Archives of Animal Nutrition, 2010, 64(5):412-424.

DOI PMID

[19]
SLOMINSKI B A, CAMPBELL L D. Non-starch polysaccharides of canola meal:quantification,digestibility in poultry and potential benefit of dietary enzyme supplementation[J]. Journal of the Science of Food and Agriculture, 1990, 53(2):175-184.

[20]
VELAYUDHAN D E, SCHUH K, WOYENGO T A, et al. Effect of expeller extracted canola meal on growth performance,organ weights, and blood parameters of growing pigs[J]. Journal of Animal Science, 2017, 95(1):302-307.

[21]
HONG J, NDOU S P, ADAMS S, et al. Canola meal in nursery pig diets:growth performance and gut health[J]. Journal of Animal Science, 2020, 98(11):skaa338.

[22]
RECHARLA N, KIM D, RAMANI S, et al. Dietary multi-enzyme complex improves in vitro nutrient digestibility and hind gut microbial fermentation of pigs[J]. PLoS One, 2019, 14(5):e0217459.

[23]
LANDERO J L, BELTRANENA E, CERVANTES M, et al. The effect of feeding expeller-pressed canola meal on growth performance and diet nutrient digestibility in weaned pigs[J]. Animal Feed Science and Technology, 2012, 171(2/3/4):240-245.

[24]
HEYER C M E, WANG L F, BELTRANENA E, et al. Nutrient digestibility of extruded canola meal in ileal-cannulated growing pigs and effects of its feeding on diet nutrient digestibility and growth performance in weaned pigs[J]. Journal of Animal Science, 2021, 99(5):skab135.

[25]
HE Z T, LIU S, WEN X L, et al. Effect of mixed meal replacement of soybean meal on growth performance,nutrient apparent digestibility,and gut microbiota of finishing pigs[J]. Frontiers in Veterinary Science, 2024,11:1321486.

[26]
杨元森, 邱彬航, 张爽, 等. 杂粕的营养成分、饲用限制因素及其提质增效技术研究进展[J]. 饲料工业, 2023, 44(5):25-32.

YANG Y S, QIU B H, ZHANG S, et al. Research progress on nutrition composition,feeding limiting factors and improving quality and efficiency of miscellaneous meal[J]. Feed Industry, 2023, 44(5):25-32. (in Chinese)

[27]
TORRES-PITARCH A, MOSET V, FERRER P, et al. The inclusion of rapeseed meal in fattening pig diets,as a partial replacer of soybean meal,alters nutrient digestion,faecal composition and biochemical methane potential from faeces[J]. Animal Feed Science and Technology, 2014,198:215-223.

[28]
PARRADO J, BAUTISTA J, MACHADO A. Production of soluble enzymic protein hydrolyzate from industrially defatted nondehulled sunflower meal[J]. Journal of Agricultural and Food Chemistry, 1991, 39(3):447-450.

[29]
JOHNSON R W. Inhibition of growth by pro-inflammatory cytokines:an integrated view[J]. Journal of Animal Science, 1997, 75(5):1244-1255.

[30]
LIU P, PIAO X S, THACKER P A, et al. Chito-oligosaccharide reduces diarrhea incidence and attenuates the immune response of weaned pigs challenged with Escherichia coli K88[J]. Journal of Animal Science, 2010, 88(12):3871-3879.

[31]
CZECH A, NOWAKOWICZ-DEBEK B, ŁUKASZEWICZ M, et al. Effect of fermented rapeseed meal in the mixture for growing pigs on the gastrointestinal tract,antioxidant status,and immune response[J]. Scientific Reports, 2022, 12(1):15764.

[32]
CZECH A, GRELA E R, NOWAKOWICZ-DEBEK B, et al. The effects of a fermented rapeseed meal or/and soybean meal additive on the blood lipid profile and immune parameters of piglets and on minerals in their blood and bone[J]. PLoS One, 2021, 16(6):e0253744.

[33]
LAUFS U, PARHOFER K G, GINSBERG H N, et al. Clinical review on triglycerides[J]. European Heart Journal, 2020, 41(1):99-109.

DOI PMID

[34]
LARREA-SEBAL A, BENITO-VICENTE A, FERNANDEZ-HIGUERO J A, et al. MLb-LDLr:a machine learning model for predicting the pathogenicity of LDLr missense variants[J]. JACC:Basic to Translational Science, 2021, 6(11):815-827.

[35]
VÍTEK L, TIRIBELLI C. Bilirubin:the yellow hormone?[J]. Journal of Hepatology, 2021, 75(6):1485-1490.

[36]
CHAMBERS E S, MORRISON D J, FROST G. Control of appetite and energy intake by SCFA:what are the potential underlying mechanisms?[J]. Proceedings of the Nutrition Society, 2015, 74(3):328-336.

[37]
KLES K A, CHANG E B. Short-chain fatty acids impact on intestinal adaptation,inflammation,carcinoma,and failure[J]. Gastroenterology, 2006, 130(2):S100-S105.

[38]
RATAJCZAK W, RYŁ A, MIZERSKI A, et al. Immunomodulatory potential of gut microbiome-derived short-chain fatty acids (SCFAs)[J]. Acta Biochimica Polonica, 2019, 66(1):1-12.

DOI PMID

[39]
CHEN L M, XU Y S, CHEN X Y, et al. The maturing development of gut microbiota in commercial piglets during the weaning transition[J]. Frontiers in Microbiology, 2017,8:1688.

[40]
UMU Ö C O, MYDLAND L T, ØVERLAND M, et al. Rapeseed-based diet modulates the imputed functions of gut microbiome in growing-finishing pigs[J]. Scientific Reports, 2020, 10(1):9372.

DOI PMID

[41]
WLAZŁO Ł, NOWAKOWICZ-DEBEK B, OSSOWSKI M, et al. Effect of fermented rapeseed meal in diets for piglets on blood biochemical parameters and the microbial composition of the feed and faeces[J]. Animals, 2022, 12(21):2972.

文章导航

/