研究论文

1~70日龄番鸭血浆游离氨基酸代谢谱动态变化

  • 张俊杰 , 1, 2 ,
  • 侯萌 2 ,
  • 杨彩梅 1 ,
  • 温洋 2 ,
  • 曾洪波 2 ,
  • 肖英平 2 ,
  • 吕文涛 , 2, * ,
  • 杨华 2
展开
  • 1 浙江农林大学动物科技学院·动物医学院,杭州 311300
  • 2 浙江省农业科学院农产品质量安全与营养研究所,省部共建农产品质量安全危害因子与风险防控国家重点实验室,杭州 310021
* 吕文涛,助理研究员,E-mail:

张俊杰(2000—),男,浙江衢州人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-08-26

  网络出版日期: 2025-04-15

基金资助

国家自然科学基金(32202704)

国家水禽现代农业产业技术体系专项资金资助项目(CARS-42-27)

Dynamic Changes of Plasma Free Amino Acid Metabolic Profiles in Muscovy Ducks from 1 to 70 Days of Age

  • ZHANG Junjie , 1, 2 ,
  • HOU Meng 2 ,
  • YANG Caimei 1 ,
  • WEN Yang 2 ,
  • ZENG Hongbo 2 ,
  • XIAO Yingping 2 ,
  • LYU Wentao , 2, * ,
  • YANG Hua 2
Expand
  • 1 College of Animal Science and Technologyo College of Veterinary Medicine, Zhejiang A&F University, Hangzhou 311300, China
  • 2 State Key Laboratory of Hazard Factors and Risk Prevention and Control of Agricultural Product Quality and Safety, Institute of Agro-Product Safety and Nutrition, Zhejiang Academy of Agricultural Sciences, Hangzhou 310021, China
* assistant professor, E-mail:

Received date: 2024-08-26

  Online published: 2025-04-15

摘要

本试验旨在研究番鸭生长发育过程中血浆游离氨基酸代谢谱的动态变化。试验选用同一批次生长状况良好的健康番鸭200羽,分别在番鸭1、3、7、14、28、42、70日龄时禁食后采集静脉血并测定血浆中游离氨基酸含量。结果显示: 番鸭血浆游离总氨基酸、必需氨基酸、非必需氨基酸含量随日龄增长均表现出一定的动态变化规律。其中,番鸭血浆游离必需氨基酸含量在7日龄时相较于1日龄显著提高(P<0.05),而在14、28日龄时则显著低于3、7日龄(P<0.05),42日龄时再次显著上升(P<0.05);番鸭血浆游离非必需氨基酸含量整体表现出较大的变化幅度,其中2个峰值出现在3和42日龄时,显著高于1、14和28日龄(P<0.05);番鸭血浆游离总氨基酸含量的总体变化趋势与游离必需氨基酸含量变化趋势较为接近,但变化幅度更小,1、14和28日龄显著低于3、7、42日龄(P<0.05)。通过对数据进行主成分分析发现,番鸭血浆游离氨基酸主成分随日龄增长表现出了较大的差异,其中1日龄时番鸭血浆游离氨基酸含量相较于其他日龄时有着明显的聚类差异。通过变量投影重要度(VIP)对番鸭血浆游离氨基酸及其衍生物进行分析,筛选出了苏氨酸、丙氨酸、牛磺酸、丝氨酸、脯氨酸、肌肽、精氨酸、缬氨酸、酪氨酸、亮氨酸、甘氨酸、苯丙氨酸、尿素等13种物质。这些物质的VIP值均大于1,表明这些氨基酸及氨基酸衍生物对番鸭血浆游离氨基酸组成和含量的差异有较大的贡献度。进一步进行偏最小二乘判别分析(PLS-DA)发现,苏氨酸、牛磺酸和尿素相较于其他物质对番鸭不同日龄样品差异的贡献率最大,是不同日龄番鸭血浆代谢谱的关键物质。本研究不仅揭示了番鸭血浆游离氨基酸含量随日龄变化的规律,而且识别出了关键氨基酸,可为优化番鸭的饲养管理提供科学依据。

本文引用格式

张俊杰 , 侯萌 , 杨彩梅 , 温洋 , 曾洪波 , 肖英平 , 吕文涛 , 杨华 . 1~70日龄番鸭血浆游离氨基酸代谢谱动态变化[J]. 动物营养学报, 2025 , 37(4) : 2392 -2404 . DOI: 10.12418/CJAN2025.203

Abstract

The aim of this experiment was to study the dynamic changes on the metabolic profiles of plasma free amino acids in Muscovy ducks during growth and development. Two hundred healthy Muscovy ducks with good growth status were selected from the same batch. Venous blood was collected after fasting at the age of 1, 3, 7, 14, 28, 42 and 70 days, respectively, and the contents of free amino acids in plasma were determined. The results showed that the contents of free total amino acids, essential amino acids and non-essential amino acid in plasma of Muscovy ducks exhibited certain dynamic changes with the increase of age. The plasma free essential amino acid content of Muscovy ducks increased significantly at 7 days of age compared with 1 day of age, while the free essential amino acid content at 14 and 28 days of age was significantly lower than that at 3 and 7 days of age (P<0.05), and it increased again at 42 days of age (P<0.05). The plasma free non-essential amino acid content of Muscovy ducks showed a wide range of variation, with the peaks of non-essential amino acid content at 3 and 42 days of age, which were significantly higher than those at 1, 14 and 28 days of age (P<0.05). The overall trend of plasma total free amino acid content in Muscovy ducks was similar to that of free essential amino acid content, but the magnitude of change was smaller, and the plasma total free amino acid content at 1, 14 and 28 days of age was significantly lower than that at 3, 7 and 42 days of age (P<0.05). The principal component analysis of the data revealed that the principal components of plasma free amino acids in Muscovy ducks showed large differences with the increased of age, with the plasma free amino acid contents of Muscovy ducks at 1 day of age showing significant clustering differences compared with other age stages. The plasma free amino acids and amino acid derivatives of Muscovy ducks were analyzed by the variable importance in the project (VIP), and 13 substances, including threonine, alanine, taurine, serine, proline, carnosine, arginine, valine, tyrosine, leucine, glycine, phenylalanine, and urea were screened out. The VIP values of these substances were all greater than 1, indicating that these amino acids and amino acid derivatives has a greater degree of contribution to the differences in the composition and content of free amino acids in plasma of Muscovy ducks. Further using the partial least squares discriminant analysis (PLS-DA) model, it was found that threonine, taurine and urea contributed the most to the differences in the samples of different days of age of the Muscovy ducks compared with other substances, and were the key substances in the metabolic profiles of plasma of Muscovy ducks at different days of age. The present study not only reveals the variation of plasma free amino acid contents with age in Muscovy ducks, but also identifies the key amino acids, which can provide a scientific basis for optimizing the feeding management of Muscovy ducks.

番鸭作为我国目前饲养量逐渐增加的优良肉用家禽品种,其具有生长快、耐粗饲、抗病力强强等特点。据统计,我国肉鸭2023年的年出栏量达到了42.18亿只,其中番鸭、半番鸭占比为5.36%[1]。由于番鸭肉质风味独特,胴体脂肪含量低且营养价值较高,近年来深受消费者的青睐[2]。在我国消费者消费结构逐渐向享受型、发展型消费转变的大环境下,番鸭无疑有着广阔的市场饲养前景。
血浆游离氨基酸作为血液的主要成分之一,被认为是动物体内氨基酸储备的主要形式,对于维持机体氨基酸平衡发挥着关键作用。其中苏氨酸、亮氨酸等氨基酸作为蛋白质的基本组成单元,对于禽类的生长、产蛋、免疫系统功能以及肌肉发展等方面都具有显著影响。而牛磺酸等非蛋白质氨基酸,虽然不参与蛋白质合成,但仍具有促进神经系统生长发育和细胞增殖、分化等生理作用。因此,对血浆游离氨基酸进行研究对于理解动物体内蛋白质代谢机制、必需氨基酸与条件必需氨基酸需求的变化以及饲粮中蛋白质成分的利用效率具有重要意义[3]。目前血浆游离氨基酸领域的研究主要集中于饲料添加剂以及生理、病理因素导致其含量变化等方面,例如,王彬等[4]研究发现饲粮中亮氨酸添加量能够显著影响血浆中部分游离氨基酸的含量,而Wu等[5]研究结果表明屠宰前禁食时间会导致血液各项参数发生变化。然而,对于水禽,尤其是与日龄相关的血浆游离氨基酸含量的动态变化,相关研究相对较少。鉴于此,本试验旨在对番鸭血浆游离氨基酸代谢谱进行系统研究,挖掘其发育性动态变化规律并筛选出番鸭发育过程中重要的差异氨基酸及氨基酸衍生物,为优化番鸭的饲养管理提供科学依据,以促进水禽产业高效和可持续发展。

1 材料与方法

1.1 伦理声明

本研究的动物试验由浙江省农业科学院实验动物福利伦理委员会审查批准,批准编号为2022ZAASLA16。

1.2 试验动物及饲养管理

选取健康状况良好、体重50 g左右的1日龄克里莫番鸭公、母雏鸭各100羽进行试验,由浙江省兰溪市禾旺禽业专业合作社提供。番鸭的饲养参照地方养殖技术规程(DB36/T 1533—2021)[6]采用网床饲养,自然采光结合人工光照。试验选择在春季进行,此时环境温度较低,育雏室在保证通风的同时利用红外线灯进行加热保温,使室温维持在27~29 ℃;育雏室室温从第2周起每周下降2~3 ℃,直至第4~5周育雏室室温降到18 ℃后实现完全脱温。番鸭采用常规饲养管理及免疫接种,在1~14日龄和15~70日龄分别饲喂相应饲养阶段的基础饲粮,期间自由采食及饮水(水质符合NY 5027—2008[7]规定)。

1.3 基础饲粮

试验所用番鸭不同饲养阶段基础饲粮配方参照Lyu等[8]的研究,其组成及营养水平见表1。其中,饲粮代谢能水平参考《肉鸭饲养标准》(NY/T 2122—2012)[9]中各原料成分的代谢能水平计算得出;饲粮中粗蛋白质、钙、总磷和氨基酸含量分别参照GB/T 6432—2018、GB/T 6436—2018、GB/T 6437—2018、GB/T 18246—2019中方法进行检测。
表1 番鸭基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets for Muscovy ducks (air-dry basis) %

项目
Items
含量Content
1~14日龄
1 to 14
days of age
15~70日龄
15 to 70
days of age
原料Ingredients
玉米Corn 58.90 56.50
豆粕Soybean meal 28.00 20.00
小麦麸Wheat bran 7.26 18.00
豆油Soybean oil 2.04 1.85
石粉Limestone 1.13 1.16
磷酸氢钙CaHPO4 0.67 0.64
赖氨酸Lys 0.28 0.31
蛋氨酸Met 0.26 0.24
食盐NaCl 0.40 0.24
氯化胆碱Choline chloride 0.06 0.06
预混料Premix1) 1.00 1.00
合计Total 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 12.12 11.58
粗蛋白质CP 20.50 16.50
钙Ca 0.86 0.95
总磷TP 0.53 0.52
赖氨酸Lys 0.89 0.92
蛋氨酸Met 0.51 0.49
异亮氨酸Ile 0.73 0.63
亮氨酸Leu 1.56 1.37
苯丙氨酸Phe 0.90 0.77
苏氨酸Thr 0.71 0.60
缬氨酸Val 0.86 0.74

1)预混料为每千克饲粮提供The premix provided the following per kg of diets:VA 10 000 IU,VD3 2 100 IU,VE 15 IU,VK3 1 mg,VB1 2 mg,VB2 4 mg,VB6 3 mg,VB12 5 μg,烟酸 nicotinic acid 40 mg,泛酸 pantothenic acid 10 mg,叶酸 folic acid 1 mg,生物素 biotin 0.3 mg,Fe 120 mg,Cu 5 mg,Mn 60 mg,Zn 25 mg,I 0.3 mg,Se 0.2 mg。

2)代谢能为计算值,其他均为实测值。ME was a calculated value, while the others were measured values.

1.4 样品采集及指标测定

1.4.1 体重测定

于番鸭1、3、7、14、28、42、70日龄前1天24:00撤去喂食器,仅提供饮水,统一确保采样时已禁食6~8 h。每个日龄随机选取8羽番鸭(公母各4羽)进行称重,并作为1个样本组记录。

1.4.2 血浆样本制备与保存

对上述称过体重的8羽番鸭进行翅下静脉采血,每羽番鸭作为1个重复,每个日龄包含8个重复。采用乙二胺四乙酸二钾(EDTA-K2)抗凝管采集血液,其中1、3日龄雏鸭采用颈静脉采血法,7、14、28、42和70日龄雏鸭采用翅下静脉采血法。每羽番鸭采集1~3 mL血液至采血管中并混匀,845×g离心力下低温(4 ℃)离心10 min,收集血浆样本,存放于-20 ℃下备用[10]

1.4.3 血浆游离氨基酸和氨基酸衍生物含量测定

将血浆样本解冻后,取200 μL加入0.5 mL 7.5%的三氯乙酸漩涡混匀,13 523×g离心力下低温(4 ℃)离心15 min,取上清液用于氨基酸组成分析(离子交换氨基酸分析仪,Hitachi L-8900 Auto-Analyzer,日本)。每个样本进样量为20 μL,分析周期为150 min。柱平衡时间为35 min,检测波长570 nm(脯氨酸为440 nm)[11]。以氨基酸标准品[AAS18,默克化工技术(上海)有限公司]对血浆中各游离氨基酸进行定量。血浆游离氨基酸衍生物的检测方法与游离氨基酸检测方法相同,仅具体试验时采用的部分试剂不同。

1.5 数据统计分析

试验数据采用SPSS 26.0软件进行独立样本t检验以及单因素方差分析(one-way ANOVA)和LSD法多重比较,并使用Origin 2022软件对分析结果进行可视化,以P<0.05为差异显著。结果采用平均值±标准误(mean±SE)表示。使用SIMCA-P 14.1软件对试验数据进行主成分分析(PCA)、偏最小二乘判别分析(PLS-DA)以及正交偏最小方差判别分析(OPLS-DA)。

2 结果与分析

2.1 不同日龄番鸭的体重变化

不同日龄番鸭的体重变化见表2。从总体平均值来看,番鸭雏鸭在破壳后1~3日龄内体重变化较小,共增重19.20%;3~14日龄阶段雏鸭的体重增长速度达到各日龄阶段的最大值,平均日增长率为15.30%;14~28日龄阶段雏鸭的体重增长速度有所下降,平均日增长率为11.00%;28~42日龄阶段处于番鸭发育期,期间雏鸭体重快速增长,平均每日增重为89.33 g;42~70日龄阶段番鸭体重相对生长速度为各日龄阶段的最小值,但平均每日增重仍达到51.76 g。从性别来看,1~28日龄公鸭体重与母鸭体重增长幅度相近;28日龄后母鸭体重增长放缓,而公鸭体重迅速增长,至42、70日龄时公鸭体重已极显著大于母鸭(P<0.01)。
表2 不同日龄番鸭的体重变化

Table 2 Changes in body weight of Muscovy ducks at different ages g

项目
Items
日龄Days of age
1 3 7 14 28 42 70
公鸭
Male ducks
47.06
±2.23
59.09
±2.26
120.83
±4.60
282.51
±16.26
1 342.50
±56.59
2 750.00
±100.71
5 005.00
±77.78
母鸭
Female ducks
51.50
±1.27
58.38
±1.73
118.60
±3.89
287.30
±6.37
1 208.75
±82.22
2 302.50
±227.07
2 946.25
±62.13
总体平均值
Population mean
49.28
±1.45
58.74
±1.32
119.72
±2.82
284.90
±8.14
1 275.63
±52.67
2 526.25
±142.74
3 975.63
±391.79
PP-value 0.237 0.773 0.977 0.366 0.531 <0.001 <0.001

2.2 番鸭血浆中游离氨基酸及氨基酸衍生物含量随日龄变化规律

番鸭血浆中游离氨基酸含量的检测结果(表3)显示,番鸭血浆中游离总氨基酸含量随日龄增长存在一定的波动;亮氨酸、脯氨酸、组氨酸含量变化相似,14、28日龄较低,显著低于除1日龄外的其他日龄(P<0.05);赖氨酸、胱氨酸和甘氨酸含量随日龄增长存在部分波动性变化,其中赖氨酸含量在不同日龄之间无显著差异(P>0.05),胱氨酸含量在42日龄时显著高于除70日龄外的其他日龄(P<0.05),甘氨酸含量在70日龄时显著高于7、14和28日龄(P<0.05);精氨酸含量在14、28、42日龄时相较于其他日龄有显著下降(P<0.05),缬氨酸与异亮氨酸含量在14、28、42日龄时显著低于除3日龄外的其他日龄(P<0.05);丝氨酸和天冬氨酸含量在3日龄时显著高于其他日龄(P<0.05),丙氨酸含量在42日龄时显著高于其他日龄(P<0.05),蛋氨酸、苯丙氨酸含量在3和7日龄时显著高于其他日龄(P<0.05),苏氨酸含量则在42日龄时显著高于其他日龄(P<0.05);酪氨酸含量在1日龄时最低,为(25.67±2.42) μg/mL,此后显著提高(P<0.05);谷氨酸含量在42日龄时最高,显著高于其他日龄(P<0.05)。
表3 不同日龄番鸭血浆中游离氨基酸含量

Table 3 Contents of free amino acids in plasma of Muscovy ducks at different ages μg/mL

项目
Items
日龄Days of age
1 3 7 14 28 42 70
必需氨基酸Essential amino acids
蛋氨酸Met 13.08
±1.69bc
26.21
±2.38a
25.01
±2.62a
9.36
±0.87c
12.60
±0.92bc
17.08
±2.35b
15.66
±2.00b
亮氨酸Leu 34.90
±1.75bc
45.32
±5.24ab
57.10
±5.18a
23.31
±2.02c
31.86
±1.87c
44.63
±3.89ab
53.28
±6.90a
苯丙氨酸Phe 26.87
±1.51b
55.17
±11.54a
51.21
±5.69a
18.40
±0.77b
18.34
±0.55b
23.50
±2.11b
25.30
±2.92b
苏氨酸Thr 39.85
±4.49c
55.87
±5.40bc
82.27
±6.49b
58.31
±4.20bc
55.69
±5.53bc
136.48
±21.56a
49.99
±5.61c
异亮氨酸Ile 23.56
±2.58ab
19.32
±2.49bc
27.18
±2.57a
15.76
±1.11c
14.71
±1.29c
13.99
±1.84c
23.64
±3.40ab
缬氨酸Val 68.42
±1.67a
41.92
±4.40bc
52.49
±4.22b
28.18
±3.65d
29.32
±1.16d
35.39
±3.44cd
53.67
±6.75b
赖氨酸Lys 64.56
±10.24
48.95
±4.73
57.13
±6.84
47.33
±3.17
48.64
±3.03
57.23
±6.71
64.56
±7.39
非必需氨基酸Non-essential amino acids
精氨酸Arg 73.85
±7.25bc
83.87
±4.97ab
91.35
±6.87a
46.08
±9.60d
36.60
±2.57d
37.14
±5.40d
63.48
±5.12c
组氨酸His 10.04
±0.86de
19.22
±2.53ab
20.97
±2.04a
7.56
±0.46e
9.04
±0.48de
16.01
±1.72bc
12.89
±1.51cd
甘氨酸Gly 54.44
±0.65abc
50.42
±3.43abc
44.16
±4.05c
43.63
±2.35c
48.45
±1.43bc
58.84
±6.21ab
60.36
±4.98a
酪氨酸Tyr 25.67
±2.42c
40.05
±2.27b
46.93
±3.19a
44.87
±2.82ab
43.48
±3.15ab
42.02
±4.07ab
35.90
±2.89b
胱氨酸Cys 15.19
±2.50b
15.22
±1.72b
17.32
±1.37b
17.83
±0.61b
17.03
±1.13b
23.78
±2.22a
19.18
±1.61ab
天冬氨酸Asp 13.91
±0.48c
45.19
±6.26a
31.29
±4.53b
15.13
±1.05c
13.41
±1.27c
20.42
±3.96c
19.63
±1.88c
脯氨酸Pro 38.46
±1.60bc
62.80
±7.83a
59.61
±16.13a
16.19
±0.73d
25.06
±2.11cd
61.52
±7.88a
48.07
±5.34ab
丝氨酸Ser 55.06
±4.50c
94.10
±5.09b
66.07
±5.32c
75.06
±3.69bc
87.31
±7.86b
119.09
±11.25a
67.06
±4.72c
谷氨酸Glu 43.51
±1.78c
63.33
±5.92b
57.19
±5.76bc
46.69
±2.92c
38.86
±1.16c
87.36
±25.35a
53.08
±9.21c
丙氨酸Ala 83.33
±4.05b
149.98
±10.00a
84.79
±5.01b
49.66
±1.57c
52.41
±2.34c
96.89
±12.71b
58.55
±4.82c
总氨基酸Total AA 684.69
±41.94c
916.95
±63.45a
872.06
±50.61ab
563.34
±16.63c
582.80
±17.04c
891.38
±99.12b
724.31
±61.39ab

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, data with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

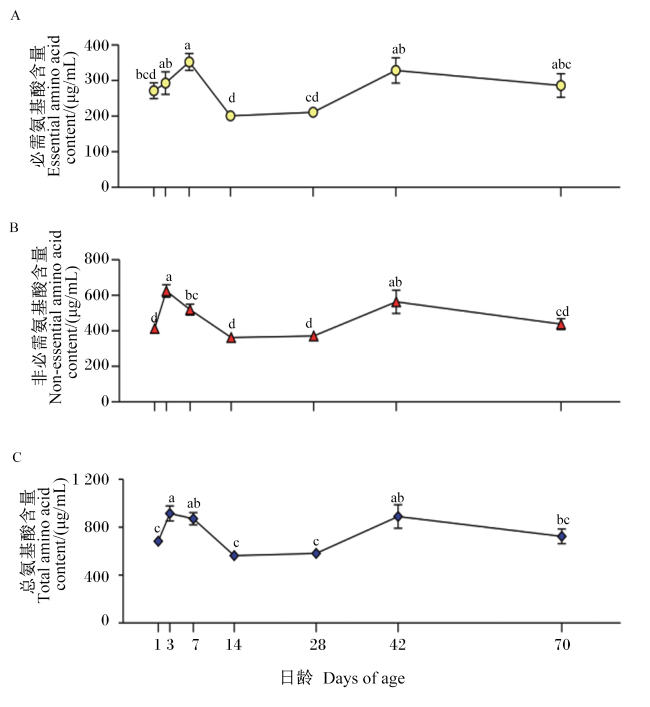
番鸭的必需氨基酸包括蛋氨酸、亮氨酸、苯丙氨酸、苏氨酸、异亮氨酸、缬氨酸、赖氨酸、色氨酸,共8种;非必需氨基酸包括精氨酸、组氨酸、甘氨酸、酪氨酸、胱氨酸、丙氨酸、天冬氨酸、丝氨酸、脯氨酸、谷氨酸,共10种。图1-A显示,番鸭血浆游离必需氨基酸含量在7日龄时达到最大值(260.48±23.94) μg/mL,显著高于1日龄(P<0.05);相较之下,番鸭血浆游离必需氨基酸含量在14、28日龄时显著低于3、7、42日龄(P<0.05)。图1-B显示,3、42日龄时番鸭血浆游离非必需氨基酸含量处于峰值,分别达到了(624.18±34.81) μg/mL和(563.07±65.60) μg/mL,相较于前一阶段分别提高了50.96%、51.51%。通过对比图1-C图1-A图1-B可以发现,番鸭血浆游离总氨基酸含量的总体变化趋势与游离非必需氨基酸的变化趋势较为一致,其中3日龄时血浆游离总氨基酸含量最高,且在1、14和28日龄时显著低于3、7、42日龄(P<0.05);此外,与血浆游离非必需氨基酸含量的变化趋势相比,血浆游离总氨基酸含量的波动幅度较小。
图1 不同日龄番鸭血浆游离必需氨基酸(A)、非必需氨基酸(B)和总氨基酸(C)含量变化

数据点标注不同小写字母表示差异显著(P<0.05),相同小写字母表示差异不显著(P>0.05)。

Fig.1 Changes of plasma free essential amino acid (A), non-essential amino acid (B) and total amino acid (C) contents of Muscovy ducks at different ages

Data points with different small letters mean significant difference (P<0.05), while with the same small letters mean no significant difference (P>0.05).

通过对比发现,血浆游离氨基酸衍生物含量的变化与其对应的游离氨基酸含量变化之间存在相似性(表3表4)。例如,精氨酸与其生物合成前体瓜氨酸和鸟氨酸的含量变化趋势一致;同样,组氨酸及其衍生物1-甲基组氨酸、赖氨酸及其衍生物羟赖氨酸的含量变化也表现出类似的模式。此外,也有部分物质的变化规律有所不同:血浆3-甲基组氨酸、尿素、ɑ-氨基正丁酸在1日龄时含量显著高于其他日龄(P<0.05);肌肽在血浆中的含量随日龄的增长呈逐渐上升的趋势,由1日龄时的0.00 μg/mL显著上升至70日龄的16.59 μg/mL(P<0.05);血浆肌氨酸含量在42日龄时为7.15 μg/mL,显著高于除28日龄外的其他日龄(P<0.05);血浆α-氨基己二酸含量在14、28、70日龄时处于较低水平,显著低于1日龄(P<0.05)。
表4 不同日龄番鸭血浆中游离氨基酸衍生物含量

Table 4 Contents of free amino acid derivatives in plasma of Muscovy ducks at different ages μg/mL

项目
Items
日龄Days of age
1 3 7 14 28 42 70
神经内分泌新陈代谢衍生物Neuroendocrine metabolism derivatives
牛磺酸Tau 193.25
±4.21a
66.16
±6.82de
40.76
±9.34e
128.66
±15.98b
131.89
±23.39b
117.00
±14.97bc
81.49
±5.61cd
γ-氨基正丁酸γ-ABA 0.10
±0.03b
0.87
±0.11a
0.96
±0.23a
0.00
±0.00b
0.32
±0.10b
0.28
±0.07b
0.34
±0.06b
氨能量新陈代谢衍生物Ammonia energy metabolism derivatives
尿素Urea 256.52
±14.89a
12.53
±4.92cd
37.27
±4.34b
29.15
±7.62bc
3.87
±1.69d
6.54
±2.58d
12.87
±3.29cd
α-氨基己二酸α-AAA 5.00
±1.58a
3.63
±0.97ab
3.73
±1.26ab
1.69
±0.51b
0.94
±0.77b
2.07
±1.05ab
0.95
±0.41b
瓜氨酸Cit 8.98
±0.78ab
9.24
±0.85a
6.97
±1.23b
3.79
±0.47c
1.95
±0.16c
3.83
±3.83c
2.35
±0.31c
鸟氨酸Orn 5.65
±0.48c
9.07
±1.32ab
11.31
±4.28a
1.91
±0.19d
2.51
±0.36d
2.07
±0.33d
7.43
±1.82bc
硫新陈代谢衍生物Sulphur metabolism derivatives
胱硫醚Cysthi 4.74
±0.42a
3.52
±0.61bc
4.61
±0.57ab
2.94
±0.30c
3.42
±0.34bc
3.63
±0.33abc
3.56
±0.32bc
其他代谢产物Other metabolites
1-甲基组氨酸1Mehis 1.64
±0.27c
3.60
±0.51b
4.87
±0.61a
1.88
±0.28c
1.60
±0.19c
2.11
±0.17c
2.42
±0.25c
3-甲基组氨酸3Mehis 9.67
±0.33a
1.35
±0.28d
1.61
±0.67d
2.85
±0.15bc
2.00
±0.19cd
2.30
±0.14bcd
3.22
±0.23b
鹅肌肽Ans 0.00
±0.00
0.29
±0.29
0.00
±0.00
0.00
±0.00
0.00
±0.00
0.00
±0.00
0.65
±0.65
肌肽Car 0.00
±0.00d
0.87
±0.87cd
2.84
±0.68c
3.25
±0.32c
8.12
±0.33b
14.44
±1.15a
16.59
±1.48a
羟脯氨酸Hypro 0.13
±0.05b
4.03
±2.48b
9.67
±3.54b
0.27
±0.07b
0.28
±0.03b
0.28
±0.04a
0.37
±0.07b
β-丙氨酸β-Ala 0.36
±0.03b
1.03
±0.41ab
1.27
±0.39a
1.03
±0.12ab
0.95
±0.10ab
1.48
±0.09a
1.38
±0.11a
β-氨基异丁酸β-AiBA 0.33
±0.08b
1.12
±0.49a
0.80
±0.21ab
0.57
±0.07ab
0.75
±0.07ab
0.56
±0.05ab
0.76
±0.13ab
乙醇胺EOHNH2 4.98
±0.30cd
3.96
±0.40d
8.71
±0.46a
8.67
±0.67a
6.46
±0.41b
6.10
±0.31bc
6.82
±0.49b
羟赖氨酸Hylys 16.45
±1.78b
17.41
±1.77b
15.71
±1.02a
17.98
±1.77b
17.39
±1.41b
29.89
±2.46b
16.26
±2.19b
磷酸丝氨酸P-Ser 2.96
±1.27a
0.00
±0.00b
1.01
±1.01ab
1.01
±1.01ab
0.00
±0.00b
0.40
±0.46b
0.00
±0.00b
肌氨酸Sar 1.22
±0.21c
2.77
±0.71bc
3.07
±1.32bc
1.52
±0.48c
5.44
±1.15ab
7.15
±0.82a
2.87
±1.21bc
α-氨基正丁酸α-ABA 5.87
±0.67a
2.23
±0.19bc
1.60
±0.29bc
2.57
±0.31bc
2.84
±0.48b
3.14
±0.20b
2.04
±0.28bc
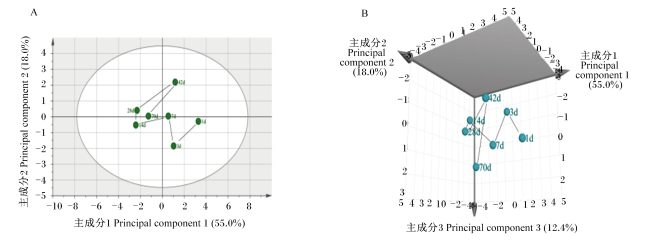
本试验还采用血浆中36种游离氨基酸及其衍生物的平均含量数据,通过PCA模型描绘了番鸭血浆游离氨基酸代谢谱的发育性变化趋势(图2)。图2-A图2-B均在一定程度上直观地体现出了血浆游离氨基酸的波动趋势。1~7日龄阶段内轨迹路径较长且与其他日龄样品在X轴上的落点有所偏离,主成分变化较大;14与28日龄的空间位点相接近,此间变化幅度较小,是血浆游离氨基酸的稳定阶段;28~70日龄阶段内的变化幅度最大,其中42日龄时的样本落点与28和70日龄距离较远,而70日龄时代谢谱的落点位置与空间位点靠拢28与14日龄。
图2 不同日龄番鸭血浆中游离氨基酸代谢模式PCA 2D和3D轨迹图

1d:1日龄 1 day of age;3d:3日龄 3 days of age;7d:7日龄 7 days of age;14d:14日龄 14 days of age;28d:28日龄 28 days of age;42d:42日龄 42 days of age;70d:70日龄 70 days of age。

Fig.2 PCA 2D and 3D trajectory diagrams of free amino acid metabolic pattern in plasma of Muscovy ducks at different ages

2.3 不同日龄番鸭血浆中关键游离氨基酸及其衍生物的挖掘

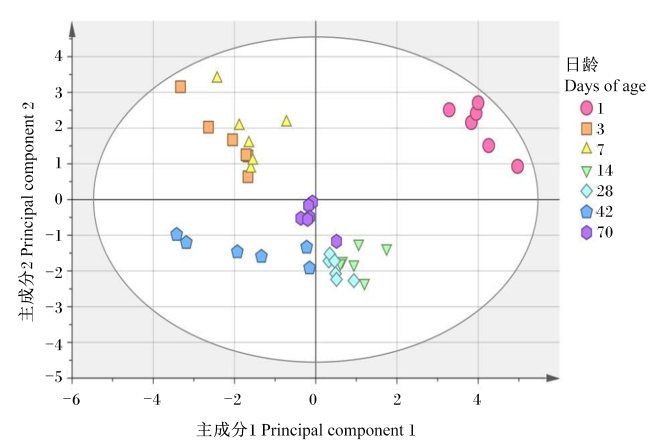
为了探究不同日龄番鸭血浆中游离氨基酸及其衍生物的代谢差异,本研究采用了主成分分析(PCA)方法对试验数据进行了综合分析。如图3所示,1日龄血浆样本与其他日龄血浆样本存在明显的分离;3与7日龄的血浆样本相互交错主成分相似,且二者均存在着较大的离散性;14和28日龄的血浆样本聚合,落点相近;42日龄血浆样本落点表现出了较大的离散性,此时血浆主成分组成与1日龄的差异最大;42日龄后血浆样本主成分趋于稳定,70日龄时样本落点已较为集中。PCA分析结果表明,番鸭血浆中游离的主要氨基酸随日龄增长存在较大的差异,其中1日龄时番鸭血浆游离氨基酸的主成分相较于其他日龄阶段有着明显的聚类差异。
图3 不同日龄番鸭血浆游离氨基酸代谢谱PCA分析

Fig.3 PCA of free amino acid metabolic profiles in plasma of Muscovy ducks at different ages

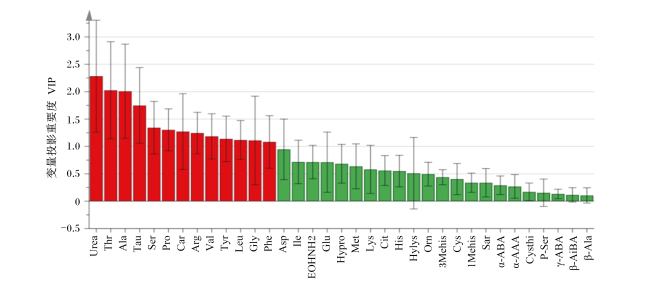
为了深入探究不同日龄番鸭血浆中游离氨基酸的代谢差异,本研究应用PLS-DA方法对样本中的潜在关键代谢物进行识别。PLS-DA是一种基于预测变量和响应变量之间协方差的潜在变量回归方法,而作为辅助PLS-DA模型筛选标志代谢物的一种重要参数——变量投影重要度(VIP),其可用于量化各代谢物的表达模式对各组样本分类判别的贡献度及解释的可变性。通常,VIP值大于1即可被认为是样品与变量之间存在有较好的相关度,且VIP值越高说明该物质在样品中的差异贡献度越大。由图4可知,VIP值>1的氨基酸及其衍生物为不同日龄番鸭血浆的差异特征物质,其中包括尿素、苏氨酸、丙氨酸、牛磺酸、丝氨酸、脯氨酸、肌肽、精氨酸、缬氨酸、酪氨酸、亮氨酸、甘氨酸、苯丙氨酸,共计13种。在这13种物质中,尿素、苏氨酸、丙氨酸及牛磺酸的VIP值分别为2.28、2.03、2.01、1.75,表明这些物质在样品中是贡献率较大的重要氨基酸及氨基酸衍生物。
图4 不同日龄番鸭血浆游离氨基酸和氨基酸衍生物的变量投影重要性

Urea:尿素 urea;Thr:苏氨酸 threonine;Ala:丙氨酸 alanine;Tau:牛磺酸 taurine;Ser:丝氨酸 serine;Pro:脯氨酸 proline;Car:肌肽 carnosine;Arg:精氨酸 arginine;Val:缬氨酸 valine;Tyr:酪氨酸 tyrosine;Leu:亮氨酸 leucine;Gly:甘氨酸 glycine;Phe:苯丙氨酸 phenylalanine;Asp:天冬氨酸 aspartic acid;Ile:异亮氨酸 isoleucine;EOHNH2:乙醇胺 ethanolamine;Glu:谷氨酸 glutamic acid;Hypro:羟脯氨酸 hydroxyproline;Met:蛋氨酸 methionine;Lys:赖氨酸 lysine;Cit:瓜氨酸 citrulline;His:组氨酸 histidine;Hylys:羟赖氨酸 hydroxylysine;Orn:鸟氨酸 ornithine;3Mehis:3-甲基组氨酸 3-methylhistidine;Cys:胱氨酸 cystine;1Mehis:1-甲基组氨酸 1-methylhistidine;Sar:肌氨酸 sarcosine;α-ABA:α-氨基正丁酸 α-amino-n-butyric acid;α-AAA:α-氨基己二酸 α-aminoadipic acid;Cysthi:胱硫醚 cystathionine;P-Ser:磷酸丝氨酸 phosphoserine;γ-ABA:γ-氨基正丁酸 γ-amino-n-butyric acid;β-AiBA:β-氨基异丁酸 β-aminoisobutyric acid;β-Ala:β-丙氨酸 β-alanine。图5同 the same as Fig.5

Fig.4 VIP of free amino acids amino acid derivatives in plasma of Muscovy ducks at different ages

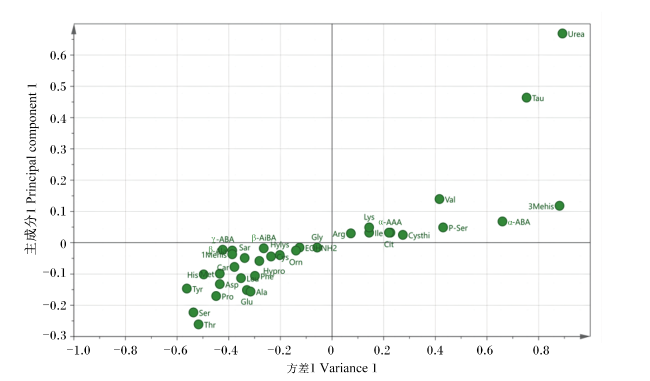
为了从多维度评估观察不同氨基酸对番鸭血浆样品的贡献率及它们之间的相关程度,本研究还引入了另一种判别分析统计方法,即OPLS-DA。OPLS-DA通过结合正交信号矫正(OSC)和PLS-DA的优势,对与响应变量正交的相关预测变量变化进行建模。该方法利用物质间的差异相关性对样本进行有效筛选,以实现样本类别的准确预测。在判别分析中,变量在散点图上的位置与其对样本分组的贡献度密切相关。具体而言,变量点距离原点的远近直接反映了其在区分样本组中的相对重要性。如图5所示,尿素作为一种氨基酸衍生物,其距离坐标原点最远,说明尿素相较于其他氨基酸及氨基酸衍生物对番鸭不同日龄样品判别的贡献率最大;牛磺酸、苏氨酸在图中同样位于距离原点较远处,对番鸭不同日龄样品判别也有着较大的贡献率,能被2种主成分充分解释,与图4中VIP值排序结果基本相同。
图5 不同日龄番鸭血浆游离氨基酸正交偏最小方差得分图

Fig.5 Plot of orthogonal partial minimum variance scores of free amino acids in plasma of Muscovy ducks at different ages

3 讨论

游离氨基酸作为动物内环境稳态的关键因素,对动物生长、免疫反应和生殖能力等生理功能具有显著影响[12]。血浆中的游离氨基酸代谢谱可反映动物体内组织和器官的代谢状态,因此,其变化已被广泛用作生理和病理条件下的生物标志物,以此评估预后和诊断[13]。尽管如此,目前国内外对水禽血浆游离氨基酸的系统研究相对有限。鉴于此,本研究旨在通过采集不同发育阶段番鸭的血液样本,分析其血浆游离氨基酸的动态变化,并揭示其在水禽生长发育中的作用和调控机制。
通过PCA发现,同日龄公、母番鸭血浆游离氨基酸及其衍生物含量没有聚类的趋势,说明同日龄不同性别番鸭血浆游离氨基酸及其衍生物组成无明显差异,因此血浆游离氨基酸及其衍生物的分析未区分公母。
本试验结果表明,番鸭血浆游离氨基酸含量随日龄增长表现出了较大程度上的波动,呈现出下降—上升—下降的波动趋势,其中3和42日龄为波动的高峰位点。1~3日龄的雏鸭正处于适应环境变化及器官发育的关键时期,在此阶段内雏鸭的血浆游离氨基酸含量显著提高,其变化原因可能受到诸多因素的影响,其中最主要的影响因素可能是开食带来的营养物质摄入以及孵化期间禽蛋内营养物质的消耗和代谢产物的积累。胚胎发生过程中,随着组织器官的形成与发育,胚胎内蛋白质含量逐渐增加并于10胚龄后维持在较高水平[14]。由于游离氨基酸是机体发育所需蛋白质的重要前体物质,所以其含量也会随孵化过程不断发生变化。1日龄雏鸭开食后即可在饲粮中获取机体所需要的必需氨基酸和非必需氨基酸。而此时幼雏体内卵黄囊尚未被完全吸收,仍能提供部分营养物质满足最初3~4 d的维持需要[15]。因此,雏鸭开食后对饲粮中氨基酸的消化吸收以及体内残余卵黄的营养供给很可能导致了1~3日龄番鸭血浆游离氨基酸含量的上升。3日龄后卵黄吸收基本完全,内源性营养逐渐向外源性营养过度[16],氨基酸供给来源减少并依赖于饲粮提供,这可能是3日龄后番鸭血浆游离氨基酸含量降低的原因。42日龄是番鸭血浆游离氨基酸含量变化的又一峰值点,此时正处于番鸭的生长期。熊小兰等[17]通过对番鸭的生长曲线进行拟合与分析发现,4~6周龄期间番鸭的生长速度明显增加,并出现最大周增重,而在6周龄后番鸭的生长速度则有所减慢。在此过程中,番鸭生长发育对蛋白质等物质的大量需求一定程度上促进了骨骼肌及肝脏中游离氨基酸的调用,进而导致血浆中游离氨基酸含量的提高。同时,番鸭育雏期(1~3周龄)和生长期(4~7周龄)的氨基酸营养需要量也有所不同,这就在一定程度上导致了番鸭对饲粮营养的吸收变化[18]。饲粮中过量提供的氨基酸在番鸭消化吸收后也经过脱氨或转氨等作用被用于体内所需氨基酸的合成或供能,维持了新生长阶段番鸭体内的氨基酸稳态。因此,番鸭在28日龄后的快速生长发育以及42日龄后发育增速放缓可能是形成番鸭42日龄血浆游离氨基酸含量峰值点的重要原因。
与其他随番鸭日龄增长而含量波动的氨基酸不同,肌肽含量随日龄的增长呈逐渐上升的趋势(表4)。肌肽是广泛分布于脊椎动物体内的天然二肽,由必需氨基酸L-组氨酸和天然存在的非必需氨基酸β-丙氨酸在肌肽合酶的催化下合成,其中β-丙氨酸通常被认为是是肌肽合成的限制性氨基酸[19]。初晖等[20]研究表明,肌肽可以显著提高禽类血清免疫球蛋白A和免疫球蛋白G含量。同时,肌肽还具有缓解应激以及抗氧化等功能,可以有效缓解饲养阶段改变以及卵巢和输卵管逐渐发育带来的生理变化引起的应激[21]。环境变化带来的免疫压力、生长发育过程带来的氧化应激,这些因素都可能在一定程度上导致了番鸭体内合成并游离在血浆中的肌肽的含量随着日龄增长逐渐增加。除了含量持续增长的肌肽外,表3中还存在一种变化显著的必需氨基酸-蛋氨酸,其含量在1~3日龄显著提高,7日龄后显著降低。作为家禽饲粮中的第一限制性氨基酸,蛋氨酸在雏鸭的生长发育过程中发挥着至关重要的作用。研究表明,鸭的生长性能、胴体性状和血浆生化参数均受饲粮蛋氨酸含量的调控[22],且在代谢能水平为12.3 MJ/kg的饲粮中,北京鸭从孵化到21日龄的最佳饲粮蛋氨酸含量为0.481%[23]。随着雏鸭的生长发育,体表的绒毛慢慢被羽毛所替代,而作为合成羽毛角蛋白的重要组成部分,蛋氨酸的需求量也随之增加[24]。Zhang等[25]研究发现,在饲粮中补充蛋氨酸可以有效增加鸭背部羽毛评分和第4翅羽的长度,而蛋氨酸不足则会损害鸭的羽毛生长。所以,雏鸭羽毛的生长可能是导致7日龄后血浆游离蛋氨酸含量显著性降低的原因之一。
此外,本试验还利用PCA、PLS-DA等筛选出了番鸭生长发育过程中的2种主要的差异性氨基酸——苏氨酸和牛磺酸以及1种差异性氨基酸衍生物——尿素。其中,尿素作为禽蛋在孵化过程中因蛋白质利用而大量产生的代谢废物,不能排出蛋外,只能被贮藏在尿囊之中。吴红翔等[26]研究发现,6~12胚龄的禽蛋尿囊液中尿素含量平稳,之后随着禽蛋内粗蛋白质含量下降尿素含量显著升高,到21胚龄达到最高。雏鸭破壳后大量代谢废物通过泄殖腔被排出,血浆尿素的含量也随之迅速下降并保持着相对较低的水平。所以胚胎孵化期间氨基酸代谢产物的不断积累以及高度浓缩在很大程度上是造成雏鸭1日龄时血浆尿素含量高原因。
与氨基酸代谢产物尿素有所不同,苏氨酸被认为是传统家禽饲粮中重要的限制性氨基酸,它不能由番鸭自身合成而必须从饲粮中摄取。因此,番鸭体内苏氨酸含量的变化主要受到饲粮组成成分的影响,饲粮中苏氨酸含量或粗蛋白质含量不足时,番鸭血浆中检出的游离苏氨酸含量会存在一定程度的下降[27]。Abo Ghanima等[28]研究发现,当饲粮中苏氨酸含量缺乏时,家禽的采食量、胴体重均降低。而充足和过量供应苏氨酸则会对家禽产生多种积极影响,不仅能提高产蛋量、蛋重、饲料转化率、蛋白重量和哈氏单位[29],肠道潜在有益微生物的丰度也会有显著提高[30]。不仅如此,苏氨酸还在维持肠道功能中扮演着关键角色,其作用主要体现在促进黏蛋白的合成上[31]。黏蛋白是肠道微生物群落代谢过程中的重要底物,其代谢产物能够被重新吸收进入血液循环[32]。因此,若饲粮中的苏氨酸含量不足以满足番鸭生长发育的需求,肠道微生物的组成和丰度可能会显著影响番鸭血浆中的游离苏氨酸含量。此外,苏氨酸的代谢过程还涉及到其他氨基酸和营养素的相互作用,如赖氨酸、亮氨酸等[33]。因而,番鸭血浆中游离苏氨酸含量的变化不仅受饲粮营养及肠道微生物的影响,也可能与赖氨酸、亮氨酸之间的拮抗作用相关。
本试验筛选出的另一种氨基酸——牛磺酸被认为是禽类的条件性必需氨基酸,其在体内的合成量通常不能满足家禽自身的需要,仍需从饲粮中得到补充。有研究表明,在家禽孵化过程中胚内的牛磺酸含量随孵化时间增长,并在破壳后达到最大值[34]。牛磺酸在大脑发育过程中对神经干细胞有着增殖的直接作用,并且可以有效提高发育过程中的神经元存活率,从而改善神经发生[35]。由于神经生长发育的需要,所以番鸭在1日龄时血浆中牛磺酸含量始终保持在较高的水平。幼雏孵化后由于器官发育的消耗以及自身合成牛磺酸的能力不足,虽然对硫酸盐需求的一部分会被用于合成牛磺酸[36],但体内游离牛磺酸含量依然有所下降。而经过一段时间发育后,饲养后期的番鸭器官发育成熟、机体合成牛磺酸的能力以及对营养物质的吸收能力增强,血浆中牛磺酸含量因而又恢复至较高水平。因此,番鸭体内游离牛磺酸的含量不仅受饲粮营养组成的影响,还与番鸭所处生长阶段及自身合成能力有关。

4 结论

本试验对1~70日龄的番鸭血浆游离氨基酸含量进行了比较分析,结果显示,番鸭血浆游离氨基酸含量在3和42日龄出现峰值。其中,3日龄雏鸭血浆游离总氨基酸含量最高,而1、14、28和70日龄时血浆游离总氨基酸含量则处于较低水平。通过PLS-DA方法筛选发现苏氨酸和牛磺酸相较于其他氨基酸对番鸭不同日龄样品组成和含量差异有着较大的贡献度,是1~70日龄番鸭血浆在不同生长阶段氨基酸代谢谱最重要的差异氨基酸。
[1]
侯水生, 刘灵芝. 2023年水禽产业与技术发展报告[J]. 中国畜牧杂志, 2024, 60(3):318-321.

HOU S S, LIU L Z. Report on the development of waterfowl industry and technology in 2023[J]. Chinese Journal of Animal Science, 2024, 60(3):318-321. (in Chinese)

[2]
LYU W, YANG H, LI N, et al. Molecular characterization,developmental expression,and modulation of occludin by early intervention with Clostridium butyricum in Muscovy ducks[J]. Poultry Science, 2021, 100(8):101271.

[3]
GOTTI R, ESPOSITO E, LUISE D, et al. Determination of free amino acids in milk,colostrum and plasma of swine via liquid chromatography with fluorescence and UV detection[J]. Molecules, 2022, 27(13):4153.

[4]
王彬, 袁珍虎, 季海波, 等. 亮氨酸对断奶仔猪血浆游离氨基酸浓度变化的影响[J]. 饲料工业, 2017, 38(2):8-11.

WANG B, YUAN Z H, JI H B, et al. Effects of leucine on variation of plasma free amino acids concentration in weaning pigs[J]. Feed Industry, 2017, 38(2):8-11. (in Chinese)

[5]
WU X Z, ZHOU Y H, LU Z T, et al. Effect of pre-slaughter fasting time on carcass yield,blood parameters and meat quality in broilers[J]. Animal Bioscience, 2024, 37(2):315-322.

[6]
江西省市场监督管理局. 商品番鸭网床垫料养殖技术规程:DB36/T 1533—2021[S]. [出版地不详]:[出版者不详], 2021.

Jiangxi Provincial Administration for Market Regulation. Technical regulations for the breeding of commercial Muscovy duck on net bedding bed:DB36/T 1533—2021[S]. [S.l.]:[s.n.], 2021. (in Chinese)

[7]
中华人民共和国农业部. 无公害食品畜禽饮用水水质:NY 5027—2008[S]. 北京: 中国农业出版社, 2008.

Ministry of Agriculture of the People’s Republic of China. Pollution free food,drinking water quality for livestock and poultry:NY 5027—2008[S]. Beijing: China Agriculture Press, 2008. (in Chinese)

[8]
LYU W, LIU X T, LU L Z, et al. Cecal microbiota modulates fat deposition in Muscovy ducks[J]. Frontiers in Veterinary Science, 2021,8:609348.

[9]
中华人民共和国农业部. 肉鸭饲养标准:NY/T 2122—2012[S]. 北京: 中国农业出版社, 2012.

Ministry of Agriculture of the People’s Republic of China. Nutrient requirements of meat-type duck:NY/T 2122—2012[S]. Beijing: China Agriculture Press, 2012. (in Chinese)

[10]
XIAO Y P, WU T X, SUN J M, et al. Response to dietary L-glutamine supplementation in weaned piglets:a serum metabolomic comparison and hepatic metabolic regulation analysis[J]. Journal of Animal Science, 2012, 90(12):4421-4430.

[11]
肖英平, 陈安国, 代兵, 等. 早期断奶仔猪血浆氨基酸代谢谱动态变化研究[J]. 动物营养学报, 2015, 27(12):3846-3853.

DOI

XIAO Y P, CHEN A G, DAI B, et al. Dynamic change of plasma amino acid profiles in early weaned piglets[J]. Chinese Journal of Animal Nutrition, 2015, 27(12):3846-3853. (in Chinese)

[12]
陶朝荣, 曹帮英, 张波, 等. 血浆游离氨基酸及热休克蛋白检测在肺结核诊断中的应用价值[J]. 临床合理用药杂志, 2020, 13(3):36-38.

TAO C R, CAO B Y, ZHANG B, et al. The application value of plasma free amino acids and heat shock proteins in the detection of pulmonary tuberculosis[J]. Chinese Journal of Clinical Rational Drug Use, 2020, 13(3):36-38. (in Chinese)

[13]
SONG Y T, XU C, KUROKI H, et al. Recent trends in analytical methods for the determination of amino acids in biological samples[J]. Journal of Pharmaceutical and Biomedical Analysis, 2018,147:35-49.

[14]
张丽静, 付劢, 陈继兰, 等. 北京油鸡胚蛋孵化过程中营养成分变化[J]. 食品工业科技, 2019, 40(19):291-295,300.

ZHANG L J, FU M, CHEN J L, et al. Changes of nutritional ingredients in embryonated Beijing fatty chicken eggs during its incubating[J]. Science and Technology of Food Industry, 2019, 40(19):291-295,300. (in Chinese)

[15]
王建芳, 李慧. 影响雏鸡卵黄吸收的因素[J]. 畜牧兽医科技信息, 2016(1):111-112.

WANG J F, LI H. Factors affecting yolk absorption in chicks[J]. Chinese Journal of Animal Husbandry and Veterinary Medicine, 2016(1):111-112. (in Chinese)

[16]
王江水. 早饲对肉鸡卵黄吸收利用、肠道发育和生长性能的影响及其机理研究[D]. 博士学位论文. 杭州: 浙江大学, 2020.

WANG J S. Effects of early feeding on yolk absorption and utilization,gut development and growth performance in broilers[D]. Ph.D. Thesis. Hangzhou: Zhejiang University, 2020. (in Chinese)

[17]
熊小兰, 李珂珂, 曾涛, 等. 黑羽番鸭生长发育规律及生长曲线拟合分析[J]. 浙江农业科学, 2023, 64(1):237-240.

DOI

XIONG X L, LI K K, ZENG T, et al. Analysis of growth and development law and growth curve fitting of black Muscovy duck[J]. Journal of Zhejiang Agricultural Sciences, 2023, 64(1):237-240. (in Chinese)

[18]
中国畜牧业协会. 鸭饲养标准[J]. 畜牧产业, 2021(11):16-34.

China Animal Husbandry Association. Duck feeding standards[J]. Animal Agriculture, 2021(11):16-34. (in Chinese)

[19]
SUWANVICHANEE C, SINPRU P, PROMKHUN K, et al. Effects of β-alanine and L-histidine supplementation on carnosine contents in and quality and secondary structure of proteins in slow-growing Korat chicken meat[J]. Poultry Science, 2022, 101(5):101776.

[20]
初晖, 张峰瑞, 于庆港, 等. L-肌肽对蛋鸡产蛋性能、蛋品质、养分表观消化率和血清生化指标的影响[J]. 动物营养学报, 2021, 33(10):5938-5946.

DOI

CHU H, ZHANG F R, YU Q G, et al. Effects of L-carnosine on laying performance,egg quality,nutrient apparent digestibility and serum biochemical indices of laying hens[J]. Chinese Journal of Animal Nutrition, 2021, 33(10):5938-5946. (in Chinese)

[21]
丛佳惠. 日粮添加肌肽对肉鸡生长和肉质的影响及其作用机理探讨[D]. 硕士学位论文. 南京: 南京农业大学, 2017.

CONG J H. Study on the effects of dietary supplementation with carnosine on growth performance,meat quality and its regulation mechanisms in broiler chickens[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2017. (in Chinese)

[22]
XIE M, HOU S S, HUANG W, et al. Interrelationship between methionine and cystine of early Peking ducklings[J]. Poultry Science, 2004, 83(10):1703-1708.

DOI PMID

[23]
WU Y, TANG J, CAO J, et al. Effect of dietary L-methionine supplementation on growth performance,carcass traits,and plasma parameters of starter Pekin ducks at different dietary energy levels[J]. Animals, 2021, 11(1):144.

[24]
CHEN M J, XIE W Y, PAN N X, et al. Methionine improves feather follicle development in chick embryos by activating Wnt/β-catenin signaling[J]. Poultry Science, 2020, 99(9):4479-4487.

DOI PMID

[25]
ZHANG Y N, XU R S, MIN L, et al. Effects of L-methionine on growth performance,carcass quality,feather traits,and small intestinal morphology of Pekin ducks compared with conventional DL-methionine[J]. Poultry Science, 2019, 98(12):6866-6872.

[26]
吴红翔, 刘泉刚, 吴意继, 等. 孵化期间鸡胚蛋内蛋白质代谢的研究[C]// 第十三届全国家禽学术讨论会. 郑州: 中国畜牧兽医学会家禽学分会,2007:561-564.

WU H X, LIU Q G, WU Y J, et al. Study on protein metabolism in chicken embryos during hatching period[C]// The 13th National Poultry Academic Symposium. Zhengzhou: Poultry Branch of the Chinese Society of Animal Husbandry and Veterinary Medicine,2007:561-564. (in Chinese)

[27]
AZZAM M M M, DONG X Y, ZOU X T. Effect of dietary threonine on laying performance and intestinal immunity of laying hens fed low-crude-protein diets during the peak production period[J]. Journal of Animal Physiology and Animal Nutrition, 2017, 101(5):e55-e66.

[28]
ABO GHANIMA M M, ABD EL-HACK M E, AL-OTAIBI A M, et al. Growth performance,liver and kidney functions,blood hormonal profile,and economic efficiency of broilers fed different levels of threonine supplementation during feed restriction[J]. Poultry Science, 2023, 102(8):102796.

[29]
AZZAM M M, CHEN W, XIA W, et al. The impact of Bacillus subtilis DSM32315 and L-threonine supplementation on the amino acid composition of eggs and early post-hatch performance of ducklings[J]. Frontiers in Veterinary Science, 2023, 23(10):1238070.

[30]
DONG X Y, AZZAM M M M, ZOU X T. Effects of dietary threonine supplementation on intestinal barrier function and gut microbiota of laying hens[J]. Poultry Science, 2017, 96(10):3654-3663.

DOI PMID

[31]
TANG Q, TAN P, MA N, et al. Physiological functions of threonine in animals:beyond nutrition metabolism[J]. Nutrients, 2021, 13(8):2592.

[32]
LIAO S F. Invited review:maintain or improve piglet gut health around weanling:the fundamental effects of dietary amino acids[J]. Animals, 2021, 11(4):1110.

[33]
李仁德, 李光玉, 王凯英. 苏氨酸对动物的生物学作用研究进展[J]. 饲料工业, 2017, 38(8):36-39.

LI R D, LI G Y, WANG K Y. Research advances on biological function of threonine for animal[J]. Feed Industry, 2017, 38(8):36-39. (in Chinese)

[34]
范亮. 孵化期间鸡胚蛋营养成分变化的研究[D]. 硕士学位论文. 大连: 大连工业大学, 2012.

FAN L. Study on the changes of the nutrition elements in different period incubation embryonated eggs[D]. Master’s Thesis. Dalian: Dalian Polytechnic University, 2012. (in Chinese)

[35]
JAKARIA M, AZAM S, HAQUE M E, et al. Taurine and its analogs in neurological disorders:focus on therapeutic potential and molecular mechanisms[J]. Redox Biology, 2019,24:101223.

[36]
YUAN X, LIU Y, CHEN Y, et al. Effect of substitution of taurine for methionine and additional taurine supplementation on the performance and antioxidative capacity of laying hens[J]. Poultry Science, 2023, 102(3):102426.

文章导航

/