研究论文

茶多糖对热应激西门塔尔肉牛血清抗氧化、免疫、生化指标及代谢产物的影响

  • 徐俊 , 1, 2 ,
  • 李凡 1 ,
  • 费丹 2 ,
  • 谢敏 2 ,
  • 广业兰 2 ,
  • 侯玉洁 3 ,
  • 张帆帆 1 ,
  • 吴诚诚 1 ,
  • 李娜 1 ,
  • 李文飞 4 ,
  • 王颖新 4
展开
  • 1 江西省农业科学院畜牧兽医研究所,江西省畜禽健康养殖重点实验室,南昌 330200
  • 2 江西省农业科学院农产品质量安全与标准研究所,南昌 330200
  • 3 南昌市农业科学院,南昌 330200
  • 4 高安市农业农村局,高安 330800

徐 俊(1986—),男,江西南昌人,副研究员,博士,研究方向为反刍动物营养。E-mail:

Copy editor: 武海龙

收稿日期: 2024-09-26

  网络出版日期: 2025-04-15

基金资助

江西省农业科学院基础研究和人才培养专项(JXSNKYJCRC202209)

江西省重点研发项目(20201BBF61008)

江西省现代农业产业技术体系

Effects of Tea Polysaccharides on Serum Antioxidant, Immune and Biochemical Indices and Metabolites of Simmental Beef Cattle under Heat Stress

  • XU Jun , 1, 2 ,
  • LI Fan 1 ,
  • FEI Dan 2 ,
  • XIE Min 2 ,
  • GUANG Yelan 2 ,
  • HOU Yujie 3 ,
  • ZHANG Fanfan 1 ,
  • WU Chengcheng 1 ,
  • LI Na 1 ,
  • LI Wenfei 4 ,
  • WANG Yingxin 4
Expand
  • 1 Jiangxi Key Laboratory of Healthy Livestock and Poultry Breeding, Institute of Animal Science and Veterinary Science, Jiangxi Academy of Agricultural Sciences, Nanchang 330200, China
  • 2 Institute of Agricultural Product Quality Safety and Standards, Jiangxi Academy of Agricultural Science, Nanchang 330200, China
  • 3 Nanchang Academy of Agricultural Sciences, Nanchang 330200, China
  • 4 Gaoan Agriculture and Rural Bureau, Gaoan 330800, China

Author, XU Jun, associate professor, E-mail:

Received date: 2024-09-26

  Online published: 2025-04-15

摘要

本试验旨在探究茶多糖对热应激西门塔尔肉牛血清抗氧化、免疫、生化指标及代谢产物的影响。在夏季三伏天气候下,选取24头15月龄育肥期西门塔尔肉牛,随机分为4个组,每组6个重复,每个重复1头牛。对照组(CON组)饲喂基础饲粮,试验组分别在基础饲粮中额外添加0.4%(T1组)、0.8%(T2组)和1.2%(T3组)的茶多糖(干物质基础)。预试期2周,正试期6周。结果表明: 1)与CON组相比,T1、T2和T3组的血清丙二醛含量均显著降低(P<0.05),T2组的血清总抗氧化能力显著升高(P<0.05)。2)与CON组相比,T1、T2和T3组的血清肿瘤坏死因子-α、白细胞介素-1β、免疫球蛋白A和免疫球蛋白M含量显著升高(P<0.05),T3组的血清白细胞介素-2含量显著升高(P<0.05)。3)与CON组相比,T2组的血清肌酐含量显著升高(P<0.05),T2和T3组的血清热休克蛋白-72含量显著升高(P<0.05),T3组的血清三碘甲状腺原氨酸含量显著降低(P<0.05)。4)代谢组学分析显示,负离子模式下,与CON组相比,T1组的血清16-羟基十六烷酸、硬脂酸、花生四烯酸、8Z、11Z、14Z二十碳三烯酸、反油酸、肾上腺酸和溶血磷脂酰乙醇胺(18∶0)含量均显著升高(P<0.05),十二烷二酸和壬二酸含量显著降低(P<0.05);T2组的血清16-羟基十六烷酸含量显著升高(P<0.05)。正离子模式下,与CON组相比,T1组的血清DL-二棕榈酰磷脂酰胆碱、氢化白果酸(18∶0)、16(R)-羟化二十烷四烯酸和乙酰-L-肉碱含量均显著升高(P<0.05),磷脂酰胆碱(19∶1/19∶2)含量显著降低(P<0.05);T2组的血清磷脂酰胆碱(20∶3/20∶3)、氢化白果酸(18∶0)和L-羟基脯氨酸含量均显著升高(P<0.05);T3组的血清磷脂酰胆(19∶1/19∶1)、磷脂酰胆碱(20∶4e/18∶2)和磷脂酰胆碱(18∶3e/19∶2)含量均显著降低(P<0.05)。5)正、负离子模式下代谢物模块汇总和富集分析(MSEA)显著通路富集分析结果显示,亚麻酸和亚油酸代谢、花生四烯酸代谢为有显著差异富集的代谢通路(P<0.05)。综上所述,饲粮中添加茶多糖改善了热应激胁迫下西门塔尔肉牛的抗氧化和免疫功能,且改变了肉牛脂肪酸和磷脂代谢通路,其中以添加0.4%和0.8%茶多糖对肉牛血清代谢产物组成的影响更为显著。

本文引用格式

徐俊 , 李凡 , 费丹 , 谢敏 , 广业兰 , 侯玉洁 , 张帆帆 , 吴诚诚 , 李娜 , 李文飞 , 王颖新 . 茶多糖对热应激西门塔尔肉牛血清抗氧化、免疫、生化指标及代谢产物的影响[J]. 动物营养学报, 2025 , 37(4) : 2419 -2430 . DOI: 10.12418/CJAN2025.205

Abstract

This experiment was carried out to explore the effects of tea polysaccharides on serum antioxidant, immune and biochemical indices and metabolites of Simmental beef cattle under heat stress. Under the summer dog days weather conditions, twenty-four 15-month-old Simmental beef cattle during the fattening stage were randomly divided into 4 groups with 6 replicates per group and 1 cattle per replicate. The control group (CON group) was fed a basal diet, and the experimental groups were fed the basal diet additional supplemented with 0.4% (T1 group), 0.8% (T2 group) and 1.2% (T3 group) tea polysaccharides (dry matter basis), respectively. The pre-experimental period lasted for 2 weeks, and the experimental period lasted for 6 weeks. The results showed as follows: 1) compared with the CON group, the serum malondialdehyde content of T1, T2 and T3 groups was significantly decreased (P<0.05), and the serum total antioxidant capacity of T2 group was significantly increased (P<0.05). 2) Compared with the CON group, the contents of tumor necrosis factor-α, interleukin-1β, immunoglobulin A and immunoglobulin M in serum of T1, T2 and T3 groups were significantly increased (P<0.05), and the serum interleukin-2 content of T3 group was significantly increased (P<0.05). 3) Compared with the CON group, the serum creatinine content of T2 group was significantly increased (P<0.05), the serum heat shock protein-72 content of T2 and T3 groups was significantly increased (P<0.05), and the serum triiodothyronine content of T3 group was significantly decreased (P<0.05). 4) Metabolomics analysis showed that in the negative ion mode, compared with the CON group, the contents of 16-hydroxycetanoic acid, stearic acid, arachidonic acid, 8Z, 11Z, 14Z eicosatrienoic acid, oleic acid, adrenal acid and lysophosphatidylethanolamine in serum of T1 group were significantly increased (P<0.05), and the contents of dodecanoic acid and azelaic acid were significantly decreased (P<0.05); the serum 16-hydroxycetanoic acid content of T2 group was significantly increased (P<0.05). In the positive ion mode, compared with the CON group, the contents of DL-dipalmitoyl phosphatidylcholine, hydrogenated gosinic acid (18∶0), 16 (R)-hydroxydidecane tetraenoic acid and acetyl-L-carnitine in serum of T1 group were significantly increased (P<0.05), and the phosphatidylcholine (19∶1/19∶2) content of was significantly decreased (P<0.05); the contents of phosphatidylcholine (20∶3/20∶3), hydrogokic acid (18∶0) and L-hydroxyproline in serum of T2 group were significantly increased (P<0.05); the contents of phosphatidylcholine (19∶1/19∶1), phosphatidylcholine (20∶4e/18∶2) and phosphatidylcholine (18∶3e/19∶2) in serum of T3 group were significantly decreased (P<0.05). 5) The module summarization and enrichment analysis (MSEA) significant pathway enrichment analysis in the positive and negative ion mode revealed that the linolenic acid and linoleic acid metabolism and Arachidonic acid metabolism were metabolic pathways with significant enrichment differences (P<0.05). In conclusion, dietary tea polysaccharides can enhance the antioxidant and immune functions of Simmental beef cattle under heat stress, and modify the metabolic pathways of fatty acids and phospholipids of beef cattle, and the supplementation of 0.4% and 0.8% tea polysaccharides has a more remarkable effect on the composition of serum metabolites of beef cattle.

茶多糖是茶叶中的一种由单糖、蛋白质和矿物质元素相互结合的酸性糖蛋白,是一种高分子质量聚合物,在动物机体内具有调节免疫功能、糖代谢、脂代谢和抗氧化等多种生理作用[1-2]。目前的研究表明,在人、小鼠和家禽等动物模型上,茶多糖可显著清除超氧化物、羟基和1,1-二苯基-2-三硝基苯肼(DPPH)自由基,抑制细胞内活性氧(reactive oxygen species,ROS)和丙二醛(malondialdehyde,MDA)的产生,并提高超氧化物歧化酶(superoxide dismutase,SOD)、过氧化氢酶(catalase,CAT)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSP-Px)活性和谷胱甘肽(glutathione,GSH)含量[3-5]。此外,茶多糖还可显著提高畜禽血清免疫球蛋白G(immunoglobulin G,IgG)含量,提高T-淋巴细胞数和淋巴细胞转化率[6-7]。因此,茶多糖作为一种天然植物活性物质,在改善畜禽应激反应、提升机体免疫和抗氧化水平方面具有良好的应用前景。
热应激是人或动物暴露于高于舒适区的高温环境、超过自身体温调节能力时产生的机体非特异性应答反应[8]。肉牛由于具有基础代谢水平高、生长发育快、皮肤保温性强、汗腺排汗功能弱等物种特性,因而极易受热应激影响,严重阻碍了肉牛产业健康可持续发展[9-10]。已有研究表明,热应激会造成肉牛机体氧化应激、炎症反应、内分泌失调和免疫功能紊乱等不良影响,直接导致肉牛生产性能、抗病能力和肉品质受损[11-14]。因此,探究热应激胁迫对肉牛血清抗氧化、免疫和生化指标的影响及其减缓措施对提高肉牛生产性能和改善肉牛健康具有重要意义。目前,茶多糖在缓解动物机体热应激中的作用及其潜在机制研究还未见报道。因此,本研究选择夏季三伏天热应激条件下的育肥期肉牛为研究对象,利用肉牛热应激模型,在饲粮中添加不同水平茶多糖,阐明茶多糖对热应激胁迫下育肥期肉牛血清抗氧化、免疫、生化指标及代谢产物的影响,明确茶多糖减缓肉牛热应激效应的最佳添加水平,以期为茶多糖作为新型饲料添加剂应用于肉牛养殖缓解热应激损伤提供有效的理论依据。

1 材料与方法

1.1 试验设计

本研究中动物试验符合试验动物伦理福利养殖规范,经江西省农业科学院试验动物使用和管理委员会批准(批准号:2024-JXAAS-XM-16)。试验动物由江西省高安市宜华畜牧业有限公司提供。茶多糖由湖南某生物工程有限公司提供,纯度为98%。
本研究在夏季三伏天选取月龄体况相近、饲养于同一管理条件下的24头15月龄、体重(450±20) kg、健康的育肥期西门塔尔牛作为研究对象,按随机分配原则分为4组,每组6个重复,每个重复1头牛。对照组(CON组)饲喂基础饲粮,试验组分别在基础饲粮中额外添加0.4%(T1组)、0.8%(T2组)和1.2%(T3组)的茶多糖(干物质基础)。试验开始时间以牛舍温湿度指数(temperature humidity index,THI)连续7 d高于79界定。试验期共8周,其中预试期2周,正试期6周。

1.2 试验饲粮与饲养管理

试验采用采用全混合日粮(TMR)方式饲喂,精粗比为5∶5,其中精料为玉米、豆粕、棉籽粕、预混料等,粗饲料为花生秧和啤酒糟,每天饲喂2次(06:30和17:30),单栏栓系式饲养,自由采食和饮水。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料
Ingredients
含量
Content
营养水平
Nutrient levels2)
含量
Content
花生秧Peanut vine 45.00 综合净能NEmf/(MJ/kg) 7.03
啤酒糟Brewer’s grains 5.00 干物质DM 89.91
玉米Corn 29.00 粗蛋白质CP 12.45
豆粕Soybean meal 2.00 粗脂肪EE 1.52
棉籽粕Cottonseed meal 4.50 粗纤维CF 13.42
麦麸Wheat bran 11.00 粗灰分Ash 9.89
石粉Limestone 0.60 无氮浸出物NFE 52.63
碳酸氢钠NaHCO3 0.50 中性洗涤纤维NDF 34.14
磷酸氢钙CaHPO4 0.70 酸性洗涤纤维ADF 25.53
食盐NaCl 0.70 钙Ca 0.69
预混料Premix 1.00 磷P 0.30
合计Total 100.00

1)预混料为每千克饲粮提供 Premix provided the following per kg of the diet:VA 20 000 IU,VD3 30 000 IU,VE 1 500 IU,Cu 500 mg,Fe 100 mg,Mn 60 mg,Zn 60 mg,Se 50 mg,I 0.5 mg。

2)综合净能和无氮浸出物为计算值,其他为实测值。NEmf and NFE were calculated values, while the others were measured values.

1.3 样品采集与测定

1.3.1 饲粮营养水平

饲粮中干物质、粗蛋白质、粗脂肪、粗纤维、中性洗涤纤维、酸性洗涤纤维、粗灰分、钙和磷含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2006、GB/T 20806—2022、NY/T 1459—2022、GB/T 6438—2007、GB/T 6436—2018和GB/T 6437—2018方法测定。无氮浸出物含量根据公式无氮浸出物(%)=100-(水分+粗蛋白质+粗脂肪+粗纤维+粗灰分)计算得出,综合净能根据《肉牛饲养标准》(NY/T 815—2004)计算得出。

1.3.2 THI

正试期内,在试验牛舍的前段、中段和末段距地面约1.5m处悬挂温湿度计,在每天08:00、14:00和20:00记录牛舍温度和相对湿度,并按公式计算THI:
THI=0.81×T+RH×(T-14.40)+46.40。
式中:T为温度(℃);RH为相对湿度(%)。
THI阈值为74,THI≤74时,肉牛无热应激;75≤THI≤78时,肉牛处于轻度热应激;79≤THI≤83时,肉牛处于中度热应激;THI>83时,肉牛处于重度热应激[15]

1.3.3 血清抗氧化、免疫和生化指标

在正试期结束的前1周晨饲前,利用真空无菌采血管从牛尾静脉采集血液20 mL,于空调房内(20 ℃)静置30 min后,1 000×g离心15 min,采用移液枪吸取上层血清,分离后的血清于-80 ℃冷冻保存备用。
血清总抗氧化能力(total antioxidant capacity,T-AOC)、GSH-Px、SOD活性及MDA含量均南京建成生物工程研究所的检测试剂盒测定。血清IgG、免疫球蛋白A(immunoglobulin A,IgA)和免疫球蛋白M(immunoglobulin M,IgM)含量采用上海酶联生物科技有限公司的酶联免疫吸附测定(ELISA)试剂盒测定,肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-2(interleukin-2,IL-2)、白细胞介素-4(interleukin-4,IL-4)和热休克蛋白-72(heat shock protein-72,HSP-72)含量采用美国MyBioSource公司的检测试剂盒进行测定。
血清肌酐(creatinine,CREA)、尿酸(uric acid,UA)、尿素(urea,UREA)、总蛋白(total protein,TP)、白蛋白(albumin,ALB)和葡萄糖(glucose,GLU)含量采用全自动生化分析仪测定,三碘甲状腺原氨酸(triiodothyronine,T3)、甲状腺素(thyroxine,T4)、胰高血糖素(glucagon,GC)、皮质醇(cortisol,COR)和胰岛素(insulin,INS)含量采用全自动化学发光免疫分析仪测定。

1.3.4 血清代谢组学分析

样品前处理参照已有文献[16-17]方法,取1 mL血清样本于冻干机中冻干,加入100 μL的80%甲醇水溶液,涡旋振荡,冰浴静置5 min,随后15 000×g、4 ℃离心15 min;吸取一定体积上清液,加入质谱级纯水将上清液中的甲醇含量稀释为53%;最后以15 000×g、4 ℃离心15 min,收集上清液,作为样品进样液相进行色谱-质谱(LC-MS)分析。
血清代谢组分析中采用美国ThermoFisher公司的QExactiveTM HF-X质谱仪和Vanquish UHPLC超高效液相色谱仪对血清样品进行检测。正离子模式下流动相分别为0.1%的甲酸溶液和甲醇溶液;负离子模式下流动相分别为5 mmol/L的醋酸铵溶液和甲醇溶液。色谱柱:HypesilGoldcolumn(C18),柱温40 ℃,流速为0.2 mL/min。色谱梯度洗脱程序如表2所示。质谱仪质荷比范围为100~1 500 m/z。电喷雾离子化(ESI)源设置喷涂电压为3.2 kV,鞘气流量为40 arb,辅助气流量为10 arb,毛细管温度设置为320 ℃;极性选择正离子和负离子,MS/MS data-dependent进行二级扫描。
表2 色谱梯度洗脱程序

Table 2 Chromatographic gradient elution program %

时间Time/min 流动相A Mobile phase A 流动相B Mobile phase B
0 98 2
1.5 98 2
12 0 100
14 0 100
14.1 98 2
17 98 2
将下机数据文件导入Compound Discover 3.1软件中进行数据处理,针对每个代谢产物进行初步筛选和峰对齐分析,然后与数据库进行比对。代谢组后续数据分析操作均在基迪奥云生物检测平台(Omicsmart平台)上执行,最终得到代谢组数据的鉴定和定量结果。在分析组间差异代谢物时,通过统计分析与正交偏最小二乘法判别分析(orthogonal projection to latent structures-discriminant analysis,OPLS-DA)来判定组间差异代谢物,选取变量投影重要性值(variable importance in projection score,VIP)和t检验P值为分析计量值,以VIP>1且P<0.05作为组间有显著差异的代谢物。

1.4 统计分析

试验数据采用Excel 2019进行初步汇总和整理,采用Graphpad Prism 9.0软件中的学生t检验(student’s unpaired t test)方法进行组间差异统计分析。数据以平均值±标准误(SE)表示,P<0.05表示差异显著。

2 结果

2.1 西门塔尔肉牛养殖环境热应激强度

目前常使用THI判断动物是否处于热应激状态,确定肉牛发生热应激的THI阈值为74。由表3可知,本试验期间,牛舍环境在早晨和晚上处于中度热应激,在下午时可达到重度热应激。
表3 牛舍THI

Table 3 THI of cattle shed

项目
Items
温度
Temperature/℃
相对湿度
Relative humidity/%
温湿度指数
THI
热应激强度
Heat stress intensity
早晨Morning (08:00) 32.11±0.82 58.11±1.74 82.70±1.13 中度
下午Afternoon (14:00) 34.08±1.43 53.71±0.88 84.58±1.92 重度
晚上Evening (20:00) 29.32±1.29 72.99±5.98 80.97±1.36 中度

2.2 茶多糖对热应激肉牛血清抗氧化指标的影响

表4可知,与CON组相比,T1、T2和T3组的血清MDA含量均显著降低(P<0.05),且T2和T3组的血清MDA含量显著低于T1组(P<0.05);T2组的血清T-AOC显著升高(P<0.05)。各组之间血清GSH-Px和SOD活性无显著差异(P>0.05)。
表4 茶多糖对热应激肉牛血清抗氧化指标的影响

Table 4 Effects of tea polysaccharides on serum antioxidant indices of beef cattle under heat stress

项目
Items
组别Groups
CON T1 T2 T3
丙二醛MDA/(nmol/mL) 3.25±0.35a 2.71±0.37b 1.83±0.38c 1.87±0.41c
总抗氧化能力T-AOC/(μmoL/mL) 0.70±0.05b 0.79±0.05ab 0.86±0.12a 0.78±0.06ab
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 172.56±12.90 173.03±16.27 176.28±10.51 180.16±7.69
超氧化物歧化酶SOD/(U/mL) 161.08±17.76 168.91±9.88 163.61±7.39 163.26±8.54

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.3 茶多糖对热应激肉牛血清免疫指标的影响

表5可知,与CON组相比,T1、T2和T3组的血清TNF-α、IL-1β、IgA和IgM含量显著升高(P<0.05),T3组的血清IL-2含量显著升高(P<0.05)。各组之间血清IL-4和IgG含量无显著差异(P>0.05)。
表5 茶多糖对热应激肉牛血清免疫指标的影响

Table 5 Effects of tea polysaccharides on serum immune indices of beef cattle under heat stress

项目
Items
组别Groups
CON T1 T2 T3
肿瘤坏死因子-α TNF-α/(pg/mL) 57.68±23.48c 80.06±24.79ab 89.63±15.88b 121.79±26.41a
白细胞介素-1β IL-1β/(pg/mL) 261.45±53.33b 374.62±53.13a 401.29±67.07a 446.59±58.00a
白细胞介素-2 IL-2/(pg/mL) 517.14±112.45b 582.47±152.93b 655.41±101.45b 916.17±122.39a
白细胞介素-4 IL-4/(pg/mL) 46.65±11.66 45.34±9.70 43.30±9.70 47.40±9.05
免疫球蛋白A IgA/(μg/mL) 132.50±9.94b 167.60±7.46a 158.34±8.97a 154.33±7.93a
免疫球蛋白G IgG/(μg/mL) 57.70±4.64 64.23±7.14 72.44±11.37 69.43±8.07
免疫球蛋白M IgM/(μg/mL) 188.04±18.02b 253.03±20.61a 244.85±22.87a 228.48±19.06a

2.4 茶多糖对热应激肉牛血清生化指标的影响

表6可知,与CON组相比,T2组的血清CREA含量显著升高(P<0.05),T2和T3组的血清HSP-72含量显著升高(P<0.05),T3组的血清T3含量显著降低(P<0.05)。各组之间血清TP、ALB、UREA、UA、GLU、T4和INS含量无显著差异(P>0.05)。
表6 茶多糖对热应激肉牛血清生化指标的影响

Table 6 Effects of tea polysaccharides on serum biochemical indices of beef cattle under heat stress

项目
Items
组别Groups
CON T1 T2 T3
肌酐CREA/(μmol/L) 111.85±15.18b 105.32±10.08b 130.65±14.07a 118.43±16.66ab
总蛋白TP/(g/L) 71.38±3.71 71.62±2.02 70.43±3.34 72.03±4.10
白蛋白ALB/(g/L) 33.23±2.32 32.6±1.70 32.63±1.79 32.25±1.85
尿素UREA/(mmol/L) 2.95±1.15 3.13±0.47 3.65±0.85 3.35±0.94
尿酸UA/(μmol/L) 35.45±5.27 33.58±7.48 36.3±10.31 39.28±9.81
葡萄糖GLU/(mmol/L) 2.87±0.64 3.42±0.36 3.23±0.58 3.33±0.55
甲状腺素T4/(nmol/L) 65.66±8.06 64.42±5.78 70.84±13.94 74.49±11.59
三碘甲状腺原氨酸T3/(nmol/L) 1.60±0.18a 1.53±0.13ab 1.41±0.18ab 1.38±0.14b
胰岛素INS/(μIU/mL) 6.37±1.19 5.78±1.60 6.14±1.14 4.96±1.02
热休克蛋白-72 HSP-72/(pg/mL) 295.69±41.13c 342.73±65.03c 455.9±58.36b 530.39±49.99a

2.5 茶多糖对西门塔尔肉牛血清代谢产物的影响

表7可知,负离子模式下组间差异前10的代谢产物中,与CON组相比,T1组的血清脂肪酸类代谢产物如16-羟基十六烷酸、硬脂酸、花生四烯酸、8Z、11Z、14Z二十碳三烯酸、反油酸和肾上腺酸含量均显著升高(P<0.05),十二烷二酸和壬二酸含量显著降低(P<0.05),溶血磷脂酰乙醇胺(18∶0)含量也显著升高(P<0.05);T2组的血清16-羟基十六烷酸含量显著升高(P<0.05)。
表7 负离子模式下组间差异代谢物对比分析(前10)

Table 7 Comparative analysis of differential metabolites among groups in negative ion mode (top 10)

项目
Items
组别Groups
CON T1 T2 T3
壬二酸Azelaic acid 1.00±0.02a 0.74±0.06b 0.86±0.06a 0.96±0.17a
16-羟基十六烷酸
16-hydroxyhexadecanoic acid
1.00±0.05b 1.39±0.08a 1.34±0.11a 1.19±0.12ab
硬脂酸Stearic acid 1.00±0.18b 1.83±0.13a 1.32±0.27b 1.48±0.19b
花生四烯酸Arachidonic acid 1.00±0.22b 1.99±0.15a 1.55±0.26ab 2.03±0.30a
8Z、11Z、14Z二十碳三烯酸
8Z, 11Z, 14Z eicosatrienoic acid
1.00±0.18b 1.95±0.21a 1.45±0.21ab 1.78±0.20a
十二烷二酸Dodecanedioic acid 1.00±0.05a 0.73±0.06b 0.96±0.16a 1.00±0.12a
反油酸Elaidic acid 1.00±0.22b 2.20±0.30a 1.85±0.41b 1.60±0.28b
肾上腺酸Adrenic acid 1.00±0.20b 2.01±0.25a 1.39±0.22ab 1.69±0.24a
溶血磷脂酰乙醇胺(18∶0)
LPE(18∶0)
1.00±0.09b 1.26±0.06a 1.04±0.12b 1.46±0.13a
3-吲哚硫酸盐3-indoxyl sulphate 1.00±0.12a 1.52±0.23a 1.62±0.18a 1.24±0.16b
表8可知,正离子模式下组间差异前10的代谢物中,与CON组相比,T1组的血清磷脂类代谢产物如DL-二棕榈酰磷脂酰胆碱、氢化白果酸(18∶0)、16(R)-羟化二十烷四烯酸和乙酰-L-肉碱含量均显著升高(P<0.05),磷脂类代谢产物如磷脂酰胆碱(19∶1/19∶2)含量显著降低(P<0.05);T2组的血清磷脂酰胆碱(20∶3/20∶3)、氢化白果酸(18∶0)和L-羟基脯氨酸含量均显著升高(P<0.05);T3组的血清磷脂酰胆(19∶1/19∶1)、磷脂酰胆碱(20∶4e/18∶2)和磷脂酰胆碱(18∶3e/19∶2)含量均显著降低(P<0.05)。
表8 正离子模式下组间差异代谢物对比分析(前10)

Table 8 Comparative analysis of differential metabolites among groups in positive ion mode (top 10)

项目
Items
组别Groups
CON T1 T2 T3
磷脂酰胆碱(20∶3/20∶3)
PC(20∶3/20∶3)
1.00±0.06b 0.72±0.15b 1.4±0.08a 0.97±0.23ab
磷脂酰胆碱(19∶1/19∶1)
PC(19∶1/19∶1)
1.00±0.09a 0.91±0.14ab 0.89±0.09a 0.62±0.05b
氢化白果酸(18∶0)
ACar(18∶0)
1.00±0.07b 1.64±0.17a 1.67±0.29a 1.16±0.15ab
DL-二棕榈酰磷脂酰胆碱
DL-dipalmitoyl phosphatidylcholine
1.00±0.11b 1.56±0.14a 1.19±0.21ab 0.97±0.14b
磷脂酰胆碱(20∶4e/18∶2)
PC(20∶4e/18∶2)
1.00±0.11a 0.82±0.14ab 1.00±0.11a 0.62±0.04b
磷脂酰胆碱(19∶1/19∶2)
PC(19∶1/19∶2)
1.00±0.10a 0.54±0.10b 0.97±0.13a 1.03±0.15a
乙酰-L-肉碱
Acetyl-L-carnitine
1.00±0.10b 1.58±0.17a 1.71±0.32ab 1.20±0.06b
L-羟基脯氨酸
L-hydroxyproline
1.00±0.07b 0.95±0.13b 1.54±0.18a 0.78±0.12b
16(R)-羟化二十烷四烯酸
16(R)-HETE
1.00±0.30b 2.11±0.28a 1.29±0.36b 2.25±0.78a
磷脂酰胆碱(18∶3e/19∶2)
PC(18∶3e/19∶2)
1.00±0.09a 1.21±0.23a 0.79±0.13a 0.69±0.07b

2.6 茶多糖对热应激肉牛血清代谢通路的影响

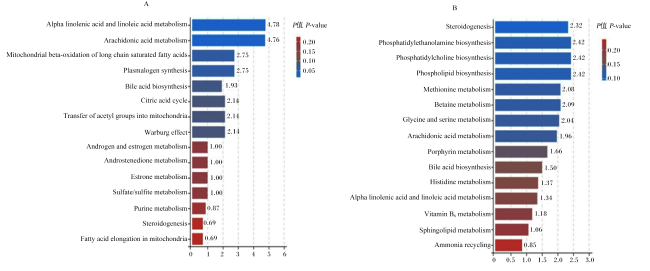
图1为正、负离子模式下代谢物模块汇总和富集分析(module summarization and enrichment analysis,MSEA)显著通路富集图。负离子模式下,由图1-A可知,亚麻酸和亚油酸代谢、花生四烯酸代谢、长链饱和脂肪酸的线粒体β氧化、等离子体合成、胆汁酸合成为代谢物富集前5的代谢通路,其中亚麻酸和亚油酸代谢、花生四烯酸代谢为有显著差异富集的代谢通路(P<0.05)。正离子模式下,由图1-B可知,类固醇合成、磷脂酰乙醇胺生物合成、磷脂生物合成、磷脂酰胆碱生物合成、蛋氨酸代谢为代谢物富集前5的代谢通路。
图1 正、负离子模式下代谢物MSEA显著通路富集图

A:负离子模式;B:正离子模式。横坐标是富集倍数,表示代谢通路中观测代谢数量/理论代谢物数量。不同颜色表示P值大小。A: negative ion mode; B: positive ion mode. The horizontal coordinate is the enrichment factor, representing the observed metabolic quantity/theoretical metabolite quantity in the metabolic pathway. Use different colors to represent the P-value size.

Alpha linolenic acid and linoleic acid metabolism:亚麻酸和亚油酸代谢;Arachidonic acid metabolism:花生四烯酸代谢;Mitochondrial beta-oxidation of long chain saturated fatty acids:长链饱和脂肪酸的线粒体β氧化;Plasmalogen synthesis:等离子体合成;Bile acid biosynthesis:胆汁酸生物合成;Citric acid cycle:柠檬酸循环;Transfer of acetyl groups into mitochondria:线粒体乙酰基转移;Warburg effect:有氧糖酵解;Androgen and estrogen metabolism:雄激素和雌激素代谢;Androstenedione metabolism:雄烯二酮代谢;Estrone metabolism:雌激素代谢;Sulfate/sulfite metabolism:硫酸盐/亚硫酸盐代谢;Purine metabolism:嘌呤代谢;Steroidogenesis:类固醇合成;Fatty acid elongation in mitochondria:长链脂肪酸延长;Phosphatidylethanolamine biosynthesis:磷脂酰乙醇胺生物合成;Phosphatidylcholine biosynthesis:磷脂酰胆碱生物合成; Phospholipid biosynthesis:磷脂生物合成;Methionine metabolism:蛋氨酸代谢;Betaine metabolism:甜菜碱代谢;Glycine and serine metabolism:甘氨酸和丝氨酸代谢;Porphyrin metabolism:卟啉代谢;Vitamin B6 metabolism:维生素B6代谢;Histidine metabolism:组氨酸代谢;Sphingolipid metabolism:鞘脂代谢;Ammonia recycling:氨回收。

Fig.1 Significant pathway enrichment map of metabolite MSEA in positive and negative ion modes

3 讨论

3.1 茶多糖对热应激肉牛血清抗氧化指标的影响

肉牛由于汗腺不发达,在夏季高温高湿环境下,机体散热极易受阻,产生热应激反应[18]。在实际生产中,肉牛的热应激程度以THI判断。根据前人研究报道,THI≤74时,肉牛无热应激;75<THI≤78时,肉牛处于轻度热应激;79<THI≤83时,肉牛处于中度热应激;THI>83时,肉牛处于重度热应激[15]。在本研究中,通过监测试验期间牛舍内温度和相对湿度,计算THI,得出牛舍环境在早晨和网上达到中度热应激,在中午达到重度热应激,说明在试验期间,肉牛遭受着较严重的热应激。
动物处于适宜温度和相对湿度条件下时,体内主要以SOD、CAT和GSP-Px等组成的抗氧化酶系统维持着机体氧化还原系统的平衡,其中抗氧化酶活性可作为衡量机体氧化应激程度的标志物[19-20]。此外,T-AOC代表机体受外界刺激时的整体抗氧化能力;MDA作为脂质过氧化反应的重要产物,其含量也是反映机体抗氧化潜在能力的重要参数[21-22]。当肉牛处于热应激状态下时,机体内的氧化还原平衡被打破,针对科尔沁牛的研究发现,热应激条件下血清SOD、GSH-Px活性和T-AOC显著降低,MDA含量显著升高[23]。针对西门塔尔肉牛的热应激研究发现,热应激条件下血清MDA含量显著上升,T-AOC及GSH-Px、SOD和CAT活性显著下降,这说明热应激加速了机体组织的脂质过氧化作用,并导致其抗氧化能力下降[24]。在本研究中,饲粮中添加茶多糖显著降低了肉牛血清MDA含量,且降低幅度在茶多糖添加水平达0.8%时达到最大;此外,饲粮中添加0.8%的茶多糖还显著提高了肉牛血清T-AOC。与此一致,已有的研究报道,在小鼠试验中茶多糖可有效降低肝脏细胞内活性氧ROS和MDA含量,并增强SOD、CAT和GSH-Px活性[25-26]。因此,本研究结果表明,饲粮中添加茶多糖可以改善热应激肉牛的氧化应激,提高机体抗氧化能力,并且以0.8%的添加水平时抗氧化效果最佳。

3.2 茶多糖对热应激肉牛血清免疫和生化指标的影响

免疫球蛋白是机体免疫细胞被抗原激活后,B细胞分化成熟为浆细胞后所合成、分泌的一类能与相应抗原特异性结合的具有免疫功能的球蛋白,根据结构和功能的不同主要分为IgG、IgA和IgM 3类,其中IgG是机体免疫防御的重要组成部分;IgM则是在抗原侵入机体后抗原抗体反应过程中产生时间最早的抗体,也是体液免疫应答的重要介质;IgA主要参与机体黏膜感染防御,在体液免疫中的作用稍弱[27-28]。免疫球蛋白是反映机体免疫功能的重要指标,血清中免疫球蛋白含量升高,意味着机体免疫功能的增强。已有研究报道,热应激可以使体内和体外感受器同时作用于机体下丘脑-垂体-肾上腺轴(hypothalamic-pituitary-adrenal axis,HPA轴)来加速糖皮质激素(glucocorticoid,GC)的分泌,GC会抑制巨噬细胞的活化,阻碍淋巴细胞的增殖和分化,从而抑制细胞免疫和体液免疫,影响机体的免疫功能[29]。在奶牛上,热应激也被发现会显著降低血清IgA、IgM和IgG含量[30-31]。在本研究中,饲粮中添加茶多糖可以提高肉牛血清IgA和IgM含量,且0.4%的茶多糖添加水平对IgA和IgM含量的增加最为显著,表明茶多糖可以激活热应激胁迫下肉牛机体的免疫功能。
白细胞介素是一类由免疫系统细胞分泌的细胞因子,具有广泛的免疫调节功能。IL-2是T淋巴细胞受抗原刺激时分泌的淋巴因子,能促进T淋巴细胞的增殖、分化及巨噬细胞的活化。TNF-α和IL-1β均是由巨噬细胞分泌的细胞因子,其主要功能是诱导B细胞增殖成熟并诱导其产生免疫球蛋白,促进T细胞的活性及对有害细胞的杀伤力,在调节体液免疫和适应性免疫中起重要调控作用[32]。在本研究中,饲粮中添加1.2%茶多糖显著增加了肉牛血清IL-2含量;此外,饲粮中添加茶多糖还显著增加了血清中TNF-α和IL-1β含量,进一步说明茶多糖可以激活肉牛的免疫反应。然而值得注意的是,IL-2、TNF-α和IL-1β在机体免疫功能的调节中具有两面性,在热应激刺激下肉牛血清中IL-2、TNF-α和IL-1β含量也会持续升高,并伴随着机体炎症反应的增强[33-34]。这表明长期高剂量茶多糖饲喂可能也会导致肉牛机体炎症的发生,以本研究的结果分析,饲粮中添加0.4%和0.8%茶多糖可以兼顾其调节机体免疫功能和炎症反应之间的平衡。总体来说,茶多糖可以一定程度改善热应激胁迫下肉牛的免疫功能障碍,提高机体免疫水平。

3.3 茶多糖对热应激肉牛血清代谢产物的影响

血清中代谢产物的变化往往与机体外界环境刺激与自身代谢状态改变有关,代谢产物能够直接的体现机体的健康状态,因此代谢组学相比基因组学和蛋白质组学更能较好解释表型的变化。大量研究表明,热应激会影响动物血清代谢产物的组成,李永强[35]研究表明,热应激状态下,奶牛血清中糖酵解、糖异生、脂代谢、氨基酸代谢和微生物代谢(亚胺途径)发生显著改变;郭延生等[36]和丁思艳[37]研究也发现,热应激会改变奶牛血清中糖代谢、核苷酸代谢和氨基酸代谢等多种代谢途径。在本研究中,通过代谢组学分析了茶多糖对热应激肉牛血清代谢产物的影响,在正、负离子模式下,代谢物MSEA显著通路富集分析结果显示,负离子模式下亚麻酸和亚油酸代谢、花生四烯酸代谢、长链饱和脂肪酸的线粒体β氧化、等离子体合成、胆汁酸合成为肉牛血清代谢产物富集前5的代谢通路,正离子模式下类固醇合成、磷脂酰乙醇胺生物合成、磷脂生物合成、磷脂酰胆碱生物合成、蛋氨酸代谢为血清代谢物富集前5的代谢通路,其中亚麻酸和亚油酸代谢以及花生四烯酸代谢为有显著差异富集的代谢通路。
亚麻酸、亚油酸和花生四烯酸均为长链多不饱和脂肪酸,已有研究报道长链多不饱和脂肪酸具有促进机体能量代谢、提高免疫力、抵抗炎症和心血管疾病等多种生理功能[38-41]。在猪的试验中,亚油酸和亚麻酸被发现可以显著促进猪卵母细胞的成熟并改善热应激诱导的生殖障碍[42-43]。共轭亚油酸是亚油酸的一类同分异构体,两者都为十八碳二烯酸,有研究发现,饲喂共轭亚油酸可以改善奶牛热应激下的机体能量代谢和肌肉损伤[44]。此外,Cui等[45]研究发现,血清中花生四烯酸含量与育肥猪急性热应激的发生呈负相关趋势。在进行急性热应激的耐热性能测定时,Gu等[46]也发现血清中油酸、亚油酸和花生四烯酸含量更高的水牛相比荷斯坦奶牛具有更高的耐热性。与上述研究一致,本研究在血清代谢产物分析中发现,饲粮中添加0.4%和0.8%的茶多糖显著增加了血清中长链多不饱和脂肪酸含量。在负离子模式下,饲粮中添加0.4%的茶多糖显著增加了16-羟基十六烷酸、硬脂酸、花生四烯酸、8Z、11Z、14Z二十碳三烯酸、反油酸和肾上腺酸等长链多不饱和脂肪酸含量,而饲粮中添加0.8%茶多糖显著提高了16-羟基十六烷酸含量。因此,通过以上研究分析,推测长链多不饱和脂肪酸代谢途径可能是茶多糖缓解肉牛热应激胁迫的潜在机制,本研究可为后续进一步探究茶多糖缓解肉牛热应激胁迫的具体调控机制提供理论依据。

4 结论

在夏季热应激胁迫下,饲粮中添加茶多糖可改善西门塔尔肉牛机体抗氧化能力,提高机体免疫水平,改变亚麻酸和亚油酸代谢以及花生四烯酸代谢等相关代谢通路,增加血清中硬脂酸、花生四烯酸和肾上腺素等长链多不饱和脂肪酸含量。从添加水平分析,饲粮中添加0.4%和0.8%的茶多糖在兼顾肉牛抗氧化和免疫功能的情况下,对肉牛血清代谢产物组成的影响更为显著。
[1]
DU L L, FU Q Y, XIANG L P, et al. Tea polysaccharides and their bioactivities[J]. Molecules (Basel,Switzerland), 2016, 21(11):1449.

[2]
WU T, XU J L, CHEN Y J, et al. Oolong tea polysaccharide and polyphenols prevent obesity development in Sprague-Dawley rats[J]. Food & Nutrition Research, 2018,62:62.

[3]
LI Q, ZHAO T T, SHI J L, et al. Physicochemical characterization,emulsifying and antioxidant properties of the polysaccharide conjugates from Chin brick tea (Camellia sinensis)[J]. Food Chemistry, 2022,395:133625.

[4]
XIANG G, SUN H P, CHEN Y Y, et al. Antioxidant and hypoglycemic activity of tea polysaccharides with different degrees of fermentation[J]. International Journal of Biological Macromolecules, 2023,228:224-233.

[5]
FAN M H, ZHU J X, QIAN Y L, et al. Effect of purity of tea polysaccharides on its antioxidant and hypoglycemic activities[J]. Journal of Food Biochemistry, 2020, 44(8):e13277.

[6]
CHEN G J, WANG M J, XIE M H, et al. Evaluation of chemical property,cytotoxicity and antioxidant activity in vitro and in vivo of polysaccharides from Fuzhuan brick teas[J]. International Journal of Biological Macromolecules, 2018,116:120-127.

[7]
MONOBE M, EMA K R, KATO F, et al. Immunostimulating activity of a crude polysaccharide derived from green tea (Camellia sinensis) extract[J]. Journal of Agricultural and Food Chemistry, 2008, 56(4):1423-1427.

DOI PMID

[8]
林婉, 孙小红, 罗君谊, 等. 夏季热应激对肉牛养殖的影响及防控措施[J]. 中国牛业科学, 2019, 45(5):58-61,74.

LIN W, SUN X H, LUO J Y, et al. Effects of heat stress on beef cattle production and control measures[J]. China Cattle Science, 2019, 45(5):58-61,74. (in Chinese)

[9]
李沂霖, 李耀坤, 郭勇庆. 热应激对肉牛生产的影响及调控措施[J]. 广东畜牧兽医科技, 2023, 48(3):68-75.

DOI

LI Y L, LI Y K, GUO Y Q. Effect of heat stress on beef cattle production and its regulating measures[J]. Guangdong Journal of Animal and Veterinary Science, 2023, 48(3):68-75. (in Chinese)

[10]
POLSKY L, VON KEYSERLINGK M A G. Invited review:effects of heat stress on dairy cattle welfare[J]. Journal of Dairy Science, 2017, 100(11):8645-8657.

[11]
REITH R R, SIECK R L, GRIJALVA P C, et al. Transcriptome analyses indicate that heat stress-induced inflammation in white adipose tissue and oxidative stress in skeletal muscle is partially moderated by zilpaterol supplementation in beef cattle[J]. Journal of Animal Science, 2022, 100(3):skac019.

[12]
KIM W S, GHASSEMI NEJAD J, PENG D Q, et al. Effects of different protein levels on growth performance and stress parameters in beef calves under heat stress[J]. Scientific Reports, 2022, 12(1):8113.

DOI PMID

[13]
THORNTON P, NELSON G, MAYBERRY D, et al. Impacts of heat stress on global cattle production during the 21st century:a modelling study[J]. The Lancet Planetary Health, 2022, 6(3):e192-e201.

[14]
刘玉强, 杨镇玮, 赵智锋, 等. 热应激对肉牛生产影响的研究进展[J]. 中国草食动物科学, 2020, 40(5):61-64.

LIU Y Q, YANG Z W, ZHAO Z F, et al. Progress on effect of heat stress on beef cattle production[J]. China Herbivore Science, 2020, 40(5):61-64. (in Chinese)

[15]
HAHN G L. Dynamic responses of cattle to thermal heat loads[J]. Journal of Animal Science, 1999,77 (Suppl.2):10-20.

[16]
WANT E J, O’MAILLE G, SMITH C A, et al. Solvent-dependent metabolite distribution,clustering,and protein extraction for serum profiling with mass spectrometry[J]. Analytical Chemistry, 2006, 78(3):743-752.

[17]
BARRI T, DRAGSTED L O. UPLC-ESI-QTOF/MS and multivariate data analysis for blood plasma and serum metabolomics:effect of experimental artefacts and anticoagulant[J]. Analytica Chimica Acta, 2013,768:118-128.

[18]
陈浩, 敖日格乐, 王纯洁, 等. 肉牛热应激研究进展[J]. 中国农业大学学报, 2019, 24(12):71-77.

CHEN H, AO R G L, WANG C J, et al. Research progress on the heat stress of beef cattles[J]. Journal of China Agricultural University, 2019, 24(12):71-77. (in Chinese)

[19]
HANDY D E, LOSCALZO J. The role of glutathione peroxidase-1 in health and disease[J]. Free Radical Biology & Medicine, 2022,188:146-161.

[20]
MCCORD J M, EDEAS M A. SOD, oxidative stress and human pathologies:a brief history and a future vision[J]. Biomedicine & Pharmacotherapy, 2005, 59(4):139-142.

[21]
SIES H. Oxidative stress:a concept in redox biology and medicine[J]. Redox Biology, 2015,4:180-183.

[22]
SIES H, MAILLOUX R J, JAKOB U. Fundamentals of redox regulation in biology[J]. Nature Reviews.Molecular Cell Biology, 2024, 25(9):701-719.

[23]
郑海英, 吴佳琦, 包雨鑫, 等. 热应激对科尔沁牛与科尔沁肉牛抗氧化功能的影响[J]. 中国牛业科学, 2021, 47(6):16-19.

ZHENG H Y, WU J Q, BAO Y X, et al. Effect of heat stress on anti-oxidative capability in Kerqin cattle and kerqin beef cattle[J]. China Cattle Science, 2021, 47(6):16-19. (in Chinese)

[24]
皇甫明科. 慢性冷热应激对西门塔尔牛免疫功能、抗氧化能力、营养代谢以及肠道菌群组成的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2023.

HUANGFU M K. Effects of chronic cold and heat stress on nutritional metabolism,immune function and intestinal flora composition of simmental cattle[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2023. (in Chinese)

[25]
WANG Y F, YANG Z W, WEI X L. Antioxidant activities potential of tea polysaccharide fractions obtained by ultra filtration[J]. International Journal of Biological Macromolecules, 2012, 50(3):558-564.

DOI PMID

[26]
CHEN H X, QU Z S, FU L L, et al. Physicochemical properties and antioxidant capacity of 3 polysaccharides from green tea,oolong tea,and black tea[J]. Journal of Food Science, 2009, 74(6):C469-C474.

[27]
MEGHA K B, MOHANAN P V. Role of immunoglobulin and antibodies in disease management[J]. International Journal of Biological Macromolecules, 2021,169:28-38.

[28]
ZUO T, GAUTAM A, WESEMANN D R. Affinity war:forging immunoglobulin repertoires[J]. Current Opinion in Immunology, 2019,57:32-39.

[29]
CHAUHAN S S, RASHAMOL V P, BAGATH M, et al. Impacts of heat stress on immune responses and oxidative stress in farm animals and nutritional strategies for amelioration[J]. International Journal of Biometeorology, 2021, 65(7):1231-1244.

DOI PMID

[30]
GUPTA S, SHARMA A, JOY A, et al. The impact of heat stress on immune status of dairy cattle and strategies to ameliorate the negative effects[J]. Animals, 2022, 13(1):107.

[31]
DAHL G E, TAO S, LAPORTA J. Heat stress impacts immune status in cows across the life cycle[J]. Frontiers in Veterinary Science, 2020,7:116.

[32]
AKDIS M, AAB A, ALTUNBULAKLI C, et al. Interleukins (from IL-1 to IL-38),interferons,transforming growth factor β,and TNF-α:receptors,functions,and roles in diseases[J]. The Journal of Allergy and Clinical Immunology, 2016, 138(4):984-1010.

[33]
奉鉴金. 热应激状态下人参总皂苷对肉牛增重、血液生理生化指标和瘤胃菌群的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2022.

FENG J J. Effects of total ginsenosides on weight gain,blood physiological and biochemical indexes and rumen flora of beef cattle under heat stress[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2022. (in Chinese)

[34]
邹必成. 烟酸对热应激肉牛生产性能和瘤胃功能的影响及机理[D]. 硕士学位论文. 南昌: 江西农业大学, 2023.

ZOU B C. Effect and mechanism of niacin on the performance and rumen function of heat-stressed beef cattle[D]. Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2023. (in Chinese)

[35]
李永强. 热应激对奶牛生产性能、氧化平衡及代谢物组影响的研究[D]. 硕士学位论文. 长春: 吉林农业大学, 2019.

LI Y Q. Study on the effects of heat stress on milk production,oxidative balance and metabolites in dairy cows[D]. Master’s Thesis. Changchun: Jilin Agricultural University, 2019. (in Chinese)

[36]
郭延生, 贾启鹏, 陶金忠. 基于GC-MS策略的奶牛热应激血液代谢组学研究[J]. 畜牧兽医学报, 2015, 46(8):1356-1362.

GUO Y S, JIA Q P, TAO J Z. Blood metabolomic studies of heat stress cow with GC-MS[J]. Acta Veterinaria et Zootechnica Sinica, 2015, 46(8):1356-1362. (in Chinese)

DOI

[37]
丁思艳. 热应激对奶牛小分子代谢物的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2015.

DING S Y. The effect of heat stress on endogenous metabolites in dairy cows[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2015. (in Chinese)

[38]
FLOCK M R, KRIS-ETHERTON P M. Diverse physiological effects of long-chain saturated fatty acids:implications for cardiovascular disease[J]. Current Opinion in Clinical Nutrition and Metabolic Care, 2013, 16(2):133-140.

[39]
MASHEK D G, BERTICS S J, GRUMMER R R. Metabolic fate of long-chain unsaturated fatty acids and their effects on palmitic acid metabolism and gluconeogenesis in bovine hepatocytes[J]. Journal of Dairy Science, 2002, 85(9):2283-2289.

PMID

[40]
MA C X, VASU R, ZHANG H. The role of long-chain fatty acids in inflammatory bowel disease[J]. Mediators of Inflammation, 2019,2019:8495913.

[41]
MILES E A, CHILDS C E, CALDER P C. Long-chain polyunsaturated fatty acids (LCPUFAs) and the developing immune system:a narrative review[J]. Nutrients, 2021, 13(1):247.

[42]
MENTLER M, CURRENT J, WHITAKER B D. 491 Effects of linoleic and linolenic acid supplementation on the in vitro production of pig embryos in a heat-stressed environment[J]. Journal of Animal Science, 2018,96:262-263.

[43]
CURRENT J Z, MENTLER M, WHITAKER B D. Linoleic and linolenic acids reduce the effects of heat stress-induced damage in pig oocytes during maturation in vitro[J]. In Vitro Cellular & Developmental Biology-Animal, 2022, 58(7):599-609.

[44]
LIU Z L, CHEN P, LI J M, et al. Conjugated linoleic acids (CLA) moderate negative responses of heat-stressed cows[J]. Livestock Science, 2008, 118(3):255-261.

[45]
CUI Y J, WANG C, HAO Y, et al. Chronic heat stress induces acute phase responses and serum metabolome changes in finishing pigs[J]. Animals, 2019, 9(7):395.

[46]
GU Z B, LI L, TANG S K, et al. Metabolomics reveals that crossbred dairy buffaloes are more thermotolerant than holstein cows under chronic heat stress[J]. Journal of Agricultural and Food Chemistry, 2018, 66(49):12889-12897.

DOI PMID

文章导航

/