研究论文

屎肠球菌后生元对育成期母貂生长性能、养分表观消化率和肠道健康的影响

  • 曹林 ,
  • 孙逢雪 ,
  • 陈健 ,
  • 蒋子怡 ,
  • 王光 ,
  • 王利华 , *
展开
  • 青岛农业大学动物科技学院,青岛 266109
* 王利华,教授,硕士生导师,E-mail:

曹 林(1998—),男,山东平度人,硕士研究生,动物营养与饲料科学专业。E-mail:

Copy editor: 武海龙

收稿日期: 2024-10-17

  网络出版日期: 2025-04-15

基金资助

山东省现代农业特种经济动物产业技术体系(SDAIT-21)

Effects of Enterococcus faecium Postibiotics on Growth Performance, Nutrient Apparent Digestibility and Intestinal Health of Growing Female Minks

  • CAO Lin ,
  • SUN Fengxue ,
  • CHEN Jian ,
  • JIANG Ziyi ,
  • WANG Guang ,
  • WANG Lihua , *
Expand
  • College of Animal Science and Technology, Qingdao Agricultural University, Qingdao 266109, China
* professor, E-mail:

Received date: 2024-10-17

  Online published: 2025-04-15

摘要

本试验旨在研究饲粮中添加屎肠球菌后生元对育成期母貂生长性能、养分表观消化率、抗氧化能力、免疫功能和肠道菌群的影响。选取12周龄白色母貂120只,随机分成4个组,每组15个重复,每个重复2只。4组饲粮中屎肠球菌后生元的添加水平分别为0(对照组)、0.05%(0.05%PEF组)、0.10%(0.10%PEF组)、0.15%(0.15%PEF组)。预试期1周,正试期7周。结果表明: 1)与对照组相比,0.05%PEF组、0.10%PEF组和0.15%PEF组的末重和平均日增重显著增加(P<0.05),料重比显著降低(P<0.05)。2)与对照组相比,0.10%PEF组的干物质和粗蛋白质表观消化率显著增加(P<0.05)。3)与对照组相比,0.10%PEF组的空肠黏膜总抗氧化能力显著增加(P<0.05),0.05%PEF组和0.15%PEF组的空肠黏膜谷胱甘肽过氧化物酶活性显著增加(P<0.05)。4)与对照组相比,0.05%PEF组、0.10%PEF组和0.15%PEF组的空肠黏膜白细胞介素-8含量显著降低(P<0.05);0.10%PEF组的空肠黏膜肿瘤坏死因子-α含量显著降低(P<0.05),空肠黏膜分泌型免疫球蛋白A含量显著增加(P<0.05);0.10%PEF组和0.15%PEF组的空肠黏膜白细胞介素-10含量显著增加(P<0.05)。5)与对照组相比,0.10%PEF组的Ace指数、Chao指数和Sobs指数显著升高(P<0.05),0.05%PEF组的肠道葡萄球菌属和不动杆菌属相对丰度显著升高(P<0.05)。由此可见,饲粮中添加屎肠球菌后生元能够提高育成期母貂的生长性能和养分表观消化率,改善机体免疫功能和抗氧化能力,提高肠道菌群多样性。本试验条件下,饲粮中屎肠球菌后生元的适宜添加水平为0.10%。

本文引用格式

曹林 , 孙逢雪 , 陈健 , 蒋子怡 , 王光 , 王利华 . 屎肠球菌后生元对育成期母貂生长性能、养分表观消化率和肠道健康的影响[J]. 动物营养学报, 2025 , 37(4) : 2638 -2647 . DOI: 10.12418/CJAN2025.221

Abstract

This experiment was conducted to investigate the effects of Enterococcus faecium postbiotics on growth performance, nutrient apparent digestibility, antioxidant capacity, immune function and intestinal microbiota of growing female minks. A total of 120 healthy white female minks at 12 weeks of age were randomly divided into 4 groups with 15 replicates in each group and 2 minks in each replicate. Minks in the 4 groups were fed the basal diets supplemented with 0 (control group), 0.05% (0.05%PEF group), 0.10% (0.10%PEF group) and 0.15% (0.15%PEF group) Enterococcus faecium postbiotics, respectively. The experiment lasted for 7 weeks after 1 week adaptation period. The results showed as follows: 1) compared with the control group, the final body weight and average daily gain of 0.05%PEF group, 0.10%PEF group and 0.15%PEF group were significantly increased (P<0.05), and ratio of feed to gain was significantly decreased (P<0.05). 2) Compared with the control group, the dry matter and crude protein apparent digestibility of 0.10%PEF group were significantly increased (P<0.05). 3) Compared with the control group, the jejunal mucosa total antioxidant capacity 0.10%PEF group was significantly increased (P<0.05), the jejunal mucosa glutathione peroxidase activity of 0.05%PEF group and 0.15%PEF group was significantly increased (P<0.05). 4) Compared with the control group, the jejunal mucosa interleukin-8 content of 0.05%PEF group, 0.10%PEF group and 0.15%PEF group was significantly decreased (P<0.05); the jejunal mucosa tumor necrosis factor-α content of 0.10%PEF group was significantly decreased (P<0.05), and the jejunal mucosa secretory immunoglobulin A content was significantly increased (P<0.05); the jejunal mucosa interleukin-10 content of 0.10%PEF group and 0.15%PEF group was significantly increased (P<0.05). 5) Compared with the control group, the Ace index, Chao index and Sobs index of 0.10%PEF group were significantly increased (P<0.05), and the relative abundances of Staphylococcus and Acinetobacter in intestine of 0.05%PEF group were significantly increased (P<0.05). In conclusion, dietary Enterococcus faecium postbiotics can improve the growth performance, nutrient apparent digestibility, function and antioxidant capacity, and increase the diversity of intestinal microbiota of growing female minks. Under the conditions of this experiment, the dietary suitable supplemental level of Enterococcus faecium postbiotics is 0.10%.

乳酸菌是一类能产生乳酸的细菌。乳酸菌很多菌株属于益生菌,可促进动物的生长发育,提高机体的免疫功能。屎肠球菌是一种兼性厌氧型乳酸菌,可作为饲料添加剂被我国农业农村部批准使用[1],具有降低胃肠道pH[2]、调节肠道菌群[3]、提高营养物质消化吸收能力[4]以及增强机体的免疫力[5]和抗氧化能力[6]等益生作用,已被广泛的应用于畜牧生产当中。然而,随着对益生菌的深入研究发现,一些益生菌的衍生成分可以提供与益生菌相似甚至更高的益生作用[7]。国际益生菌和益生元科学协会(ISAPP)将这些无生命的微生物和/或其成分,包括细菌素、有机酸和表层蛋白等,定义为后生元[8]。万瑾怡等[9]研究发现,在饲粮中添加灭活的植物乳杆菌能显著增高肉鸡肠道中乳酸杆菌的相对丰度,降低肠球菌和志贺氏大肠杆菌的相对丰度。李亚霖等[10]研究发现,饲粮中添加植物乳杆菌后生元显著提高了母貂血清免疫球蛋白G(IgG)含量,改善了育成期母貂的免疫功能。目前,关于屎肠球菌后生元(Enterococcus faecium postibiotics,EFP)对水貂影响的相关研究较少。因此,本试验旨在研究屎肠球菌后生元对母貂生长性能、养分表观消化率、抗氧化能力、免疫能力和肠道菌群的影响,探究其在育成期母貂上的应用效果及适宜添加水平,为屎肠球菌后生元在水貂生产中的应用提供理论依据。

1 材料与方法

1.1 试验菌株及基础饲粮

试验菌株从水貂直肠内容物中分离得到,16S rRNA基因序列分析鉴定为屎肠球菌,保存于中国普通微生物培养收藏中心(保藏号:No.29262)。将分离得到的屎肠球菌37 ℃培养24 h,实测菌液中活菌数大于107 CFU/mL。将菌液灭活后制备成屎肠球菌后生元。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
1~4周
1 to 4
weeks
5~7周
5 to 7
weeks
原料Ingredients
海杂鱼Sea fishes 32 32
毛蛋Unhatched fertilized egg 32 32
鸡头Chicken head 20 20
膨化玉米Extruded corn 10 10
猪油Lard 1 2
豆粕Soybean meal 3 2
预混料Premix1) 2 2
合计Total 100 100
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 15.98 17.04
粗脂肪Ether extract 16.65 19.85
粗蛋白质Crude protein 31.81 31.26
钙Calcium 2.47 2.59
磷Phosphorus 1.59 1.64

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 9 000 IU,VC 40 mg,VE 20 mg,VK3 0.5 mg,VB1 5 mg,VB2 3 mg,VB6 2.5 mg,VB12 1 mg,VD3 2 000 IU,烟酸 nicotinic acid 20 mg,泛酸 pantothenic acid 6 mg,叶酸 folic acid 0.5 mg,生物素 biotin 0.5 mg,Fe 30 mg,Zn 25 mg,Mn 10 mg,Cu 5 mg,I 0.25 mg,Se 0.2 mg。

2)代谢能为计算值,参照《水貂配合饲料》(LS/T 3403—1992)计算;其余为实测值。ME was a calculated value, which calculated refer to the Compound Feed of Mink (LS/T 3403—1992); while the others were measured values.

1.2 试验设计和饲养管理

动物试验经青岛农业大学动物科技学院实验动物伦理审查委员会批准(批准号:DKY20230524-2)。
选取12周龄白色母貂120只,随机分为4组,每组15个重复,每个重复2只。4组饲粮中屎肠球菌后生元的添加水平分别为0(对照组)、0.05%(0.05%PEF组)、0.10%(0.10%PEF组)、0.15%(0.15%PEF组)。试验于山东省海阳市某水貂养殖场进行。水貂采用棚舍笼养,每笼2只。试验过程中采用自然光照,保证自由饮水。每天06:30和15:30各饲喂1次。预试期1周,正试期7周。

1.3 测定指标与方法

1.3.1 饲粮营养成分

饲粮粗蛋白质(CP)(GB/T 6432—2018)、粗脂肪(EE)(GB/T 6433—2006)、钙(GB/T 6436—2018)、磷(GB/T 6437—2018)含量均参照国标方法进行测定。

1.3.2 生长性能

在试验开始和结束时对水貂进行空腹称重,记录初重(IBW)和末重(FBW)。每周准确记录3 d的给料量和剩料量,计算平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)。

1.3.3 养分表观消化率

在正式试验的第6周采用内源指示剂法进行消化试验。每组随机选取6个重复,连续收集3 d新鲜的水貂粪便,同时采集饲粮样品。将混匀的粪样和饲粮样品于65 ℃烘干,制成风干样后粉碎过40目筛,测定粪样和饲粮样品中的盐酸不溶灰分(GB/T 23742—2009)、干物质(DM)(GB/T 6435—2014)、CP(GB/T 6432—2018)、EE(GB/T 6433—2006)、粗灰分(Ash)含量(GB/T 6438—2007),计算养分表观消化率:
养分表观消化率(%)=100-(A1/A2)×(B2/B1)×100。
式中:A1为饲粮中盐酸不溶灰分含量;A2为粪样中盐酸不溶灰分含量;B1为饲粮中该养分含量;B2为粪样中该养分含量。

1.3.4 空肠黏膜抗氧化和免疫指标

饲养试验结束后,随机选取8只水貂实施安乐死,每只貂分别取空肠黏膜组织2~3 g和直肠棉签拭子于冻存管中,-80 ℃保存用于后续分析。
使用抗氧化试剂盒测定空肠黏膜丙二醛(MDA)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)和总抗氧化能力(T-AOC),试剂盒均购于南京建成生物工程研究所。
采用酶联免疫吸附试验(ELISA)测定空肠黏膜白细胞介素-2(IL-2)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、白细胞介素-10(IL-10)、白细胞介素-1β(IL-1β)、分泌型免疫球蛋白A(SIgA)、干扰素-γ(IFN-γ)、肿瘤坏死因子-α(TNF-α)含量,试剂盒均购于南京建成生物工程研究所。

1.3.5 肠道菌群

对直肠棉签拭子样品进行DNA提取、扩增(ABI Geneamp & Regg 9700)、纯化、回收(AxyPrep DNA凝胶提取试剂盒,Axygen公司,美国)、定量(QuantiFluor-ST Blue荧光定量系统,Promega公司,美国)和测序(Illumina MiSeq PE 300平台)[11]。按照97%相似度对非重复序列进行操作分类单元(OTU)聚类,分别输出代表序列和OTU表,基于I-Sanger云平台分析组间Alpha多样性指数、菌群组成及菌群组成差异。

1.4 数据统计分析

采用Excel 2013对数据进行初步处理。采用SPSS 25.0中的ANOVA程序对数据进行单因素方差分析,采用Duncan氏法比较组间差异,P<0.05表示差异显著。结果以平均值±标准误表示。

2 结果

2.1 屎肠球菌后生元对育成期母貂生长性能的影响

表2可知,与对照组相比,0.05%PEF组、0.10%PEF组和0.15%PEF组的FBW和ADG显著增加(P<0.05),F/G显著降低(P<0.05)。屎肠球菌后生元对平均日采食量无显著影响(P>0.05)。
表2 屎肠球菌后生元对育成期母貂生长性能的影响

Table 2 Effects of PEF on growth performance of growing female minks

项目
Items
组别Groups P
P-value
对照Control 0.05%PEF 0.10%PEF 0.15%PEF
初重IBW/g 919.58±11.05 922.08±9.17 923.33±9.60 927.29±9.73 0.957
末重FBW/g 1 342.29±26.15b 1 442.50±18.84a 1 431.46±33.41a 1 441.79±23.03a 0.032
平均日增重ADG/g 8.63±0.51b 10.62±0.38a 10.37±0.57a 10.50±0.48a 0.019
平均日采食量ADFI/g 210.61±2.78 208.09±4.39 203.14±4.72 202.75±3.01 0.397
料重比F/G 25.93±2.47a 19.78±0.57b 19.97±0.70b 19.66±0.73b 0.004

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 屎肠球菌后生元对育成期母貂养分表观消化率的影响

表3可知,与对照组相比,0.10%PEF组的DM和CP表观消化率显著增加(P<0.05)。0.05%PEF组的CP表观消化率显著低于0.10%PEF组(P<0.05)。0.05%PEF组和0.15%PEF组的Ash表观消化率显著低于0.10%PEF组(P<0.05)。屎肠球菌后生元对EE表观消化率无显著影响(P>0.05)。
表3 屎肠球菌后生元对育成期母貂养分表观消化率的影响

Table 3 Effects of PEF on nutrient apparent digestibility of growing female minks %

项目
Items
组别Groups P
P-value
对照Control 0.05%PEF 0.10%PEF 0.15%PEF
干物质DM 76.94±0.72b 78.02±0.98ab 79.95±0.35a 78.65±0.52ab 0.045
粗蛋白质CP 88.31±0.61b 87.78±0.55b 89.83±0.32a 89.04±0.33ab 0.036
粗脂肪EE 96.36±0.46 96.49±0.11 96.83±0.26 96.30±0.42 0.699
粗灰分Ash 32.66±3.87ab 23.41±4.13b 36.57±1.63a 25.62±2.50b 0.035

2.3 屎肠球菌后生元对育成期母貂空肠黏膜抗氧化指标的影响

表4可知,与对照组相比,0.10%PEF组的空肠黏膜T-AOC显著增加(P<0.05),0.05%PEF组和0.15%PEF组的空肠黏膜GSH-Px活性显著增加(P<0.05)。0.10%PEF组的空肠黏膜T-AOC显著高于0.15%PEF组(P<0.05)。屎肠球菌后生元对空肠黏膜SOD活性和MDA含量无显著影响(P>0.05)。
表4 屎肠球菌后生元对育成期母貂空肠黏膜抗氧化指标的影响

Table 4 Effects of PEF on jejunal mucosa antioxidant indices of growing female minks

项目
Items
组别Groups P
P-value
对照Control 0.05%PEF 0.10%PEF 0.15%PEF
超氧化物歧化酶SOD/(U/mg prot) 128.43±16.20 164.13±19.81 204.53±29.33 176.88±12.11 0.098
丙二醛MDA/(nmol/mg prot) 1.60±0.18 1.92±0.23 1.19±0.13 1.76±0.33 0.150
总抗氧化能力T-AOC/(U/mg prot) 3.01±0.15b 3.56±0.41ab 4.23±0.22a 3.31±0.26b 0.034
谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
17.57±2.54b 88.88±17.73a 51.00±3.03ab 84.93±17.25a 0.001

2.4 屎肠球菌后生元对育成期母貂空肠黏膜免疫指标的影响

表5可知,与对照组相比,0.05%PEF组的空肠黏膜IL-8含量显著降低(P<0.05);0.10%PEF组的空肠黏膜IL-8和TNF-α含量显著降低(P<0.05),空肠黏膜SIgA和IL-10含量显著增加(P<0.05);0.15%PEF组的空肠黏膜IL-8含量显著降低(P<0.05),空肠黏膜IL-10含量显著增加(P<0.05)。0.05%PEF组和0.15%PEF组的空肠黏膜SIgA含量显著低于0.10%PEF组(P<0.05),0.15%PEF组的空肠黏膜TNF-α含量显著高于0.10%PEF组(P<0.05)。屎肠球菌后生元对空肠黏膜IL-2、IL-6、IL-1β和IFN-γ含量无显著影响(P>0.05)。
表5 屎肠球菌后生元对育成期母貂空肠黏膜免疫指标的影响

Table 5 Effects of PEF on jejunal mucosa immune indices of growing female minks

项目
Items
组别Groups P
P-value
对照Control 0.05%PEF 0.10%PEF 0.15%PEF
白细胞介素-2 IL-2/(pg/g prot) 302.70±23.81 309.38±8.82 305.79±33.50 358.75±18.75 0.293
白细胞介素-6 IL-6/(pg/g prot) 27.86±4.21 30.60±0.86 29.12±3.58 33.81±3.94 0.647
白细胞介素-8 IL-8/(pg/g prot) 135.97±3.62a 112.46±2.37b 108.30±1.65b 118.82±5.95b 0.001
分泌型免疫球蛋白A
SIgA/(ng/g prot)
2 610.55±322.49b 2 950.41±33.25b 3 591.15±99.36a 2 970.87±136.58b 0.012
白细胞介素-10 IL-10/(pg/g prot) 65.91±10.49b 83.40±6.29ab 89.24±4.76a 96.51±5.74a 0.047
白细胞介素-1β IL-1β/(pg/g prot) 312.91±27.60 301.18±18.42 239.90±28.84 331.99±14.61 0.057
干扰素-γ IFN-γ/(pg/g prot) 886.69±158.02 1 039.80±60.47 825.47±148.30 1 113.13±102.11 0.355
肿瘤坏死因子-α TNF-α/(pg/g prot) 787.45±24.16a 712.20±18.83ab 641.17±52.62b 778.25±33.35a 0.026

2.5 屎肠球菌后生元对育成期母貂肠道菌群的影响

2.5.1 Alpha多样性指数

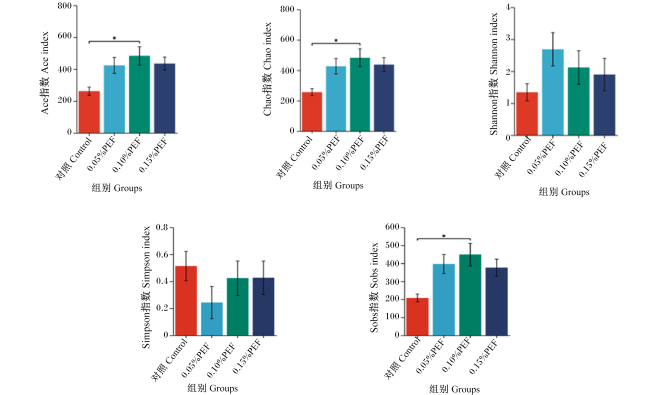
图1所示,与对照组相比,0.10%PEF组的Ace指数、Chao指数和Sobs指数显著升高(P<0.05)。各组之间Shannon指数和Simpson指数差异不显著(P>0.05)。
图1 Alpha多样性指数

*表示差异显著(P<0.05)。图4同。

Fig.1 Alpha diversity index

* indicated significant difference (P<0.05). The same as Table 4.

2.5.2 肠道菌群组成分析

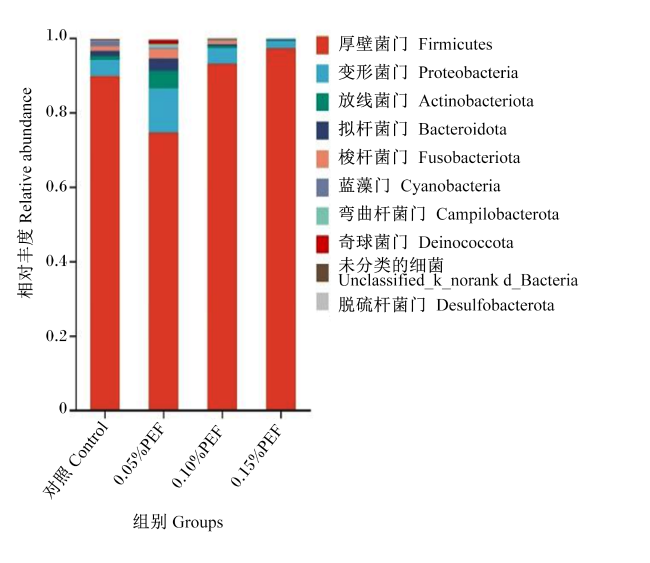
图2所示,在门水平上,对照组肠道菌群相对丰度前3位为厚壁菌门(Firmicutes)、变形菌门(Proteobacteria)和蓝藻门(Cyanobacteria)。0.05%PEF组、0.10%PEF组和0.15%PEF组肠道菌群相对丰度前3位为厚壁菌门、变形菌门(Proteobacteria)和放线菌门(Actinobacteriota)。
图2 菌群组成分析(门水平)

Fig.2 Analysis of flora composition (phylum level)

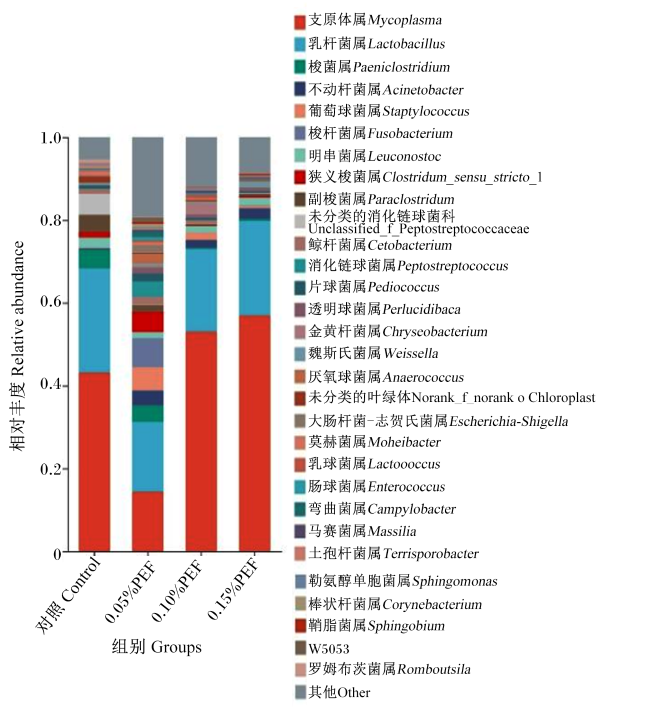
图3所示,在属水平上,对照组的肠道优势菌群为支原体属(Mycoplasma)、乳杆菌属(Lactobacillus)、未分类的消化链球菌科(unclassified_f_Peptostreptococcaceae)、梭菌属(Paeniclostridium)、副梭菌属(Paraclostridium);0.05%PEF组的肠道优势菌群为乳杆菌属、支原体属、梭杆菌属(Fusobacterium)、葡萄球菌属(Staphylococcus)、梭菌属;0.10%PEF组的肠道优势菌群为支原体属、乳杆菌属、不动杆菌属(Acinetobacter)、葡萄球菌属和明串菌属(Leuconostoc);0.15%PEF组的肠道优势菌群为支原体属、乳杆菌属、不动杆菌属、明串菌属和魏斯氏菌属(Weissella)。
图3 菌群组成分析(属水平)

Fig.3 Analysis of flora composition (genus level)

2.5.3 肠道菌群组间差异分析

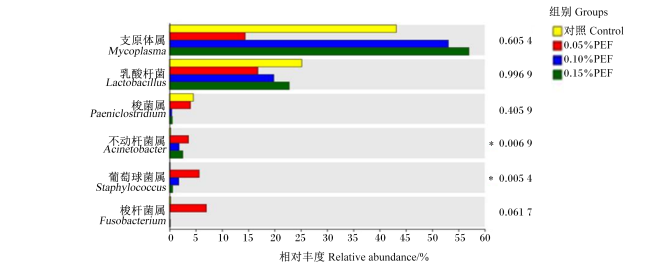
图4所示,在属水平上,与对照组相比,0.05%PEF组的肠道葡萄球菌属和不动杆菌属相对丰度显著升高(P<0.05)。
图4 属水平肠道菌群差异分析

Fig.4 Difference analysis of intestinal flora at genus level

3 讨论

3.1 屎肠球菌后生元对育成期母貂生长性能和养分表观消化率的影响

生长性能是衡量动物生长状况与健康水平的重要因素,也是衡量屎肠球菌后生元添加效果的重要指标。本试验结果表明,饲粮中添加屎肠球菌后生元能够有效提高育成期母貂的生长性能。吴飞等[12]研究发现,与乳酸杆菌相比,乳酸杆菌后生元提高了断奶仔猪的平均日增重,这表明灭活处理后的乳酸杆菌及代谢产物对断奶仔猪的促生长作用更好。徐大海等[13]研究发现,与对照组和抗生素组相比,饲粮中添加后生元能够改善肉鸡的生长性能。养分表观消化率能够直观地反映动物机体消化利用饲料中各种养分的能力,与动物的生长性能密切相关。本试验结果表明,饲粮中添加0.10%屎肠球菌后生元能够有效提高育成期母貂的DM和CP表观消化率。Chen等[14]研究发现,饲粮中添加屎肠球菌提高了育肥猪的DM表观消化率。Izuddin等[15]研究发现,饲粮中添加后生元显著提高了断奶后羔羊对DM和CP的表观消化率。这可能是由于屎肠球菌后生元制剂中存在许多的益生成分,包括胞外多糖、壁多糖、磷壁酸(壁磷壁酸和脂磷壁酸)和代谢产物等[16],能够改善肠道结构、保护肠道上皮屏障、抑制致病菌、提高宿主免疫能力[17],进而增加养分消化率,提高动物的生长性能。而且屎肠球菌后生元对养分表观消化率的影响存在着剂量效应,饲粮中添加0.1%屎肠球菌后生元对DM和CP表观消化率的改善作用最显著,对Ash表观消化率的影响呈现二次曲线增加,即随着屎肠球菌后生元的添加量呈现下降-升高-下降的趋势。这也进一步说明,本试验条件下屎肠球菌后生元的适宜添加水平为0.1%。

3.2 屎肠球菌后生元对育成期母貂空肠黏膜抗氧化指标的影响

高温、疾病等因素导致的应激状态会使动物机体产生过量的自由基,破坏氧化和抗氧化系统之间的平衡,可能导致氧化应激,造成抗氧化损伤以及破坏细胞结构[18]。SOD和GSH-Px是抗氧化系统中的主要抗氧化酶,在清除自由基、减轻和消除氧化损伤方面发挥着至关重要的作用[19]。T-AOC是评价抗氧化能力整体功能的重要指标[20]。MDA是氧化应激状态下脂质过氧化的最终产物,通常也用作评估氧化应激水平的标记物[21]。本试验结果证明,饲粮中添加屎肠球菌后生元能够改善机体的抗氧化能力。这与徐大海等[22]的研究相似,即后生元可以有效增强肉鸡机体的T-AOC,提高GSH-Px活性,有助于维持机体抗氧化系统的平衡。另外,殷成港等[23]研究发现,嗜酸乳杆菌多级发酵而成的代谢物能够显著降低断奶仔猪血浆MDA含量。这可能是由于后生元中的活性成分能够提高机体的抗氧化酶活性,增强了清除自由基的能力[24],进而提高的动物的抗氧化能力。研究发现,不同抗氧化指标的改善对屎肠球菌后生元的添加水平有不同的响应,0.05%和0.15%的屎肠球菌后生元添加水平对空肠黏膜GSH-Px活性的提高更为有效,而0.1%的屎肠球菌后生元添加水平对空肠黏膜T-AOC的改善更为显著。这种差异可能是屎肠球菌后生元中的多种代谢产物和细胞成分在不同剂量下对抗氧化系统产生不同的影响所致。

3.3 屎肠球菌后生元对育成期母貂空肠黏膜免疫指标的影响

肠道上皮能够产生IL-10、IL-2、IL-8和TNF-α等多种促炎和抗炎细胞因子[25],维持多种促炎因子与抗炎因子之间的动态平衡,是维持动物机体健康、调节肠道炎症的关键[26]。本试验结果表明,饲粮中添加屎肠球菌后生元降低了空肠黏膜IL-8和TNF-α含量,增加了SIgA和IL-10含量。Yan等[27]研究发现,低浓度和高浓度酿酒酵母发酵后生元均能够减少空肠黏膜中IL-6、TNF-α、INF-γ等分泌水平,并增加IL-10分泌水平,减缓断奶仔猪因产肠毒素大肠杆菌诱导发生的肠道炎症。Balzaretti等[28]研究发现,由副干酪乳杆菌分泌产生的胞外多糖能够通过增强促炎细胞因子TNF-α和IL-6分泌水平,显示出免疫刺激特性。Cui等[29]也有相似的发现,口服罗伊氏乳杆菌培养上清液能够降低脂多糖(LPS)所致小鼠的炎症反应,降低IL-6和TNF-α含量,增加IL-10含量。本试验中,屎肠球菌后生元对育成期母貂的免疫功能产生了调节作用,可能是由于屎肠球菌后生元包含的胞外多糖、短链脂肪酸等成分能够通过调节Toll样受体(TLR)表达、抑制丝裂原活化蛋白激酶(MAPK)和核因子-κB(NF-κB)信号通路来降低炎症细胞因子表达[30]。屎肠球菌后生元对空肠黏膜中细胞因子的调节存在剂量效应,尽管各添加组均对空肠黏膜IL-8含量有下调作用,但0.10%PEF组的空肠黏膜TNF-α含量低于0.15%PEF组,空肠黏膜IL-10含量高于0.15%PEF组,且空肠黏膜SIgA含量高于0.05%PEF组和0.15%PEF组,这表明饲粮中添加0.1%屎肠球菌后生元可能对调节育成期母貂的肠道免疫功能更有效。

3.4 屎肠球菌后生元对育成期水貂肠道菌群的影响

肠道微生物群与宿主的消化、代谢和免疫等方面密切相关[31]。肠道微生物群的稳态对于调节肠道炎症、维持机体代谢稳态以及免疫系统的成熟和调节至关重要[32]。本试验结果表明,饲粮中添加屎肠球菌后生元能够提高育成期母貂肠道菌群相对丰度和多样性。黄金贵等[33]研究发现,植物乳杆菌后生元提高了肉鸡盲肠微生物的Chao1指数、ACE指数。厚壁菌门含有大量的乳酸菌等益生菌,产生的短链脂肪酸可有效调节肠道免疫系统、维持肠道菌群平衡[34]。本研究中,厚壁菌门为育成期母貂肠道中的优势菌门,与宇晓军等[35]在水貂上的研究结果一致。葡萄球菌属是人类和动物正常微生物群中的一种,多数为非致病菌,是无害或机会性病原体[36]。本试验中,饲粮中添加屎肠球菌后生元增加了葡萄球菌属的相对丰度,其对母貂的健康并未产生不利的影响。Li等[11]研究发现,葡萄球菌属是植物乳杆菌后生元添加组母貂肠道的优势菌。不动杆菌属是好氧性杆状革兰氏阴性细菌,属于条件性致病菌,当机体抵抗力降低时易引起机体感染[37]。有研究表明,由溶血不动杆菌产生一种具有黏膜黏附特性的细胞外聚合物,在体外条件下表现出针对革兰氏阳性和革兰氏阴性细菌病原体的潜在抗菌特性[38]。本试验结果表明,屎肠球菌后生元增加了育成期母貂肠道中不动杆菌属的相对丰度,可能是由于后生元缺乏竞争定植位点来抑制病原菌的能力[39],而不动杆菌属具有很强的黏附及定殖生物和非生物表面的能力[40]

4 结论

饲粮中添加屎肠球菌后生元能够通过增强免疫功能和抗氧化能力、调节肠道菌群平衡来维护肠道健康,促进养分消化吸收,进而提升育成期母貂的生长性能。在本试验条件下,饲粮中屎肠球菌后生元的适宜添加水平为0.10%。
[1]
LIU Z L, CHEN Y J, MENG Q L, et al. Progress in the application of Enterococcus faecium in animal husbandry[J]. Frontiers in Cellular and Infection Microbiology, 2023,13:1168189.

[2]
宋洪宁, 曾山, 刘雪娇, 等. 常见饲用乳酸菌益生作用机理及应用[J]. 中国饲料, 2023(9):63-71.

SONG H N, ZENG S, LIU X J, et al. Mechanism of action and application of commonly used lactic acid bacteria for feeding[J]. China Feed, 2023(9):63-71. (in Chinese)

[3]
NYBROE S, HORSMAN P B, KRAG K, et al. Alterations in healthy adult canine fecal microbiome and selected metabolites as a result of feeding a commercial complete symbiotic diet with Enterococcus faecium NCIMB 10415[J]. Animals, 2023, 13(1):144.

[4]
HE Y, LIU X, DONG Y Y, et al. Enterococcus faecium PNC01 isolated from the intestinal mucosa of chicken as an alternative for antibiotics to reduce feed conversion rate in broiler chickens[J]. Microbial Cell Factories, 2021, 20(1):122.

[5]
MI J L, HE T N, HU X Y, et al. Enterococcus faecium C171:modulating the immune response to acute lethal viral challenge[J]. International Journal of Antimicrobial Agents, 2023, 62(5):106969.

[6]
徐朝阳, 童庆芳, 赵玉妍, 等. 饲粮中添加屎肠球菌对肉鸡生长性能、血清生化指标、肠道形态和抗氧化功能的影响[J]. 动物营养学报, 2023, 35(6):3724-3733.

DOI

XU C Y, TONG Q F, ZHAO Y Y, et al. Effects of dietary Enterococcus faecium on growth performance,serum biochemical indices,intestinal morphology and antioxidant function of broilers[J]. Chinese Journal of Animal Nutrition, 2023, 35(6):3724-3733. (in Chinese)

[7]
YAN R N, ZENG X Q, SHEN J M, et al. New clues for postbiotics to improve host health:a review from the perspective of function and mechanisms[J]. Journal of the Science of Food and Agriculture, 2024, 104(11):6376-6387.

[8]
SALMINEN S, COLLADO M C, ENDO A, et al. The international scientific association of probiotics and prebiotics (ISAPP) consensus statement on the definition and scope of postbiotics[J]. Nature Reviews. Gastroenterology & Hepatology, 2021, 18(9):649-667.

[9]
万瑾怡, 袁建敏. 灭活植物乳杆菌对肉鸡生长性能和肠道健康的影响[J]. 中国畜牧杂志, 2023, 59(10):299-308.

WAN J Y, YUAN J M. The effect of inactivated Lactobacillus plantarum on the growth performance and intestinal health of broilers[J]. Chinese Journal of Animal Science, 2023, 59(10):299-308. (in Chinese)

[10]
李亚霖, 甄士博, 曹林, 等. 植物乳杆菌及其后生元对育成期母貂生长性能、免疫功能及肠道健康的影响[J]. 畜牧兽医学报, 2024, 55(6):2530-2539.

DOI

LI Y L, ZHEN S B, CAO L, et al. Effects of Lactobacillus plantarum and Lactobacillus plantarum postbiotics on growth performance,immune status and intestinal health of growing female minks[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(6):2530-2539. (in Chinese)

[11]
LI Y L, ZHEN S B, CAO L, et al. Effects of Lactobacillus plantarum postbiotics on growth performance,immune status,and intestinal microflora of growing minks[J]. Animals, 2023, 13(18):2958.

[12]
吴飞, 刘虎, 马树良, 等. 无抗日粮中添加后生元对断奶仔猪生长性能及肠道菌群结构的影响[J]. 中国畜牧杂志, 2021, 57(z1):253-256.

WU F, LIU H, MA S L, et al. Effects of supplemental epigenin on growth performance and intestinal flora structure of weaned piglets without resistance[J]. Chinese Journal of Animal Science, 2021, 57(z1):253-256. (in Chinese)

[13]
徐大海, 田茂金, 王霄, 等. 后生元对肉鸡生长性能、肠道发育和养分表观代谢率的影响[J]. 中国家禽, 2023, 45(9):45-51.

XU D H, TIAN M J, WANG X, et al. Effect of postbiotics on growth performance,intestinal development and apparent nutrient metabolic rate of broilers[J]. China Poultry, 2023, 45(9):45-51. (in Chinese)

[14]
CHEN Y J, MIN B J, CHO J H, et al. Effects of dietary Enterococcus faecium SF68 on growth performance,nutrient digestibility,blood characteristics and fecal noxious gas content in finishing pigs[J]. Asian-Australasian Journal of Animal Sciences, 2006, 19(3):406-411.

[15]
IZUDDIN W I, LOH T C, SAMSUDIN A A, et al. Effects of postbiotic supplementation on growth performance,ruminal fermentation and microbial profile,blood metabolite and GHR,IGF-1 and MCT-1 gene expression in post-weaning lambs[J]. BMC Veterinary Research, 2019, 15(1):315.

[16]
ZHONG Y F, WANG S S, DI H Q, et al. Gut health benefit and application of postbiotics in animal production[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):38.

DOI PMID

[17]
TEAME T, WANG A R, XIE M X, et al. Paraprobiotics and postbiotics of probiotic Lactobacilli,their positive effects on the host and action mechanisms:a review[J]. Frontiers in Nutrition, 2020,7:570344.

[18]
GUO Y M, YIN G L, HUI F, et al. Effects of dietary energy level on antioxidant capability,immune function and rectal microbiota in late gestation donkeys[J]. Frontiers in Microbiology, 2024,15:1308171.

[19]
PANG J M, ZHOU X J, YE H, et al. The high level of xylooligosaccharides improves growth performance in weaned piglets by increasing antioxidant activity, enhancing immune function,and modulating gut microbiota[J]. Frontiers in Nutrition, 2021,8:764556.

[20]
CZECH A, WOŚ K, MUSZYŃSKI S, et al. Nutritional and antioxidative benefits of dietary macroalgae supplementation in weaned piglets[J]. Animals, 2024, 14(4):549.

[21]
LI J, CHEN W N, SUN W J, et al. Effects of dietary supplementation of stimbiotics to sows on lactation performance,immune function,and anti-inflammatory and antioxidant capacities during late gestation and lactation[J]. Veterinary Sciences, 2024, 11(2):53.

[22]
徐大海, 田茂金, 史万玉. 后生元对肉鸡抗氧化功能及肝功能的影响[J]. 家禽科学, 2023, 45(4):3-8.

XU D H, TIAN M J, SHI W Y. Effects of postbiotics on antioxidant capacity and liver function of broilers[J]. Poultry Science, 2023, 45(4):3-8. (in Chinese)

[23]
殷成港, 高歌, 商谭, 等. 饲粮中添加后生元对断奶仔猪生长性能、腹泻率、抗氧化能力及粪便微生物菌群的影响[J]. 动物营养学报, 2022, 34(8):4932-4943.

DOI

YIN C G, GAO G, SHANG T, et al. Effects of dietary postbiotics on growth performance,diarrhea incidence,antioxidant capacity and fecal microbiome of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2022, 34(8):4932-4943. (in Chinese)

[24]
XU Z X, LI X J, TIAN X F, et al. Characterization of the antioxidant activities of the exopolysaccharides produced by Streptococcus thermophilus CGMCC 7.179[J]. LWT-Food Science and Technology, 2023,173:114256.

[25]
WU Q J, ZHU D D, WANG D D, et al. Effects of dietary supplementation with glutamine on the lymphocyte proliferation and intestinal immune gene expression in broiler chickens infected with Salmonella enteritidis[J]. Research in Veterinary Science, 2021,139:18-24.

[26]
CHEN P, LV H M, LIU W Y, et al. Effects of Lactobacillus plantarum HW1 on growth performance,intestinal immune response,barrier function,and cecal microflora of broilers with necrotic enteritis[J]. Animals, 2023, 13(24):3810.

[27]
YAN H, XING Q, XIAO X R, et al. Effect of Saccharomyces cerevisiae postbiotics and essential oil on growth performance and intestinal health of weanling pigs during K88 ETEC infection[J]. Journal of Animal Science, 2024,102:skae007.

[28]
BALZARETTI S, TAVERNITI V, GUGLIELMETTI S, et al. A novel rhamnose-rich hetero-exopolysaccharide isolated from Lactobacillus paracasei DG activates THP-1 human monocytic cells[J]. Applied and Environmental Microbiology, 2017, 83(3):e02702-e02716.

[29]
CUI Y J, QI S R, ZHANG W M, et al. Lactobacillus reuteri ZJ617 culture supernatant attenuates acute liver injury induced in mice by lipopolysaccharide[J]. The Journal of Nutrition, 2019, 149(11):2046-2055.

[30]
GAO K, WANG C, LIU L, et al. Immunomodulation and signaling mechanism of Lactobacillus rhamnosus GG and its components on porcine intestinal epithelial cells stimulated by lipopolysaccharide[J]. Journal of Microbiology,Immunology,and Infection, 2017, 50(5):700-713.

[31]
FAN Y, PEDERSEN O. Gut microbiota in human metabolic health and disease[J]. Nature Reviews:Microbiology, 2021, 19(1):55-71.

[32]
JI J, JIN W L, LIU S J, et al., Probiotics,prebiotics,and postbiotics in health and disease[J]. MedComm, 2023, 4(6):e420.

[33]
黄金贵, 张勇, 李方方, 等. 植物乳杆菌后生元对肉鸡生长性能、屠宰性能及肠道健康的影响[J]. 动物营养学报, 2022, 34(11):7109-7119.

DOI

HUANG J G, ZHANG Y, LI F F, et al. Effects of postbiotics Lactobacillus plantarum on growth performance,slaughter performance and intestinal health of broilers[J]. Chinese Journal of Animal Nutrition, 2022, 34(11):7109-7119. (in Chinese)

[34]
HOUTMAN T A, ECKERMANN H A, SMIDT H, et al. Gut microbiota and BMI throughout childhood:the role of Firmicutes,Bacteroidetes,and short-chain fatty acid producers[J]. Scientific Reports, 2022, 12(1):3140.

[35]
宇晓军, 李丹丹, 王路义, 等. 抗菌肽对育成期母貂生长性能、养分表观消化率及肠道菌群的影响[J]. 动物营养学报, 2022, 34(2):1194-1204.

DOI

YU X J, LI D D, WANG L Y, et al. Effects of antimicrobial peptide on growth performance,nutrient apparent digestibilities and intestinal flora of growing female minks[J]. Chinese Journal of Animal Nutrition, 2022, 34(2):1194-1204. (in Chinese)

[36]
ROSSI C C, PEREIRA M F, GIAMBIAGI-DEMARVAL M. Underrated staphylococcus species and their role in antimicrobial resistance spreading[J]. Genetics and Molecular Biology, 2020, 43(Suppl.2):e20190065.

[37]
VAN DER KOLK J H, ENDIMIANI A, GRAUBNER C, et al. Acinetobacter in veterinary medicine,with an emphasis on Acinetobacter baumannii[J]. Journal of Global Antimicrobial Resistance, 2019,16:59-71.

[38]
SHARMA V, KAUR T, BRIDLE H, et al. Antimicrobial efficacy and safety of mucoadhesive exopolymer produced by Acinetobacter haemolyticus[J]. International Journal of Biological Macromolecules, 2017,94(Pt.A):187-193.

[39]
董榕. 益生菌对肠道菌群及机体抗病的影响[J]. 畜牧兽医科技信息, 2019(12):16-17.

DONG R. The impact of probiotics on the intestinal microbiota and the body’s resistance to disease[J]. Chinese Journal of Animal Husbandry and Veterinary Medicine, 2019(12):16-17. (in Chinese)

[40]
MEA H J, YONG P V C, WONG E H. An overview of Acinetobacter baumannii pathogenesis:motility,adherence and biofilm formation[J]. Microbiological Research, 2021,247:126722.

文章导航

/