研究论文

ShRNA干扰核转录因子E2相关因子2基因表达对玉米赤霉烯酮诱导的IPEC-J2细胞凋亡和氧化应激的影响

  • 程群 , 1 ,
  • 桑艺豪 1 ,
  • 姜淑贞 2 ,
  • 侯绍金 1 ,
  • 牛现琇 3 ,
  • 杨维仁 , 2, *
展开
  • 1 青岛农业大学动物科技学院,青岛 266109
  • 2 山东农业大学动物科技学院学院,泰安 271000
  • 3 平邑县农业农村局,平邑 273300
* 杨维仁,教授,博士生导师,E-mail:

程 群(1991—),女,山东烟台人,讲师,博士,从事动物营养与饲料科学研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-10-11

  网络出版日期: 2025-04-15

基金资助

山东省自然科学基金青年基金项目(ZR2022QC030)

山东省自然科学基金面上项目(ZR2024MC124)

青岛农业大学博士启动基金(XJ2023000401)

山东省现代农业产业技术体系生猪创新团队专项资金(SDAIT-08-04)

山东省现代农业产业技术体系生猪创新团队专项资金(SDAIT-08-05)

Effects of ShRNA Interference on Nuclear Transcription Factor E2 Related Factor 2 Gene Expression on Apoptosis and Oxidative Stress Induced by Zearalenone in IPEC-J2 Cells

  • CHENG Qun , 1 ,
  • SANG Yihao 1 ,
  • JIANG Shuzhen 2 ,
  • HOU Shaojin 1 ,
  • NIU Xianxiu 3 ,
  • YANG Weiren , 2, *
Expand
  • 1 College of Animal Sciences and Technology, Qingdao Agricultural University, Qingdao 266109, China
  • 2 Shandong Provincial Key Laboratory of Animal Biotechnology and Disease Control and Prevention, College of Animal Sciences and Technology, Shandong Agricultural University, Tai’an 271000, China
  • 3 Pingyi Agricultural and Rural Bureau, Pingyi 273300, China
* professor, E-mail:

Received date: 2024-10-11

  Online published: 2025-04-15

摘要

本试验旨在通过ShRNA干扰核转录因子E2相关因子2(Nrf2)基因表达探索玉米赤霉烯酮(ZEA)诱导IPEC-J2细胞凋亡和氧化应激中Kelch样环氧氯丙烷相关蛋白1(Keap1)-Nrf2信号通路的作用。试验构建干扰Nrf2表达IPEC-J2细胞模型,分别设置空白对照组(Control组)、阴性对照组(Sh-control组)、干扰Nrf2表达转染组(Nrf2-ShRNA组),以确定Nrf2介导的信号通路对ZEA诱导的IPEC-J2细胞氧化应激的作用。当成功转染Nrf2-ShRNA的IPEC-J2细胞处于对数生长期时,分别添加10、20和40 μmol/L的ZEA(Nrf2-ShRNA+ZEA10组、Nrf2-ShRNA+ZEA20组和Nrf2-ShRNA+ZEA40组)处理36 h后收集细胞,进行相关指标测定。结果显示: 1)Nrf2-ShRNA组IPEC-J2细胞的凋亡率显著高于Control组和Sh-control组(P<0.05)。与Nrf2-ShRNA组相比较,ZEA以一定的剂量依赖性显著增加了干扰Nrf2表达的IPEC-J2细胞的凋亡率(P<0.05),表明干扰细胞Nrf2表达和高浓度ZEA均能诱导细胞凋亡。2)与Control组和Sh-control组相比,Nrf2-ShRNA组IPEC-J2细胞中总超氧化物歧化酶(T-SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性与Keap1、Nrf2、还原型辅酶/醌氧化还原酶1(NQO1)和血红素加氧酶-1(HO-1)mRNA和蛋白相对表达量均显著降低(P<0.05),丙二醛(MDA)含量和活性氧(ROS)荧光强度显著增加(P<0.05)。3)与Nrf2-ShRNA组相比,Nrf2-ShRNA+ZEA20组和Nrf2-ShRNA+ZEA40组IPEC-J2细胞中T-SOD和GSH-Px活性与Keap1 mRNA和蛋白相对表达量显著降低(P<0.05),MDA含量和Nrf2荧光强度以及Nrf2、NQO1和HO-1 mRNA和蛋白相对表达量显著增加(P<0.05)。当ZEA浓度达到40 μmol/L,IPEC-J2细胞中Nrf2和ROS的荧光强度最高。由此可见,ZEA能够诱导IPEC-J2细胞的氧化应激,促进细胞凋亡的发生,而干扰IPEC-J2细胞Nrf2的表达能够影响Keap1-Nrf2信号通路的激活,降低细胞抵抗ZEA诱导氧化应激能力,因此Keap1-Nrf2信号通路在ZEA诱导的肠道氧化应激中具有重要的保护作用。

本文引用格式

程群 , 桑艺豪 , 姜淑贞 , 侯绍金 , 牛现琇 , 杨维仁 . ShRNA干扰核转录因子E2相关因子2基因表达对玉米赤霉烯酮诱导的IPEC-J2细胞凋亡和氧化应激的影响[J]. 动物营养学报, 2025 , 37(4) : 2661 -2673 . DOI: 10.12418/CJAN2025.223

Abstract

The aim of this experiment was to explore the role of the Kelch-like epichlorohydrin-associated protein 1 (Keap1)-nuclear transcription factor E2 related factor 2 (Nrf2) signaling pathway in the induction of apoptosis and oxidative stress in IPEC-J2 cells by zearalenone (ZEN) through ShRNA interference of Nrf2 expression. An cell model that IPEC-J2 cells interfered with the expression of Nrf2 was conducted, with blank control group (Control group), negative control group (Sh-control group) and Nrf2-ShRNA transfection group (Nrf2-ShRNA group) set up to determine the role of Nrf2 mediated signaling pathway in ZEA-induced IPEC-J2 cell oxidative stress. When IPEC-J2 cells successfully transfected with Nrf2-ShRNA was in the logarithmic growth phase, ZEA with the concentrations of 10, 20 and 40 μmol/L (Nrf2-ShRNA+ZEA10 group, Nrf2-ShRNA+ZEA20 group and Nrf2-ShRNA+ZEA40 group) were added, respectively, and cells were collected for the detection of related indexes after 36 h treatment. The results showed as follows: 1) the apoptosis rate of IPEC-J2 cells in Nrf2-ShRNA group was significantly higher than that of Control group and Sh-control group (P<0.05). Compared with Nrf2-ShRNA group, ZEA significantly increased the apoptosis rate of IPEC-J2 cells (P<0.05), which interfered with Nrf2 expression in a certain dose-dependent manner, indicating that interference with Nrf2 expression and high concentration of ZEA could induce cell apoptosis. 2) Compared with the Control group and Sh-control group, the IPEC-J2 cells in Nrf2-ShRNA group showed a significant decrease in total superoxide dismutase (T-SOD), glutathione peroxidase (GSH-Px) activities, Keap1, Nrf2, coenzyme/quinone oxidoreductase 1 (NQO1) and heme oxygenase-1 (HO-1) mRNA and protein relative expression levels (P<0.05), while malondialdehyde (MDA) content and reactive oxygen species (ROS) immunofluorescence intensity increased significantly (P<0.05). 3) Compared with Nrf2-ShRNA group, the T-SOD and GSH-Px activities and the relative expression levels of Keap1 mRNA and protein in IPEC-J2 cells in Nrf2-ShRNA+ZEA20 group and Nrf2-ShRNA+ZEA40 group were significantly decreased (P<0.05), while the content of MDA, the fluorescence intensity of Nrf2, and the mRNA and protein relative expression levels of Nrf2, NQO1 and HO-1 were significantly increased (P<0.05). When ZEA concentration reached 40 μmol/L, the fluorescence intensities of Nrf2 and ROS in IPEC-J2 cells were the highest. In conclusion, ZEA can induce the oxidative stress in IPEC-J2 cell and promote the occurrence of apoptosis. Interference with the expression of Nrf2 in IPEC-J2 cells can affect the activation of the Keap1-Nrf2 signaling pathway and reduce the ability of cells to resist ZEA-induced oxidative stress. Therefore, the Keap1-Nrf2 signaling pathway plays an important protective role in ZEA-induced intestinal oxidative stress.

玉米赤霉烯酮(ZEA)又称F-2毒素,最初是从污染了禾谷镰刀菌的发霉玉米中分离得到的一种非甾体雌激素霉菌毒素[1],是自然界中常见的霉菌毒素之一,在收割和储存的谷物中极易检测到ZEA的存在。谷物是重要的饲料原料,ZEA污染的谷物被动物食用后易导致ZEA在动物体内残留,严重危害着动物和人类的健康。据报道,全球每年由ZEA造成的养猪场损失高达数百万美元,因此,ZEA导致猪饲料污染是养猪生产中不可避免的问题[2]。由于ZEA广泛存在于自然界食物链的不同阶段,近年来关于ZEA毒性机理的研究成为国内外研究学者的关注点。
小肠的主要功能是消化和分泌,同时它也是致病菌入侵的潜在途径。肠道是ZEA的重要靶点,ZEA主要在猪小肠细胞处进行代谢,导致肠道发生病理变化[3]。研究表明,ZEA可以改变肠绒毛的结构,影响猪肠上皮细胞的完整性[4],抑制仔猪小肠细胞增殖并损害抗氧化系统使细胞受损[5]。最近的研究发现,氧化应激可能是ZEA体内外毒性的主要途径之一[6]。ZEA及其代谢物可通过线粒体途径增加活性氧(ROS)水平,扰乱细胞自身的抗氧化防御系统,影响不同类型细胞的抗氧化酶活性,使脂质、蛋白质和DNA氧化,进一步导致氧化应激的产生[7-9]。作者团队前期研究证实,ZEA能够降低仔猪小肠抗氧化酶活性,诱导肠道发生显著的氧化应激,这可能是ZEA导致小肠组织损伤的重要原因[10]
研究发现,Kelch样环氧氯丙烷相关蛋白1(Keap1)-核转录因子E2相关因子2(Nrf2)信号通路是体内普遍存在的氧化还原敏感的信号转导通路,可促进一系列氧化还原调节和细胞保护基因的转录调控,该通路诱导产生的Ⅱ相解毒酶包括还原型辅酶/醌氧化还原酶1(NQO1)、血红素加氧酶-1(HO-1)和抗氧化酶如超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)等在保护细胞中发挥重要作用[11-12]。相关研究发现,Keap1-Nrf2信号通路在消化系统、循环系统、神经系统和免疫系统疾病的病理和生理学中对保护机体免受异生生物应激和氧化应激损伤起着重要作用[13-14]。ShRNA干扰是能够使特定基因特异性沉默的现象,ShRNA主要参与RNA干扰现象,以带有专一性的方式调节基因的表达[15]。近年来,运用ShRNA干扰技术研究Nrf2作用机制的研究日益增多,但有关采用ShRNA干扰技术研究Nrf2在ZEA诱导的细胞氧化应激反应中的作用机制的文献罕见。
作者团队前期研究已经证实,饲喂受ZEA污染饲粮的断奶仔猪小肠中的Nrf2信号通路被激活,并可能起到抵抗ZEA氧化应激毒性的作用[10]。然而,关于Keap1-Nrf2信号通路在ZEA诱导的小肠上皮细胞氧化应激中的作用还未阐明,其调控机制还有待进一步研究。本试验旨在采用ShRNA干扰细胞中Nrf2基因的表达,进行ZEA诱导断奶仔猪肠道氧化应激及其机制的研究,同时探索Keap1-Nrf2信号通路可能是预防和治疗ZEA诱导的肠损伤的关键靶标,为ZEA改变肠道养分吸收的分子机制的研究和我国饲料卫生标准的修订提供新的理论依据。

1 材料与方法

1.1 试验材料

猪空肠上皮细胞(IPEC-J2细胞)购买于北纳生物,资源编号为BNCC338252。细胞培养所需胎牛血清(FBS)(16000-044)、DMEM高糖培养基(11995-065)、1%青霉素-链霉素(15140-163)和胰蛋白酶-乙二胺四乙酸(EDTA)消化液(25200-056)购自赛默飞世尔科技(中国)有限公司;ZEA(Z2125,纯度≥99.0%)购自Sigma公司;细胞检测CCK-8试剂盒(C0037)购自碧云天生物技术有限公司;丙二醛(MDA)试剂盒(A003)、GSH-Px试剂盒(A005)和总超氧化物歧化酶(T-SOD)试剂盒(A001-1)均购自南京建成生物工程研究所;反转录试剂盒和实时荧光定量PCR(qPCR)试剂盒购自大连TaKaRa公司;Keap1(ab196346)、Nrf2(ab92946)、HO-1(ab13248)和NQO1(ab2346)抗体均购自Abcam公司;β-肌动蛋白(β-actin)抗体(SC-47778)购自Santa Cruz公司;其他常规试剂均为国药产品分析纯。ShRNA序列(GATGACAGTGAACTCATTAAACTCGAGTTTAATGAGTTCACTGTCATC)由广州赛业生物有限公司设计并合成。

1.2 试验设计

将ZEA溶解于二甲基亚砜(DMSO),最终以20 mmol/L的浓度避光储存于-20 ℃,用于配制不同浓度的ZEA。利用标准RNA干扰技术构建Nrf2基因的RNA干扰重组质粒,将其转染到IPEC-J2细胞,命名为干扰Nrf2表达转染组(Nrf2-ShRNA组),其阴性对照内包含随机序列,命名为阴性对照组(Sh-control组),同时设置空白对照组(Control组)。将成功干扰Nrf2表达的IPEC-J2细胞置于细胞培养板上进行培养,待细胞长至视野的80%时,加入不同浓度的ZEA(10、20、40 μmol/L,分别命名为Nrf2-ShRNA+ZEA10组、Nrf2-ShRNA+ZEA20组和Nrf2-ShRNA+ZEA40组),36 h后观察细胞生长状态与形态的变化。

1.3 试验方法

1.3.1 细胞培养

将装有IPEC-J2细胞的冻存管在37 ℃水浴锅中进行解冻复苏。待管中细胞融化后(约1.0~1.5 min),于超净台中将细胞转移到离心管中,894.6×g的离心力离心3 min收集细胞。用1 mL DMEM-高糖培养液(含有10%胎牛血清),轻轻将细胞团吹散,然后转移至6 cm培养皿中,加2 mL DMEM-高糖培养液(含有10%胎牛血清),放入培养箱中(37 ℃、5% CO2)。待细胞融合度达到80%时,进行细胞传代操作,连续传代3次之后,进行后续试验。

1.3.2 细胞活力检测

不同浓度(0、10、20、40、60、80、160 μmol/L)ZEA处理IPEC-J2细胞36 h后,每孔加入10 μL CCK8溶液,在37 ℃、5% CO2培养箱中培养1.5 h显色,接着用酶标仪检测450 nm处的吸光度,计算细胞活力。

1.3.3 细胞凋亡检测

按1.2步骤将IPEC-J2细胞进行培养和处理后,收集细胞,用胰蛋白酶消化,离心后,收集细胞沉淀;加入50 μL的1×Binding Buffer,重悬细胞;加入5 μL的7-AAD 染液,充分混匀;室温(25 ℃)、避光反应5~15 min;每管加入450 μL的1×Binding Buffer,混匀,加入1 μL Annexin-V APC混匀;室温、避光反应 5~15 min。1 h之内用流式细胞仪进行检测。

1.3.4 免疫荧光法检测IPEC-J2细胞中的Nrf2和ROS表达情况

按1.2步骤将IPEC-J2进行培养和处理后,吸除培养基,在爬好的细胞玻片上加入4%多聚甲醛,室温固定20 min,用0.5% Triton X-100室温孵育20 min,再加10%胎牛血清室温封闭30 min;吸掉封闭液,在细胞孔板里滴加按一定比例配好的一抗,湿盒内4 ℃孵育过夜;细胞复温20~30 min,加入配制好的荧光二抗(避光)细胞培养板平放于湿盒内37 ℃孵育1 h;滴加4',6-二脒基-2-苯基吲哚(DAPI)染液,避光室温孵育5~10 min,玻片稍甩干后用抗荧光淬灭封片剂封片;切片于荧光显微镜下观察并采集图像。

1.3.5 IPEC-J2细胞抗氧化指标的测定

IPEC-J2细胞中T-SOD活性使用T-SOD试剂盒[A001-1,黄嘌呤氧化酶法(羟胺法)]测定,GSH-Px活性使用GSH-Px试剂盒(A005,化学比色法]测定,MDA含量使用试剂盒(A003,比色法)测定,严格按照试剂盒说明操作。

1.3.6 IPEC-J2细胞中总RNA的提取及相关基因相对表达量的测定

按1.2步骤将IPEC-J2细胞进行培养和处理后,利用总RNA提取试剂盒提取总RNA,之后采用反转录试剂盒将RNA反转录为cDNA,反应条件:37 ℃ 35 min,85 ℃ 15 s,30个循环,4 ℃终止反应。将反转录成功的Keap1、Nrf2、NQO1、HO-1和β-actin的cDNA样品分别配制PCR反应系统。实时荧光定量PCR反应条件:95 ℃预变性30 s,95 ℃变性5 s,60 ℃退火延伸34 s,95 ℃ 15 s,60 ℃ 60 s,43个循环,60 ℃检测荧光信号。PCR所需引物序列见表1。以β-actin为内参,实时荧光定量PCR检测结果用2-△△Ct法进行数据处理,分析IPEC-J2细胞中相关基因的mRNA相对表达量。
表1 PCR所需引物序列

Table 1 Sequence of primers for PCR

基因名称
Gene names
引物序列
Primer sequences (5'—3')
登录号
Accession No.
产物大小
Product size/bp
核转录因子E2相关因子2 Nrf2 F:GAGTTAGATAGTGCCCCTGGAA
R:ACTGGAGCACTATTACCCTGAG
XM_005671981.3 159
Kelch样环氧氯丙烷相关蛋白-1 Keap1 F:GTGTGTGCTCCATGTCATGAAT
R:CTCCCCAAAGTGCATGTAGATG
NM_001114671.1 200
血红素加氧酶1 HO-1 F:AGGTCCTCAAGAAGATTGCTCA
R:CATCTCCAGAGTGTTCATTCGG
NM_001004027.1 124
还原型辅酶/醌氧化还原酶1 NQO1 F:AAAAGCACTGATCATACTGGCC
R:TTCTGGAGATGACGGGATTGAA
NM_ 001159613.1 187
β-肌动蛋白β-actin F:AGATCACTCCCCCAATGACAG
R:AGAGCAAGAGAGGCATCCTG
XM_003124280.5 183

1.3.7 免疫印迹法检测IPEC-J2细胞内目的蛋白的相对表达量

按1.2步骤将IPEC-J2进行培养和处理后,每孔加入100 μL含有1 mmol/L苯甲磺酰氟(PMSF)的RIPR强裂解液提取蛋白,加入5×十二烷基硫酸钠(SDS)上样缓冲液至终浓度为1×,然后100 ℃加热5 min,使蛋白变性。变性蛋白电泳,转膜,封闭,加入稀释的抗Nrf2(1∶1 000)、抗Keap1(1∶1 000)、抗HO-1(1∶500)、抗NQO1(1∶500)和抗β-actin(1∶1 500)。将抗体溶液加到膜上,置于孵育盒,4 ℃摇晃过夜。TBST冲洗,二抗稀释液(1∶2 000~3 000)稀释,摇床孵育2 h。在凝胶成像分析仪中进行曝光和拍照。最后,使用BandScan 5.0软件分析条带的光密度值。

1.4 统计与分析

试验数据采用SAS 9.2软件进行单因素方差分析(one-way ANOVA),用Duncan氏法进行多重比较,试验结果用“平均值±标准差”表示。以P<0.05作为差异显著性判断标准。

2 结果与分析

2.1 ZEA对IPEC-J2细胞活力的影响

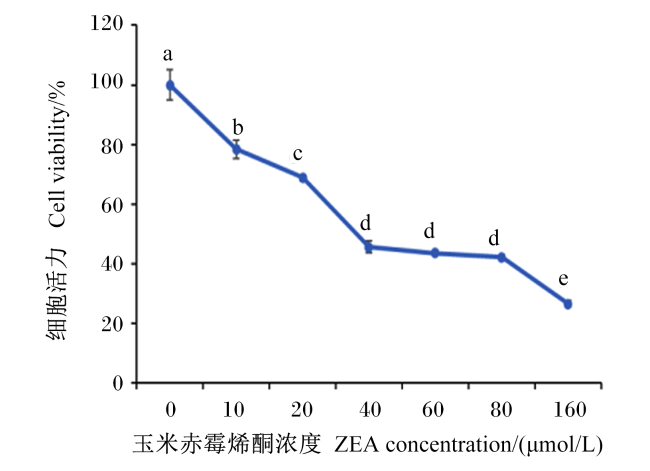
图1所示,随着ZEA浓度的增加,细胞活力显著下降(P<0.05),当ZEA达到160 μmol/L时,细胞活力降到最低,并且用40 μmol/L ZEA处理细胞36 h后,细胞活力约为50%。
图1 ZEA对IPEC-J2细胞活力的影响

数据点标注不同小写字母表示差异显著(P<0.05)。

Fig.1 Effects of ZEA on cell viability of IPEC-J2 cells

Value points with different small letters mean significant difference (P<0.05).

2.2 ZEA对干扰Nrf2表达IPEC-J2细胞凋亡的影响

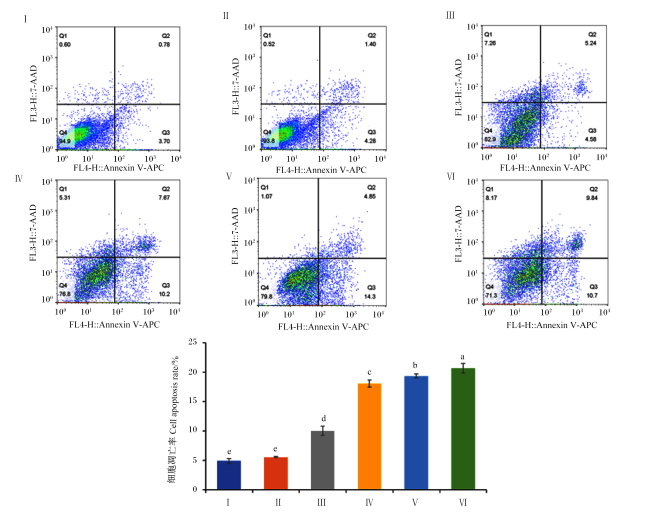
图2所示,Sh-control组细胞凋亡率与Control组相比差异不显著(P>0.05),Nrf2-ShRNA组细胞凋亡率显著高于Control组和Sh-control组(P<0.05);在干扰Nrf2表达的IPEC-J2细胞中加入不同浓度的ZEA后,与Nrf2-ShRNA组相比较,随着ZEA浓度的增加和作用时间的延长,干扰Nrf2表达的细胞凋亡率显著上升(P<0.05),并呈现一定的时间剂量依赖性,以Nrf2-ShRNA+ZEA40组的细胞凋亡率最高,这一结果表明,干扰Nrf2表达和高浓度ZEA共同诱导IPEC-J2细胞凋亡。
图2 ZEA对干扰Nrf2表达IPEC-J2细胞凋亡的影响

图中罗马数字Ⅰ~Ⅵ代表不同的组,其中Ⅰ代表Control组,Ⅱ代表Sh-control组,Ⅲ代表Nrf2-ShRNA组,Ⅳ代表Nrf2-ShRNA+ZEA10组,Ⅴ代表Nrf2-ShRNA+ZEA20组,Ⅵ代表Nrf2-ShRNA+ZEA40组。数据柱形标注不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of ZEA on apoptosis of IPEC-J2 cells after interfering with Nrf2 expression

In figure, Roman numerals Ⅰ to Ⅵ represent different groups. Among them, Ⅰ represents Control group, Ⅱ represents Sh-control group, Ⅲ represents Nrf2-ShRNA group, Ⅳ represents Nrf2-ShRNA+ZEA10 group, Ⅴ represents Nrf2-ShRNA+ZEA20 group, and Ⅵ represents Nrf2-ShRNA+ZEA40 group. Value columns with different small letters mean significant difference (P<0.05). The same as below.

2.3 ZEA对干扰Nrf2表达IPEC-J2细胞中抗氧化指标的影响

表2可知,Sh-control组细胞中T-SOD和GSH-Px活性和MDA含量与Control组相比差异不显著(P>0.05);与Control组和Sh-control组相比,干扰Nrf2表达的Nrf2-ShRNA组细胞中T-SOD和GSH-Px活性显著降低(P<0.05),MDA含量显著增加(P<0.05)。与Nrf2-ShRNA组相比较,不同浓度ZEA处理后细胞中T-SOD和GSH-Px活性显著降低(P<0.05),MDA含量显著增加(P<0.05),且3个ZEA处理组中以Nrf2-ShRNA+ZEA40组细胞中T-SOD和GSH-Px活性最低,MDA含量最高。上述结果说明,干扰细胞中Nrf2表达降低了细胞中抗氧化酶活性,ZEA的加入进一步降低了细胞中抗氧化酶的活性。由此可见,干扰Nrf2表达的细胞抵抗ZEA毒性的能力降低。
表2 ZEA对干扰Nrf2表达IPEC-J2细胞中抗氧化指标的影响

Table 2 Effects of ZEA on antioxidant indexes in IPEC-J2 cells after interfering with Nrf2 expression

项目
Items
总超氧化物歧化酶
T-SOD/(U/mL)
谷胱甘肽过氧化物酶
GSH-Px/(U/mL)
丙二醛
MDA/(nmol/mL)
1 408.68±6.09a 19.92±0.29a 4.87±0.15e
1 415.04±4.18a 19.35±0.40a 4.92±0.19e
1 293.19±2.81b 13.03±0.34b 6.35±0.11d
1 238.58±3.47c 9.22±0.35c 7.54±0.21c
1 202.88±2.23d 8.15±0.24d 8.23±0.15b
1 164.22±2.26e 6.13±0.40e 9.30±0.16a
PP-value <0.000 1 <0.000 1 <0.000 1

Ⅰ代表Control组,Ⅱ代表Sh-control组,Ⅲ代表Nrf2-ShRNA组,Ⅳ代表Nrf2-ShRNA+ZEA10组,Ⅴ代表Nrf2-ShRNA+ZEA20组,Ⅵ代表Nrf2-ShRNA+ZEA40组。同列数据肩标相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

Ⅰ represents Control group, Ⅱ represents Sh-control group, Ⅲ represents Nrf2-ShRNA group, Ⅳ represents Nrf2-ShRNA+ZEA10 group, Ⅴ represents Nrf2-ShRNA+ZEA20 group, and Ⅵ represents Nrf2-ShRNA+ZEA40 group. In the same column, values with the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05).

2.4 ZEA对干扰Nrf2表达IPEC-J2细胞中Keap1、Nrf2、NQO1和HO-1的mRNA相对表达量的影响
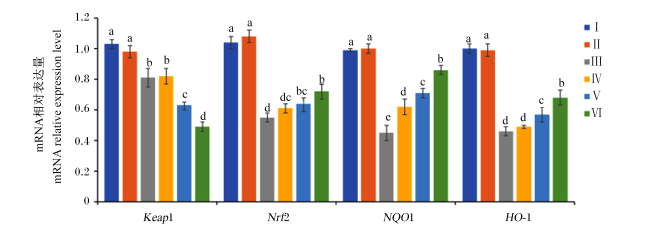
图3所示,Sh-control组细胞中Keap1、Nrf2、NQO1和HO-1的mRNA相对表达量与Control组相比差异不显著(P>0.05);与Control组和Sh-control组相比,干扰Nrf2基因的表达后(Nrf2-ShRNA组),显著降低了细胞中Keap1、Nrf2、NQO1和HO-1的mRNA相对表达量(P<0.05)。与Nrf2-ShRNA组相比,Nrf2-ShRNA+ZEA20组和Nrf2-ShRNA+ZEA40组细胞中Keap1的mRNA相对表达量显著降低(P<0.05),Nrf2、NQO1和HO-1的mRNA相对表达量显著增加(P<0.05),但是这2个ZEA处理组细胞中Nrf2、NQO1和HO-1的mRNA相对表达量仍显著低于Control组和Sh-control组(P<0.05)。与Nrf2-ShRNA组相比,Nrf2-ShRNA+ZEA10组仅NQO1的mRNA相对表达量显著增加(P<0.05)。
图3 ZEA对干扰Nrf2表达IPEC-J2细胞中Keap1、Nrf2、NQO1和HO-1的mRNA相对表达量的影响

Keap1:Kelch样环氧氯丙烷相关蛋白1 Kelch-like ECH-associated protein 1;Nrf2:核转录因子E2相关因子2 nuclear factor erythroid 2-related factor 2;NQO1:还原型辅酶/醌氧化还原酶1 NAD(P)H:quinone oxidoreductase 1;HO-1:血红素加氧酶-1 hemeoxygenase-1。

Fig.3 Effects of ZEA on mRNA relative expression levels of Keap1, Nrf2, NQO1 and HO-1 in IPEC-J2 cells after interfering with Nrf2 expression

2.5 ZEA对干扰Nrf2表达IPEC-J2细胞中Keap1、Nrf2、NQO1和HO-1的蛋白相对表达量的影响
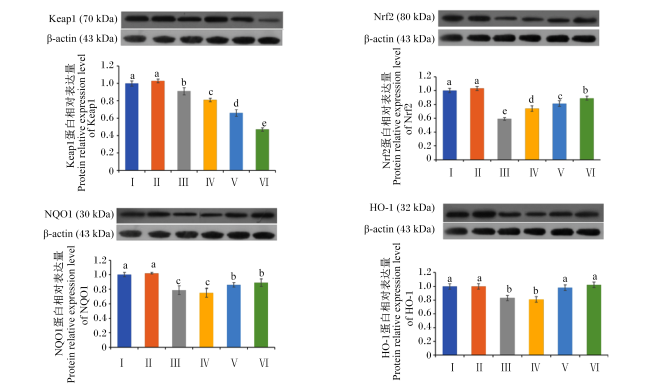
图4所示,Sh-control组细胞中Keap1、Nrf2、NQO1和HO-1的蛋白相对表达量与Control组相比差异不显著(P>0.05);与Control组和Sh-control组相比,Nrf2-ShRNA组细胞中Keap1、Nrf2、NQO1和HO-1的蛋白相对表达量显著降低(P<0.05)。与Nrf2-ShRNA组相比,3个ZEA处理组细胞中Keap1的蛋白相对表达量均显著降低(P<0.05),Nrf2的蛋白相对表达量均显著增加(P<0.05),而NQO1和HO-1的蛋白相对表达量仅在Nrf2-ShRNA+ZEA20组和Nrf2-ShRNA+ZEA40组显著增加(P<0.05)。但是,3个ZEA处理组细胞中Nrf2、NQO1和HO-1的蛋白相对表达量仍显著低于Control组和Sh-control组(P<0.05)。
图4 ZEA对干扰Nrf2表达IPEC-J2细胞中Keap1、Nrf2、NQO1和HO-1的蛋白相对表达量的影响

Keap1:Kelch样环氧氯丙烷相关蛋白1 Kelch-like ECH-associated protein 1;Nrf2:核转录因子E2相关因子2 nuclear factor erythroid 2-related factor 2;NQO1:还原型辅酶/醌氧化还原酶1 NAD(P)H:quinone oxidoreductase 1;HO-1:血红素加氧酶-1 hemeoxygenase-1;β-actin:β-肌动蛋白。

Fig.4 Effects of ZEA on protein relative expression levels of Keap1, Nrf2, NQO1 and HO-1 in IPEC-J2 cells after interfering with Nrf2 expression

2.6 ZEA对干扰Nrf2表达IPEC-J2细胞中ROS表达的影响

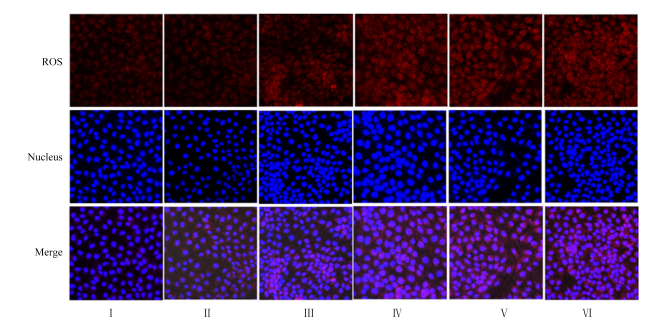
图5所示,在Control组和Sh-control组中,ROS少量表达且主要分布在细胞质中,少量分布在细胞核中。与Control组和Sh-control组相比,Nrf2-ShRNA组的ROS荧光强度明显增强,说明ROS表达量明显增加。与Nrf2-ShRNA组相比,3个ZEA处理组细胞核周围和细胞核内荧光强度显著增加,表明ROS表达量显著增加。并且,随着ZEA浓度的升高,细胞内荧光强度增加,ZEA浓度达到40 μmol/L时,细胞内ROS表达量达到最高。
图5 ZEA对干扰Nrf2表达IPEC-J2细胞中ROS表达的影响

ROS:活性氧 reactive oxygen species;Nucleus:细胞核;Merge:合并。

Fig.5 Effects of ZEA on expression of ROS in IPEC-J2 cells after interfering with Nrf2 expression

2.7 ZEA对干扰Nrf2表达IPEC-J2细胞中Nrf2表达的影响

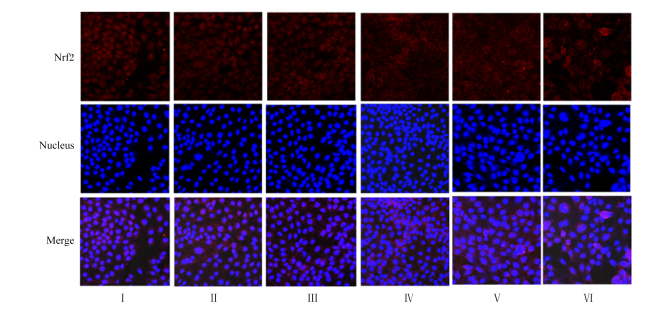
图6所示,在Control组和Sh-control组,Nrf2主要分布在细胞质,少量分布在细胞核中;与Control组和Sh-control组相比,Nrf2-ShRNA组的细胞核周围荧光强度明显降低,表明Nrf2表达量明显降低。与Nrf2-ShRNA组相比,3个ZEA处理组细胞核周围和细胞核内荧光强度显著增加,且荧光强度随着ZEA浓度的升高而增加,表明Nrf2表达量明显增加。
图6 ZEA对干扰Nrf2表达IPEC-J2细胞中Nrf2表达的影响

Nrf2:核转录因子E2相关因子2 nuclear factor erythroid 2-related factor 2;Nucleus:细胞核;Merge:合并。

Fig.6 Effects of ZEA on expression of Nrf2 in IPEC-J2 cells after interfering with Nrf2 expression

3 讨论

ZEA具有广泛的毒性作用,ZEA暴露会引起机体多系统的毒性危害,其中ZEA接触促进细胞内ROS的产生和细胞脂质过氧化,导致细胞氧化应激损伤备受关注。Nrf2是Keap1-Nrf2信号通路的关键转录因子,在抵御细胞氧化应激和外源性有毒物质方面起着重要作用[16],而干扰和沉默靶基因是研究分子信号通路的一种重要方法[17]。作者团队之前的体内和体外试验发现,ZEA诱导的肠道细胞内Nrf2是高表达的,且ZEA处理细胞后36 h是最明显的,因此我们选择了相同的ZEA浓度(10、20、40 μmol/L)和时间点(36 h)[10,18]。为了观察Nrf2对细胞的保护作用,本研究采用了ShRNA质粒转染干扰Nrf2表达的方法进一步验证Keap1-Nrf2信号通路在ZEA诱导的IPEC-J2细胞氧化应激中的重要作用。

3.1 ZEA对IPEC-J2细胞活力和细胞凋亡的影响

在以往的许多研究中均已证实ZEA可通过影响细胞活性、降低细胞活力等抑制细胞生长[19-20]。因此,为了更直观地观察到ZEA对细胞增殖得抑制作用,本研究测定不同ZEA浓度(10~160 μmol/L)下的细胞活力,结果发现随着ZEA浓度的增加,细胞活力显著下降,并呈现一定的剂量依赖性;当ZEA浓度为40 μmol/L时,细胞活力约为50%。这表明ZEA能够显著影响IPEC-J2细胞的活力,同时也为本研究的ZEA浓度的选择提供了科学依据。众所周知,细胞凋亡是细胞死亡的机制之一,而Nrf2具有明显的抗凋亡作用[21]。在本研究中,用ShRNA干扰IPEC-J2细胞中Nrf2表达后,细胞凋亡率显著增加,用不同浓度ZEA处理干扰Nrf2表达IPEC-J2细胞后,细胞凋亡率进一步显著增加。研究表明,干扰骨髓间充质干细胞Nrf2的表达后,细胞凋亡率增加[22]。同样有研究发现,运用siRNA干扰技术抑制TK6细胞Nrf2基因表达,铅染毒致TK6细胞的凋亡率增高,特异性siRNA沉默Nrf2后可以明显降低铅染毒细胞的存活能力[23]。还有研究发现,缺乏Nrf2转录因子的小鼠比野生小鼠更容易受到外来化学物质和氧化剂的毒性作用的影响[24],这与本研究结果有很多相似之处。因此,我们认为干扰Nrf2基因表达可显著破坏Nrf2的表达或传导,增加了IPEC-J2细胞对ZEA毒性的敏感性,引起细胞凋亡增加。

3.2 ZEA降低干扰Nrf2表达IPEC-J2细胞内抗氧化酶的活性

SOD和GSH-Px作为抗氧化系统的关键酶,通过多方面的作用消除氧化应激产生的自由基,减轻氧化损伤,维持细胞结构[25]。MDA是氧化应激和细胞损伤的晚期标志物,动物机体内的MDA含量越高,表明机体抗氧化能力越差[26]。有研究表明,Nrf2可诱导包括SOD等在内的抗氧化物的生成[27]。在Nrf2敲除的小鼠骨髓基质细胞中抗氧化物和Ⅱ相酶的表达均显著减少[28]。在本研究中,ShRNA干扰Nrf2表达后,IPEC-J2细胞中的抗氧化酶T-SOD和GSH-Px活性显著降低,MDA含量显著增加。当用ZEA处理干扰Nrf2表达的IPEC-J2细胞后,细胞中抗氧化酶T-SOD和GSH-Px活性进一步显著降低,MDA含量进一步显著增加。这表明,与正常细胞相比,干扰Nrf2表达的细胞抗氧化酶抵抗氧化应激的能力更弱,受ZEA的毒性影响更大,导致细胞死亡的几率更高。在转染ShRNA质粒抑制A549细胞Nrf2表达的研究中发现,干扰Nrf2表达可显著抑制谷胱甘肽基因和抗氧化剂的表达[29]。研究发现,Nrf2敲除小鼠对由对乙酰氨基酚诱导的肝细胞损伤以及肿瘤坏死因子-α(TNF-α)诱导的肝细胞凋亡更敏感,且这种高敏感性与细胞相关抗氧化酶表达的减少有关[30]。此外,Nrf2敲除小鼠的基础及诱导性抗氧化基因表达明显降低,而氧化应激损伤明显增强,提示Nrf2是调节细胞内氧化还原状态的关键基因[30-31]。还有研究发现,内源性Nrf2基因的敲除导致整体Nrf2的表达减少,降低了细胞中谷胱甘肽含量,Caski细胞凋亡增加[32],这可能也是本研究中ZEA导致干扰Nrf2表达IPEC-J2细胞凋亡率增加的原因。

3.3 ZEA诱导干扰Nrf2表达IPEC-J2细胞产生氧化应激

有报道提出ZEA能够诱导ROS产生和脂质过氧化,减少细胞增殖等,这些细胞毒性效应可能与ZEA产生的氧化应激有关[4]。在本研究中发现,ShRNA干扰IPEC-J2细胞Nrf2表达使得细胞内ROS的表达量显著增加;用ZEA处理干扰Nrf2表达的IPEC-J2细胞后,细胞内ROS的表达量进一步增加。有类似的研究发现,GH3细胞中抑制Nrf2表达能够轻微促进细胞内ROS产生,但是在T-2毒素刺激下,与不沉默Nrf2相比,沉默Nrf2能够诱导ROS水平进一步显著增加,并增加细胞对T-2毒素的敏感性[33]。在ShRNA沉默Nrf2的A549-Nrf2 ShRNA细胞中ROS水平增加,氧化应激随着外源代谢酶基因表达的整体下降而增加[29]。研究发现,抑制Nrf2通路活性会引起细胞氧化应激,产生的ROS直接或间接地损伤细胞内蛋白质、脂质、核酸等大分子物质的生理功能,是众多疾病发生发展的病理生理基础[34]。这些研究结果与本研究结果相似,表明Nrf2确实参与调控了ZEA诱导的ROS水平变化,并且ZEA能通过诱导细胞内ROS水平的增加导致细胞产生氧化应激。在干扰Nrf2表达之后,细胞抵抗ZEA的毒性能力变弱,ROS产生量增加,细胞消除ROS的能力降低,最终导致细胞死亡。

3.4 Keap1-Nrf2信号通路相关基因在ZEA诱导的干扰Nrf2表达IPEC-J2细胞氧化应激中的作用

Nrf2是一种重要的内源性抗氧化因子,在全身各组织器官均有表达,尤其在代谢和解毒组织如肝脏和肠道中高表达,因此Nrf2在调节肝脏和肠道氧化应激中起重要作用[35]。一般生理条件或非活化条件下,细胞胞浆中的Nrf2与Keap1反应形成Keap1-Nrf2配合物,限制Nrf2介导的基因表达[36-37]。在氧化应激或其他应激源刺激下,Nrf2和Keap1解偶联,Nrf2发生核转位,与小Maf蛋白形成二聚体,启动抗氧化反应元件(ARE)调控的Ⅱ相解毒酶及抗氧化酶基因表达,包括NQO1和HO-1,从而发挥抗氧化损伤的作用[36-37]。在体内研究中,我们通过ZEA诱导断奶仔猪肠道氧化应激模型评估了Nrf2基因的抗氧化应激和对小肠的保护作用及其潜在机制,研究发现ZEA能够降低仔猪小肠抗氧化酶活性,诱导肠道发生显著的氧化应激和细胞凋亡,这可能是导致小肠组织损伤的重要原因;此外,ZEA激活小肠的Nrf2信号通路,上调小肠NQO1和HO-1和GSH-Px1的表达[10]。体内研究表明,敲除Nrf2基因的小鼠肝脏对外源性毒物的抵抗力降低[38]Nrf2敲除小鼠表现出严重的协调缺陷,基因调控程序与氧化敏感性损伤,表明了Nrf2在抗氧化防御中的重要性[39]。如果Nrf2被禁用或缺失,下游抗氧化酶的表达量会降低,并且氧化应激的毒性不能被抵抗,导致细胞功能障碍、凋亡或坏死[37]。在当前研究中,干扰IPEC-J2细胞的Nrf2表达后,Nrf2、HO-1和NQO1的mRNA和蛋白相对表达量与正常细胞相比显著降低,因此,本试验结果证实,Nrf2在调控HO-1和NQO1的表达过程中起着重要作用,同时也进一步证明干扰Nrf2表达抑制了抗氧化基因表达,降低了细胞的抗氧化能力。当用ZEA处理干扰Nrf2表达的IPEC-J2细胞后,出现细胞中Nrf2、HO-1和NQO1的mRNA和蛋白相对表达量显著增加的结果,免疫荧光结果也显示ZEA能够诱导Nrf2表达显著增加。值得注意的是,不同浓度ZEA处理的细胞中Nrf2、HO-1和NQO1的mRNA和蛋白相对表达量均显著低于正常细胞。这一结果表明干扰细胞Nrf2表达能够显著抑制Keap1-Nrf2信号通路的激活,影响该信号通路对细胞的保护作用。研究发现,在转染Nrf2 ShRNA的CaSki细胞中,Nrf2/ARE依赖性的解毒酶与谷胱甘肽相关的HO-1和NQO1等酶的表达量显著降低[32]。还有研究表明,干扰牛子宫内膜上皮细胞Nrf2表达后,24 h后HO-1 mRNA的表达量显著降低,96 h后HO-1蛋白的表达量也显著下降[40]。目前我们能够获得关于ZEA对干扰或者敲除细胞Nrf2基因的影响的研究有限。本研究中,干扰Nrf2表达导致IPEC-J2细胞中Nrf2基因表达的减少,这抑制了Keap1-Nrf2信号通路的激活,降低了细胞的抗氧化能力,增加了ZEA诱导的细胞氧化应激,引起的细胞凋亡。显而易见的是,Keap1-Nrf2信号通路对动物机体来说无论是在健康还是氧化应激状态下都起着重要的作用,而在ZEA诱导的IPEC-J2细胞氧化应激中,Keap1-Nrf2信号通路的防御系统被激活并用来抵抗ZEA的毒性作用。

4 结论

① ShRNA转染质粒干扰IPEC-J2细胞中Nrf2的表达,降低了细胞抵抗ZEA诱导的氧化应激能力,但是ZEA激活了细胞中Nrf2等关键基因的表达。
② 在ZEA诱导IPEC-J2的细胞氧化应激中,Keap1-Nrf2信号通路被激活并起到了重要的保护作用。
[1]
LIU J, APPLEGATE T. Zearalenone (ZEN) in livestock and poultry:dose,toxicokinetics,toxicity and estrogenicity[J]. Toxins, 2020, 12(6):377.

[2]
陈凤鸣, 陈佳亿, 李颖慧, 等. 霉菌毒素介导的氧化应激研究进展[J]. 动物营养学报, 2019, 31(9):3944-3952.

DOI

CHEN F M, CHEN J Y, LI Y H, et al. Research progress of oxidative stress mediated by mycotoxins[J]. Chinese Journal of Animal Nutrition, 2019, 31(9):3944-3952. (in Chinese)

[3]
BULGARU C V, MARIN D E, PISTOL G C, et al. Zearalenone and the immune response[J]. Toxins, 2021, 13(4):248.

[4]
MARIN D E, PISTOL G C, NEAGOE I V, et al. Effects of zearalenone on oxidative stress and inflammation in weanling piglets[J]. Food and Chemical Toxicology, 2013,58:408-415.

[5]
苏军. 镰刀菌毒素对猪的抗营养效应及其机制研究[D]. 博士学位论文. 雅安: 四川农业大学,2008:40-48.

SU J. Anti-nutritional effects of Fusarium mycotoxins and its mechanism in weanling piglets[D]. Ph.D.Thesis. Ya’an: Sichuan Agricultural University,2008:40-48. (in Chinese)

[6]
EL GOLLI-BENNOUR E, BACHA H. Hsp70 expression as biomarkers of oxidative stress:mycotoxins’ exploration[J]. Toxicology, 2011, 287(1/3):1-7.

[7]
WANG J J, WEI Z K, HAN Z, et al. Zearalenone induces estrogen-receptor-independent neutrophil extracellular trap release in vitro[J]. Journal of Agricultural and Food Chemistry, 2019, 67(16):4588-4594.

[8]
WU J, LI J Y, WU Y, et al. Betulinic acid mitigates zearalenone-induced liver injury by ERS/MAPK/Nrf2 signaling pathways in mice[J]. Food and Chemical Toxicology, 2023,177:113811.

[9]
TATAY E, ESPÍN S, GARCÍA-FERNÁNDEZ A J, et al. Oxidative damage and disturbance of antioxidant capacity by zearalenone and its metabolites in human cells[J]. Toxicology in Vitro, 2017, 45(Pt 3):334-339.

[10]
CHENG Q, JIANG S Z, HUANG L B, et al. Zearalenone induced oxidative stress in the jejunum in postweaning gilts through modulation of the Keap1-Nrf2 signaling pathway and relevant genes[J]. Journal of Animal Science, 2019, 97(4):1722-1733.

[11]
KUBO E, CHHUNCHHA B, SINGH P, et al. Sulforaphane reactivates cellular antioxidant defense by inducing Nrf2/ARE/Prdx6 activity during aging and oxidative stress[J]. Scientific Reports, 2017, 7(1):14130.

DOI PMID

[12]
XIAO D F, YUAN D X, TAN B H, et al. The role of Nrf2 signaling pathway in Eucommia ulmoides flavones regulating oxidative stress in the intestine of piglets[J]. Oxidative Medicine and Cellular Longevity, 2019,2019:9719618.

[13]
JIANG Y, ZHOU Z, MENG Q T, et al. Ginsenoside Rb1 treatment attenuates pulmonary inflammatory cytokine release and tissue injury following intestinal ischemia reperfusion injury in mice[J]. Oxidative Medicine and Cellular Longevity, 2015,2015:843721.

[14]
KANG H J, HONG Y B, KIM H J, et al. CR6-interacting factor 1 (CRIF1) regulates NF-E2-related factor 2 (NRF2) protein stability by proteasome-mediated degradation[J]. Journal of Biological Chemistry, 2010, 285(28):21258-21268.

DOI PMID

[15]
KIM Y H, SOUMAILA ISSA M, COOPER A M W, et al. RNA interference:applications and advances in insect toxicology and insect pest management[J]. Pesticide Biochemistry and Physiology, 2015,120:109-117.

[16]
DESHMUKH P, UNNI S, KRISHNAPPA G, et al. The Keap1-Nrf2 pathway:promising therapeutic target to counteract ROS-mediated damage in cancers and neurodegenerative diseases[J]. Biophysical Reviews, 2017, 9(1):41-56.

[17]
LI Z H, RANA T M. Molecular mechanisms of RNA-triggered gene silencing machineries[J]. Accounts of Chemical Research, 2012, 45(7):1122-1131.

DOI PMID

[18]
CHENG Q, JIANG S Z, HUANG L B, et al. Zearalenone exposure affects the Keap1-Nrf2 signaling pathway and glucose nutrient absorption related genes of porcine jejunal epithelial cells[J]. Toxins, 2022, 14(11):793.

[19]
KARAMAN E F, ZEYBEL M, OZDEN S. Evaluation of the epigenetic alterations and gene expression levels of HepG2 cells exposed to zearalenone and α-zearalenol[J]. Toxicology Letters, 2020,326:52-60.

[20]
LONG M, CHEN X, WANG N, et al. Proanthocyanidins protect epithelial cells from zearalenone-induced apoptosis via inhibition of endoplasmic reticulum stress-induced apoptosis pathways in mouse small intestines[J]. Molecules, 2018, 23(7):1508.

[21]
KINNAIRD T, STABILE E, BURNETT M S, et al. Local delivery of marrow-derived stromal cells augments collateral perfusion through paracrine mechanisms[J]. Circulation, 2004, 109(12):1543-1549.

DOI PMID

[22]
龙仙萍, 邓文文, 赵然尊, 等. 干扰Nrf2基因后骨髓间充质干细胞移植对大鼠心肌梗死后心肌凋亡的影响[J]. 第三军医大学学报, 2015, 37(13):1319-1324.

LONG X P, DENG W W, ZHAO R Z, et al. Effect of silencing Nrf2 gene on myocardial apoptosis after rat myocardial infarction with bone marrow mesenchymal stem cell transplantation[J]. Journal of Third Military Medical University, 2015, 37(13):1319-1324. (in Chinese)

[23]
刘祥铨, 吴京颖, 刘雯. siRNA干扰Nrf2基因对铅染毒TK6细胞凋亡和氧化应激的影响[J]. 海南医学, 2019, 30(21):2725-2728.

LIU X Q, WU J Y, LIU W. Effect of siRNA interference with Nrf2 gene on lead-induced apoptosis and oxidative stress in TK6 cells[J]. Hainan Medical Journal, 2019, 30(21):2725-2728. (in Chinese)

[24]
KENSLER T W, WAKABAYASHI N, BISWAL S. Cell survival responses to environmental stresses via the Keap1-Nrf2-ARE pathway[J]. Annual Review of Pharmacology and Toxicology, 2007,47:89-116.

[25]
ZHOU J A, AO X, LEI Y P, et al. Bacillus subtilis ANSB01G culture alleviates oxidative stress and cell apoptosis induced by dietary zearalenone in first-parity gestation sows[J]. Animal Nutrition, 2020, 6(3):372-378.

[26]
高民, 杜瑞平, 温雅丽. 热应激对奶牛生产的影响及应对策略[J]. 畜牧与饲料科学, 2011, 32(9):59-62.

GAO M, DU R P, WEN Y L. The impact of heat stress on dairy cow production and coping strategies[J]. Animal Husbandry and Feed Science, 2011, 32(9):59-62. (in Chinese)

[27]
LIU X B, JIANG J, GUI C, et al. Angiopoietin-1 protects mesenchymal stem cells against serum deprivation and hypoxia-induced apoptosis through the PI3K/Akt pathway[J]. Acta Pharmacologica Sinica, 2008, 29(7):815-822.

[28]
ZHU H, ZHANG L, ITOH K, et al. Nrf2 controls bone marrow stromal cell susceptibility to oxidative and electrophilic stress[J]. Free Radical Biology & Medicine, 2006, 41(1):132-143.

[29]
ZHANG B, XIE C, ZHONG J, et al. A549 cell proliferation inhibited by RNAi mediated silencing of the Nrf2 gene[J]. Bio-Medical Materials and Engineering, 2014, 24(6):3905-3916.

[30]
陈宗泽, 廉姜芳. 沉默信息调节因子2相关酶类1/核因子E2相关因子2信号通路在高血压病中的抗氧化应激作用[J]. 中国循环杂志, 2018, 33(10):1035-1037.

CHEN Z Z, LIAN J F. The antioxidant stress effect of silencing information regulatory factor 2 related enzymes 1/nuclear factor E2 related factor 2 signaling pathway in hypertension[J]. Chinese Circulation Journal, 2018, 33(10):1035-1037. (in Chinese)

[31]
UNGVARI Z, BAILEY-DOWNS L, GAUTAM T, et al. Adaptive induction of NF-E2-related factor-2-driven antioxidant genes in endothelial cells in response to hyperglycemia[J]. American Journal of Physiology Heart and Circulatory Physiology, 2011, 300(4):H1133-H1140.

[32]
MA X D, ZHANG J F, LIU S J, et al. Nrf2 knockdown by shRNA inhibits tumor growth and increases efficacy of chemotherapy in cervical cancer[J]. Cancer Chemotherapy and Pharmacology, 2012, 69(2):485-494.

DOI PMID

[33]
黄德玉. T-2毒素诱导的细胞线粒体毒性作用研究[D]. 博士学位论文. 武汉: 华中农业大学,2019:89-146.

HUANG D Y. The cellular mitochondrial toxicity induced by T-2 toxin[D]. Ph.D.Thesis. Wuhan: Huazhong Agricultural University,2019:89-146. (in Chinese)

[34]
CHENG X H, SIOW R C M, MANN G E. Impaired redox signaling and antioxidant gene expression in endothelial cells in diabetes:a role for mitochondria and the nuclear factor-E2-related factor 2-Kelch-like ECH-associated protein 1 defense pathway[J]. Antioxidants & Redox Signaling, 2011, 14(3):469-487.

[35]
刘江正. 酒精性肝损伤中胰岛素信号的关键作用及机制研究[D]. 博士学位论文. 西安: 第四军医大学,2015:29-31.

LIU J Z. Research on the key role and mechanisms of insulin signaling in alcoholic liver injury[D]. Ph.D.Thesis. Xi’an: The Fourth Military Medical University,2015:29-31. (in Chinese)

[36]
鄂晓迪, 赵晓南, 赵金标, 等. 黄酮类化合物调控Keap1-Nrf2/ARE信号通路的抗氧化机制及其在畜禽生产中应用的研究进展[J]. 中国畜牧兽医, 2024, 51(7):2880-2889.

DOI

E X D, ZHAO X N, ZHAO J B, et al. Research progress on antioxidant mechanism of flavonoids regulating the Keap1-Nrf2/ARE signaling pathway and its application in livestock and poultry[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(7):2880-2889. (in Chinese)

[37]
XIAO Y, ZHANG Z W, FU Y Y, et al. GSTA3 regulates TGF-β1-induced renal interstitial fibrosis in NRK-52E cells as a component of the PI3K-Keap1/Nrf2 pathway[J]. Journal of International Medical Research, 2019, 47(11):5787-5801.

[38]
COPPLE I M, GOLDRING C E, KITTERINGHAM N R, et al. The Nrf2-Keap1 defence pathway:role in protection against drug-induced toxicity[J]. Toxicology, 2008, 246(1):24-33.

[39]
CHO H Y, JEDLICKA A E, REDDY S P M, et al. Role of NRF2 in protection against hyperoxic lung injury in mice[J]. American Journal of Respiratory Cell and Molecular Biology, 2002, 26(2):175-182.

[40]
胡修忠, 程蕾, 余婕, 等. siRNA抑制牛子宫内膜上皮细胞Nrf2基因的表达研究[J]. 中国畜牧兽医, 2019, 46(6):1567-1575.

DOI

HU X Z, CHENG L, YU J, et al. Study on inhibition of Nrf2 gene expression in bovine endometrial epithelial cells by siRNA[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(6):1567-1575. (in Chinese)

文章导航

/