研究论文

复配黄豆苷元-藤茶黄酮调控核因子E2相关因子2-Kelch样环氧氯丙烷相关蛋白1信号通路抑制叔丁基过氧化氢引起蛋鸡卵巢颗粒细胞氧化损伤

  • 鄂晓迪 , 1 ,
  • 胡友军 , 1, * ,
  • 赵晓南 1 ,
  • 程皇座 1 ,
  • 文伟 1 ,
  • 施晓丽 , 2, *
展开
  • 1 广东酸动力生物科技有限公司,清远 511500
  • 2 高原山地动物遗传育种与繁殖教育部重点实验室,贵州大学动物科学学院,贵阳 550025
* 胡友军,研究员,硕士生导师,E-mail: ;
施晓丽,教授,硕士生导师,E-mail:

鄂晓迪(1998—),女,河南南阳人,硕士,从事动物营养与分子调控研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-08-23

  网络出版日期: 2025-04-15

基金资助

国家重点研发计划(2023YFD1301203-04)

Compound Daidzein-Dihydromyricetin Regulates Nuclear Factor E2-Related Factor 2-Kelch-Like Epichlorohydrin-Associated Protein 1 Signaling Pathway and Inhibits 1-Butyl Hydroperoxide Induced Oxidative Damage in Ovarian Granulosa Cells of Laying Hens

  • E Xiaodi , 1 ,
  • HU Youjun , 1, * ,
  • ZHAO Xiaonan 1 ,
  • CHENG Huangzuo 1 ,
  • WEN Wei 1 ,
  • SHI Xiaoli , 2, *
Expand
  • 1 Guangdong Nuacid Nutrition Co., Ltd., Qingyuan 511500, China
  • 2 Key Laboratory of Genetic Breeding and Reproduction in the Plateau Mountain Region, Ministry of Education, College of Animal Science, Guizhou University, Guiyang 550025, China
* HU Youjun, professor, E-mail: ;
SHI Xiaoli, professor, E-mail:

Received date: 2024-08-23

  Online published: 2025-04-15

摘要

本试验旨在研究复配黄豆苷元-藤茶黄酮(DA-DHM)是否通过介导核因子E2相关因子2(Nrf2)-Kelch样环氧氯丙烷相关蛋白1(Keap1)信号通路来缓解叔丁基过氧化氢(TBHP)引起的蛋鸡卵巢颗粒细胞(GCs)氧化损伤。以蛋鸡卵巢GCs为研究对象,利用不同浓度TBHP(0、200、400、600、800 μmol/L)分别处理细胞12和24 h,利用CCK-8法检测细胞活力,确定TBHP的浓度和时间。试验分为4个组:C组在M199基础培养基处理24 h;T1组在含400 μmol/L的TBHP培养基处理12 h;T2组为在含10 ng/mL的DA-DHM培养基处理12 h后,更换含400 μmol/L的TBHP培养基处理12 h;T3组在含10 μmol/L的ML385培养基处理12 h后,更换含10 ng/mL的DA-DHM培养基处理12 h,再更换含400 μmol/L的TBHP培养基处理12 h。检测细胞活性、活性氧(ROS)含量、线粒体膜电位、钙离子(Ca2+)浓度以及抗氧化相关基因mRNA的相对表达量。结果表明: 1)TBHP的最佳造模剂量和时间分别为400 μmol/L和12 h。2)与C组相比,T1组GCs内ROS含量、Ca2+浓度和Keap1的mRNA的相对表达量显著升高(P<0.05),细胞线粒体膜电位和Nrf2、过氧化氢酶(CAT)、超氧化物歧化酶1(SOD1)和谷氨酸半胱氨酸连接酶催化亚基(GCLC)的mRNA的相对表达量显著降低(P<0.05)。与T1组相比,T2组GCs内ROS含量、Ca2+浓度和Keap1的mRNA的相对表达量显著降低(P<0.05),线粒体膜电位和Nrf2、SOD1、谷氨酸半胱氨酸连接酶修饰亚基(GCLM)的mRNA的相对表达量显著升高(P<0.05)。与T2组相比,T3组GCs内Nrf2、CATSOD1、GCLMGCLC的mRNA相对表达量显著降低(P<0.05),Keap1的mRNA相对表达量显著提高(P<0.05)。综上所述,DA-DHM能够缓解TBHP引起的蛋鸡卵巢GCs氧化应激损伤,其潜在机制可能是通过调控Nrf2-Keap1信号通路上下游基因的表达,从而减轻GCs的氧化应激和线粒体损伤,并抑制细胞凋亡。

本文引用格式

鄂晓迪 , 胡友军 , 赵晓南 , 程皇座 , 文伟 , 施晓丽 . 复配黄豆苷元-藤茶黄酮调控核因子E2相关因子2-Kelch样环氧氯丙烷相关蛋白1信号通路抑制叔丁基过氧化氢引起蛋鸡卵巢颗粒细胞氧化损伤[J]. 动物营养学报, 2025 , 37(4) : 2674 -2683 . DOI: 10.12418/CJAN2025.224

Abstract

This study aimed to explore whether the compound daidzein-daxanthin (DA-DHM) relieved 1-butyl hydroperoxide (TBHP) induced oxidative damage in ovarian granulosa cells (GCs) of laying hens by mediating nuclear factor E2-related factor 2 (Nrf2)- Kelch-like epichlorohydrin-associated protein 1 (Keap1) signaling pathway. Taking ovarian GCs of laying hens as the research subjects, different concentrations of TBHP (0, 200, 400, 600 and 800 μmol/L) were used to treat cells for 12 and 24 h, respectively. The cell viability was detected using the CCK-8 method, to determine the concentration and time of TBHP. The experiment was divided into 4 groups: group C was treated with M199 basal medium for 24 h; group T1 was treated with medium containing 400 μmol/L TBHP for 12 h; group T2 was treated with medium containing 10 ng/mL DA-DHM for 12 h, and the medium containing 400 μmol/L TBHP was replaced for 12 h; group T3 was treated with medium containing 10 μmol/L ML385 for 12 h, and the medium containing 10 ng/mL DA-DHM was replaced for 12 h, and the medium containing 400 μmol/L TBHP was replaced again for 12 h. The cell viability, reactive oxygen species (ROS) content, mitochondrial membrane potential, calcium ion (Ca2+) concentration and mRNA relative expression levels of antioxidant related genes were detected. The results showed as follows: 1) the optimal modeling dose and time for TBHP were 400 μmol/L and 12 h, respectively. 2) Compared with group C, the ROS content, Ca2+ concentration and Keap1 mRNA relative expression level in GCs of group T1 were significantly increased (P<0.05), and the mitochondrial membrane potential and mRNA relative expression levels of Nrf2, catalase (CAT), superoxide dismutase 1 (SOD1) and glutamate cysteine ligase catalytic subunit (GCLC) were significantly decreased (P<0.05). Compared with group T1, the ROS content, Ca2+ concentration and Keap1 mRNA relative expression level in GCs of group T2 were significantly decreased (P<0.05), and the mitochondrial membrane potential and mRNA relative expression levels of Nrf2, SOD1 and glutamate cysteine ligase modifier subunit (GCLM) were significantly increased (P<0.05). Compared with group T2, mRNA relative expression levels of Nrf2, CAT, SOD1, GCLM and GCLC in GCs of group T3 were significantly decreased (P<0.05), and the Keap1 mRNA relative expression level was significantly increased (P<0.05). To sum up, the DA-DHM can alleviate the oxidative stress damage in ovarian GCs of laying hens caused by TBHP, the possible mechanism is to alleviate the oxidative stress and mitochondrial damage of GCs and inhibit apoptosis by regulating the upstream and downstream genes expression of the Nrf2-Keap1 signaling pathway.

卵巢是母畜生殖系统的重要组成部分,颗粒细胞(granulosa cells,GCs)是卵巢中最大的细胞群,对卵母细胞发育和成熟起重要作用,因此,GCs成为研究雌性动物生殖调控的重要细胞模型[1]。GCs的氧化应激和衰老是导致卵巢功能降低的重要因素[2]。氧化应激通常发生在机体受到外界因素影响或自身生理活动调节紊乱时,此时细胞内产生的大量氧自由基无法及时清除,导致氧化与抗氧化之间的动态平衡被打破,进而引起细胞炎症反应,最终造成氧化损伤[3]。黄酮类化合物以其卓越的抗氧化能力而著称,研究表明,黄豆苷元(daidzein,DA)不仅具有雌激素样作用,还在抗氧化、降低胆固醇和抗肿瘤等方面展现出广泛的生物学活性[4-6]。藤茶黄酮(dihydromyricetin,DHM)具有抑菌、降血糖、降血脂和抗氧化等多种功能[7-9]。DA和DHM的协同作用不仅能够发挥雌激素效应,还具有抗氧化、抗炎、降血脂的效果,有助于提高机体的抗氧化能力,减少炎症反应,并在一定程度上延缓机体老化。研究已经证实,黄酮类化合物可以通过激活核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)-Kelch样环氧氯丙烷相关蛋白1(Kelch-like epichlorohydrin-associated protein 1,Keap1)/抗氧化反应元件(antioxidant response element,ARE)信号通路,从而增强机体的抗氧化能力和免疫力[10-11]
在本研究中,使用氧化剂过氧叔丁醇(1-butyl hydroperoxide,TBHP)来建立蛋鸡卵巢GCs的氧化应激模型,并通过添加复配的DA和DHM(DA-DHM)来探究其对氧化损伤蛋鸡卵巢GCs的抗氧化效果。此外,还使用Nrf2信号通路抑制剂进行干预,以探究DA-DHM提高产蛋后期蛋鸡卵巢GCs抗氧化能力的作用机制。

1 材料与方法

1.1 试验材料

主要材料:DA(纯度99%)、DHM(纯度98%)、1×磷酸盐缓冲液(PBS)干粉(P1010-2,北京索莱宝科技有限公司)、细胞基础培养基M199(PM150610,武汉普诺赛生命科技有限公司)、Ⅱ型胶原酶(C6885,Sigma公司,美国)、抗体卵泡刺激素受体(FSHR)22665-1-活化蛋白(AP)、抗体bs-0295G-异硫氰酸荧光素(FITC)、抑制剂ML385(HY-10052,Med Chem Express公司,美国)、线粒体膜电位检测试剂盒(JC-1)(KTA4001,亚科因生物技术有限公司)、Fluo-4钙离子检测试剂盒(KTA7010,亚科因生物技术有限公司)。
主要仪器:超净工作台(北京斯尔福仪器设备有限公司)、倒置荧光显微镜(Sigma公司,美国)、梯度PCR仪(Thermo Fisher公司,美国)、高速离心机(Beckman公司,美国)、核酸浓度测定仪(Thermo公司,美国)、实时定量PCR仪(Bio-Rad公司,美国)、微量移液枪(Eppendorf公司,德国)、超纯水分离系统(Labconco公司,美国)、LDZX-50KBS型立式压力蒸汽灭菌锅(上海申安医疗器械厂)、电子天平(江苏海门其林贝尔公司)、恒温水浴锅(北京科学仪器厂)、解剖取材器具(北京广达恒益科技有限公司)、二氧化碳(CO2)培养箱(Thermo公司,美国)。

1.2 试验设计

选用健康状态良好和生产性能相似的76周龄京粉1号蛋鸡,提取蛋鸡卵巢GCs进行试验,利用不同浓度TBHP(0、200、400、600、800、1 000 μmol/L)分别处理12和24 h,利用CCK-8法检测细胞活力,确定TBHP处理细胞的浓度和时间。试验分为4个组:C组在基础培养基处理24 h;T1组在含400 μmol/L的TBHP培养基处理12 h;T2组在含10 ng/mL的DA-DHM培养基处理12 h后,更换含400 μmol/L的TBHP培养基处理12 h;T3组在含10 μmol/L的ML385培养基处理12 h后,更换含10 ng/mL的DA-DHM培养基处理12 h,再更换含400 μmol/L的TBHP培养基处理12 h。随后,收集细胞检测ROS含量、线粒体膜电位水平和钙离子(Ca2+)浓度,并采用实时荧光定量PCR(RT-PCR)检测氧化通路因子Nrf2、Keap1、过氧化氢酶(catalase,CAT)、超氧化物歧化酶1(superoxide dismutase 1,SOD1)、谷氨酸半胱氨酸连接酶修饰亚基(glutamate cysteine ligase modifier subunit,GCLM)、谷氨酸半胱氨酸连接酶催化亚基(glutamate cysteine ligase catalytic subunit,GCLC)的基因表达。

1.3 试验方法

1.3.1 蛋鸡卵巢GCs的分离及原代培养

操作步骤:1)产蛋后期的京粉1号蛋鸡,颈静脉放血致死,剖腹并取出卵泡,置于盛有灭菌PBS的烧杯中;2)进入细胞房,将卵泡转移至有PBS的培养皿中,分层;3)剪碎颗粒层组织并移至50 mL离心管中,加入Ⅱ型胶原酶消化,终浓度控制为0.1%;4)在37 ℃水浴锅中消化1~3 min,轻微振荡;5)消化结束后立即加入等体积含血清冷的M199基础培养基,终止反应;6)200目滤器过滤,收集滤液,移入15 mL离心管中,100×g离心5 min,弃上清,加入含10%胎牛血清培养基重悬;7)进行细胞计数,铺板。

1.3.2 GCs鉴定

FSHR免疫化学染色鉴定GCs:细胞接种于细胞板上6孔板,培养24 h生长融合到85%,PBS洗涤3次,5 min/次。用4%多聚甲醛室温固定20 min,1 mL/孔,PBS洗3次,5 min/次。0.5% Triton X-100,20 min,PBS洗3次,5 min/次。5% BSA室温封闭30 min,一抗(FSHR 22665-1-AP 1∶200,兔抗)4 ℃孵育过夜,1~2 mL/孔,PBS洗3次,5 min/次。二抗(bs-0295G-FITC,1∶500,兔抗)37 ℃避光孵育1 h。PBS洗3次,5 min/次,4',6-二脒基-2-苯基吲哚(DAPI)染色,PBS洗2次后荧光显微镜观察拍照。

1.3.3 细胞活性检测

将GCs细胞接种于96孔板,密度为1×10⁴个/孔,置于37 ℃、体积分数为5%的CO2的培养箱中,用含5%胎牛血清的M199培养基培养。当细胞密度达到80%时,弃去培养液,用PBS洗2遍后加入含0(对照组)、200、400、600、800 μmol/L TBHP的培养液中培养12和24 h,弃去培养液,每孔再加入100 μL维持培养基和10 μL CCK-8试剂后继续培养3 h,用酶标仪测定各孔450 nm的吸光度,计算细胞活力,筛选TBHP处理细胞的浓度。

1.3.4 细胞ROS含量检测

在96孔细胞培养板中加入100 μL细胞悬液,在悬液四周添加PBS溶液,设置空白孔6个。待96孔板内细胞长至80%,分为C组、T1组和T2组,每组6个复孔。C组在基础培养基处理24 h;T1组在含400 μmol/L的TBHP培养基处理12 h;T2组在含10 ng/mL的DA-DHM培养基处理12 h,更换含400 μmol/L的TBHP培养基处理12 h。随后将处理液吸除,37 ℃预温的PBS洗涤1次,将二氯二氢荧光素-乙酰乙酸酯(DCFH-DA)探针加入无血清培养基中,一般按照1∶1 000用无血清培养液稀释DCFH-DA(终浓度为10 μmol/L)。去除处理液后,每孔加入100 μL稀释好的DCFH-DA。设立阳性对照孔和阴性对照孔,阳性对照孔:己加入探针的细胞,同时加入活性氧供氢体诱导细胞;阴性对照孔:不加探针,只加入培养基的细胞。37 ℃孵育细胞30 min。PBS或无血清培养基清洗2遍,去除调多余的DCFH-DA,减少误差。试验重复3次。使用荧光倒置显微镜观察拍照,用ImageJ作图。

1.3.5 细胞线粒体膜电位测定

将GCs接种到24孔细胞培养板中,分为3个组,每组3个重复,分组同1.3.3。细胞处理结束后,冷PBS冲洗细胞2遍,加入JC-1处理液,37 ℃避光孵育15~20 min,JC-1缓冲液冲洗2遍,倒置荧光显微镜下观察线粒体膜电位,用ImageJ作图。试验重复3次。线粒体膜电位的损失用JC-1聚合体(红光)与单体(绿光)荧光强度比值降低来表示,线粒体膜电位降低是细胞凋亡的表现。

1.3.6 细胞Ca2+浓度检测

将GCs接种到24孔细胞培养板中,分为3个组,每组3个重复,分组同1.3.3。根据试验需要处理细胞后,去上清PBS清洗3次。按照试剂盒说明书,每孔加入试剂盒里提供的Rhod-2/AM(钙离子荧光探针),加入量以覆盖细胞为准,充分混匀之后,在37 ℃避光培养30 min,以进行荧光探针装载,然后除去Rhod-2/AM工作液,用不含探针缓冲液洗涤细胞3次以充分去除残留的Rhod-2/AM工作液。然后加入缓冲液覆盖细胞。再将细胞放入37 ℃培养箱孵育20~30 min,以确保AM体在细胞内的完全去酯化作用,孵育期间Rhod-2/AM可透过细胞膜进入细胞内,孵育结束后用PBS清洗3遍。试验重复3次。最后用倒置荧光显微镜下观察并拍照,用ImageJ作图。

1.3.7 氧化通路因子基因表达检测

将GCs接种到24孔细胞培养板中,分为4个组,每组3个重复。C组在基础培养基处理24 h;T1组在含400 μmol/L的TBHP培养基处理12 h;T2组为在含10 ng/mL的DA-DHM培养基处理12 h,更换含400 μmol/L的TBHP培养基处理12 h;T3组在含10 μmol/L的ML385培养基处理12 h后,更换含10 ng/mL的DA-DHM培养基处理12 h后,再更换含400 μmol/L的TBHP培养基处理12 h。试验结束收集细胞样品,根据翌圣生物科技(上海)股份有限公司RT-PCR试剂盒(货号1184ES50)进行RT-PCR测定,测定仪器为StepOnePlus,试验具体步骤为:第1步预变性,95 ℃,5 min;第2步PCR反应循环40次,95 ℃变性10 s,60 ℃退火/延伸30 s。基因引物由苏州金唯智生物工程公司合成,引物信息见表1。试验所得数据使用2-ΔΔCt法计算mRNA相对表达量。
表1 引物信息

Table 1 Primer information

基因
Genes
引物序列
Primer sequences
(5'—3')
引物长度
Product
length/bp
GenBank登录号
GenBank accession
number
超氧化物歧化酶1
SOD1
F:GCTTGTGGTGTAATTGGAAT
R:AGACAGCAGAGTAGTAATGAG
159 NM_205064.2
核因子E2相关因子2
Nrf2
F:GGTGACACAGGAACAACA
R:AAGTCTTATCTCCACAGGTAG
223 XM_046921130.1
Kelch样环氧氯丙烷相关蛋白1
Keap1
F:CATCGGCATCGCCAACTT
R:TGAAGAACTCCTCCTGCTTGGA
113 XM_025145847.1
谷氨酸半胱氨酸连接酶修饰亚基
GCLM
F:GCTGCTAACTCACAATGACC
R:TGCATGATATAGCCTTTGGAC
174 NM_001007953.2
谷氨酸半胱氨酸连接酶催化亚基
GCLC
F:AGGCTATGTGTCCGATATTG
R:GTTGTTCTTCAGTGGCTCTA
100 XM_046915268.1
过氧化氢酶
CAT
F:CACTGTTGCTGGAGAATCT
R:GGCTATGGATGAAGGATGG
161 NM_001031215.2
甘油醛-3-磷酸脱氢酶
GAPDH
F:GCCCAGAACATCATCCCA
R:CGGCAGGTCAGGTCAACA
137 NM_204305.1

1.4 数据统计分析

整理后的数据使用SPSS 20.0软件进行单因素方差分析(one-way ANOVA),差异显著者进行Duncan氏法检验。使用GraphPad Prism 8软件制作图片。P>0.05表示差异不显著,P<0.05表示差异显著。

2 结果与分析

2.1 GCs的鉴定

图1所示,通过GCs抗体FSHR孵育染色后,判断分离细胞是否为GCs。免疫荧光检测通过显微镜观察发现FSHR在分离的细胞中高表达,证明该细胞为GCs。
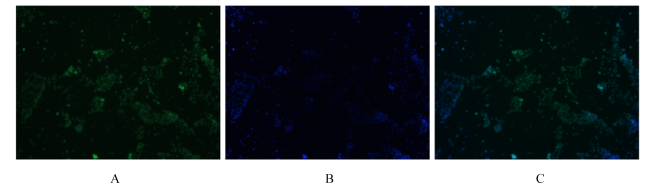
图1 GCs的鉴定

A:细胞质FSHR间接免疫荧光染色(绿色);B:细胞核用DAPI染色(蓝色);C:FSHR与DAPI组合。

Fig.1 GCs identification (5×)

A: the indirect immunofluorescence staining of FSHR in the cytoplasm (green); B: the cell nucleus stained with DAPI (blue); C: the combination of FSHR and DAPI.

2.2 TBHP对蛋鸡卵巢GCs活力的影响

图2所示,TBHP处理12 h时,随着TBHP浓度(0~600 μmol/L)的增加,GCs活力显著降低(P<0.05);当TBHP浓度为600 μmol/L时,GCs活力低于50%;当TBHP浓度为400 μmol/L时,GCs活力降至60%左右。TBHP处理24 h时,随着TBHP浓度(0~600 μmol/L)的增加,GCs活力显著降低(P<0.05);当TBHP浓度为400 μmol/L时,GCs活力降至50%以下。综上所述,400 μmol/L的TBHP处理12 h,GCs活力降至60%左右,后续选用400 μmol/L的TBHP处理GCs细胞。
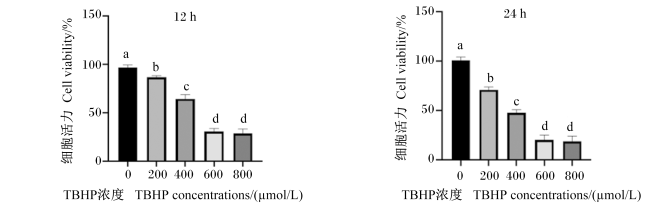
图2 TBHP对蛋鸡卵巢GCs活力的影响

据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of TBHP on GCs viability in ovarian of laying hens

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.3 DA-DHM对蛋鸡卵巢GCs内ROS含量的影响

图3所示,与C组相比,T1组GCs内ROS含量显著升高(P<0.05);与T1组相比,T2组GCs内ROS含量显著降低(P<0.05)。
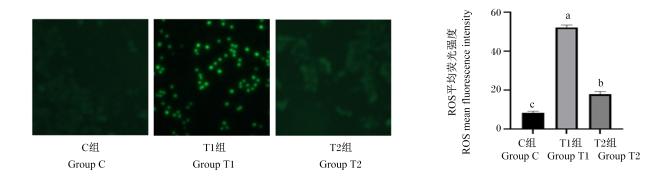
图3 DA-DHM对蛋鸡卵巢GCs内ROS含量的影响

Fig.3 Effects of DA-DHM on content of ROS in ovarian GCs of laying hens (10×)

2.4 DA-DHM对蛋鸡卵巢GCs线粒体膜电位的影响

图4所示,与C组相比,T1组GCs线粒体膜电位显著降低(P<0.05);与T1组相比,T2组GCs线粒体膜电位显著升高(P<0.05)。
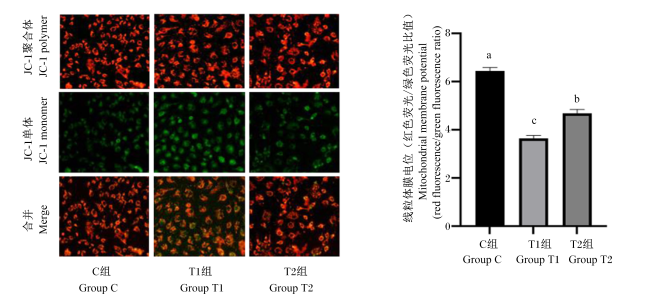
图4 复配DA-DHM对蛋鸡卵巢GCs线粒体膜电位的影响

Fig.4 Effects of DA-DHM on mitochondrial membrane potential in ovarian GCs of laying hens (20×)

2.5 DA-DHM对蛋鸡卵巢GCs内Ca2+浓度的影响

图5所示,与C组相比,T1组GCs内Ca2+浓度显著升高(P<0.05);与T1组相比,T2组GCs内Ca2+浓度显著降低(P<0.05)。
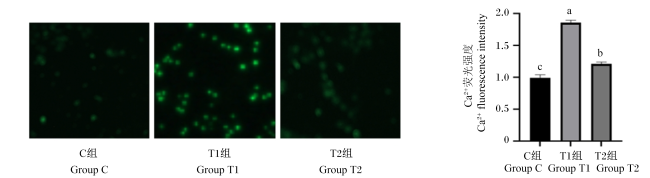
图5 DA-DHM对蛋鸡卵巢GCs内Ca2+浓度的影响

Fig.5 Effects of DA-DHM on content of Ca2+ in ovarian GCs of laying hens (10×)

2.6 DA-DHM对蛋鸡卵巢GCs内抗氧化相关基因表达的影响

图6所示,与C组相比,T1组GCs内Nrf2、CATSOD1和GCLC的mRNA相对表达量显著降低(P<0.05),Keap1的mRNA相对表达量显著升高(P<0.05)。与T1组相比,T2组GCs内Nrf2、SOD1、GCLM的mRNA相对表达量显著提高(P<0.05),Keap1的mRNA相对表达量显著降低(P<0.05)。与T2组相比,T3组GCs内Nrf2、CATSOD1、GCLMGCLC的mRNA相对表达量显著降低(P<0.05),Keap1的mRNA相对表达量显著提高(P<0.05)。
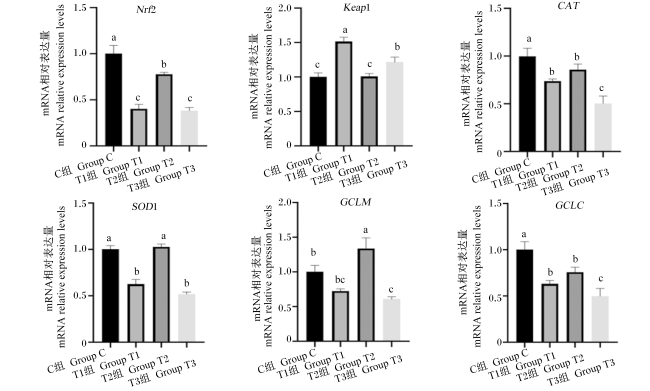
图6 DA-DHM对蛋鸡卵巢GCs内抗氧化相关基因表达的影响

Nrf2:核因子E2相关因子2 nuclear factor E2-related factor 2;Keap1:Kelch样环氧氯丙烷相关蛋白1 Kelch-like epichlorohydrin-associated protein 1;CAT:过氧化氢酶 catalase;SOD1:超氧化物歧化酶1 superoxide dismutase 1;GCLM:谷氨酸半胱氨酸连接酶修饰亚基 glutamate cysteine ligase modifier subunit;GCLC:谷氨酸半胱氨酸连接酶催化亚基 glutamate cysteine ligase catalytic subunit。

Fig.6 Effects of DA-DHM on expression of antioxidant-related genes in ovarian GCs of laying hens

3 讨论

3.1 DA-DHM对蛋鸡卵巢GCs氧化损伤的缓解作用

适量的ROS对于维持正常的细胞功能和调节信号传导具有重要作用,当ROS生成过量或清除能力不足时,会导致细胞氧化应激[12-13]。大量ROS聚集在卵细胞内,导致卵母细胞线粒体形态和功能改变,进而影响ATP的合成,引发许多疾病[3]。王萱等[14]研究发现,DA可以提高过氧化氢(H2O2)诱导的衰老H9c2细胞中总抗氧化能力和超氧化物歧化酶(SOD)的活性,降低丙二醛(MDA)含量及细胞内ROS含量,维持线粒体膜电位稳定。本研究发现,DA-DHM可以改善TBHP氧化应激对细胞造成的损伤,降低细胞内ROS含量。线粒体膜电位与细胞凋亡息息相关,它反映线粒体的活性,在氧化还原平衡、信号传导和代谢中起主要作用,卵母细胞中线粒体膜电位降低会造成卵母细胞异常发育[15-16]。氧化应激引起线粒体膜电位降低,具体表现为JC-1单体增强[17]。细胞凋亡正常的细胞线粒体膜电位高,线粒体内JC-1聚集体的浓度高,红色荧光增强,当细胞发生损伤时,线粒体膜电位下降,线粒体内JC-1呈单体形式,发绿色荧光。本研究结果也表明,DA-DHM可以改善TBHP损伤GCs降低线粒体膜电位的水平。Ca2+是细胞内重要的第二信使,在细胞正常代谢中发挥重要作用。ROS导致Ca2+稳态破坏,线粒体通透性转移孔开放,线粒体裂变过度,最终导致细胞凋亡[18]。由此可见,ROS大量生成和细胞内Ca2+浓度相关。本研究结果发现,TBHP可以显著提高细胞内Ca2+浓度,添加DA-DHM可以降低细胞内Ca2+浓度。因此,DA-DHM可以降低细胞内ROS含量,缓解细胞发生氧化应激和炎症反应及引起的线粒体功能紊乱,降低细胞内Ca2+浓度,对在细胞生物反应中发挥积极作用。

3.2 DA-DHM对蛋鸡卵巢GCs的抗氧化的影响机制

Nrf2是一种氧化还原敏感转录因子,通过转录激活许多含有ARE的基因来调节细胞内抗氧化剂和二相代谢酶[19]。Nrf2作为重要的抗氧化因子,通常状况下会在细胞质内与Keap1形成复合物。当氧化应激发生时,此复合物解离,Nrf2在细胞核内与ARE结合来促进下游抗氧化因子,如SOD1和CAT等抗氧化酶及GCLCGCLM的转录激活[20-21]。Keap1已被鉴定为Nrf2的胞质结合蛋白,它与Keap1的Kelch结构域相关,在正常生理条件下,Keap1与Nrf2在细胞质中结合,Nrf2不断地泛素化并随着蛋白酶体降解[22]。本试验中,TBHP处理GCs内Nrf2、SOD1、CATGCLMGCLC的基因表达下调,Keap1的基因表达上调,说明TBHP刺激后,细胞内迅速累积的ROS会抑制Nrf2信号通路(包括Nrf2及其调控的下游基因)的抗氧化能力。研究表明,黄酮类化合物可以通过调控Nrf2-Keap1/ARE信号通路达到保护细胞免受氧化应激的影响[23-24]。本研究发现,添加DA-DHM处理GCs后,Nrf2的基因表达上调,Keap1的基因表达下调,表明DA-DHM可能是激活了GCs的Nrf2信号通路;此外,参与抗氧化防御系统的Nrf2调节下游基因SOD1和GCLM的基因表达也上调。进一步试验,结果发现DA-DHM可以缓解TBHP引起的GCs内Nrf2、SOD1、CATGCLMGCLC基因表达下调,用Nrf2信号路抑制剂ML385进行干预后,DA-DHM缓解氧化应激的效果被抑制。综合以上结果发现,DA-DHM作为一种有效的饲料添加剂通过调控Nrf2信号通路来逆转氧化应激对蛋鸡GCs的氧化损伤。

4 结论

TBHP处理可以导致蛋鸡卵巢GCs的ROS和Ca2+聚集,降低细胞线粒体膜电位,引起GCs凋亡,而添加DA-DHM可以通过上调Nrf2信号通路下游抗氧化基因的表达,抑制Keap1的基因表达上调,达到缓解细胞凋亡和氧化应激的发生,对TBHP处理导致的蛋鸡卵巢GCs氧化应激具有一定的保护作用。
[1]
MATSUDA F, INOUE N, MANABE N, et al. Follicular growth and atresia in mammalian ovaries:regulation by survival and death of granulosa cells[J]. The Journal of Reproduction and Development, 2012, 58(1):44-50.

[2]
史薇, 刘敏, 王智超, 等. 新加苁蓉菟丝子汤经SIRT1/PGC-1α信号通路促进线粒体生物合成以修复卵巢颗粒细胞损伤的研究[J]. 世界科学技术-中医药现代化, 2024, 26(5):1269-1278.

SHI W, LIU M, WANG Z C, et al. Xin Jia congrong tusizi decoction improves mitochondrial biogenesis of ovarian granulosa cells injury via SIRT1/PGC-1α signaling pathway[J]. World Science and Technology-Modernization of Traditional Chinese Medicine, 2024, 26(5):1269-1278. (in Chinese)

[3]
孟亚轩, 刘彦, 王晶, 等. 氧化应激对母畜卵巢功能影响的研究进展[J]. 畜牧兽医学报, 2024, 55(7):2825-2835.

DOI

MENG Y X, LIU Y, WANG J, et al. Research progress in the effect of oxidative stress on ovarian function in female livestock[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(7):2825-2835. (in Chinese)

DOI

[4]
LI Y P, JIANG X R, CAI L, et al. Effects of daidzein on antioxidant capacity in weaned pigs and IPEC-J2 cells[J]. Animal Nutrition, 2022,11:48-59.

[5]
ZHENG Z A, ZHAO X H, YUAN B, et al. Soy isoflavones induces mitophagy to inhibit the progression of osteosarcoma by blocking the AKT/mTOR signaling pathway[J]. Molecular Medicine (Cambridge,Mass.), 2024, 30(1):5.

[6]
ZHOU M, KONIGSBERG W H, HAO C, et al. Bioactivity and mechanisms of flavonoids in decreasing insulin resistance[J]. Journal of Enzyme Inhibition and Medicinal Chemistry, 2023, 38(1):2199168.

[7]
WANG C T, YANG F, ZENG W, et al. Vine tea total flavonoids activate the AMPK/mTOR pathway to amelioration hepatic steatosis in mice fed a high-fat diet[J]. Journal of Food Science, 2024, 89(5):3019-3036.

[8]
XIE K, HE X, CHEN K Y, et al. Antioxidant properties of a traditional vine tea,Ampelopsis grossedentata[J]. Antioxidants (Basel,Switzerland), 2019, 8(8):295.

[9]
何惠, 曹文涛. 藤茶黄酮在畜禽生产中的应用研究[J]. 畜禽业, 2021, 32(11):13-14.

HE H, CAO W T. Research on the application of dihydromyricetin in livestock and poultry production[J]. Livestock and Poultry Industry, 2021, 32(11):13-14. (in Chinese)

[10]
SPEISKY H, SHAHIDI F, COSTA DE CAMARGO A, et al. Revisiting the oxidation of flavonoids:loss,conservation or enhancement of their antioxidant properties[J]. Antioxidants (Basel, Switzerland), 2022, 11(1):133.

[11]
赵洪强, 时敬爱, 王金权, 等. 大豆异黄酮调节Nrf2/HO-1信号通路对多囊卵巢综合征大鼠卵巢组织损伤的影响[J]. 中国药学杂志, 2023, 58(8):699-707.

DOI

ZHAO H Q, SHI J A, WANG J Q, et al. Impact of Soy isoflavones on ovarian tissue damage in rats with polycystic ovary syndrome by regula-ting Nrf2/HO-1 signaling pathway[J]. Chinese Pharmaceutical Journal, 2023, 58(8):699-707. (in Chinese)

[12]
乔小燕, 操君喜, 车劲, 等. 不同贮藏年份康砖茶主要成分差异及其抗氧化活性比较[J]. 现代食品科技, 2020, 36(8):48-55, 264.

QIAO X Y, CAO J X, CHE J, et al. Comparative analysis on chemical components and antioxidant activity for different aged Kang bricks teas[J]. Modern Food Science & Technology, 2020, 36(8):48-55, 264. (in Chinese)

[13]
DAS A. The emerging role of microplastics in systemic toxicity:involvement of reactive oxygen species (ROS)[J]. The Science of the Total Environment, 2023,895:165076.

[14]
王萱, 刘亚辉, 李勇, 等. 黄豆苷元对H2O2诱导H9c2细胞衰老的保护作用[J]. 大豆科学, 2022, 41(4):472-479.

WANG X, LIU Y H, LI Y, et al. Protective effect of daidzein on senescence of H9c2 cells induced by hydrogen peroxide[J]. Soybean Science, 2022, 41(4):472-479. (in Chinese)

[15]
王元芬, 郝建秀, 王辉, 等. 线粒体功能在卵母细胞成熟中的作用综述[J]. 解放军医学院学报, 2017, 38(10):987-989.

WANG Y F, HAO J X, WANG H, et al. Advances in role of mitochondria in maturation of oocyte[J]. Academic Journal of Chinese PLA Medical School, 2017, 38(10):987-989. (in Chinese)

[16]
庄少虹, 黄宝怡, 曾艳婷, 等. 白藜芦醇对冻融后小鼠成熟卵母细胞氧化应激水平和线粒体功能的影响[J]. 中国医药导报, 2016, 13(11):27-30.

ZHUANG S H, HUANG B Y, ZENG Y T, et al. Influence of resveratrol on oxidative stress level and mitochondrial function of vitrified-thawed mature oocytes in mice[J]. China Medical Herald, 2016, 13(11):27-30. (in Chinese)

[17]
TIANO L, FEDELI D, BALLARINI P, et al. Mitochondrial membrane potential in density-separated trout erythrocytes exposed to oxidative stress in vitro[J]. Biochimica et Biophysica Acta, 2001, 1505(2/3):226-237.

[18]
GARBINCIUS J F, ELROD J W. Mitochondrial calcium exchange in physiology and disease[J]. Physiological Reviews, 2022, 102(2):893-992.

[19]
TEIXEIRA T M, DA COSTA D C, RESENDE A C, et al. Activation of Nrf2-antioxidant signaling by 1,25-dihydroxycholecalciferol prevents leptin-induced oxidative stress and inflammation in human endothelial cells[J]. The Journal of Nutrition, 2017, 147(4):506-513.

[20]
YAN F F, LU Q, WANG C M, et al. Procyanidin a1 and its digestive products alleviate acrylamide-induced IPEC-J2 cell damage through regulating Keap1/Nrf2 pathway[J]. Food Science and Human Wellness, 2024, 13(3):1475-1484.

[21]
YI G F, DIN J U, ZHAO F, et al. Effect of soybean peptides against hydrogen peroxide induced oxidative stress in HepG2 cells via Nrf2 signaling[J]. Food & Function, 2020, 11(3):2725-2737.

[22]
GONZÁLEZ-MAÑÁN D, D’ESPESSAILLES A, DOSSI C G, et al. Rosa mosqueta oil prevents oxidative stress and inflammation through the upregulation of PPAR-α and NRF2 in C57BL/6J mice fed a high-fat diet[J]. The Journal of Nutrition, 2017, 147(4):579-588.

[23]
鄂晓迪, 赵晓南, 赵金标, 等. 黄酮类化合物调控Keap1-Nrf2/ARE信号通路的抗氧化机制及其在畜禽生产中应用的研究进展[J]. 中国畜牧兽医, 2024, 51(7):2880-2889.

DOI

E X D, ZHAO X N, ZHAO J B, et al. Research progress on antioxidant mechanism of flavonoids regulating the Keap1-Nrf2/ARE signaling pathway and its application in livestock and poultry[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(7):2880-2889. (in Chinese)

[24]
E X D, SHAO D, LI M M, et al. Supplemental dietary genistein improves the laying performance and antioxidant capacity of Hy-Line brown hens during the late laying period[J]. Poultry Science, 2023, 102(5):102573.

文章导航

/