研究论文

种公鸡精清miRNA调控鸡蛋营养积累的分子作用初探

  • 刘喆 ,
  • 樊晓钰 ,
  • 王佳媚 ,
  • 张晓叶 ,
  • 李玉龙 , *
展开
  • 陕西中医药大学基础医学院,咸阳 712046
* 李玉龙,讲师,E-mail:

刘 喆(2002—),女,陕西延安人,本科生,研究方向为营养调控与动物健康。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-08-22

  网络出版日期: 2025-04-15

基金资助

略阳乌鸡产业发展研究院(WJYJY-2021-10)

秦创原中医药产业创新聚集区项目(中医药大学)

医疗机构)(L2024-QCY-ZYYJJQ-X214)

陕西省科技厅青年项目(2023-JC-QN-0266)

Primary Exploration on Molecular Mechanisms of Breeder Cocks’ Spermic miRNA Modulating Nutrient Accumulation of Eggs

  • LIU Zhe ,
  • FAN Xiaoyu ,
  • WANG Jiamei ,
  • ZHANG Xiaoye ,
  • LI Yulong , *
Expand
  • College of Basic Medical Science, Shaanxi University of Chinese Medicine, Xianyang 712046, China
* lecturer, E-mail:

Received date: 2024-08-22

  Online published: 2025-04-15

摘要

为探究种公鸡精清miRNA对母鸡繁殖过程营养分配的影响,选取体重接近的健康略阳乌鸡种公鸡40只、母鸡120只作为试验动物,种公鸡随机分为自由采食组和限饲组(饲喂自由采食量的70%),每组4个重复,每个重复5只鸡,每个重复随机配套15只母鸡。采用高通量测序分析限饲对种公鸡精清miRNA的影响,结合配套母鸡卵巢上皮转录组测序(RNA-seq)进行关联分析,筛选精清miRNA中调控母鸡卵巢上皮营养代谢和转运的关键miRNA及其靶基因,并结合蛋黄代谢组确定种公鸡营养干预对母鸡繁殖过程营养分配的调控效应。结果表明: 限饲可显著改变种公鸡精清中52种miRNA的表达水平,精清miRNA测序与卵巢上皮转录组测序关联分析显示限饲种公鸡可以gga-let-7b、gga-miR-200a-3p、gga-miR-2954等高表达miRNA为媒介序列特异性调控其配套母鸡卵巢上皮中内吞和自噬信号通路调控因子[如高迁移率族蛋白1(HMGB1)、Ras相关蛋白10(RAB10)、F肌动蛋白加帽蛋白α2亚基(CAPZA2)和翻译调节肿瘤蛋白1(TPT1)等]的表达。内吞和自噬信号通路均与营养物质代谢和转运有关,蛋黄代谢组进一步说明种公鸡限饲可通过调控卵巢上皮基因表达间接改变鸡蛋蛋黄中多种氨基酸、脂肪酸及其衍生物的含量,进而影响其氨基酸和能量代谢功能。总之,限饲种公鸡可以精清miRNA为媒介调控母鸡卵巢上皮内吞和自噬信号通路活性,间接影响鸡蛋蛋黄营养组成。

本文引用格式

刘喆 , 樊晓钰 , 王佳媚 , 张晓叶 , 李玉龙 . 种公鸡精清miRNA调控鸡蛋营养积累的分子作用初探[J]. 动物营养学报, 2025 , 37(4) : 2684 -2696 . DOI: 10.12418/CJAN2025.225

Abstract

The purpose of this study is to investigate the effects of breeder cocks’ spermic miRNA on the nutrition distribution during the reproductive process of hens. A total of 40 healthy Lueyang black-bone breeder cocks and 120 hens were selected as experimental animals. The breeder cocks were randomly assigned to two groups: an ad libitum feeding group and a feed-restricted group (70% of ad libitum feed intake), with 4 replicates per group and 5 cocks per replicate. Each replicate of cocks was randomly paired with 15 hens. High-throughput sequencing was employed to investigate the effects of feed restriction on seminal miRNA of breeding cocks, and it was integrated with RNA-seq of ovarian epithelium from paired hens to perform correlation analysis, aiming to identify key miRNA in seminal fluid that regulate nutrient metabolism and transport in the ovarian epithelium, along with their target genes. Furthermore, yolk metabolomics was utilized to elucidate the impact of breeder cocks’ nutritional intervention on nutrient distribution during reproduction of hens. The results showed that restricted feeding could significantly change the expression levels of 52 spermic miRNA. Association analysis of miRNA-seq and RNA-seq indicated that feed-restricted breeder cocks could specifically regulate the expression of regulatory factors in the endocytosis and autophagy signaling pathways in the ovarian epithelium of their mating hens, such as high mobility group box 1 protein (HMGB1), Ras-associated protein 10 (RAB10), F-actin capping protein alpha 2 subunit (CAPZA2) and translationally regulated tumor protein 1 (TPT1), through high expression of miRNA (such as gga-let-7b, gga-miR-200a-3p and gga-miR-2954) as a mediator sequence. Both endocytosis and autophagy signaling pathways were related to nutrient metabolism and transport. The yolk metabolome further indicated that feed-restricted breeder cocks could indirectly change the contents of various amino acids and fatty acids and their derivatives in egg yolk by regulating the expression of ovarian epithelial genes, thus affecting their amino acid and energy metabolism functions. In conclusion, restricted feeding breeder cocks can modulate the signaling pathways of endocytosis and autophagy in ovarian epithelium of hens by spermic miRNA as a medium, which will further modulate the nutritional composition of egg yolk.

十九大报告将“健康中国战略”作为国家发展基本方略,人民健康不仅需要健全的医疗体系,还需要全面优质的营养供应。鸡蛋是一种风味良好且物美价廉的高营养食品,富含各类机体必需营养素且烹饪简便,在人类膳食尤其是早餐中发挥着不可替代的作用。鸡蛋的核心品质决定于其营养价值,而鸡蛋营养组分主要决定于母鸡营养状况,以叶酸为例,在肠道转运能力范围内蛋鸡饲粮叶酸水平与蛋内叶酸沉积量呈正相关[1],其他营养素的蛋内沉积情况与叶酸基本一致[2]。那么,公鸡营养干预是不是也是一种改变鸡蛋营养组分、提高鸡蛋品质的可行性措施呢?
从进化角度看,双亲在繁殖过程中存在基于繁殖目标不同的资源竞争和生存博弈[3]。鸟类的后代以卵形式娩出,鸡蛋的营养积累时间短且主要决定于母鸡营养状况,但鸡蛋营养素用途与哺乳动物相同,都是用于胚胎发育,公鸡通过干预母鸡营养代谢优化鸡蛋营养同样有利于其后代获得生存优势[4]。精清miRNA是精液中有扩散性和组织渗透性的转录后表达调控因子,可序列特异性抑制其靶基因的表达,以外泌体为载体可将miRNA转运至远缘靶细胞(输卵管和卵巢)调节其靶基因表达[5-6]。为探索种公鸡以精清miRNA为分子媒介调控鸡蛋内营养积累的主要信号通路和关键调节因子,本试验以具有较高野生鸟类特征、可比较、好适应限饲模式的略阳乌鸡为动物模型,分析了种公鸡限饲对种公鸡精清miRNA组成及其配对母鸡卵巢上皮基因表达的影响,进而探讨种公鸡营养干预对母鸡繁殖过程营养分配的调节作用,以期为从分子水平培育和提高略阳乌鸡产蛋率及蛋品质提供新的思路。

1 材料与方法

1.1 试验设计

本试验所用试验动物略阳乌鸡采购自略阳乌鸡产业发展研究院,略阳乌鸡饲养管理和试验方案均经陕西中医药大学实验动物伦理委员会批准(批准号:SUCMDL20230307002)。
选取体重(约为2.35 kg)接近的30周龄种公鸡40只,随机分为自由采食组(A组)和限饲组(R组,饲喂自由采食量的70%),每组20只种公鸡,每组4个重复,每个重复5只种公鸡。选用体重1.3 kg左右、产蛋率无显著差异(P>0.05)的略阳乌鸡母鸡120只,随机分为2组,每组4个重复,每个重复15只母鸡,分别配套给A组(对应的母鸡组名为AH组)和R组(对应的母鸡组名为RH组)种公鸡,所有母鸡都限饲(饲喂自由采食量的70%)模拟自然状态下鸟类的营养有限的状况,每3 d采集1次种公鸡精液,人工授精输送给配对母鸡,输精量为0.05 mL,饲养期满30 d后采集种公鸡精液及AH组和RH组母鸡鸡蛋(对应的鸡蛋组名分别为AE组和RE组),母鸡饲养35 d后吸入麻醉处死采集卵巢上皮组织样品。试验期间种公鸡和母鸡所喂饲粮为参照NRC(1994)家禽营养标准配制的玉米-豆粕型饲粮,其组成及营养水平见表1
表1 玉米-豆粕型饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of corn-soybean type diets (air-dry basis) %

项目
Items
种公鸡
Breeder
cocks
母鸡
Hens
原料Ingredients
玉米Corn 63.00 63.00
豆粕Soybean meal 23.00 23.00
麦麸Wheat bran 7.75 2.00
大豆油Soybean oil 2.00 2.00
磷酸氢钙CaHPO4 2.00 2.00
石粉Limestone 1.25 7.00
氯化钠NaCl 0.30 0.30
DL-蛋氨酸DL-Met 0.10 0.10
L-赖氨酸L-Lys 0.10 0.10
氯化胆碱Choline chloride 0.10 0.10
预混料Premix1) 0.40 0.40
合计Total 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 11.40 11.37
干物质DM 89.22 89.41
粗蛋白质CP 15.20 15.13
钙Ca 1.00 3.32
有效磷AP 0.44 0.45
赖氨酸Lys 0.82 0.81
蛋氨酸+胱氨酸Met+Cys 0.67 0.66
蛋氨酸Met 0.36 0.35

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:生物素 biotin 0.15 mg,叶酸 folic acid 0.70 mg,泛酸 pantothenic acid 12 mg,胆碱 choline 900 mg,烟酸 niacin 30 mg,VA 8 000 IU,VB1 1.80 mg,VB2 7.50 mg,VB6 4.50 mg,VB12 0.25 mg,VD3 2 000 IU,VE 20 mg,VK3 2.15 mg,Fe 65 mg,Zn 90 mg,Mn 65 mg,Cu 10 mg,I 0.40 mg,Se 0.30 mg。

2)代谢能和有效磷为计算值,其余为实测值。ME and AP were calculated values, while the others were measured values.

1.2 试验仪器和试剂

试验所用仪器主要有超低温冰箱(Thermo,美国)、微量移液器(Eppendorf,德国)、低温离心机(Eppendorf,德国)、Centrifuge 5418离心机(Eppendorf,德国)、NanoDrop 2000c核酸蛋白浓度检测仪(Thermo Scientific,美国)、iQ5荧光实时定量PCR仪(Bio-Rad,美国)、制冰机(Scotsman,上海)、生物安全柜(路博,青岛)等。
试验所用试剂主要有RNA提取Trizol裂解液(TaKaRa,日本)、反转录试剂盒(TaKaRa,日本)、2×PCR预混试剂(Premix TaqTM,TaKaRa,日本)、TB Green Premix Ex TaqTM Ⅱ试剂盒(TaKaRa,日本)。

1.3 测定指标

1.3.1 饲粮中营养成分含量

饲粮中干物质(GB/T 6435—2014)、粗蛋白质(GB/T 6432—2018)、钙(GB/T 6436—2018)和氨基酸含量(GB/T 18246—2019)按照相应国标方法进行测定。饲粮中代谢能水平和有效磷含量参照《中国饲料成分及营养价值表(2020年第31版)》计算得出。

1.3.2 略阳乌鸡体重曲线和产蛋性能

在第1、7、14、21、28、35天10:00检测种公鸡和母鸡体重,绘制体重曲线;在第3、6、9、12、15、18、21、24、27、30天统计产蛋率和平均蛋重。

1.3.3 种公鸡精清miRNA测序

种公鸡饲喂至第30天时采集精液,A组和R组各4个样品(重复),分离精清总RNA并富集其中的miRNA进行miRNA测序(委托杭州联川生物技术股份有限公司进行测序),筛选差异表达miRNA(t检验,P<0.05)并预测其靶基因,基于预测基因进行KEGG通路富集性分析,探讨限饲对种公鸡精清miRNA生物学功能(尤其是代谢和物质转运功能)的影响。

1.3.4 母鸡卵巢上皮组织转录组测序

母鸡饲喂至第35天时采集卵巢上皮组织,AH组和RH组各4个样品(重复),提取其mRNA进行转录组测序(委托杭州联川生物技术股份有限公司进行测序),筛选差异表达基因[t检验,P<0.05,差异倍数(FC)>1.50或FC<0.66],基于差异表达基因进行KEGG通路富集性分析,并结合精清miRNA测序进行关联分析,确定限饲种公鸡通过精清miRNA介导限饲母鸡卵巢上皮基因表达,调控限饲母鸡繁殖过程营养分配的潜在分子调控效应。

1.3.5 鸡蛋蛋黄代谢组分析

母鸡饲喂至第30天时采集鸡蛋,分离蛋黄进行代谢组测序(委托杭州联川生物技术股份有限公司进行测序),筛选差异代谢物(t检验,P<0.05,FC>1.50或FC<0.66)并基于差异代谢物进行KEGG通路富集性分析,结合母鸡卵巢上皮转录组确定种公鸡限饲调控鸡蛋营养组分的分子互作机制。

1.3.6 实时荧光定量PCR(qRT-PCR)验证精清中关键miRNA表达状况

根据精清miRNA测序筛选调控鸡蛋营养组分沉积的关键精清miRNA,采用qRT-PCR检验精清中关键miRNA的转录水平,并对高通量测序结果进行验证。采用Trizol裂解法提取精清RNA后采用TaKaRa反转录试剂盒逆转录合成miRNA cDNA第1链,进而利用TaKaRa TB试剂进行定量分析。精清中关键miRNA qRT-PCR引物序列如表2所示。
表2 精清中关键miRNA qRT-PCR引物序列

Table 2 Primer sequences for qRT-PCR of key miRNA in seminal fluid

miRNA名称miRNA names 引物序列Primer sequences (5'—3')
gga-let-7b F:ACACTCCAGCTGGGTGAGGTAGTAGGTTGT
R:TGGTGTCGTGGAGTCG
gga-miR-2954 F:GGTAGGCATCCCCATTCCACTC
R:AACTGGTGTCGTGGAGTCGGC
5S F:CCATACCACCCTGGAAACGC
R:TACTAACCGAGCCCGACCCT

1.3.7 qRT-PCR验证卵巢上皮中关键基因的mRNA表达状况

根据卵巢上皮转录组测序结果,结合KEGG通路富集性分析筛选具有关键调控效应的重要卵巢上皮基因,采用qRT-PCR检验卵巢上皮中关键基因的转录活性,并对高通量测序结果进行验证。采用Trizol裂解法提取卵巢上皮总RNA,后采用TaKaRa反转录试剂盒逆转录合成关键基因cDNA第1链,后利用TaKaRa TB试剂进行定量分析。转录水平的表达分析采用qRT-PCR方法,卵巢上皮中关键基因qRT-PCR引物序列信息(NCBI/Primer-BLAST软件)如表3所示。
表3 卵巢上皮中关键基因qRT-PCR引物序列信息

Table 3 Primer sequence information for qRT-PCR of key genes in ovarian epithelium

基因名称
Gene names
mRNA编号
ID of mRNA
引物序列
Primer sequences (5'—3')
产物大小
Product size/bp
高迁移率族蛋白B1
HMGB1
NM_204902 F:TGAATGCCCGTTTGGGATCA
R:ACGCTCTTCCTATGGGTCCT
346
RAS相关蛋白10
RAB10
NM_001031097 F:TCTCCCTTTGTTCTCCCGTG
R:CCTGGCTCTTTTGCTGATGC
306
F-肌动蛋白加帽蛋白α2
CAPZA2
NM_001004380 F:AGGCCTTACGTCGACAGTTG
R:CAATGGCAAAAGCCCATGCT
210
翻译调节肿瘤蛋白1
TPT1
NM_205398 F:CTACAAGATCCGCGAGGTGG
R:TTCTGTCCCCTCTCCCTCAG
139
β-肌动蛋白
β-actin
L08165 F:ATTGTCCACGCAAATGCTTC
R:TTCTGTCCCCTCTCCCTCAG
113

1.4 数据统计与分析

本试验中略阳乌鸡体重、产蛋率、qRT-PCR数据采用SPSS 20.0软件的学生t检验(Student’s t-test)进行分析,数据表示为平均值±标准差,差异显著性水平设置为P<0.05;精清miRNA和卵黄代谢组差异显著性设置为P<0.05,卵巢转录组基因表达差异性设置为P<0.05,FC>1.50或FC<0.66,差异表达基因相对表达量经Z转换后绘制热图。

2 结果与分析

2.1 种公鸡限饲对种公鸡和母鸡体重的影响

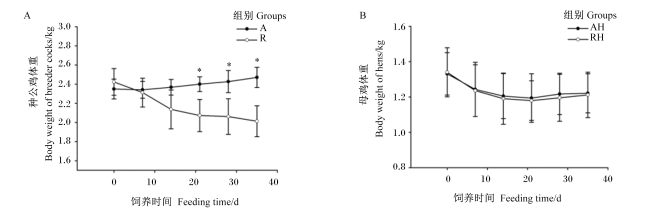
限饲可导致种公鸡体重的持续降低,21 d后R组种公鸡体重显著低于A组(P<0.05)(图1-A);限饲同样可降低母鸡体重,但21 d后母鸡体重不再降低,种公鸡限饲与否对限饲母鸡体重无显著影响(图1-B)。
图1 种公鸡限饲对种公鸡(A)和母鸡(B)体重的影响

Fig.1 Effects of breeder cocks’ restricted feeding on body weight of breeder cocks (A) and hens (B)

2.2 种公鸡限饲对配套母鸡产蛋率和平均蛋重的影响

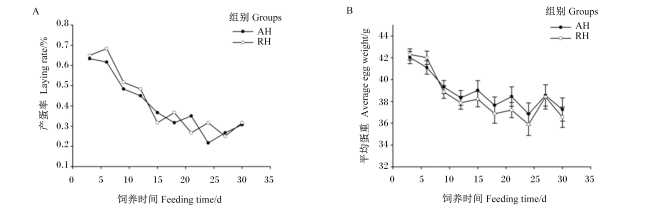
图2所示,限饲可导致母鸡产蛋率和平均蛋重降低,但种公鸡限饲并不能改变其配套母鸡的产蛋性能,AH组和RH组母鸡产蛋率和平均蛋重均无显著差异(P>0.05)。
图2 种公鸡限饲对母鸡产蛋率(A)及平均蛋重(B)的影响

Fig.2 Effects of breeder cocks’ restricted feeding on laying rate (A) and average egg weight (B) of hens

2.3 种公鸡限饲对配套母鸡蛋黄代谢物组成的影响

2.3.1 AE组与RE组蛋黄代谢物组成的整体差异性
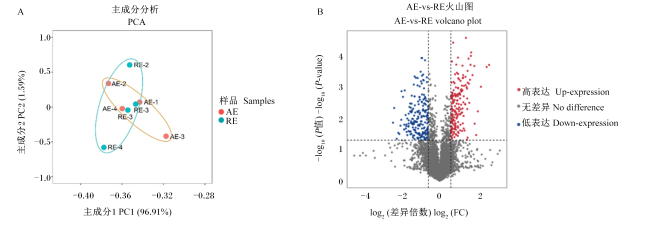
限饲种公鸡的精液可改变其配套母鸡卵巢上皮中营养物质代谢和转运相关基因的表达,具有调控鸡蛋营养组分的潜在作用,因此本试验分析了鸡蛋蛋黄代谢物组成状况。主成分分析(PCA)结果(图3-A)显示AE组和RE组蛋黄代谢物组成存在一定差异性,火山图(图3-B)显示种公鸡限饲可影响鸡蛋蛋黄营养组分,诱导产生一定数量的差异代谢物。
图3 蛋黄代谢组的主成分分析(A)和火山图(B)

Fig.3 PCA (A) and volcano plot (B) of yolk metabolome

2.3.2 蛋黄差异代谢物的聚类分析及其与营养物质代谢的相关性

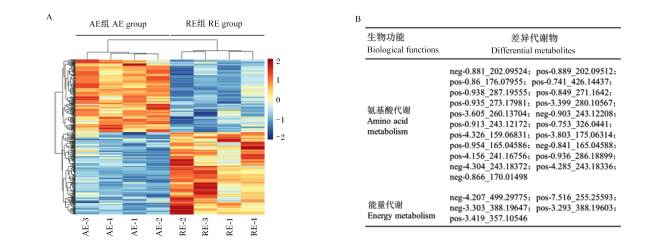
图4所示,限饲种公鸡可以精液为媒介影响鸡蛋蛋黄营养组分,AE组和RE组间存在601个差异代谢物(与自由采食对比,以限饲种公鸡为父本的鸡蛋蛋黄中有251种代谢物含量显著减少,350种代谢物含量显著提高),这些差异代谢物与氨基酸代谢和能量代谢紧密相关。
图4 蛋黄差异代谢物的聚类分析(A)及功能分析(B)

Fig.4 Clustering analysis (A) and functional analysis (B) of differential metabolites in yolk

2.4 限饲对种公鸡精清miRNA表达谱的影响

2.4.1 A组与R组种公鸡精清miRNA表达谱的整体差异性
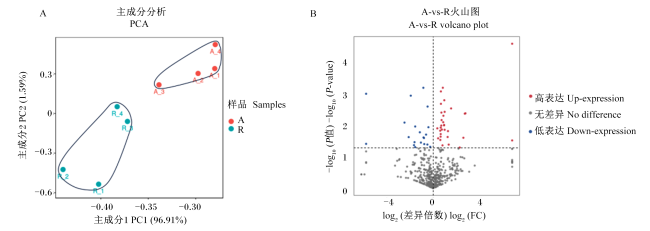
本试验采用高通量测序技术分析了限饲对种公鸡精清miRNA组成的影响,PCA结果(图5-A)显示自由采食的A组和限饲的R组种公鸡精清miRNA组成存在一定差异性,火山图(图5-B)显示两者间存在一定数量的差异表达miRNA。
图5 精清miRNA测序的PCA(A)和火山图(B)

Fig.5 PCA (A) and volcano plot (B) of spermic miRNA-seq

2.4.2 精清差异表达miRNA的聚类分析及其靶基因的KEGG功能富集性分析
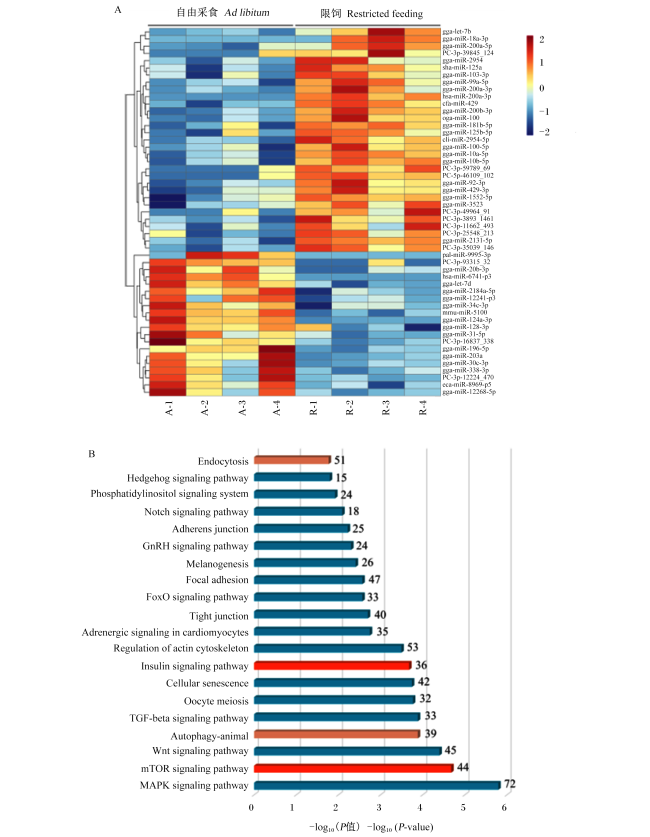
图6所示,与自由采食的A组相比,限饲的R组种公鸡精清中含有52个差异表达miRNA(20个高表达miRNA和32个低表达miRNA),基于差异表达miRNA预测靶基因的KEGG通路富集性分析显示,限饲可改变营养代谢[胰岛素信号通路和哺乳动物雷帕霉素靶蛋白(mTOR)信号通路]和营养物质转运(自噬和内吞)相关信号通路活性。
图6 精清差异表达miRNA的聚类分析(A)及其靶基因KEGG富集性分析(B)

Endocytosis:内吞;Hedgehog signaling pathway:刺猬信号通路;Phosphatidylinositol signaling system:磷脂酰肌醇信号系统;Notch signaling pathway:Notch信号通路;Adherens junction:黏着连接;GnRH signaling pathway:GnRH信号通路;Melanogenesis:黑色素合成;Focal adhesion:黏着斑;FoxO signaling pathway:FoxO信号通路;Tight junction:紧密连接;Adrenergic signaling in cardiomyocytes:心肌细胞中的肾上腺素信号;Regulation of actin cytoskeleton:肌动蛋白细胞骨架调节;Insulin signaling pathway:胰岛素信号通路;Cellular senescence:细胞衰老;Oocyte meiosis:卵母细胞减数分裂;TGF-beta signaling pathway:TGF-β信号通路;Autophagy-animal:自噬-动物;Wnt signaling pathway:Wnt信号通路;mTOR signaling pathway:mTOR信号通路;MAPK signaling pathway:MAPK信号通路。

Fig.6 Clustering analysis (A) of spermic differentially expressed miRNA and KEGG pathway enrichment analysis of their target genes (B)

2.4.3 qRT-PCR验证精清gga-let-7b和gga-miR-2954表达状况
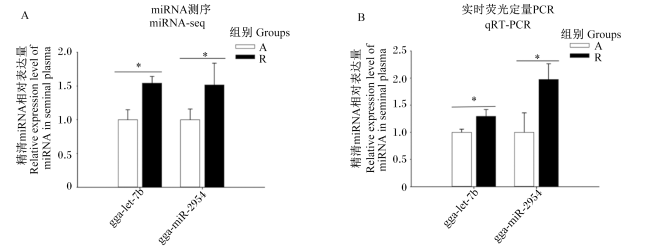
图7所示为差异表达miRNA gga-let-7b和gga-miR-2954的相对表达状况,qRT-PCR(图7-B)的表达检验结果与miRNA测序(图7-A)基本一致,说明miRNA测序数据的准确性较高。相比于自由采食,限饲可显著提高略阳乌鸡种公鸡精清中gga-let-7b和gga-miR-2954的相对表达量(P<0.05)。
Fig.7 精清gga-let-7b和gga-miR-2954的miRNA测序(A)和qRT-PCR验证结果(B)
miRNA-seq (A) and qRT-PCR (B) verification results of gga-let-7b和gga-miR-2954 in seminal fluid (<i>n</i>=4)

*:差异显著(P<0.05)。图10同。

*: significant difference (P<0.05). The same as Fig.10.

2.5 限饲种公鸡精清miRNA对配套母鸡卵巢上皮基因表达的影响

2.5.1 AH组与RH组母鸡卵巢上皮转录谱的整体差异性
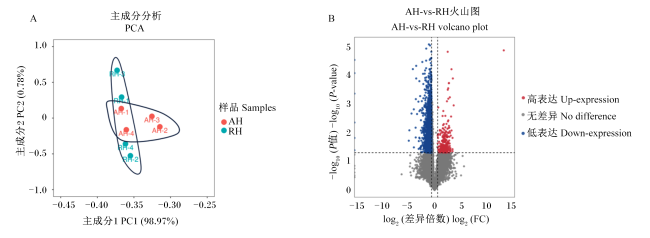
本试验进一步分析了限饲种公鸡精清对母鸡卵巢上皮基因转录水平表达的影响,PCA结果(图8-A)显示AH组和RH组母鸡卵巢上皮基因转录存在一定差异性,火山图(图8-B)显示限饲种公鸡精液可改变母鸡卵巢上皮中部分基因的转录活性。
图8 卵巢上皮转录组测序的PCA(A)和火山图(B)

Fig.8 PCA (A) and volcano plot (B) of RNA-seq in ovarian epithelium

2.5.2 卵巢上皮差异表达基因的聚类分析和KEGG功能富集性分析

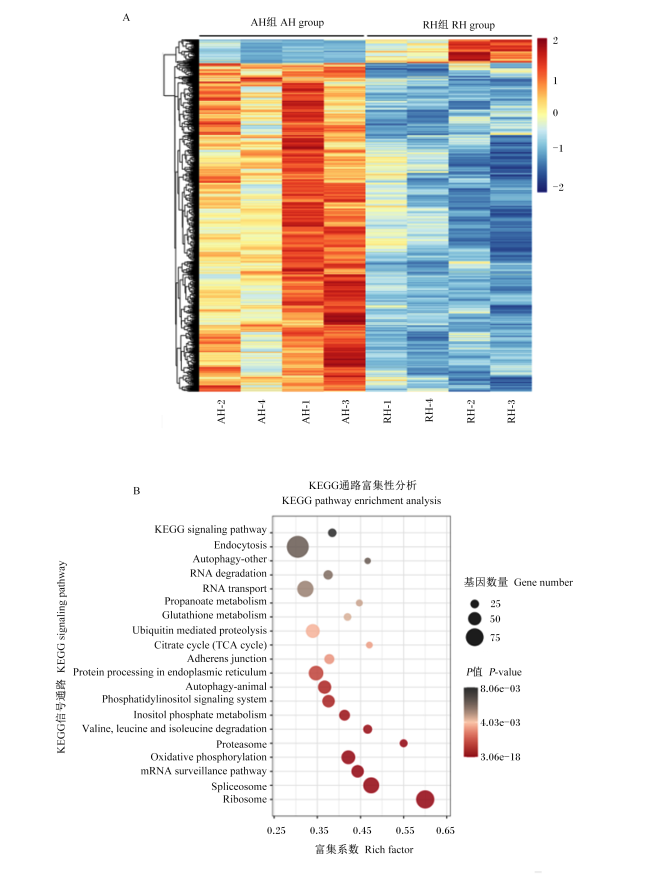
图9-A所示,限饲种公鸡精液可改变母鸡卵巢基因转录(240个高表达基因和3 339个低表达基因),基于差异表达基因的KEGG富集性分析结果(图9-B)显示限饲种公鸡精液可改变其配套母鸡卵巢组织的能量代谢[柠檬酸循环(TCA循环)、氧化磷酸化和丙酸盐代谢]、氨基酸代谢(缬氨酸、亮氨酸和异亮氨酸降解,谷胱甘肽代谢和泛素介导的蛋白质水解)及营养物质转运(内吞和自噬)相关信号通路活性。
图9 卵巢上皮差异表达基因的聚类分析(A)和KEGG功能富集性分析(B)

Mitophagy-animal:自噬-动物;Endocytosis:内吞;Autophagy-other:自噬-其他;RNA degradation:RNA降解;RNA transport:RNA转运;Propanoate metabolism:丙酸盐代谢;Glutathione metabolism:谷胱甘肽代谢;Ubiquitin mediated proteolysis:泛素介导的蛋白质水解;Citrate cycle (TCA cycle):柠檬酸循环(TCA循环);Adherens junction:黏着连接;Protein processing in endoplasmic reticulum:内质网蛋白质加工;Autophagy-animal:自噬-动物;Phosphatidylinositol signaling system:磷脂酰肌醇信号系统;Inositol phosphate metabolism:肌醇磷酸代谢;Valine, leucine and isoleucine degradation:缬氨酸、亮氨酸和异亮氨酸降解;Proteasome:蛋白酶体;Oxidative phosphorylation:氧化磷酸化;mRNA surveillance pathway:mRNA监视通路;Spliceosome:剪接体;Ribosome:核糖体。

Fig.9 Clustering analysis (A) and KEGG pathway enrichment analysis (B) of differentially expressed genes in ovarian epithelium

2.5.3 qRT-PCR验证母鸡卵巢上皮差异表达基因的表达状况

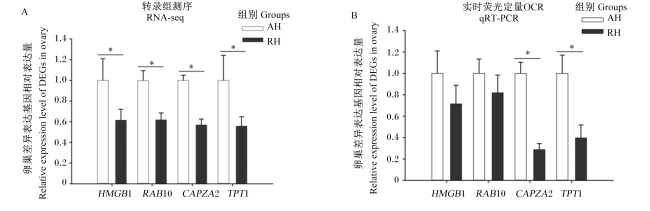
图10所示为差异表达基因高迁移率族蛋白1(HMGB1)、Ras相关蛋白10(RAB10)、F肌动蛋白加帽蛋白α2亚基(CAPZA2)和翻译调节肿瘤蛋白1(TPT1)的相对表达状况,qRT-PCR的表达检验结果(图10-B)与转录组测序(图10-A)一致,说明转录组测序数据的准确性较高。相比于自由采食,限饲种公鸡配套母鸡卵巢上皮中4个关键基因的mRNA相对表达量均显著提高(P<0.05)。
图10 卵巢上皮差异表达基因的转录组测序(A)和qRT-PCR验证结果(B)

HMGB1:高迁移率族蛋白1 high mobility group box 1 protein;RAB10:Ras相关蛋白10 Ras-associated protein 10;CAPZA2:F肌动蛋白加帽蛋白α2亚基 F-actin capping protein alpha 2 subunit;TPT1:翻译调节肿瘤蛋白1 translationally regulated tumor protein 1。

Fig.10 RNA-seq (A) and qRT-PCR verification results (B) of differentially expressed genes in ovarian epithelium (n=4)

2.6 精清miRNA调控卵巢上皮营养转运的潜在分子调控作用

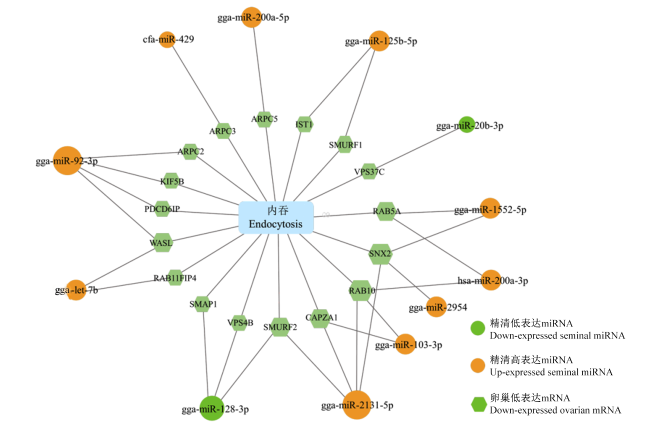
图11所示,限饲可显著上调精清中gga-let-7b、gga-miR-92-3b、gga-miR-2131-5p、gga-miR-200a-3p、gga-miR-125b-5p、gga-miR-2954等miRNA的表达,进而抑制卵巢上皮中内吞信号通路因子Wiskott-Aldrich综合征蛋白(WASL)、排序连接蛋白2(SNX2)、CAPZA1、RAB10、RAS相关蛋白5A(RAB5A)等mRNA的表达,调控内吞信号通路活性。
图11 精清miRNA对卵巢上皮内吞信号通路的调控作用

Fig.11 Regulatory effects of spermic miRNA on endocytosis signaling pathway of ovarian epithelium

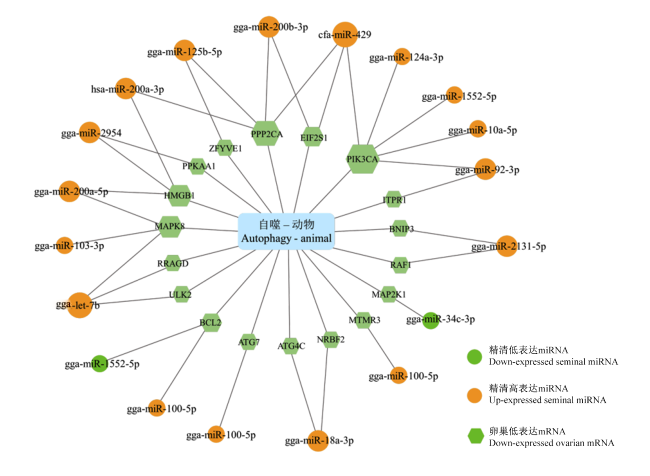
精清miRNA还具有调控卵巢自噬-动物信号通路的作用(图12),种公鸡限饲产生的差异表达miRNA,包括gga-let-7b、cfa-miR-429、gga-miR-2954、gga-miR-200a-3p、gga-miR-124a-3p、gga-miR-29-3p等,可通过抑制卵巢中丝氨酸/苏氨酸蛋白磷酸酶2A催化亚基α(PPP2CA)、磷脂酰肌醇-3-激酶α催化亚基(PIK3CA)、HMGB1、促分裂原活化蛋白激酶8(MAPK8)、翻译起始因子2亚基1(EIF2S1)等自噬信号通路因子的mRNA表达,从而调控自噬信号通路活性。
图12 精清miRNA对母鸡卵巢上皮自噬信号通路的调控作用

Fig.12 Regulatory effects of spermic miRNA on autophagy signaling pathway of ovarian epithelium

精清miRNA测序-卵巢上皮转录组测序关联分析结果说明种公鸡可通过精清miRNA间接调控配套母鸡卵巢上皮基因表达,影响营养物质代谢和转运相关的内吞和自噬信号通路,从而间接调节鸡蛋中的营养积累状况。

3 讨论

从进化角度看,为了提高繁殖效率,父母双亲会围绕胚胎发育过程中母亲的营养投入进行“博弈”[4]。在哺乳动物中双亲间通过印记基因进行营养博弈[7-8],但鸟类动物生殖细胞和胚胎中均没有印记基因[9],这说明印记基因不是鸟类双亲间营养博弈的分子作用机理,主要原因在于印记基因是通过调控胚胎发育进程间接干预雌性哺乳动物在繁殖过程中的营养和时间投入的[10],而鸡胚发育所需营养都来自鸡蛋,在鸡蛋娩出时已完成胚胎发育所需营养物质的积累,种公鸡无法通过影响鸡胚发育进程干预母鸡繁殖过程中的营养投入。
但鸡蛋营养组分和含量同样可影响鸡雏健康和存活能力[11],这意味着种公鸡与母鸡间极有可能也存在基于繁殖目标不同的营养博弈。本试验以限饲母鸡(70%自由采食量)为母本,研究了种公鸡营养状况(自由采食和限饲)对母鸡繁殖过程营养分配的影响。饲养试验结果显示,短期限饲(30 d)可导致种公鸡体重的持续降低,母鸡体重在限饲的前14 d持续降低,之后维持在较低水平不再发生显著变化,母鸡的产蛋量持续下降,这说明母鸡可通过减少生产中的营养投入来维持体重的稳定性,而且种公鸡限饲对限饲母鸡的产蛋率、平均蛋重等生产指标均无显著影响。综上所述,母鸡的产蛋率和平均蛋重主要决定于母鸡的营养状况,这与之前的研究结果[12]一致。
本试验进一步分析了种公鸡营养干预对鸡蛋营养组分的影响,蛋黄代谢组结果显示限饲种公鸡可以精液为媒介调节鸡蛋蛋黄营养组分,改变鸡蛋蛋黄中601种代谢物的含量,这些代谢物可影响氨基酸代谢(蛋氨酸、丝氨酸、异亮氨酸等多种氨基酸衍生物)和能量代谢(多种脂肪酸)功能,这说明种公鸡精液中存在调控母鸡繁殖过程营养分配的活性调控因子。
种公鸡精清miRNA具有组织渗透性,这些miRNA还可以外泌体为载体[5-6]扩散至卵巢及输卵管上皮细胞中并抑制其靶基因的表达[13],我们之前的研究发现种公鸡精液具有调控精子发生和早期胚胎发育的作用,还参与调控氨基酸和脂肪酸代谢过程[14];并且,对种公鸡进行叶酸营养干预可显著改变精清miRNA组成,而且这些差异表达miRNA具有调节子代雏鸡脂肪酸及蛋白质代谢的作用[15]
限饲也可显著改变种公鸡精清中的miRNA组成状况,差异表达miRNA具有调控营养代谢(胰岛素和mTOR信号通路)和营养物质转运(自噬和内吞)相关信号通路活性的作用。鸡蛋蛋黄营养组分的积累主要发生于母鸡卵巢,所以本试验分析了限饲种公鸡精液对配套母鸡卵巢上皮基因转录的影响,结合精清miRNA测序和母鸡卵巢上皮转录组测序进行关联分析,结果显示种公鸡可以gga-let-7b、gga-miR-92-3b、gga-miR-2954等精清miRNA为媒介调控母鸡卵巢上皮中内吞信号通路因子(WASLSNX2、CAPZA1、RAB10、RAB5A等)的表达,进而改变其配对母鸡卵巢上皮的内吞信号通路活性。内吞信号通路决定了组织细胞间营养物质的摄取和外排速率,并可影响细胞膜转运载体活性,进而间接机体代谢稳态[16],这说明限饲种公鸡精清miRNA极可能通过靶向调控母鸡卵巢内吞信号通路活性间接影响蛋黄内营养物质的积累。
种公鸡精清miRNA测序与母鸡卵巢上皮转录组测序关联分析显示限饲种公鸡精液中差异表达的gga-let-7b、cfa-miR-429、gga-miR-2954、gga-miR-200a-3p等可通过靶向调控母鸡卵巢上皮中PPP2CAPIK3CAHMGB1、MAPK8等自噬信号通路因子的表达,调控自噬信号通路活性。自噬信号通路是一种组织细胞应对饥饿、细胞毒性反应等各种内外应激[17],通过调控代谢过程维持能量和营养稳态的关键和微调过程[18],在自噬过程中自噬体通过与细胞质膜融合进行营养物质转运[19],进而通过降解蛋白质、脂滴和糖原等能量储存维持营养稳态[20]。这说明种公鸡还可以精清miRNA为分子媒介靶向干预母鸡卵巢上皮中的营养物质代谢和转运功能,从而改变鸡蛋蛋黄中蛋白质及能量代谢相关营养组分的组成状况。

4 结论

综上所述,限饲可显著改变种公鸡精清miRNA组成状况,种公鸡可以精清差异表达miRNA为媒介靶向调控母鸡卵巢中内吞和自噬信号通路活性,进而通过改变卵巢上皮营养代谢及转运功能间接影响鸡蛋蛋黄中的营养物质积累状况,改变蛋黄中氨基酸和能量代谢相关营养物质组成,初步说明种公鸡可以精清miRNA为媒介干预母鸡繁殖过程中的营养代谢。
[1]
TACTACAN G B, RODRIGUEZ-LECOMPTE J C, KARMIN O, et al. Functional characterization of folic acid transport in the intestine of the laying hen using the everted intestinal sac model[J]. Poultry Science, 2011, 90(1):83-90.

DOI PMID

[2]
HEBERT K, HOUSE J D, GUENTER W. Effect of dietary folic acid supplementation on egg folate content and the performance and folate status of two strains of laying hens[J]. Poultry Science, 2005, 84(10):1533-1538.

PMID

[3]
ÅGREN J A. Sewall wright’s criticism of the gene’s-eye view of evolution[J]. Evolution, 2021, 75(10):2326-2334.

[4]
RENFREE M B, SUZUKI S, KANEKO-ISHINO T. The origin and evolution of genomic imprinting and viviparity in mammals[J]. Philosophical Transactions of the Royal Society:Biological Sciences, 2013, 368(1609):20120151.

[5]
GARCIA-MARTIN R, WANG G X, BRANDÃO B B, et al. MicroRNA sequence codes for small extracellular vesicle release and cellular retention[J]. Nature, 2022, 601(7893):446-451.

[6]
KALLURI R, LEBLEU V S. The biology,function,and biomedical applications of exosomes[J]. Science, 2020, 367(6478):eaau6977.

[7]
BARTOLOMEI M S, FERGUSON-SMITH A C. Mammalian genomic imprinting[J]. Cold Spring Harbor Perspectives in Biology, 2011, 3(7):a002592.

[8]
KANEKO-ISHINO T, ISHINO F. Evolution of viviparity in mammals:what genomic imprinting tells us about mammalian placental evolution[J]. Reproduction,Fertility,and Development, 2019, 31(7):1219-1227.

[9]
FRÉSARD L, LEROUX S, SERVIN B, et al. Transcriptome-wide investigation of genomic imprinting in chicken[J]. Nucleic Acids Research, 2014, 42(6):3768-3782.

DOI PMID

[10]
BARLOW D P, BARTOLOMEI M S. Genomic imprinting in mammals[J]. Cold Spring Harbor Perspectives in Biology, 2014, 6(2):a018382.

[11]
VAN DER WAGT I, DE JONG I C, MITCHELL M A, et al. A review on yolk sac utilization in poultry[J]. Poultry Science, 2020, 99(4):2162-2175.

DOI PMID

[12]
许雯雯, 王建萍, 张克英. 鸡蛋的抗氧化性能及营养调控研究进展[J]. 动物营养学报, 2021, 33(10):5460-5466.

DOI

XU W W, WANG J P, ZHANG K Y. Research progress on antioxidant capacity and nutritional regulation of eggs[J]. Chinese Journal of Animal Nutrition, 2021, 33(10):5460-5466. (in Chinese)

[13]
GUIL S, ESTELLER M. Cis-acting noncoding RNAs:friends and foes[J]. Nature Structural and Molecular Biology, 2012, 19(11):1068-1075.

[14]
WU S, GUO J, ZHU L, et al. Identification and characterisation of microRNAs and Piwi-interacting RNAs in cockerels’ spermatozoa by Solexa sequencing[J]. British Poultry Science, 2018, 59(4):371-380.

[15]
WU S R, GUO W, YAN T, et al. Spermatozoal mRNAs expression implicated in embryonic development were influenced by dietary folate supplementation of breeder roosters by altering spermatozoal piRNA expression profiles[J]. Theriogenology, 2019,138:102-110.

[16]
ANTONESCU C N, MCGRAW T E, KLIP A. Reciprocal regulation of endocytosis and metabolism[J]. Cold Spring Harbor Perspectives in Biology, 2014, 6(7):a016964.

[17]
SINGH R, KAUSHIK S, WANG Y J, et al. Autophagy regulates lipid metabolism[J]. Nature, 2009, 458(7242):1131-1135.

[18]
YANG J, ZHOU R M, MA Z Y. Autophagy and energy metabolism[J]. Advances in Experimental Medicine and Biology, 2019,1206:329-357.

[19]
LIN P W, CHU M L, LIU H S. Autophagy and metabolism[J]. Kaohsiung Journal of Medical Sciences, 2021, 37(1):12-19.

[20]
KIM K H, LEE M S. Autophagy—a key player in cellular and body metabolism[J]. Nature Reviews Endocrinology, 2014, 10(6):322-337.

文章导航

/