研究论文

基于非靶向代谢组学研究罗伊氏乳杆菌I5007对大鼠营养代谢的影响

  • 陈维莹 , 1 ,
  • 石文丽 1 ,
  • 李小金 1 ,
  • 靳蒙蒙 1 ,
  • 曾祥芳 2 ,
  • 于海涛 2 ,
  • 李升和 1 ,
  • 江昌盛 , 1, * ,
  • 任曼 , 1, *
展开
  • 1 安徽科技学院动物科学学院,动物营养调控与健康安徽省重点实验室,滁州 233100
  • 2 中国农业大学动物科技学院,北京 100193
* 江昌盛,助教,E-mail: ;
任 曼,副教授,硕士生导师,E-mail:

陈维莹(1999—),女,安徽天长人,硕士研究生,从事动物营养与调控相关研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-08-29

  网络出版日期: 2025-04-15

基金资助

国家自然科学基金资助项目(31501968)

安徽省高校优秀科研创新团队(2022AH010088)

安徽省高校优秀青年科研项目(2022AH030146)

安徽省高校协同创新项目(GXXT-2022-076)

安徽省滁州市科技计划项目(2022ZN002)

安徽科技学院兽医学高峰学科(XK-XJGF002)

Effects of Lactobacillus reuteri I5007 on Nutrient Metabolism in Rats Based on Untargeted Metabolomics

  • CHEN Weiying , 1 ,
  • SHI Wenli 1 ,
  • LI Xiaojin 1 ,
  • JIN Mengmeng 1 ,
  • ZENG Xiangfang 2 ,
  • YU Haitao 2 ,
  • LI Shenghe 1 ,
  • JIANG Changsheng , 1, * ,
  • REN Man , 1, *
Expand
  • 1 Anhui Provincial Key Laboratory of Animal Nutritional Regulation and Health, College of Animal Science, Anhui Science and Technology University, Chuzhou 233100, China
  • 2 College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
* JIANG Changsheng, assistant lecturer, E-mail: ;
REN Man, associate professor, E-mail:

Received date: 2024-08-29

  Online published: 2025-04-15

摘要

本研究旨在利用非靶向代谢组学技术探究罗伊氏乳杆菌I5007对大鼠营养代谢的影响。选取24只无特定病原体(SPF)级SD雄性断奶大鼠,随机分为3组,每组8个重复,每个重复1只。试验A组(单次灌胃组)于第7天灌胃罗伊氏乳杆菌I5007菌液,于第14天、第21天和第28天灌胃生理盐水;试验B组(多次灌胃组)于第7天、第14天、第21天、第28天灌胃罗伊氏乳杆菌I5007菌液;对照组于第7天、第14天、第21天、第28天灌胃生理盐水。试验期为30 d。试验结束后采集门静脉血液分析血清代谢物,采集空肠组织检测免疫球蛋白和细胞因子含量。结果表明: 1)试验B组的终末体重极显著高于对照组(P<0.01);试验A组和试验B组的平均日增重显著或极显著高于对照组(P<0.05或P<0.01)。2)试验B组小肠长度显著低于试验A组和对照组(P<0.05);试验A组和试验B组肝脏指数均极显著低于对照组(P<0.01)。3)与对照组相比,试验A组空肠组织中免疫球蛋白M含量极显著提高(P<0.01);试验A组和试验B组空肠组织中白细胞介素-1α含量显著提高(P<0.05)。4)与对照组相比,试验A组共鉴定到31个显著上调代谢物和12个显著下调代谢物;试验B组共鉴定到28个显著上调代谢物和27个显著下调代谢物。罗伊氏乳杆菌I5007影响了甘油磷脂代谢、鞘脂代谢、精氨酸与脯氨酸代谢、泛酸和辅酶A生物合成、柠檬酸循环等代谢通路。综上可知,罗伊氏乳杆菌I5007通过调节大鼠体内营养代谢,尤其是能量和氨基酸代谢,进而调控营养物质沉积,最终影响大鼠的生长速度、器官发育和免疫功能。

本文引用格式

陈维莹 , 石文丽 , 李小金 , 靳蒙蒙 , 曾祥芳 , 于海涛 , 李升和 , 江昌盛 , 任曼 . 基于非靶向代谢组学研究罗伊氏乳杆菌I5007对大鼠营养代谢的影响[J]. 动物营养学报, 2025 , 37(4) : 2728 -2738 . DOI: 10.12418/CJAN2025.228

Abstract

This study aimed to explore the effects of Lactobacillus reuteri I5007 on nutrient metabolism in rats by using untargeted metabolomics technology. Twenty-four specific pathogen free (SPF) grade SD male weaned rats were randomly divided into 3 groups with 8 replicates per group and 1 rat per replicate. Lactobacillus reuteri I5007 on the 7th day, and normal saline on the 14th, 21st and 28th day was given intragastrically in test group A (single gavage group); Lactobacillus reuteri I5007 on the 7th, 14th, 21st and 28th day was given intragastrically in test group B (multiple gavage group); normal saline on the 7th, 14th, 21st and 28th day was given intragastrically in control group. the experiment lasted for 30 days. At the end of the experiment, blood from the portal vein was collected for metabolomics analysis, and jejunum tissue was collected to detect the contents of immunoglobulins and cytokines. The results showed as follows: 1) the final body weight of test group B was extremely significantly higher than that of the control group (P<0.01); the average daily gain of both test group A and test group B was significantly or extremely significantly higher than that of the control group (P<0.05 or P<0.01). 2) The length of the small intestine of test group B was significantly lower than that of the control group and test group A (P<0.05); the liver index of test group A and test group B was extremely significantly lower than that of the control group (P<0.01). 3) Compared with the control group, the content of immunoglobulin M in the jejunum tissue of the test group A was extremely significantly increased (P<0.01), and the content of interleukin-1α in the jejunum tissue of test group A and test group B was significantly increased (P<0.05). 4) Compared with the control group, a total of 31 significantly up-regulated metabolites and 12 significantly down-regulated metabolites were identified in test group A, and a total of 28 significantly up-regulated metabolites and 27 significantly down-regulated metabolites were identified in test group B. Lactobacillus reuteri I5007 could affect the glycerophospholipid metabolism, sphingolipid metabolism, arginine and proline metabolism, pantothenic acid and coenzyme A biosynthesis, and citric acid cycle metabolic pathways. In conclusion, Lactobacillus reuteri I5007 regulates nutrient metabolism, especially energy and amino acid metabolism, and then regulates nutrient deposition, which ultimately affects the growth rate, organ development, and immune function of rats.

2013年我国农业部在《饲料添加剂品种目录(2013)》中明确规定乳酸菌可作为畜禽养殖微生物饲料添加剂[1]。在众多的微生物饲料添加剂中,乳酸菌作为应用最广泛的益生菌,其机制主要包括调节肠道屏障、产生细菌素或抗菌蛋白以及通过竞争共同的黏附受体来抑制病原菌增殖,从而促进机体生长发育,并提高机体免疫功能[2]。当前益生菌调节机体代谢健康成为研究的一大热点,以乳酸杆菌为代表的益生菌可重塑肠道内环境以及通过脑-肝-肠轴调控其他器官,从而促进机体代谢健康[3-4]
黄沧海[5]于2003年从仔猪结肠中分离出发酵乳酸杆菌,并命名为罗伊氏乳杆菌I5007,研究表明其具有极强的肠道黏附性,可作为益生菌的生产菌株[6-7]。后续研究表明,饲粮中添加罗伊氏乳杆菌I5007能显著改善断奶仔猪的生长性能,干预新生仔猪肠道菌群形成过程,平衡肠道免疫屏障,促进黏膜免疫器官的发育,减缓病原菌对肠道黏膜的侵染[7-8]。然而,关于罗伊氏乳杆菌I5007是否影响机体对营养物质的吸收代谢仍然未知。
本试验利用非靶向代谢组学技术对大鼠灌胃罗伊氏乳杆菌I5007后引起的血清差异代谢物及相关通路变化进行分析,探究罗伊氏乳杆菌I5007对大鼠营养代谢的影响,为其作为饲料添加剂的开发与科学利用提供理论依据。

1 材料与方法

1.1 试验材料

罗伊氏乳杆菌I5007菌株为中国农业大学谯仕彦团队惠赠。将罗伊氏乳杆菌I5007菌株接种到MRS肉汤培养基中培养20 h后,1 000×g离心15 min,收集菌体,生理盐水重悬菌体并调整菌液浓度至1×10⁹ CFU/mL。

1.2 试验动物及分组

动物试验经安徽科技学院动物实验中心动物保护和使用委员会批准(批准号:AK2023038)。选用无特定病原体(SPF)级SD雄性断奶大鼠24只,体重在(72.0±0.5) g,随机分为3组,每组8个重复,每个重复1只,单笼饲养。试验大鼠按每10 g体重0.1 mL罗伊氏乳杆菌I5007菌液或生理盐水灌胃。其中,试验A组(单次灌胃组)于第7天灌胃罗伊氏乳杆菌I5007菌液,于第14天、第21天和第28天灌胃生理盐水;试验B组(多次灌胃组)于第7天、第14天、第21天、第28天灌胃罗伊氏乳杆菌I5007菌液;对照组于第7天、第14天、第21天、第28天灌胃生理盐水。各组大鼠饲喂相同的商品饲粮,自由采食和饮水。饲养试验为期30 d。

1.3 样品采集及指标测定

1.3.1 样品采集

试验开始前和结束时对大鼠进行称重,计算平均日增重。试验结束后,全部试验动物乙醚麻醉后,门静脉采血离心(4 ℃,5 000×g,15 min),收集血清。分离大鼠小肠段(从胃幽门口止于回盲瓣)并用卷尺测量肠道伸展状态下的长度;分离肝脏并称重,计算肝脏指数;分离空肠中段,在液氮中快速冻存后于-80 ℃保存。

1.3.2 空肠组织中免疫球蛋白和细胞因子含量测定

按照试剂盒(北京达科美有限公司生产)说明书制作空肠组织匀浆后,检测空肠组织中免疫球蛋白[免疫球蛋白M(IgM)、免疫球蛋白G(IgG)、分泌型免疫球蛋白A(sIgA)]和细胞因子[白细胞介素-2(IL-2)、白细胞介素-3(IL-3)、白细胞介素-6(IL-6)、白细胞介素-1α(IL-1α)、白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)]含量。

1.3.3 血清非靶向代谢组学分析

血清非靶向代谢组学分析由上海美吉生物医药科技有限公司完成,具体步骤如下:吸取100 μL血清样本于1.5 mL离心管中,加入400 μL提取液[乙腈∶甲醇=1∶1,含 0.02 mg/mL的内标(L-2-氯苯丙氨酸)],涡旋混匀30 s后,低温超声提取30 min(5 ℃,40 kHz),将样品静置于-20 ℃,30 min;4 ℃,13 000×g离心15 min,移取上清液,氮气吹干;100 μL复溶液(乙腈∶水=1∶1)复溶,低温超声萃取5 min(5 ℃,40 kHz),4 ℃,13 000×g 离心10 min,移取上清液至带内插管的进样小瓶中供液相色谱-串联质谱(LC-MS/MS)分析。对LC-MS/MS得到的数据用Progenesis QI软件进行处理,得到代谢物信息。差异代谢物通过KEGG数据库进行代谢通路注释,获得差异代谢物参与的通路。

1.4 数据处理与分析

试验数据经SPSS 20.0软件的ANOVA程序进行单因素方差分析和LSD法多重比较。结果以“平均值±标准差”表示,P<0.01表示差异极显著,P<0.05表示差异显著,P≥0.05表示差异不显著。代谢组学差异代谢物的筛选主要参考变量投影重要度(VIP)和P值2个参数,将P<0.05且VIP>1.0作为筛选差异代谢物的标准[9]

2 结果与分析

2.1 灌胃罗伊氏乳杆菌I5007对大鼠增重的影响

表1可知,3组大鼠初始体重无显著差异(P>0.05),但试验B组的终末体重极显著高于对照组(P<0.01),试验A组与其他组相比终末体重无显著差异(P>0.05);试验A组平均日增重显著高于对照组(P<0.05),试验B组平均日增重极显著高于对照组(P<0.01)。
表1 灌胃罗伊氏乳杆菌I5007对大鼠增重的影响

Table 1 Effects of gavage of Lactobacillus reuteri I5007 on weight gain of rats

项目
Items
试验A组
Test group A
试验B组
Test group B
对照组
Control group
P
P-value
初始体重IBW/g 72.24±2.62 72.87±4.75 73.77±3.36 0.610
终末体重FBW/g 172.61±6.32ABab 180.79±10.05Aa 165.48±7.11Bb 0.005
平均日增重ADG/(g/d) 3.33±0.38ABa 3.60±0.22Aa 2.96±0.40Bb 0.005

同行数据肩标相同小写字母或无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

2.2 灌胃罗伊氏乳杆菌I5007对大鼠消化器官的影响

表2可知,试验B组小肠长度显著低于对照组和试验A组(P<0.05),而试验A组与对照组之间无显著差异(P>0.05);试验A组和试验B组的肝脏指数无显著差异(P>0.05),但均极显著低于对照组(P<0.01)。
表2 灌胃罗伊氏乳杆菌I5007对大鼠小肠长度及肝脏指数的影响

Table 2 Effects of gavage of Lactobacillus reuteri I5007 on small intestine length and liver index of rats

项目
Items
试验A组
Test group A
试验B组
Test group B
对照组
Control group
P
P-value
小肠长度Small intestine length/cm 139.73±8.18a 130.94±4.75b 141.57±9.35a 0.030
肝脏指数Liver index/% 7.89±0.91Ba 7.69±0.59Ba 9.61±1.33Aa 0.002

2.3 灌胃罗伊氏乳杆菌I5007对大鼠空肠组织中免疫球蛋白及细胞因子含量的影响

表3可知,试验A组空肠组织中IgM含量较对照组和试验B组极显著提高(P<0.01);试验A组和试验B组空肠组织中IL-1α含量与对照组相比显著提高(P<0.05)。
表3 灌胃罗伊氏乳杆菌I5007对大鼠空肠组织中免疫球蛋白及细胞因子含量的影响

Table 3 Effects of gavage of Lactobacillus reuteri I5007 on immunoglobulin and cytokine contents in jejunum tissue of rats

项目
Items
试验A组
Test group A
试验B组
Test group B
对照组
Control group
P
P-value
免疫球蛋白Immunoglobulins/(μg/mg prot)
免疫球蛋白G IgG 1.46±0.22 1.46±0.28 1.42±0.36 0.980
免疫球蛋白M IgM 2 182.90±116.61Aa 1 748.77±126.23BCbc 1 569.09±164.83Cc 0.004
分泌型免疫蛋白A sIgA 5.24±0.41 5.53±1.00 4.92±0.52 0.470
细胞因子Cytokines/(pg/mg prot)
白细胞介素-2 IL-2 82.35±17.35 81.84±25.61 85.94±14.79 0.940
白细胞介素-3 IL-3 13.01±2.73 14.32±3.66 14.18±3.18 0.790
白细胞介素-6 IL-6 13.55±2.99 14.58±3.24 15.88±2.29 0.490
白细胞介素-1α IL-1α 184.22±30.93Bb 173.79±27.00Bb 90.10±16.55Aa 0.003
白细胞介素-1β IL-1β 129.37±22.57 144.33±44.51 115.45±36.95 0.520
肿瘤坏死因子-α TNF-α 133.00±8.83 137.64±13.99 132.76±13.92 0.090

2.4 灌胃罗伊氏乳杆菌I5007对大鼠血清代谢物的影响

2.4.1 样品质控(QC)与主成分分析(PCA)
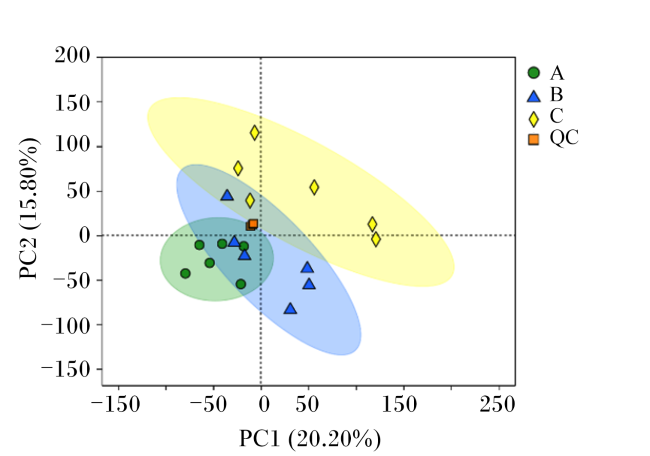
本次代谢组学分析共检测到了6 756个正离子和7 241个负离子,通过二级鉴定,在正离子模式下最终代谢物数量为726个,负离子模式下为470个。
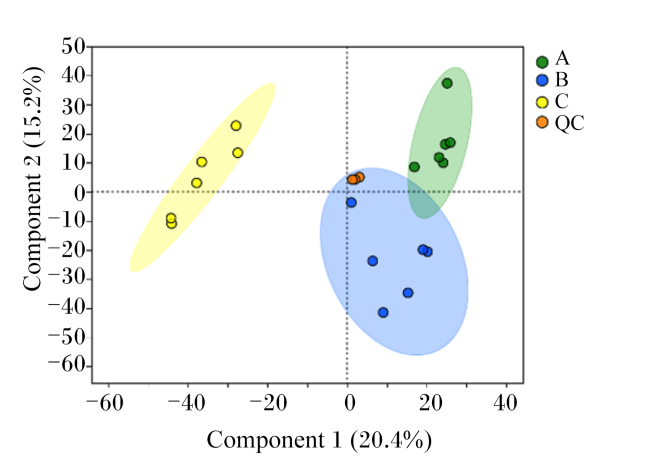
QC样本差异越小,在PCA得分图中聚集程度越高,稳定性越好,数据质量越高。试验A组、试验B组和对照组的血清代谢物PCA得分图如图1所示,可以看到试验A组、试验B组、对照组各组内聚类良好且对照组与试验A组、试验B组分离明显,表明对照组与试验组的代谢物差异较大;全部样本落在95%的置信区间内,说明分析样本中没有异常值;试验A组和试验B组重叠面积大,说明代谢物相似。
图1 血清代谢物的PCA得分图

PC1:排名第1的主成分的得分;PC2:排名第2的主成分的得分。散点颜色表示样本的分组,椭圆表示95%置信区间。图中A、B、C和QC分别为试验A组、试验B组、对照组和质控样本,下图同。

Fig.1 PCA score plot of serum metabolites

PC1: score of the first-ranked principal component; PC2: score of the second-ranked principal component. The scatter color indicates the grouping of samples, and the ellipse indicates the 95% confidence interval. In the figure, A, B and C are test group A, test group B, control group and quality control sample, respectively, the same as below.

2.4.2 多变量统计分析

为了展示模型的分类效果,构建PLS-DA得分图(图2),图中各组样本之间分离程度大,表明分类效果显著,模型建立良好;此外,灌胃罗伊氏乳杆菌I5007的试验A组和试验B组的样本与对照组分类明显,表明灌胃罗伊氏乳杆菌I5007对大鼠血清代谢物了影响。
图2 血清代谢物的PLS-DA得分图

Component 1:第1主成分解释度;Component 2:第2主成分解释度。坐标点的距离代表了样本间聚集和离散程度,距离越近表明样本间相似性越高,距离越远表明样本间差异性越大。

Fig.2 PLS-DA score plot of serum metabolites

Component 1: the first principal component interpretation; Component 2: the second principal component interpretation. The distance of coordinate points represents the degree of aggregation and dispersion between samples. The closer the distance is, the higher the similarity between samples is. The farther the distance is, the greater the difference between samples is.

2.4.3 差异代谢物的筛选及鉴定

2.4.3.1 差异代谢物筛选结果

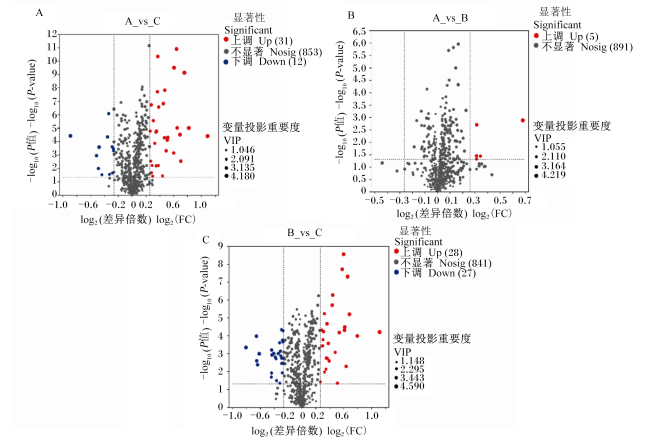
利用LC-MS/MS技术,以P<0.05且VIP>1.0为标准筛选差异代谢物,结果如图3表4所示。与对照组相比,试验A组中共筛选出670个差异代谢物,其中4-羟基维甲酸、雌二醇、四氢皮质酮等31个代谢物显著上调,1-甲基-3-(2-氧代亚丙基)吲哚-2-酮、甘氨酸、石胆酸甘氨酸结合物等12个代谢物显著下调(图3-A);与对照组相比,试验B组中共筛选出770个差异代谢物,其中4-羟基维甲酸、雌二醇、四氢皮质酮、3,7-二羟基-12-氧代胆酸、3,7-二羟基胆烷-24-酸、N-月桂酰苏氨酸等28个代谢物显著上调,甘氨酸、亮氨酰脯氨酸等27个代谢物显著下调(图3-B)。
图3 组间差异代谢物火山图

横坐标“log2(差异倍数)”为代谢物在2组间表达差异的倍数变化值,纵坐标“-log10(P值)”为代谢物在2组间表达差异的统计学检验值,该值越高则表达差异越显著。图中每1个点代表1个特定的代谢物,点的大小表示VIP值的大小。红色点表示显著上调的代谢物,蓝色表示显著下调的代谢物,灰色点为非显著差异代谢物。

Fig.3 Volcano plot of differential metabolites between groups

The abscissa “log2(FC)” is the fold change of the difference in the expression of metabolites between the two groups, and the ordinate “-log10(P-value)” is the statistical test value of the difference in the expression of metabolites between the two groups, and the higher the value, the more significant the difference in expression. Each dot represents a specific metabolite, and the size of the dot indicates the VIP value. The red dots indicate significantly up-regulated metabolites, the blue dots indicate significantly down-regulated metabolites, and the gray dots indicate non-significantly different metabolites.

表4 部分组间差异代谢物

Table 4 Some differential metabolites between groups

项目
Items
差异代谢物
Differential metabolites
趋势
Tendency
试验A组vs对照组
Test group A vs control group
4-羟基维甲酸 显著上调
1-甲基-3-(2-氧代亚丙基)吲哚-2-酮 显著上调
雌二醇 显著上调
甘氨酸 显著下调
石胆酸甘氨酸结合物 显著下调
四氢皮质酮 显著上调
4-羟基-5-[4-羟基-3-(磺酰氧基)]戊酸 显著上调
L-色氨酸 显著下调
N-月桂酰苏氨酸 显著上调
黄嘌呤 显著上调

试验B组vs对照组
Test group B vs control group
4-羟基维甲酸 显著上调
1-甲基-3-(2-氧代亚丙基)吲哚-2-酮 显著上调
雌二醇 显著上调
甘氨酸 显著下调
四氢皮质酮 显著上调
3,7-二羟基-12-氧代胆酸 显著上调
3,7-二羟基胆烷-24-酸 显著上调
7-酮脱氧胆酸 显著上调
N-月桂酰苏氨酸 显著上调
亮氨酰脯氨酸 显著下调

2.4.3.2 典型的差异代谢物统计分析

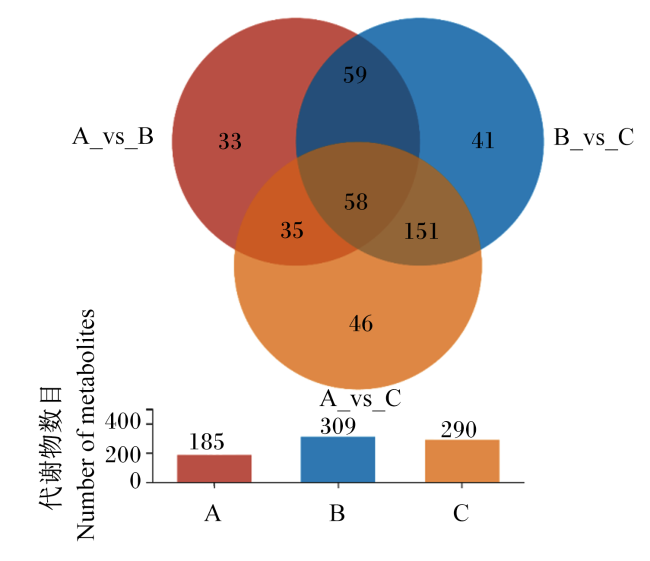
图4所示,试验A组与对照组相比有46个差异代谢物,试验B组与对照组相比有41个差异代谢物,试验A组与试验B组相比有33个差异代谢物。不同组部分特有差异代谢物如表5所示。
图4 差异代谢物韦恩图

不同的颜色代表不同的分组,重叠部分的数字代表多个对比组中共有的代谢物数目,非重叠部分的数字代表对应对比组所特有的代谢物数目。

Fig.4 Venn diagram of differential metabolites

The different colors represent the different groups, the numbers in the overlapping areas represent the number of metabolites common to multiple contrast groups, and the numbers in the non-overlapping areas represent the number of metabolites unique to the corresponding contrast group.

表5 部分差异代谢物的相关通路

Table 5 Related pathways of some differential metabolites

项目
Items
编号
ID
差异代谢物
Differential metabolites
通路
Pathways
试验A组vs对照组
Test group A vs
control group
pos_1 甘胆酸 胆固醇代谢
pos_1970 犬尿酸 色氨酸代谢
pos_5297 溶血磷脂酰胆碱 甘油磷脂代谢;癌症中的胆碱代谢
pos_60 羟基苯乙酰甘氨酸 酪氨酸代谢
pos_6855 尿酸 胆汁分泌;嘌呤代谢
pos_7209 烟酰胺 烟酸和烟酰胺代谢;维生素的消化和吸收
pos_7315 L-苏氨酸 氨基酸的生物合成
pos_7346 异丙肾上腺素 甘氨酸、丝氨酸和苏氨酸代谢
neg_3601 肉豆蔻酸 脂肪酸生物合成
neg_5027 SM[d18∶1/24∶1(15Z)] 鞘脂代谢
neg_1316 苹果酸 柠檬酸循环
试验B组vs对照组
Test group B vs
control group
pos_1109 磷脂酰胆碱 甘油磷脂代谢;花生四烯酸代谢
pos_1241 L-哌可酸 赖氨酸降解
pos_1421 丁酸 蛋白质消化吸收
pos_1625 左旋肉碱 胆汁分泌
pos_431 鸟氨酸 精氨酸生物合成;ABC转运蛋白
pos_6041 皮质酮 脂肪细胞脂解的调节;类固醇激素生物合成
pos_6911 N2乙酰鸟氨酸 氨基酸的生物合成
pos_7564 肌苷酸 嘌呤代谢
neg_3265 磷脂酰乙醇胺 甘油磷脂代谢
neg_711 3-[4-甲氧基-3-
(磺基)苯基]丙酸
苯丙氨酸、酪氨酸和
色氨酸生物合成;果糖和甘露糖代谢

2.4.4 差异代谢物KEGG通路富集分析

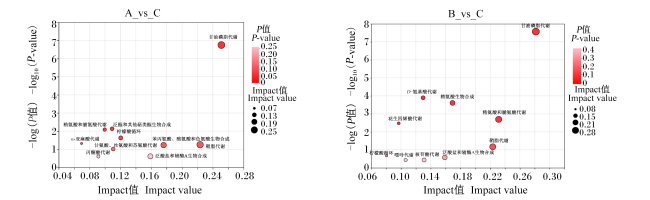
图5所示,试验A组大鼠灌胃罗伊氏乳杆菌I5007后受影响的代谢通路主要有甘油磷脂代谢,鞘脂代谢,苯丙氨酸、酪氨酸和色氨酸生物合成,泛酸盐和辅酶A生物合成,柠檬酸循环,甘氨酸、丝氨酸和苏氨酸代谢,泛醌和其他萜类醌生物合成,精氨酸和脯氨酸代谢,丙酮酸代谢,α-亚麻酸代谢;试验B组大鼠灌胃罗伊氏乳杆菌I5007后受影响的代谢通路主要甘油磷脂代谢、精氨酸和脯氨酸代谢、鞘脂代谢、精氨酸生物合成、泛酸盐和辅酶A生物合成、核苷酸代谢、D-氨基酸代谢、嘌呤代谢、花生四烯酸代谢、柠檬酸循环。2种灌胃模式重叠的代谢通路主要包括甘油磷脂代谢、鞘脂代谢、精氨酸与脯氨酸代谢、泛酸盐和辅酶A生物合成、柠檬酸循环。部分显著富集代谢通路及其对应的差异代谢物如表6所示,不同的灌胃模式所影响的代谢通路有所差异,从影响最大的前5个代谢通路来看,单次灌胃组部分差异代谢物富集于苯丙氨酸、酪氨酸和色氨酸生物合成代谢通路,而多次灌胃组部分差异代谢物富集于精氨酸和脯氨酸代谢。
图5 灌胃罗伊氏乳杆菌I5007后优势代谢物KEGG拓扑分析图

图中每1个气泡表示1个KEGG通路;横坐标“Impact值”表示代谢物在通路中的相对重要性的大小;纵坐标“-log10(P值)”表示代谢物参与通路的富集显著性;气泡大小代表Impact值;气泡越大,表示通路重要性越大;气泡越红,表示差异越显著。

Fig.5 Topological analysis diagram of KEGG for dominant metabolites after gavage of Lactobacillus reuteri I5007

Each bubble represents a KEGG pathway; the abscissa “Impact value” indicates the relative importance of the metabolite in the pathway; and the ordinate “-log10(P-value)” indicates the enrichment significance of the metabolite in the pathway. Bubble size represents the Impact value; the larger the bubble, the greater the importance of the pathway; the redder the bubble, the more significant the difference.

表6 灌胃罗伊氏乳杆菌I5007后部分显著富集代谢通路及其对应的差异代谢物

Table 6 Some significant enrichment of metabolic pathways and their corresponding differential metabolites after gavage of Lactobacillus reuteri I5007

项目
Items
代谢途径
Metabolic pathways
差异代谢物
Differential metabolites
趋势
Tendency
试验A组vs对照组
Test group A vs
control group
甘油磷脂代谢 磷脂酰胆碱 显著上调
鞘脂代谢 C16神经酰胺 显著下调
苯丙氨酸、酪氨酸和色氨酸生物合成 3-脱氢奎宁酸 显著上调
泛酸盐和辅酶A生物合成 泛酸 显著上调
柠檬酸循环 苹果酸 显著上调
试验B组vs对照组
Test group B vs
control group
甘油磷脂代谢 磷脂酰乙醇胺 显著上调
精氨酸和脯氨酸代谢 4-胍基丁酸 显著上调
鞘脂代谢 C16-神经酰胺 显著下调
泛酸盐和辅酶A生物合成 泛酸 显著上调
核苷酸代谢 肌苷酸 显著下调

3 讨论

3.1 灌胃罗伊氏乳杆菌I5007对大鼠生长性能及免疫功能的影响

益生菌因其调节宿主肠道微生物、参与营养代谢或免疫调节的能力而备受关注[10]。研究表明,罗伊氏乳杆菌I5007在促进营养吸收、维持肠道稳态和增强免疫力方面发挥着重要作用[11-12]。本试验中,灌胃罗伊氏乳杆菌I5007显著或极显著提高了大鼠的平均日增重,且多次灌胃组显著高于单次灌胃组。Liu等[13]研究表明,补充罗伊氏乳杆菌I5007(6×10⁹ CFU/d)可提高配方奶喂养仔猪的平均日增重,与本研究结果一致。此外,Wang等[14]研究发现,补充罗伊氏乳杆菌的断奶仔猪生长更快,采食量更高。这进一步说明罗伊氏乳杆菌在促进机体生长发育方面效果显著。IgM由肠道固有层中的浆细胞分泌,是肠道局部免疫屏障的主要组成部分,在肠道保护中起着不可或缺的作用。因此,可以以肠道内IgM含量作为评价肠黏膜免疫的指标。本研究发现,灌胃罗伊氏乳杆菌I5007可显著提高空肠组织中IgM含量,说明罗伊氏乳杆菌I5007可增强肠道免疫屏障功能;此外,2个灌胃罗伊氏乳杆菌组空肠组织中IL-1α含量均较对照组显著提高。促炎细胞因子IL-1α作为核因子-κB(NF-κB)的激活剂,可以进一步促进促炎细胞因子的分泌,进而参与免疫调节。然而,在器官发育方面,灌胃罗伊氏乳杆菌组与对照组相比,肝脏重量与肠道长度均显著降低。有研究表明,体重增加会导致代谢率低的器官与组织(肌肉骨骼)的大小相较于代谢率高的器官和组织(大脑、心脏和胃肠道)不成比例地增加[15-17]。猜测可能是罗伊氏乳杆菌I5007促进了骨骼肌的生长,使体重极显著增长,从而使代谢率低的器官肠道与肝脏组织发育减缓。

3.2 灌胃罗伊氏乳杆菌I5007对大鼠血清代谢物的影响

肠道微生物的变化导致机体代谢物发生改变,从而会影响机体的生长发育。为了解罗伊氏乳杆菌I5007对机体代谢功能的影响,本研究对各组大鼠血清进行了非靶向代谢组学分析。代谢组学分析显示,虽然多次灌胃组的差异代谢物较多,但是不同灌胃模式下的差异代谢物有很多相似之处,这些代谢物主要富集在维生素甲酸、激素、吲哚类生物碱、氨基酸类别上。与之不同的是,多次灌胃组的差异代谢物与对照组相比有较多富集在胆汁酸类别上。益生菌及其代谢物如短链脂肪酸、胆汁酸和色氨酸,能够通过调节免疫、激素和神经系统向远端器官发出信号,具有直接调节各种器官与组织代谢的能力[18-19]。研究表明,益生菌与维生素协同作用,以增强肠道免疫力并促进人体健康[20]。4-羟基维甲酸是体内维生素A的代谢中间产物,主要影响骨骼的生长和促进上皮细胞增生。有研究发现,在妊娠晚期和哺乳期给母鼠补充罗伊氏乳杆菌Fn041,可通过增加血浆视黄醇和犬尿氨酸含量促进视黄醇的吸收和代谢,直接诱导抗阿尔茨海默症(AD)免疫应答,并通过加强黏膜屏障和增加盲肠中特异性抗AD细菌的丰度起到间接作用[21]。本研究结果与一致,灌胃罗伊氏乳杆菌I5007增加了大鼠血清中视黄醇类物质4-甲基维甲酸的水平。大量研究已经证实肠道菌群和性激素可以相互作用。有研究表明,肠道菌群中具有雌激素基因的细菌可以通过加速雌激素在肠道中的解离和羟基化来影响雌激素的代谢[22]。肠道微生物可将色氨酸转化为吲哚及其衍生物,吲哚及其衍生物已被证明是微生物菌群-肠-脑轴上的重要介质,参与多种中枢神经系统疾病的发生发展[23]。本研究发现,灌胃罗伊氏乳杆菌I5007增加了血清中代谢物吲哚衍生物1-甲基-3-(2-氧代亚丙基)吲哚-2-酮的水平,同时血清中L-色氨酸的水平下降。益生菌可以通过代谢肠道氨基酸来主动重塑宿主的氨基酸平衡[24]。从差异代谢物中可以看出,灌胃罗伊氏乳杆菌I5007后可以改变血清中色氨酸、脯氨酸、苏氨酸等多种氨基酸的水平;同时,多次灌胃组与单次灌胃组相比较,差异代谢物部分多为胆汁酸类别。肠道菌群产生胆盐水解酶将初级胆汁酸去结合和脱羟基,产生次级胆汁酸(脱氧胆酸和石胆酸),因此肠道菌群控制着胆汁酸的整个稳态,从而影响代谢途径,比如葡萄糖代谢和脂质代谢影响各种宿主的病理生理过程[25]。本试验中,灌胃多次罗伊氏乳杆菌I5007影响血清中3,7-二羟基-12-氧代胆酸和7-酮脱氧胆酸等不同类型胆汁酸的水平。由此可见,多次灌胃罗伊氏乳杆菌I5007可能通过影响肠道菌群及其代谢物而影响胆汁酸谱。

3.3 灌胃罗伊氏乳杆菌I5007对大鼠血清代谢通路的影响

在通路水平上通过代谢组学分析发现,罗伊氏乳杆菌I5007灌胃后,2种灌胃模式重叠的代谢通路主要有甘油磷脂代谢、鞘脂代谢、精氨酸与脯氨酸代谢、泛酸和辅酶A生物合成、柠檬酸循环。甘油磷脂与鞘脂是细菌膜的主要成分,同时机体内可通过肠道微生物额外合成影响脂质类物质代谢[26]。磷脂酰胆碱(PC)和磷脂酰乙醇胺(PE)是所有哺乳动物细胞膜中含量最高的磷脂,组织与细胞PC/PE比值可影响能量代谢,并与疾病进展有关[27]。本试验中,灌胃罗伊氏乳杆菌I5007显著增加了甘油磷脂代谢途径中磷脂酰胆碱与磷脂酰乙醇胺的水平,原因可能是灌胃罗伊氏乳杆菌I5007改变了肠道菌群结构,从而影响了其代谢通路,今后还需要进一步研究和验证甘油磷脂与微生物群的相联系的代谢机制。精氨酸作为哺乳动物的必需氨基酸,在肌肉和神经的代谢能力中起到重要作用,并且是脯氨酸的合成前体。精氨酸也在肠道和乳酸菌中生物合成,如植物乳杆菌[28]。罗伊氏乳杆菌I5007的宏基因组分析证实它含有精氨酸生物合成相关基因[29],表明罗伊氏乳杆菌I5007存在合成精氨酸的潜能。本试验发现,罗伊氏乳杆菌I5007影响了泛酸与辅酶A的合成通路,且增加了代谢产物辅酶的水平。据文献报道,肠道微生物可合成细菌性维生素,而维生素又是一类代谢反应的必需辅酶[30]。肠道微生物可以合成维生素K2以及水溶性B族维生素,如生物素、钴胺素、叶酸、烟酸、泛酸、吡哆醇、核黄素和硫胺素等[31]。罗伊氏乳杆菌的I5007不同灌胃模式所影响的代谢通路有所差异,从影响最大的前5个代谢通路来看,单次灌胃组部分差异代谢物富集于苯丙氨酸、酪氨酸和色氨酸生物合成代谢通路,而多次灌胃组部分差异代谢物富集于精氨酸和脯氨酸代谢,说明不同灌胃模式对不同类型氨基酸代谢通路的影响有所不同。

4 结论

罗伊氏乳杆菌I5007通过调节大鼠体内营养代谢,尤其是能量和氨基酸代谢,进而调控营养物质沉积,最终影响大鼠的生长速度、器官发育和免疫功能。
[1]
高林, 白子金, 冯波, 等. 微生物饲料添加剂研究与应用进展[J]. 微生物学杂志, 2014, 34(2):1-6.

GAO L, BAI Z J, FENG B, et al. Research and application progress of direct-fed microbials as feed additive[J]. Journal of Microbiology, 2014, 34(2):1-6. (in Chinese)

[2]
BRON P A, KLEEREBEZEM M, BRUMMER R J, et al. Can probiotics modulate human disease by impacting intestinal barrier function?[J]. British Journal of Nutrition, 2017, 117(1):93-107.

[3]
SONG X R, LIU Y N, ZHANG X, et al. Role of intestinal probiotics in the modulation of lipid metabolism:implications for therapeutic treatments[J]. Food Science and Human Wellness, 2023, 12(5):1439-1449.

[4]
HO A H Y, WONG S, LUI R. Topic:nutrition and the gut-liver-brain axis[J]. Current Hepatology Reports, 2022, 21(4):99-110.

[5]
黄沧海. 仔猪复合益生乳酸杆菌制剂及其作用机理的研究[D]. 博士学位论文. 北京: 中国农业大学, 2003.

HUANG C H. Study of a complex lactobacilli preparation and its function on piglets[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2003. (in Chinese)

[6]
WANG X Q, YANG F, LIU C, et al. Dietary supplementation with the probiotic Lactobacillus fermentum I5007 and the antibiotic aureomycin differentially affects the small intestinal proteomes of weanling piglets[J]. The Journal of Nutrition, 2012, 142(1):7-13.

[7]
HOU C L, LIU H, ZHANG J, et al. Intestinal microbiota succession and immunomodulatory consequences after introduction of Lactobacillus reuteri I5007 in neonatal piglets[J]. PLoS One, 2015, 10(3):e0119505.

[8]
杨凤娟, 曾祥芳, 谯仕彦. 罗伊氏乳杆菌I5007对新生仔猪肠道形态、二糖酶活性和紧密连接蛋白表达的影响[J]. 中国农业科学, 2014, 47(22):4506-4515.

DOI

YANG F J, ZENG X F, QIAO S Y. Effect of Lactobacillus reuteri I5007 on intestinal morphology,disaccharidase activity and tight junction protein expression in newborn piglets[J]. Scientia Agricultura Sinica, 2014, 47(22):4506-4515. (in Chinese)

[9]
ZHANG A H, SUN H, YAN G L, et al. Mass spectrometry-based metabolomics:applications to biomarker and metabolic Pathway research[J]. Biomedical Chromatography, 2016, 30(1):7-12.

[10]
SÁNCHEZ B, DELGADO S, BLANCO-MÍGUEZ A, et al. Probiotics,gut microbiota,and their influence on host health and disease[J]. Molecular Nutrition & Food Research, 2017, 61(1):1600240.

[11]
MU Q H, TAVELLA V J, LUO X M. Role of Lactobacillus reuteri in human health and diseases[J]. Frontiers in Microbiology, 2018,9:757.

[12]
WANG M J, WU H Q, LU L H, et al. Lactobacillus reuteri promotes intestinal development and regulates mucosal immune function in newborn piglets[J]. Frontiers in Veterinary Science, 2020,7:42.

[13]
LIU H, ZHANG J, ZHANG S H, et al. Oral administration of Lactobacillus fermentum I5007 favors intestinal development and alters the intestinal microbiota in formula-fed piglets[J]. Journal of Agricultural and Food Chemistry, 2014, 62(4):860-866.

[14]
WANG A N, CAI C J, ZENG X F, et al. Dietary supplementation with Lactobacillus fermentum I5007 improves the anti-oxidative activity of weanling piglets challenged with diquat[J]. Journal of Applied Microbiology, 2013, 114(6):1582-1591.

[15]
GLAZIER D S. Metabolic scaling in complex living systems[J]. Systems, 2014, 2(4):451-540.

[16]
HARRISON J F. Do performance-safety tradeoffs cause hypometric metabolic scaling in animals?[J]. Trends in Ecology & Evolution, 2017, 32(9):653-664.

[17]
GLAZIER D S. How metabolic rate relates to cell size[J]. Biology, 2022, 11(8):1106.

[18]
ZHAI L X, WU J Y, LAM Y Y, et al. Gut-microbial metabolites,probiotics and their roles in type 2 diabetes[J]. International Journal of Molecular Sciences, 2021, 22(23):12846.

[19]
SEYYEDI Z, PARCHEBAFI A, KASHANI H H. The microbiota,secondary metabolites and diseases:a putative role of probiotics in prevention and treatment of cancers[J/OL]. Research Square.(2022-06-03)[2024-08-01]. https://europepmc.org/article/PPR/PPR501875.

[20]
BARKHIDARIAN B, ROLDOS L, ISKANDAR M M, et al. Probiotic supplementation and micronutrient status in healthy subjects:a systematic review of clinical trials[J]. Nutrients, 2021, 13(9):3001.

[21]
QI C, TU H Y, ZHAO Y N, et al. Breast milk-derived Limosilactobacillus reuteri prevents atopic dermatitis in mice via activating retinol absorption and metabolism in Peyer’s patches[J]. Molecular Nutrition & Food Research, 2023, 67(2):2200444.

[22]
KAU A L, AHERN P P, GRIFFIN N W, et al. Human nutrition,the gut microbiome and the immune system[J]. Nature, 2011, 474(7351):327-336.

[23]
YE X W, LI H Y, ANJUM K, et al. Dual role of indoles derived from intestinal microbiota on human health[J]. Frontiers in Immunology, 2022,13:903526.

[24]
WANG W W, QIAO S Y, LI D F. Amino acids and gut function[J]. Amino Acids, 2009, 37(1):105-110.

DOI PMID

[25]
RIDLON J M, KANG D J, HYLEMON P B, et al. Bile acids and the gut microbiome[J]. Current Opinion in Gastroenterology, 2014, 30(3):332-338.

DOI PMID

[26]
RYAN E, JOYCE S A, CLARKE D J. Membrane lipids from gut microbiome-associated bacteria as structural and signalling molecules[J]. Microbiology, 2023, 169(3):001315.

[27]
VAN D V J N, KENNELLY J P, WAN S, et al. The critical role of phosphatidylcholine and phosphatidylethanolamine metabolism in health and disease[J]. Biochimica et Biophysica Acta:Biomembranes, 2017, 1859(9 Pt B):1558-1572.

[28]
BRINGEL F, FREY L, BOIVIN S, et al. Arginine biosynthesis and regulation in Lactobacillus plantarum:the carA gene and the argCJBDF cluster are divergently transcribed[J]. Journal of Bacteriology, 1997, 179(8):2697-2706.

[29]
侯成立. 罗伊氏乳杆菌全基因组序列分析及其调节仔猪肠黏膜免疫功能的研究[D]. 博士学位论文. 北京: 中国农业大学, 2015.

HOU C L. Whole genome sequence analysis of Lactobacillus reuteri and its regulation in intestinal mucosal immunity of piglets[D]. Ph.D. Thesis. Beijing: China Agricultural University, 2015. (in Chinese)

[30]
SAID H M, NEXO E. Gastrointestinal handling of water-soluble vitamins[J]. Comprehensive Physiology, 2018, 8(4):1291-1311.

DOI PMID

[31]
ROSSI M, AMARETTI A, RAIMONDI S. Folate production by probiotic bacteria[J]. Nutrients, 2011, 3(1):118-134.

DOI PMID

文章导航

/