研究论文

高氨氮转化酵母菌的分离鉴定及抗逆性研究

  • 曹新农 ,
  • 陈星 ,
  • 李淑珍 ,
  • 刘英豪 ,
  • 刘国华 , *
展开
  • 中国农业科学院饲料研究所,农业农村部动物产品质量安全饲料源性因子风险评估实验室,农业农村部饲料生物技术重点实验室,北京 100081
* 刘国华,研究员,博士生导师,E-mail:

曹新农(1999—),男,安徽和县人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-09-04

  网络出版日期: 2025-04-15

基金资助

中国农业科学院科技创新工程重大科研任务(CAAS-ZDRW202303)

A Study of Isolation, Identification and Stress Resistance of High-Efficiency Yeast Strains for Ammonia Nitrogen Conversion

  • CAO Xinnong ,
  • CHEN Xing ,
  • LI Shuzhen ,
  • LIU Yinghao ,
  • LIU Guohua , *
Expand
  • Key Laboratory of Feed Biotechnology, Ministry of Agriculture and Rural Affairs, Risk Assessment Laboratory of Feed Source Factors for Animal Product Quality and Safety, Ministry of Agriculture and Rural Affairs, Institute of Feed Research, Chinese Academy of Agricultural Sciences, Beijing 100081, China
* professor, E-mail:

Received date: 2024-09-04

  Online published: 2025-04-15

摘要

本试验旨在筛选出具有高效氨氮转化能力的酵母菌,研究其对不同环境条件下的抗逆性。在肉鸡粪便样品中筛选酵母菌,并通过分析筛选酵母菌的菌体生物量、蛋白质含量、总蛋白质得率、氨氮降解率和生长曲线等指标,得到一株具有高氨氮转化能力的酵母菌,并对其进行形态学和分子生物学鉴定。对筛选菌株进行抗逆性分析,并与常见的单细胞蛋白生产菌株进行比较。结果表明: 菌株Y-7在筛选培养基中的菌体生物量为4.92 g/L,总蛋白质得率为1.76 g/L,氨氮降解率为97.63%,均显著高于其余6株菌(P<0.05)。通过比较7株疑似酵母菌的生长曲线,菌株Y-7的生长速度最快,该菌株被鉴定为克鲁斯假丝酵母(Candida krusei)。经过抗逆性对比分析,菌株Y-7的耐高温和耐高盐能力强于酿酒酵母和产朊假丝酵母。综上所述,本试验筛选出一株具有高氨氮利用能力、高生长速率和高抗逆性的克鲁斯假丝酵母,为单细胞菌体蛋白的应用提供了新的方法。

本文引用格式

曹新农 , 陈星 , 李淑珍 , 刘英豪 , 刘国华 . 高氨氮转化酵母菌的分离鉴定及抗逆性研究[J]. 动物营养学报, 2025 , 37(4) : 2763 -2771 . DOI: 10.12418/CJAN2025.231

Abstract

This study aimed to screen yeast strains with high-efficiency ammonia nitrogen transformation capabilities and investigate their tolerance under diverse environmental conditions. Yeasts were isolated from broiler chicken manure samples, and a strain with exceptional ammonia nitrogen transformation ability was identified through comprehensive analysis of bacteria biomass, protein content, total protein yield, ammonia nitrogen degradation rate and growth kinetics. The morphological and molecular biological characterizations were subsequently conducted on the selected strain. The stress tolerance of the screened strain was evaluated and compared with common single cell protein strains. The results showed that the strain Y-7 in the screening medium exhibited a bacteria biomass of 4.92 g/L, a total protein yield of 1.76 g/L and an ammonia nitrogen degradation rate of 97.63%, all of which were significantly higher than those of the other six strains (P<0.05). Growth curve analysis of seven suspected yeast strains revealed that strain Y-7 demonstrated the fastest growth rate, and this strain was identified as Candida krusei. Comparative stress tolerance analysis revealed that strain Y-7 possessed superior heat and high-salt tolerance compared to Saccharomyces cerevisiae and Candida utilis. In summary, this study isolates a Candida krusei, which exhibits high ammonia nitrogen utilization efficiency, rapid growth rate and robust stress tolerance, offering a novel approach for the application of single cell protein.

在全球人口持续增长的背景下,人们对食物的需求急剧增加,特别是蛋白质来源的缺乏已经成为困扰人类的问题[1]。在此需求下,畜牧业得到快速发展,但环境污染和自然资源紧张的问题日益突显[2]。因此,寻找和开发对动物饲养有益且对生态环境友好的替代蛋白质具有重要的意义。单细胞蛋白(single cell protein,SCP)又称微生物蛋白,是指从微生物细胞培养中分离出来的干燥的微生物死亡的细胞或纯化蛋白[3]。SCP被认为是一种重要的蛋白质资源[4]。SCP不仅富含蛋白质,还含有碳水化合物、脂质、矿物质、核酸和维生素[3]。特别是SCP含有高水平的必需氨基酸,如蛋氨酸和赖氨酸[5],使其在营养上比传统蛋白质来源更有应用前途。此外,SCP的生产原料来源广泛、培育周期短、收获率高,且不受季节、气候和土壤等环境条件影响[6]
酵母菌、细菌、霉菌和藻类等微生物可以生产大量的SCP[7],其中酵母菌细胞较大、生长迅速,对酸、高盐和高浓度底物具有高抗逆性[8],是市场上广泛认可并普遍使用的生产SCP的菌株。酵母菌具备将无机氮源转化为有机氮化合物的生物合成能力,但酵母菌对不同来源的无机氮源呈现在出等级偏好[9-10]。酵母菌可以使用铵离子作为氮的唯一来源,因为它们拥有编码所有氨基酸生物合成酶的基因[10]。在酵母SCP生产过程中,菌株对无机氮源的利用效率及其生长速率是决定SCP生产成本的关键因素。因此,筛选具有高氨氮利用效率和快速生长特性的菌株,对降低酵母SCP生产成本具有重要意义。此外,在发酵过程中,酵母细胞不可避免受到多种相互关联的应激刺激,如高渗透压、高温、高酸、高浓度乙醇和饥饿等[11],这些应激条件会显著影响酵母菌群的工业发酵效率[12]。因此,本研究拟从鸡粪中筛选出氨氮利用能力强、蛋白质含量高、生长速度快且具有高抗逆性的菌株,以期为SCP的生产应用提供理论依据和数据参考。

1 材料与方法

1.1 试验材料

1.1.1 样品

舍饲基础饲粮的肉鸡粪便采集于中国农业科学院北京昌平南口中试基地肉鸡舍。

1.1.2 菌株

福邦酿酒酵母(Saccharomyces cerevisiae)Ⅰ型购自安琪酵母股份有限公司。产朊假丝酵母(Candida utilis)CICC 1769购自中国工业微生物菌种保藏管理中心(China Center of Industrial Culture Collection,CICC)。

1.1.3 主要试剂及仪器

主要试剂:无水葡萄糖、蛋白胨、酵母浸粉、琼脂粉、氯霉素均为生化试剂,购自北京索莱宝科技有限公司;(NH4)2SO4、NaCl、MgSO4·7H2O、K2HPO4·3H2O、FeSO4·7H2O、ZnSO4、CaCl2、CoCl2·6H2O均为分析纯,购自上海麦克林生化科技股份有限公司;乙二胺四乙酸(EDTA)、MnCl2·4H2O、(NH4)6Mo7O24·4H2O、CuSO4·5H2O均为分析纯,购自国药集团化学试剂有限公司。
主要仪器:电子天平(ME204型)和pH计(FiveEasy PlusTM型),购自瑞士Mettler Toledo公司;立式压力灭菌器(LS-50HD型),购自江阴滨江医疗设备有限公司;全自动生长曲线分析仪(Bioscreen C PRO型),购自芬兰Oy Growth Curves Ab Ltd公司;生物显微镜(CX43型),购自日本Olympus公司;恒温振荡器(IS-RDS4型),购自广州深华公司;超净工作台(YT-CJ-2D型),购自北京仪诺科兴科技发展有限公司;高速冷冻离心机(HR20M型),购自湖南赫西仪器装备有限公司;自动微生物鉴定分析系统(GEN III MicroStation型),购自美国Biolog公司。

1.1.4 培养基成分及配制

富集培养基[13]:葡萄糖10.0 g,(NH4)2SO4 2.0 g,NaCl 1.0 g,MgSO4·7H2O 1.0 g,K2HPO4·2H2O 1.0 g,FeSO4·7H2O 0.4 g,氯霉素0.1 g,微量元素溶液1.0 mL,蒸馏水1 L。115 ℃高压灭菌30 min,pH 7.2~7.4。
筛选培养基:葡萄糖15.0 g,(NH4)2SO4 1.43 g,NaCl 1.0 g,K2HPO4·2H2O 0.5 g,MgSO4·7H2O 0.25 g,微量元素溶液1.0 mL,蒸馏水1 000 mL。115 ℃高压灭菌30 min,pH 7.2~7.4。
微量元素溶液[14]:EDTA 10.0 g,ZnSO41.2 g,CaCl2 1.5 g,MnCl2·4H2O 1.0 g,FeSO4·7H2O 2.0 g,(NH4)6Mo7O24·4H2O 1.0 g,CuSO4·5H2O 1.0 g,CoCl2·6H2O 1.0 g,水1 000 mL。pH 7.2~7.4。
YPD培养基:葡萄糖20 g,蛋白胨20 g,酵母浸粉10 g,水1 000 mL。固体培养基在此基础上补加20 g琼脂粉。115 ℃高压灭菌30 min。
BUY培养基:BUY培养基60 g,水1 000 mL。121 ℃高压灭菌20 min,pH 5.6。

1.2 试验方法

1.2.1 菌株初筛

取30 g舍饲基础饲粮的肉鸡粪便,加入带有玻璃珠的150 mL灭菌蒸馏水的锥形瓶中,在转速为200 r/min、温度为30 ℃的摇床中培养30 min后,取5 mL菌悬液,接种于50 mL灭菌后的富集培养基中,在同上条件的摇床中培养48 h后,取5 mL富集培养液接入新的富集培养基中,如此反复连续富集3次[15]。将富集培养后的菌液按梯度稀释,均匀涂布于YPD固体培养基上,在30 ℃恒温箱内倒置恒温培养24~48 h。挑取平板上具有不同菌落特征的疑似酵母菌落进行重复划线分离、纯化处理,至所获菌株的形态完全一致后,保藏备用。

1.2.2 菌株复筛

将上述纯化后的酵母菌分别接入YPD培养基中,活化培养24 h备用。分别吸取1 mL菌液置于无菌离心管中,在4 ℃、4 145×g条件下离心10 min后弃上清液,用无菌生理盐水洗涤3次。最后用1 mL无菌生理盐水重悬,制成菌悬液,接入装有100 mL的筛选培养基的锥形瓶中,置于30 ℃、200 r/min摇床中培养48 h后,通过测定培养基中氨氮含量、酵母菌的生物量、蛋白质含量和总蛋白质得率,分析不同酵母菌的氨氮转化能力。取氨氮利用能力较高的菌株培养液10 μL,接入装有190 μL液体YPD培养基的100孔板中,将100孔板放入Bioscreen C PRO型全自动生长曲线分析仪中,以YPD液体培养基为空白对照,设置温度为30 ℃,培养时间48 h,检测波长为600 nm,检测时间间隔为2 h[16]。观察各菌株的生长曲线,最终筛选出生长较快的疑似酵母菌。

1.2.3 酵母菌的鉴定及生理生化特性

1.2.3.1 菌落及菌体的形态学观察

将疑似酵母菌划线接种到YPD固体培养基上,30 ℃培养72 h,观察菌落形态。用接种环取适量菌体置于载玻片上,制成水浸片,在生物显微镜下观察菌体的细胞形态。

1.2.3.2 分子生物学鉴定

将疑似酵母菌Y-7在YPD琼脂培养基培养后,送至北京擎科生物技术有限公司进行分析鉴定。采用18S rDNA分子鉴定,试验所用引物为真菌通用引物:NS1(5'-GTAGTCATATGCTTGTCTC-3')和NS8(5'-TCCGCAGGTTCACCTACGGA-3')。通过BLAST数据库对测序结果进行比对,搜寻同源序列,再用MEGA7.0软件中邻接法构建系统进化树。

1.2.3.3 生理生化试验

将分离纯化好的菌株转到BUY平板上,26 ℃培养48 h,制备菌悬液接种于YT微孔板,26 ℃培养72 h。分别在24、48和72 h,使用美国Biolog公司的MicrologTM 3软件采集数据,并进行生理生化特性分析。

1.2.4 酵母菌抗逆性对比研究

1.2.4.1 耐温性

将酿酒酵母、产朊假丝酵母和酵母菌Y-7的种子液按2%的接种量接入已灭菌的YPD培养基中,分别在不同温度(30、35、40、45和50 ℃)下静止培养24 h后,取适量酵母菌液于波长600 nm下测定吸光度值,重复3次,取平均值。

1.2.4.2 耐酸性

将酿酒酵母、产朊假丝酵母和酵母菌Y-7的种子液按2%的接种量接入pH分别为1、2、3、4、5和6的YPD培养基中,于30 ℃静止培养24 h后,取适量酵母菌液于波长600 nm下测定吸光度值,重复3次,取平均值。

1.2.4.3 耐盐性

将酿酒酵母、产朊假丝酵母和酵母菌Y-7的种子液按2%的接种量接入NaCl浓度为5%、7%、9%、11%和13%的YPD培养基中,于30 ℃静止培养24 h后,取适量酵母菌液于波长600 nm下测定吸光度值,重复3次,取平均值。

1.3 检测指标

菌体生物量的测定:取20 mL发酵液放入预称重的离心管中,在8 000×g条件下离心10 min,将离心得到的沉淀洗涤3次,并于65 ℃条件烘至恒重,称量并计算菌体生物量[17]
氨氮降解率的测定:采用苯酚-次氯酸盐法测定上清液的氨氮含量[18],并计算氨氮降解率:
氨氮降解率(%)=[(初始氨氮含量-上清液氨氮含量)/初始氨氮含量]×100。
菌体蛋白质含量的测定:将烘干的菌体粉碎后,采用中华人民共和国国家标准《饲料中粗蛋白的测定 凯氏定氮法(GB/T 6432—2018)》[19]的方法测定菌体蛋白质含量,并计算总蛋白质得率:
总蛋白质得率(g/L)=菌体生物量×菌体蛋白质含量。

1.4 数据统计与分析

数据经Excel 2021初步处理后,采用SPSS 26.0软件中one-way ANOVA程序进行方差分析,并用Duncan氏法进行多重比较,结果以平均值±标准差表示。P<0.05为差异显著。采用Graphpad Prism 8.0软件进行绘图。

2 结果与分析

2.1 酵母菌的筛选

从采集的鸡粪中分离出16株疑似酵母菌,编号分别为Y-1~Y-16。如表1所示,对初筛菌株进行复筛,结果共获得7株氨氮降解率在30%以上的疑似酵母菌。其中,菌株Y-7的生物量、总蛋白质得率和氨氮降解率均显著高于其余6株菌(P<0.05)。菌株Y-6的蛋白质含量显著高于其余6株菌(P<0.05)。
表1 筛选酵母菌对氨氮的利用能力

Table 1 Utilization of ammonia nitrogen by screened yeasts

项目
Items
生物量
Biomass/(g/L)
蛋白质含量
Protein content/%
氨氮降解率
Ammonia nitrogen
degradation rate/%
总蛋白质得率
Total protein yield/(g/L)
菌株Strains
Y-1 3.66±0.10b 34.45±0.20e 95.18±0.37b 1.26±0.03b
Y-3 3.31±0.03c 35.40±0.19d 64.70±0.46d 1.17±0.01c
Y-6 1.25±0.04e 48.13±0.20a 39.46±0.24g 0.60±0.02e
Y-7 4.92±0.02a 35.66±0.08d 97.63±0.31a 1.76±0.01a
Y-9 1.55±0.03d 41.64±0.28c 40.47±0.31f 0.64±0.02d
Y-11 1.52±0.03d 43.15±0.21b 41.81±0.52e 0.65±0.02d
Y-14 3.62±0.02b 33.24±0.19f 66.75±0.44c 1.20±0.01c
PP-value <0.001 <0.001 <0.001 <0.001

同列数据肩标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

In the same column, values with the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05).

图1所示,对上述7株菌的生长曲线进行分析,结果发现菌株Y-7生长速度快于其余6株菌,0~2 h处于迟滞期,2~12 h处于对数增长期,12 h后进入平台期。综上所述,复筛出菌株Y-7进行下一步形态学观察和分子生物学鉴定。
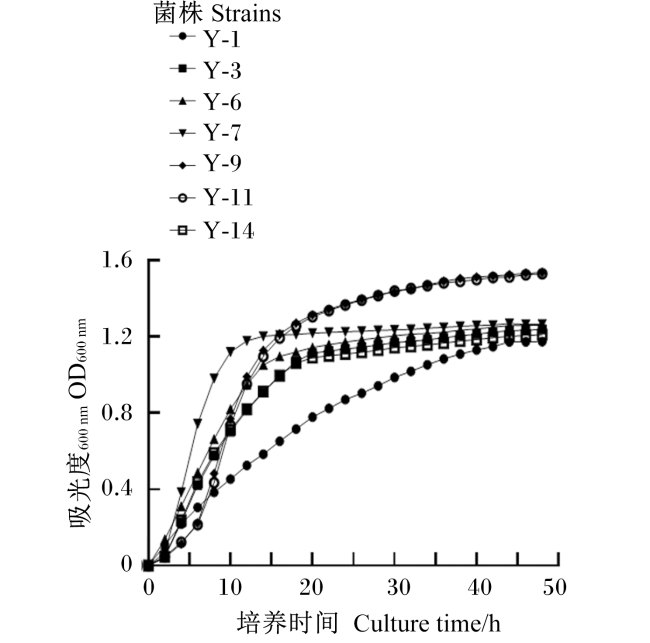
图1 筛选酵母菌的生长曲线

Fig.1 Growth curves of screened yeasts

2.2 酵母菌的鉴定及生理生化特性

2.2.1 菌落及菌体形态的观察

图2-A所示,观察菌株Y-7的菌落的形态特征,菌落呈圆形、白色、光滑、黏稠、边缘整齐。如图2-B所示,进行细胞形态观察,细胞呈卵圆形、椭圆形,单个或双个,大小(1.3~1.9) μm×(3.5~10) μm。
图2 菌落及菌体形态的观察

Fig.2 Observation of colonial and cell morphologies

2.2.2 酵母菌的分子生物学鉴定

图3可知,菌株Y-7所测得的18S rDNA序列与已发表的假丝酵母菌属(Candida)相近种模式菌的序列构建了系统发育树,结果显示菌株Y-7与克鲁斯假丝酵母(Candida krusei)NRRL-Y-5396聚在同一分支,亲缘关系最近,结合形态特征,确定菌株Y-7为克鲁斯假丝酵母。
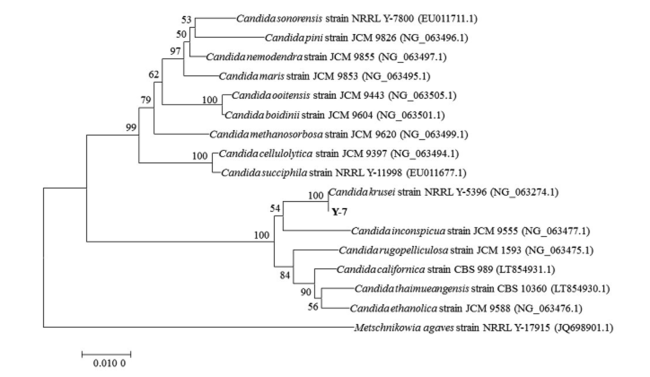
图3 基于18S rDNA基因序列菌株Y-7的系统发育树

Candida:假丝酵母菌属;Candida krusei:克鲁斯假丝酵母;strain:菌株。

Fig.3 Phylogenetic tree of strain Y-7 based on 18S rDNA gene sequence

2.2.3 酵母菌的生理生化特性

表2所示,菌株Y-7可以代谢的碳源种类有2种,包括N-乙酰基-D-葡萄糖氨、α-D-葡萄糖;处于边界值的1种(菊糖);不能代谢的有31种。此外,菌株Y-7能够同化的碳源有3种,包括N-乙酰基-D-葡萄糖氨、α-D-葡萄糖、琥珀酸单甲基酯和D-木糖/戊醛糖;处于边界值的有3种,包括L-谷氨酸、甘油、D-木糖;不能同化的有53种。
表2 菌株Y-7的碳源利用情况

Table 2 Carbon source utilization profile of strain Y-7

孔号Well numbers 碳源Carbon source 结果Results
A12 菊糖/天然果寡糖 边界值
C1 N-乙酰基-D-葡萄糖氨 +
C2 α-D-葡萄糖 +
D6 L-谷氨酸 边界值
F1 N-乙酰基-D-葡萄糖氨 +
F3 α-D-葡萄糖 +
G8 甘油/丙三醇 边界值
H1 D-木糖/戊醛糖 边界值
H2 琥珀酸单甲基酯和D-木糖/戊醛糖 +

+表示阳性反应。

+ indicated a positive reaction.

2.3 酵母菌的抗逆性分析

2.3.1 酵母菌的耐高温性比较

图4可知,在温度30和35 ℃时,3株酵母菌的吸光度值保持稳定;在温度40 ℃时,酿酒酵母和产朊假丝酵母的吸光度值快速下降,菌株Y-7的吸光度值显著高于酿酒酵母和产朊假丝酵母(P<0.05);在温度45 ℃时,菌株Y-7能微量生长,酿酒酵母和产朊假丝酵母不生长;在温度50 ℃时,3种酵母菌均不生长。
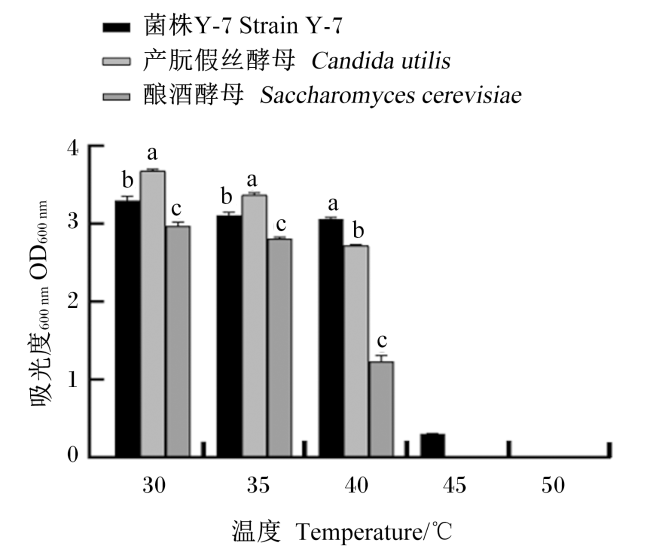
图4 酵母菌的耐高温性比较

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.4 Comparison of thermotolerance of yeasts

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.3.2 酵母菌的耐酸性比较

图5可知,当pH=1时,3株酵母菌均不生长;当pH在2~4时,3株酵母菌的吸光度值快速上升,且其吸光度值没有显著差异(P>0.05);当pH在5~6时,酿酒酵母和产朊假丝酵母的吸光度值基本保持不变,菌株Y-7的吸光度值继续增加。由此可见,酿酒酵母和产朊假丝酵母的最适pH为5,菌株Y-7的最适pH为6或更高。
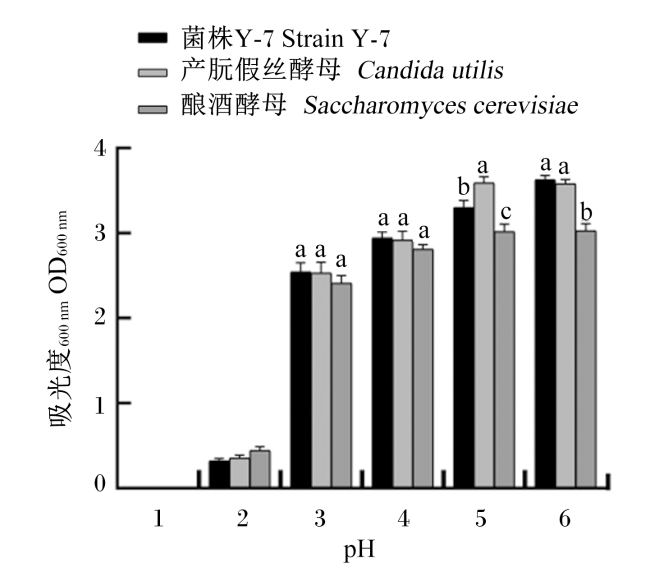
图5 酵母菌的耐酸性比较

Fig.5 Comparison of acid tolerance of yeasts

2.3.3 酵母菌的耐盐性比较

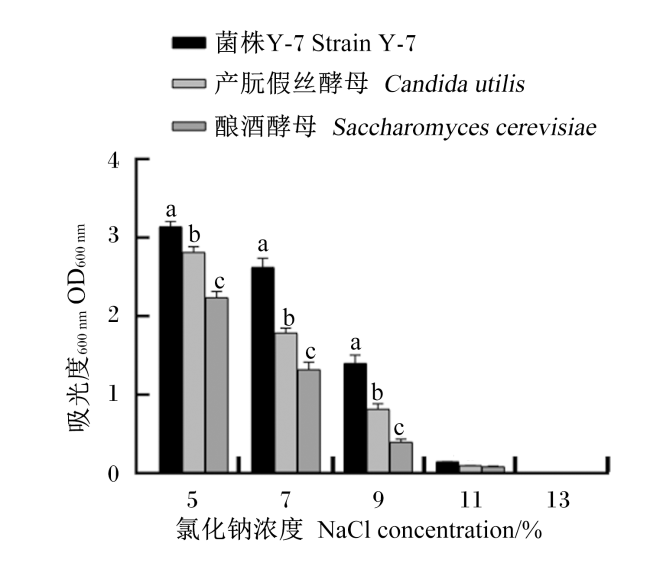
图6可知,随着培养基中氯化钠浓度的增大,3株酵母菌的吸光度值快速下降。在氯化钠浓度5%~9%时,菌株Y-7的吸光度值显著高于酿酒酵母和产朊假丝酵母(P<0.05);在氯化钠浓度11%~13%时,3株酵母菌微量生长或不生长。
图6 酵母菌的耐盐性比较

Fig.6 Comparison of salt tolerance of yeasts

3 讨论

本研究从鸡粪中分离出的菌株Y-7经形态学观察和分子生物学鉴定,确定该菌株为克鲁斯假丝酵母。克鲁斯假丝酵母被认为广泛分布于土壤、食物、蔬菜和水果等自然环境中[20]。克鲁斯假丝酵母在传统和工业的生物技术应用中扮演着重要角色,它在多种发酵食品生产中发挥作用,如乳制品、可可、木薯和酒类的发酵生产,对食品的风味和质地有显著影响[21]。此外,克鲁斯假丝酵母在生产酶方面也具有潜力,例如它能够产生植酸酶和羰基还原酶,这些酶在食品、饲料和制药行业中有广泛应用[22-23]。克鲁斯假丝酵母常与其他酵母共培养生产SCP。例如,克鲁斯假丝酵母S01和酵母LK3G共培养发酵高粱水解液得到SCP中蛋白质含量为47%~50%,其氨基酸谱与联合国粮食及农业组织(FAO)的参考值相比具有优势[24];克鲁斯假丝酵母与马克斯克鲁维酵母(Kluyveromyces marxianus)在乳清中混合培养,得到了蛋白质含量为43.4%的SCP[25]
研究表明,氨态氮被认为是酵母菌首选氮源之一[26]。Englezos等[27]研究表明,当铵作为唯一氮源时,酿酒酵母有着最短的迟滞期(9.11 h)。在酵母SCP的生产过程中,酵母菌的生物量直接关系到SCP的产量,高生物量表明可以收获更多的酵母细胞,从而获得更多的蛋白质;酵母蛋白质含量是衡量SCP营养价值的关键指标,高蛋白质含量表明SCP的蛋白质营养价值高,这对于动物饲料尤为重要,因为动物需要足够的蛋白质来支持生长和维持生命活动。凌晓等[28]从奶酪中分离出一株高氨氮利用能力较强的酵母菌,其氨氮利用率为88.44%,菌体干重为0.75 g/L,蛋白质含量为54.67%。曹玉飞[29]从实验室现存的84株菌株中筛选出一株氨氮同化率为96.7%、生物量为3.43 g/L、粗蛋白质含量为50.2%、总蛋白质得率为1.72 g/L的酵母菌。本研究筛选的菌株Y-7的氨氮降解率可达97.63%,生物量可达4.92 g/L,菌体蛋白质含量为35.66 %,总蛋白质得率为1.76 g/L。与以往的研究相比,菌株Y-7在筛选培养基中的生物量较高,但是蛋白质含量较低,这可能是因为蛋白质含量是指单位细胞质量中蛋白质的比例,尽管单位质量的蛋白质含量降低了,但由于生物量的增加,酵母菌合成了相当数量的蛋白质,说明该酵母菌具有较高的利用氨氮生产SCP的能力。此外,菌株Y-7具有较短的迟滞期且能快速达到平台期,说明该酵母菌能够快速启动发酵过程以及具有较高的发酵效率,适合工业化发酵。
酵母菌在工业发酵过程中需要应对的常见问题是发酵环境的变化,如高温、高渗、代谢物累积等[30],这些环境胁迫对发酵菌株的抗逆性提出了挑战。高温会显著改变酵母菌的细胞形态、合成代谢和内部结构等特性,导致酵母菌死亡[31],从而对SCP的生成产生不利影响。本研究抗逆性试验结果表明,随着温度的升高,酵母菌的抗逆性逐渐降低,3株酵母菌中的菌株Y-7的耐高温能力最强,可在45 ℃高温下微量生长。pH能影响酵母菌细胞质膜所带的电荷状态、离子通透性以及酶的合成和活性,从而影响酵母菌对营养物质的吸收利用和自身的正常的繁殖、代谢[32]。酵母菌在发酵过程中,会不断产生酸性代谢物,为了维持合适的pH,需要不断添加中和剂来保持生产条件的稳定性,这不仅可能导致高渗环境的产生,还可能增加能耗[33]。若是选用耐酸能力强的酵母菌,则可以降低生产成本,提高生产效率。本试验结果表明,3株菌的适应pH范围较广,在pH为2~6之间均可生长,且在低pH条件下,3株酵母菌的耐酸能力相当。为提高发酵效率,初始培养基中底物浓度被设定在较高水平,但由此产生的高渗透压可能会抑制菌株生长,从而影响发酵产物的产量[34]。本试验结果表明,在氯化钠浓度5%~11%时,3株酵母菌均可生长,其中菌株Y-7的耐盐性能最好。本研究通过将筛选菌株Y-7与2株常见的SCP生产菌株进行抗逆性对比分析,结果表明筛选菌株Y-7的抗逆性能较好,可为酵母类SCP的生产提供优良菌株。

4 结论

本试验从鸡粪样品中筛选得到一株氨氮降解率高、菌体生物量大、菌体蛋白质含量高、生长速度快和高抗逆性的酵母菌,经形态学观察、分子生物学和生理生化鉴定,确认该酵母菌为克鲁斯假丝酵母。
[1]
PIHLAJANIEMI V, ELLILÄ S, POIKKIMÄKI S, et al. Comparison of pretreatments and cost-optimization of enzymatic hydrolysis for production of single cell protein from grass silage fibre[J]. Bioresource Technology Reports, 2020,9:100357.

[2]
MOLFETTA M, MORAIS E G, BARREIRA L, et al. Protein sources alternative to meat:state of the art and involvement of fermentation[J]. Foods, 2022, 11(14):2065.

[3]
RAZIQ A, LATEEF M, ULLAH A, et al. Single cell protein (SCP) production and potential substrates:a comprehensive review[J]. Pure and Applied Biology, 2020, 9(3):1743-1754.

[4]
KOUKOUMAKI D I, TSOUKO E, PAPANIKOLAOU S, et al. Recent advances in the production of single cell protein from renewable resources and applications[J]. Carbon Resources Conversion, 2024, 7(2):100195.

[5]
SHARIF M, ZAFAR M H, AQIB A I, et al. Single cell protein:sources,mechanism of production,nutritional value and its uses in aquaculture nutrition[J]. Aquaculture, 2021,531:735885.

[6]
宋荔烨, 杨培龙, 刘国华, 等. 单细胞蛋白的生产及其在饲料中的应用研究进展[J]. 动物营养学报, 2023, 35(6):3537-3547.

DOI

SONG L Y, YANG P L, LIU G H, et al. Research progress of single cell protein production and its application in feed[J]. Chinese Journal of Animal Nutrition, 2023, 35(6):3537-3547. (in Chinese)

DOI

[7]
BRATOSIN B C, DARJAN S, VODNAR D C. Single cell protein:a potential substitute in human and animal nutrition[J]. Sustainability, 2021, 13(16):9284.

[8]
WANG Y, QIU L, HU M. Application of yeast in the wastewater treatment[J]. E3S Web of Conferences, 2018,53:04025.

[9]
MAGASANIK B. Ammonia assimilation by Saccharomyces cerevisiae[J]. Eukaryotic Cell, 2003, 2(5):827-829.

[10]
RAITA S, KUSNERE Z, SPALVINS K, et al. Optimization of yeast cultivation factors for improved SCP production[J]. Environmental and Climate Technologies, 2022, 26(1):848-861.

[11]
GARAY-ARROYO A, COVARRUBIAS A A, CLARK I, et al. Response to different environmental stress conditions of industrial and laboratory Saccharomyces cerevisiae strains[J]. Applied Microbiology and Biotechnology, 2004, 63(6):734-741.

[12]
HOHMANN S. Osmotic stress signaling and osmoadaptation in yeasts[J]. Microbiology and Molecular Biology Reviews, 2002, 66(2):300-372.

DOI PMID

[13]
侯颖, 孙军德, 徐建强, 等. 巨大芽孢杆菌对养殖水体氨氮降解特性研究[J]. 沈阳农业大学学报, 2006, 37(4):607-610.

HOU Y, SUN J D, XU J Q, et al. Degrading characters of ammonia nitrogen in aquatic water of Bacillus megaterium[J]. Journal of Shenyang Agricultural University, 2006, 37(4):607-610. (in Chinese)

[14]
JOO H S, HIRAI M, SHODA M. Characteristics of ammonium removal by heterotrophic nitrification-aerobic denitrification by Alcaligenes faecalis No.4[J]. Journal of Bioscience and Bioengineering, 2005, 100(2):184-191.

[15]
黄婧. 畜禽养殖污水中高效氨氮降解菌的分离、纯化及污水净化剂的初步研究[D]. 硕士学位论文. 福州: 福建师范大学, 2010.

HUANG J. Research on the screening of ammonia nitrogen degradation bacteria in sewage and sewage purificant[D]. Master’s Thesis. Fuzhou: Fujian Normal University, 2010. (in Chinese)

[16]
付肖蒙, 王鹏飞, 郝爱丽, 等. 高耐性酿酒酵母的筛选及其耐受性研究[J]. 中国酿造, 2017, 36(10):23-26.

DOI

FU X M, WANG P F, HAO A L, et al. Screening of high tolerance Saccharomyces cerevisiae and its tolerance[J]. China Brewing, 2017, 36(10):23-26. (in Chinese)

[17]
PAN D, DAI S, JIAO L, et al. Homologous high-level lipase and single-cell protein production with engineered Yarrowia lipolytica via scale-up fermentation for industrial applications[J]. Fermentation, 2023, 9(3):268.

[18]
WEATHERBURN M W. Phenol-hypochlorite reaction for determination of ammonia[J]. Analytical Chemistry, 1967, 39(8):971-974.

[19]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, China National Standardization Administration. Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[20]
ZHENG T, JI L, CHEN Y, et al. Biology and genetic diversity of Candida krusei isolates from fermented vegetables and clinical samples in China[J]. Virulence, 2024, 15(1):2411543.

[21]
YADAV J S S, BEZAWADA J, YAN S, et al. Candida krusei:biotechnological potentials and concerns about its safety[J]. Canadian Journal of Microbiology, 2012, 58(8):937-952.

[22]
RAMOS L S, FERNANDES M F, SANTOS H L C, et al. Candida spp.isolated from recreational coastal waters of Rio de Janeiro-Brazil:focus on antifungal resistance and virulence attributes[J]. Science of the Total Environment, 2024,947:174662.

[23]
ZHENG R C, GE Z, QIU Z K, et al. Asymmetric synthesis of (R)-1,3-butanediol from 4-hydroxy-2-butanone by a newly isolated strain Candida krusei ZJB-09162[J]. Applied Microbiology and Biotechnology, 2012, 94(4):969-976.

[24]
KONLANI S, DELGENES J P, MOLETTA R, et al. Optimization of cell yield of Candida krusei SO1 and Saccharomyces sp. LK3G cultured in sorghum hydrolysate[J]. Bioresource Technology, 1996, 57(3):275-281.

[25]
YADAV J S S, BEZAWADA J, AJILA C M, et al. Mixed culture of Kluyveromyces marxianus and Candida krusei for single-cell protein production and organic load removal from whey[J]. Bioresource Technology, 2014,164:119-127.

[26]
MAGADLELA A, MORCILLO R J L, KLEINERT A, et al. Glutamate dehydrogenase is essential in the acclimation of Virgilia divaricata,a legume indigenous to the nutrient-poor mediterranean-type ecosystems of the cape fynbos[J]. Journal of Plant Physiology, 2019,243:153053.

[27]
ENGLEZOS V, COCOLIN L, RANTSIOU K, et al. Influence of single nitrogen compounds on growth and fermentation performance of Starmerella bacillaris and Saccharomyces cerevisiae during alcoholic fermentation[J]. Applied and Environmental Microbiology, 2021, 87(5): AEM.02420-AEM.02485.

[28]
凌晓, 郭刚, 陈雷, 等. 高氨氮利用酵母菌的筛选及相关酶活性[J]. 微生物学通报, 2020, 47(12):4042-4049.

LING X, GUO G, CHEN L, et al. High ammonia nitrogen utilization yeast strains and their related enzyme activities[J]. Microbiology, 2020, 47(12):4042-4049. (in Chinese)

[29]
曹玉飞. 耐高温酵母菌高氨氮同化率菌株的筛选和发酵条件研究[D]. 硕士学位论文. 武汉: 武汉轻工大学, 2014.

CAO Y F. Screening and study on fermenting conditions of thermotolerant and high ammonia assimilation rate yeast strains[D]. Master’s Thesis. Wuhan: Wuhan Polytechnic University, 2014. (in Chinese)

[30]
吴娜莎, 孙亚琴, 修志龙. 耐高渗克鲁斯假丝酵母的耐受性[J]. 生物工程学报, 2024, 40(3):908-920.

WU N S, SUN Y Q, XIU Z L. Tolerance of hyperosmolar Candida krusei[J]. Chinese journal of biotechnology, 2024, 40(3):908-920. (in Chinese)

[31]
RICHTER K, HASLBECK M, BUCHNER J. The heat shock response:life on the verge of death[J]. Molecular Cell, 2010, 40(2):253-266.

[32]
刘兴艳. 低pH对酿酒酵母酒精发酵的影响及酵母应答酸胁迫机制初探[D]. 博士学位论文. 北京: 中国农业大学, 2015.

LIU X Y. Effect of low pH on alcoholic fermentation and primary study of acid stress reponse in Saccharomyces cerevisiae[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2015. (in Chinese)

[33]
郝小明, 陈博, 安泰. 工业微生物酸胁迫的耐受机制及改造途径[J]. 生物工程学报, 2015, 31(8):1151-1161.

HAO X M, CHEN B, AN T. Pathway modification of industrial microorganisms to improve acid-stress tolerance[J]. Chinese Journal of Biotechnology, 2015, 31(8):1151-1161. (in Chinese)

[34]
王雪利. 产甘油假丝酵母盐胁迫抗逆基因筛选及应用[D]. 硕士学位论文. 无锡: 江南大学, 2003.

WANG X L. Screening and application of salt-stress resistance genes in Candida glycerinogenes[D]. Master’s Thesis. Wuxi: Jiangnan University, 2003. (in Chinese)

文章导航

/