研究论文

2种乳酸菌添加剂对全株玉米青贮品质及其微生物区系的影响

  • 杨琪 ,
  • 苏嘉琪 ,
  • 张思琦 ,
  • 岳嘉豪 ,
  • 邹郑欣 ,
  • 辛杭书 , *
展开
  • 东北农业大学动物科学技术学院,哈尔滨 150030
* 辛杭书,教授,博士生导师,E-mail:

杨 琪(1996—),女,山东兖州人,硕士研究生,研究方向为反刍动物营养。E-mail:

Copy editor: 陈鑫

收稿日期: 2024-08-26

  网络出版日期: 2025-04-15

基金资助

财政部和农业农村部-国家奶牛产业技术体系(CARS-36)

雀巢校企合作课题(86009600)

Effects of Two Lactic Acid Bacteria Additives on Quality and Microflora of Whole Plant Corn Silage

  • YANG Qi ,
  • SU Jiaqi ,
  • ZHANG Siqi ,
  • YUE Jiahao ,
  • ZOU Zhengxin ,
  • XIN Hangshu , *
Expand
  • College of Animal Science and Technology, Northeast Agricultural University, Harbin 150030, China
* professor, E-mail:

Received date: 2024-08-26

  Online published: 2025-04-15

摘要

本试验旨在研究同型乳酸菌和同型异型混合乳酸菌对全株玉米青贮品质及其微生物区系的影响。试验设置3个组:1)对照组(CK组),没有任何处理;2)添加植物乳杆菌组(LP组,2.5×108 CFU/kg);3)添加乳酸乳球菌和布氏乳杆菌组(LLLB组,2.6×108 CFU/kg;乳酸乳球菌∶布氏乳杆菌=1∶1),每组3个重复,每个重复3个样品。青贮1、2、3、5、7、15、30和45 d后,开封取样,测定发酵指标和微生物区系;取45 d的样品进行营养物质的测定。结果表明: LP组全株玉米青贮的可溶性蛋白质和非蛋白氮含量显著高于LLLB组(P<0.05)。康奈尔净碳水化合物-蛋白质体系(CNCPS)组分中,LP组不可利用蛋白质(PC)含量显著低于CK组(P<0.05),LP组中速降解碳水化合物(CB1)含量显著高于CK组和LLLB组(P<0.05)。LP组总可消化中性洗涤纤维含量显著高于CK组及LLLB组(P<0.05)。青贮45 d,LP组及LLLB组乙酸含量无显著差异(P>0.05),但显著高于CK组(P<0.05)。青贮5~45 d,LLLB组氨态氮含量显著高于LP组(P<0.05)。青贮30 d,LP组及LLLB组操作分类单元及Chao1指数显著低于CK组(P<0.05)。在青贮过程中,LP组和LLLB组乳酸菌属相对丰度提高,魏斯氏菌属相对丰度降低。其中,乳酸菌属相对丰度在LP组从30.50%增加到77.85%,LLLB组从32.84%增加到77.23%;LP组的魏斯氏菌属相对丰度从33.34%下降到5.68%,LLLB组的魏斯氏菌属相对丰度从25.15%下降到5.69%。综上所述,全株玉米青贮中添加植物乳杆菌添加剂对其青贮的营养价值和发酵品质的影响优于乳酸乳球菌和布氏乳杆菌组合处理。

本文引用格式

杨琪 , 苏嘉琪 , 张思琦 , 岳嘉豪 , 邹郑欣 , 辛杭书 . 2种乳酸菌添加剂对全株玉米青贮品质及其微生物区系的影响[J]. 动物营养学报, 2025 , 37(4) : 2772 -2787 . DOI: 10.12418/CJAN2025.232

Abstract

The aim of this experiment was to study the effects of homotypic and homotypic mixed lactic acid bacteria on the quality and microflora of whole corn silage. The experiment was divided into 3 groups: 1) control group (CK group) without any treatment; 2) adding Lactobacillus plantarum group (LP group, 2.5×10⁸ CFU/kg); 3) adding Lactococcus lactis and Lactobacillus brucei groups (LLLB group, 2.6×10⁸ CFU/kg; Lactococcus lactisLactobacillus brucei=1∶1) with 3 replicates per group and 3 samples per replicate. After silage 1, 2, 3, 5, 7, 15, 30 and 45 days, the samples were opened and the fermentation indexes and microflora were determined. The samples were taken for 45 days for the determination of nutrients. The results showed that the contents of soluble protein and non-protein nitrogen of whole plant corn silage were significantly higher in LP group than in LLLB group (P<0.05). In the components of Cornell net carbohydrate-protein system (CNCPS), the content of unavailable protein (PC) in LP group was significantly lower than that in CK group (P<0.05), and the content of medium rapidly degraded carbohydrate (CB1) in LP group was significantly higher than that in CK and LLLB groups (P<0.05). The content of total digestible neutral detergent fiber in LP group was significantly higher than that in CK and LLLB groups (P<0.05). At 45 days of silage, acetic acid content in LP group and LLLB group had no significant difference (P>0.05), but was significantly higher than that in CK group (P<0.05). The ammonia nitrogen content in LLLB group was significantly higher than that in LP group (P<0.05) for silage from 5 to 45 days. After 30 days of silage, operational taxonomic unit and Chao1 index were significantly lower (P<0.05) in LP and LLLB groups than in CK group. During silage, both LP and LLLB groups increased the relative abundance of Lactobacillus and decreased the relative abundance of Weissella. In particular, the relative abundance of Lactobacillus increased from 30.50% to 77.85% in the LP group and from 32.84% to 77.23% in the LLLB group. The relative abundance of Weissella decreased from 33.34% to 5.68% in the LP group and from 25.15% to 5.69% in the LLLB group. In conclusion, the effect of Lactobacillus plantarum additive on the nutritional value and fermentation quality of whole corn silage is better than that of the combined treatment of Lactococcus lactis and Lactobacillus brucei.

全株玉米青贮在现代农业中具有重要的地位,其营养价值高、经济效益良好以及适应性强的特性,使其成为养殖业中重要的饲料来源,尤其是在奶牛和肉牛的饲养中。在全球对可持续农业日益关注的背景下,玉米青贮作为一种高效的饲料来源,将在未来的养殖业中扮演越来越重要的角色,助力实现畜牧业生产的可持续性[1]。然而青贮过程中存在的管理不当、环境条件不适宜或者原料特性差等问题会导致有害微生物的积累,进一步影响青贮饲料品质[2]。青贮添加剂的使用可以显著改善青贮饲料的质量和营养价值,还可以降低干物质损失、抑制腐败微生物并提高青贮饲料的经济效益[3]
乳酸菌添加剂对青贮饲料的品质有着多方面的作用。优良的乳酸菌添加剂可以提高青贮饲料的营养价值、发酵品质、有氧稳定性,同时提高青贮饲料在瘤胃的降解率。乳酸菌添加剂又分为同源发酵乳酸菌和异源发酵乳酸菌。同源发酵乳酸菌可以从可溶性糖产生90%以上的乳酸。从而防止饲料中糖类和蛋白质的进一步分解,但不能发酵戊糖[4]。作为同型发酵乳酸菌的一员,植物乳杆菌通常用于通过快速产生乳酸和随后降低pH来控制青贮发酵[5]。乳球菌也属于同型乳酸发酵的乳酸菌,可以提高青贮过程中饲料的营养价值以及发酵品质。有研究表明,乳酸乳球菌可以抑制梭状芽孢杆菌的生长,降低丁酸发酵的风险[6]。异源发酵乳酸菌是一类能够通过发酵过程将糖类转化为乳酸、醇、乙酸和二氧化碳的细菌,发酵产物与同源发酵乳酸菌不同[7]。布氏乳杆菌能够抑制酵母和霉菌的生长,研究表明,使用布氏乳杆菌作为青贮接种剂,可以显著增加作物中乙酸的含量,延长其保质期[8]
本试验旨在研究同型乳酸菌和同型异型混合乳酸菌对全株玉米青贮营养价值、发酵品质和微生物区系的影响,进一步探究全株玉米青贮过程中微生物区系的变化趋势,对提高全株玉米青贮发酵品质提供数据支持。同时,深入了解青贮发酵所涉及的细菌种类和相对丰度,将有助于对发酵品质的评估,并为改善青贮饲料的保存提供数据支撑。

1 材料与方法

1.1 试验设计

成熟期的新鲜全株玉米样品来自中国黑龙江省双城市雀巢奶牛养殖培训中心。所有整株样品由青贮收割机(Claas JAGUAR800,北京)切碎至1~2 cm的长度,运输至东北农业大学动物科学技术学院实验室,并用聚乙烯塑料呼吸袋青贮(14 cm×20 cm;浙江毕马时新材料科技有限公司),每个呼吸袋中加入1 kg青贮样品。
本试验设置3个组:1)对照组(CK组),没有任何处理;2)添加植物乳杆菌组(LP组,2.5×108 CFU/kg);3)添加乳酸乳球菌和布氏乳杆菌组(LLLB组,2.6×108 CFU/kg;乳酸乳球菌∶布氏乳杆菌=1∶1)。乳酸菌接种剂稀释于消毒蒸馏水中,手动喷雾器喷洒,LP组浓度为2.5×1011 CFU/g FM,LLLB组浓度为1.3×10¹¹ CFU/g FM。对照组加入等量的未灭菌蒸馏水。然后将乳酸菌接种剂分2批均匀喷洒到新鲜全株玉米样品中,均匀混合。将玉米青贮料装入呼吸袋,用真空包装机(Mag,DZ-400/2S,青岛)进行真空密封。在本研究中,所有组均为3个重复,每个重复3个呼吸袋。所有装玉米青贮的袋子在室温(20~25 ℃)下保存1、2、3、5、7、15、30和45 d后,开封取样测定发酵指标和微生物区系;取45 d的样品进行营养物质的测定。

1.2 营养成分的测定

青贮前全株玉米和青贮样品首先在55 ℃下干燥48 h,然后研磨通过1 mm筛后进行化学分析。干物质(DM)、粗蛋白质(CP)、粗脂肪(EE)和粗灰分含量参照AOAC(2000)[9]的方法测定。采用Van Soest等[10]的方法测定中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、酸性洗涤木质素(ADL)含量。中性洗涤不溶蛋白质(NDIP)、酸性洗涤不溶蛋白质(ADIP)含量参照AOAC(2000)[9]测定。可溶性碳水化合物(WSC)含量采用Owens等[11]描述的蒽酮-硫酸比色法进行测定。淀粉含量采用试剂盒(Megazyme国际爱尔兰有限公司,爱尔兰)进行测定。参照周荣等[12]的方法测定可溶性蛋白质(SCP)的含量。参照Licitra等[13]的方法测定非蛋白氮(NPN)含量。可消化养分的计算参考NRC(2001)[14]

1.3 康奈尔净碳水化合物-蛋白质体系(CNCPS)的计算

CNCPS将饲料中的CP分为非蛋白氮(PA)、快速降解蛋白质(PB1)、中速降解蛋白质(PB2)、慢速降解蛋白质(PB3)和不可降解蛋白质(PC)5个组分;将碳水化合物分为快速降解碳水化合物(CA)、中速降解碳水化合物(CB1)、慢速降解碳水化合物(CB2)和不可降解碳水化合物(CC)4个组分[15]。计算公式参照Sniffen等[16]

1.4 发酵指标的测定

取新鲜青贮样品10 g,用90 mL蒸馏水稀释,在4 ℃冰箱保存24 h,测定pH及氨态氮(NH3-N)、乳酸(LA)和挥发性脂肪酸(VFA)含量。使用玻璃电极pH计(Sartorius Basic pH计,德国)测量pH。NH3-N含量用靛酚蓝法[17]测定。LA含量参照Yuan等[18]的方法测定。通过平板计数进行微生物计数[19]。使用Chen等[20]描述的方法测量乳酸菌、酵母菌和霉菌的数量。乳酸菌培养于MRS琼脂培养基(北京奥博星生物科技有限公司)。酵母菌和霉菌在玫瑰孟加拉琼脂上培养(北京奥博星生物科技有限公司)。

1.5 微生物区系的测定与分析

青贮样品保存在-80 ℃下,进一步测定青贮的微生物多样性。通过下一代测序(NGS)技术送往诺禾致源有限公司进行分析。具体步骤如下:
1)基因组DNA的提取
采用十六烷基三甲基溴化铵(CTBA)和十二烷基磺酸钠(SDS)法提取样品中的DNA。在1%琼脂糖凝胶上检测DNA浓度和纯度。根据浓度,用无菌水稀释至1 μg/μL。
2)扩增子的产生
细菌群落16S rRNA基因的V3~V4高变区用引物341F(5'-CCTACGGGRBGCASCAG-3')和806R(5'-GGACTACNNGGGTATCTAAT-3')完成[21]
所有的扩增反应使用15 μL的Phusion High-Fidelity PCR Master Mix(New England Biolabs),0.2 μmol/L的正向和反向引物,以及大约10 ng的模板DNA。热循环包括在98 ℃下初始变性1 min,然后在98 ℃下变性10 s,在50 ℃下退火30 s,在72 ℃下伸长30 s,最后72 ℃,5 min。
3)聚合酶链式反应产物的量化和鉴定
将等量的IX负载缓冲液(含syb green)与PCR产物混合,在2%琼脂糖凝胶上进行检测。聚合酶链式反应产物按等密度比例混合。混合扩增产物用德国Qiagen Gel凝胶提取试剂盒纯化。
4)文库制备和测序
根据制造商的建议使用TruSeq DNA无聚合酶链式反应样品制备试剂盒(Illumina,美国)生成测序文库,并添加索引代码。用Qubit 2.0荧光仪(Thermo Science,美国)和Agilent生物分析仪2100系统对文库质量进行评估。最后,在Illumina NovaSeq平台上对文库进行了测序,产生了250个碱基对的末端阅读片段。

1.6 数据分析

数据分析采用SAS 9.4的通用线性模型(GLM)程序,用最小二乘平均值(LSMEANS)语句计算平均值的最小二乘平均值和标准误差(SEM)值。P<0.05为差异显著,P>0.05为差异不显著。
使用QIIME2进行数据分析[22]。序列质量过滤使用DADA2[23]。使用Greengenes分类器进行细菌分类(Version 13.8)[24]。用R(version 4.2.1)进行微生物区系多样性的分析。用QIIME2软件分析了样品的Shannon、Chao1、Simpson指数以及操作分类单元(OUT)和β多样性。采用QIIME2软件计算和显示Unifrac主坐标分析(PCoA)。

2 结果与分析

2.1 青贮前全株玉米的pH和营养成分

表1可知,新鲜玉米pH为4.55,DM含量为37.80%,WSC和淀粉含量分别为7.37%和31.21%,CP含量为7.38%,NDF含量为45.34%,EE含量为5.62%,粗灰分含量为4.67%,ADF含量为22.75%。
表1 青贮前全株玉米的pH和营养成分

Table 1 pH and nutrient composition of whole corn before silage

项目Items 含量Content
pH 4.55±0.10
可溶性碳水化合物WSC/% DM 7.37±0.42
淀粉Starch/% DM 31.21±2.02
粗蛋白质CP/% DM 7.38±0.01
中性洗涤纤维NDF/% DM 45.34±1.97
粗脂肪EE/% DM 5.62±0.76
粗灰分Ash/% DM 4.67±0.23
酸性洗涤纤维ADF/% DM 22.75±0.65
干物质DM/% 37.80±0.86
乳酸菌
Lactic acid bacteria/[lg(CFU/g FM)]
7.28±0.53
霉菌和酵母菌
Mold and yeast/[lg(CFU/g FM)]
6.35±0.39

2.2 2种乳酸菌添加剂对全株玉米青贮营养成分的影响

表2可知,青贮45 d后,添加组DM含量显著高于CK组(P<0.05),LP组与LLLB组DM含量无显著差异(P>0.05)。青贮后WSC含量降低,3组间差异不显著(P>0.05)。淀粉含量增加,但添加组与CK组差异不显著(P>0.05)。青贮45 d后,CP含量下降,但添加LP或LLLB对CP含量没有显著影响(P>0.05)。3组NDF和ADF含量均无显著差异(P>0.05)。LP组ADL、ADIP含量显著低于CK组(P<0.05),SCP含量显著高于其他2组(P<0.05)。
表2 2种乳酸菌添加剂对全株玉米青贮营养成分的影响

Table 2 Effects of two lactic acid bacteria additives on nutrient composition of whole plant corn silage

项目
Items
组别Groups SEM P
P-value
CK LP LLLB
干物质DM/% 35.24b 36.51a 37.36a 0.312 <0.001
粗蛋白质CP/% DM 7.20 7.37 6.97 0.359 0.081
粗脂肪EE/% DM 4.18 4.27 4.20 0.350 0.829
粗灰分Ash/% DM 4.22 4.13 4.33 0.171 0.063
中性洗涤纤维NDF/% DM 40.35 38.50 40.02 3.490 0.499
酸性洗涤纤维ADF/% DM 22.39 20.50 22.50 2.147 0.105
酸性洗涤木质素ADL/% DM 18.56a 15.66b 18.82a 1.929 0.003
酸性洗涤不溶蛋白质ADIP/% DM 0.16a 0.12b 0.14ab 0.026 0.015
中性洗涤不溶蛋白质NDIP/% DM 0.68 0.56 0.75 0.177 0.097
可溶性蛋白质SCP/% DM 3.77b 4.11a 3.72b 0.159 <0.001
非蛋白氮NPN/% DM 3.64ab 3.82a 3.47b 0.201 0.005
可溶性碳水化合物WSC/% DM 2.67 2.41 2.24 0.404 0.287
淀粉Starch/% DM 33.98 32.53 33.66 1.220 0.125

同行数据肩标不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.3 2种乳酸菌添加剂对全株玉米青贮CNCPS组分及可消化养分的影响

表3可知,3组间PA、PB1、PB2、PB3含量均无显著差异(P>0.05)。LP组PC含量显著高于CK组(P<0.05)。3组的CA、CB2、CC含量无显著差异(P>0.05)。LP组CB1含量显著高于CK组与LLLB组(P<0.05)。由表4可知,LP组总可消化中性洗涤纤维(tdNDF)显著高于CK组及LLB组(P<0.05)。
表3 2种乳酸菌添加剂对全株玉米青贮CNCPS组分的影响

Table 3 Effects of two lactic acid bacteria additives on CNCPS components of whole plant corn silage

项目
Items
组别Groups SEM P
P-value
CK LP LLLB
非蛋白氮PA/% CP 50.59 51.83 50.10 4.119 0.661
快速降解蛋白质PB1/% CP 1.76 3.96 3.55 2.392 0.137
中速降解蛋白质PB2/% CP 38.15 36.59 35.63 3.741 0.370
慢速降解蛋白质PB3/% CP 7.23 5.94 8.67 2.497 0.088
不可降解蛋白质PC/% CP 2.27a 1.68b 2.04ab 0.408 0.017
快速降解碳水化合物CA/% CHO 9.03 6.82 11.49 1.516 0.174
中速降解碳水化合物CB1/% CHO 40.27b 44.52a 39.52b 0.671 0.004
慢速降解碳水化合物CB2/% CHO 1.58 2.66 0.69 0.856 0.388
不可降解碳水化合物CC/% CHO 50.10 49.11 49.85 1.315 0.860
表4 2种乳酸菌添加剂对全株玉米青贮可消化养分的影响

Table 4 Effects of two lactic acid bacteria additives on digestible nutrients of whole plant corn silage % DM

项目
Items
组别Groups SEM P
P-value
CK LP LLLB
总可消化非纤维性碳水化合物tdNFC 43.84 45.36 44.33 1.703 0.566
总可消化粗蛋白质tdCP 7.20 7.37 6.97 0.244 0.216
总可消化脂肪酸tdFA 3.18 3.27 3.20 0.288 0.914
总可消化中性洗涤纤维tdNDF 6.31b 7.47a 5.95b 0.444 0.013
真可消化养分TDNm 57.49 60.57 57.44 2.247 0.229

2.4 2种乳酸菌添加剂对全株玉米青贮发酵参数的影响

表5可知,在整个发酵过程中,所有样品的pH均小于4,因为本试验采用呼吸袋方式青贮,呼吸袋抽真空后加快了青贮进程,导致青贮1 d pH达到4以下。青贮1、15 d,LP组和LLLB组的pH显著低于CK组(P<0.05)。青贮1 d,LP组乳酸含量显著高于CK组和LLLB组(P<0.05)。青贮45 d过程中,青贮中挥发性脂肪酸中只测到乙酸。青贮1、3、5、7 d,LLLB组的乙酸含量显著高于CK组、LP组(P<0.05)。青贮45 d,LP组和LLLB组乙酸含量显著高于CK组(P<0.05)。青贮45 d,LP组的氨态氮含量显著低于其他2组(P<0.05)。
表5 2种乳酸菌添加剂对全株玉米青贮发酵参数动态变化的影响

Table 5 Effects of two lactic acid bacteria additives on dynamic changes in fermentation parameters of whole plant corn silage

项目
Items
青贮天数
Ensiling days/d
组别Groups SEM P
P-value
CK LP LLLB
pH 1 3.94a 3.78b 3.79b 0.068 <0.001
2 3.50b 3.50b 3.58a 0.063 0.012
3 3.55 3.57 3.53 0.081 0.586
5 3.72 3.70 3.73 0.073 0.721
7 3.71a 3.47c 3.57b 0.055 <0.001
15 3.86a 3.74b 3.74b 0.046 <0.001
30 3.70 3.72 3.76 0.065 0.116
45 3.48 3.50 3.44 0.050 0.065
乳酸
Lactic acid/
(g/kg DM)
1 7.83b 8.44a 7.23c 0.147 0.009
2 7.77 10.00 9.93 2.294 0.600
3 8.14b 9.39a 8.89ab 0.272 0.043
5 8.58 8.95 8.44 0.176 0.127
7 8.19 9.37 8.76 0.364 0.103
15 9.33 9.26 9.60 0.425 0.735
30 10.27 10.89 10.48 0.347 0.326
45 9.38 9.71 9.30 1.045 0.919
乙酸
Acetic acid/
(g/kg DM)
1 0.23c 0.41b 0.58a 0.017 0.001
2 0.50b 1.00a 0.91a 0.036 0.002
3 0.39c 0.76b 0.91a 0.007 <0.001
5 0.74b 0.80b 1.20a 0.026 0.001
7 0.56c 0.96b 1.14a 0.042 0.002
15 0.87 0.91 0.98 0.025 0.050
30 0.86 0.95 1.06 0.083 0.199
45 0.64b 0.86a 0.93a 0.029 0.004

氨态氮
NH3-N/% TN
1 1.86b 1.90b 2.02a 0.039 0.021
2 2.20 2.17 2.32 0.062 0.218
3 2.92a 2.46b 2.42b 0.054 <0.001
5 2.85b 2.69c 3.02a 0.053 <0.001
7 2.92c 3.16b 3.43a 0.040 <0.001
15 3.64b 3.54b 4.10a 0.066 <0.001
30 4.83b 4.99b 5.43a 0.078 <0.001
45 5.21a 4.95b 5.33a 0.058 <0.001

2.5 2种乳酸菌添加剂对全株玉米青贮微生物区系的影响

2.5.1 2种乳酸菌添加剂对全株玉米青贮微生物α多样性及β多样性的影响

表6可知,青贮1 d,LLLB组的OTU显著高于CK组和LP组(P<0.05),青贮3 d, LP组显著高于CK组、LLB组(P<0.05)。但青贮3~5 d,LP组OTU、Chao1、Shannon、Simpson指数均显著高于CK组和LLLB组(P<0.05)。青贮30 d,CK组OTU和Chao1指数显著高于LP组和LLLB组(P<0.05)。
表6 2种乳酸菌添加剂对全株玉米青贮微生物α多样性的影响

Table 6 Effects of two lactic acid bacteria additives on microbial alpha diversity of whole plant corn silage

项目
Items
青贮天数
Ensiling days/d
组别Groups SEM P
P-value
CK LP LLLB
操作分类单元
OTU
1 385.67b 481.50b 692.00a 41.496 0.012
2 454.00 442.33 413.50 35.755 0.804
3 162.33b 738.00a 180.50b 36.880 <0.001
5 475.50b 782.50a 267.67c 37.319 0.001
7 144.67b 144.50b 461.00a 24.060 0.001
15 212.00a 140.00b 180.50a 8.329 0.005
30 443.50a 204.50b 166.67b 25.396 0.002
45 224.00 218.00 180.67 12.482 0.097
Chao1指数
Chao1 index
1 413.08b 554.32ab 718.61a 42.965 0.017
2 346.14 463.33 391.31 32.094 0.149
3 165.77b 779.29a 190.50b 35.633 <0.001
5 500.24b 814.73a 277.41c 39.690 0.001
7 149.07b 150.29b 489.40a 24.515 <0.001
15 220.73a 142.97c 187.05b 8.092 0.003
30 470.69a 216.84b 178.16b 28.799 0.003
45 231.72 225.21 188.13 15.533 0.182
Shannon指数
Shannon index
1 5.28 5.55 5.90 0.216 0.131
2 5.02 5.53 5.47 0.158 0.113
3 4.42b 5.71a 4.81b 0.207 0.012
5 4.42b 5.71a 4.81b 0.207 0.012
7 4.21b 4.42ab 4.96a 0.197 0.083
15 4.41 4.15 4.62 0.226 0.391
30 4.66 4.76 3.91 0.352 0.253
45 3.56 3.56 3.55 0.091 0.996
Simpson指数
Simpson index
1 0.92 0.93 0.94 0.008 0.206
2 0.89 0.91 0.92 0.010 0.184
3 0.90b 0.94a 0.92b 0.005 0.003
5 0.91c 0.96a 0.93b 0.004 <0.001
7 0.89 0.89 0.92 0.010 0.208
15 0.90 0.88 0.89 0.010 0.491
30 0.89 0.89 0.82 0.026 0.182
45 0.74 0.76 0.75 0.010 0.615
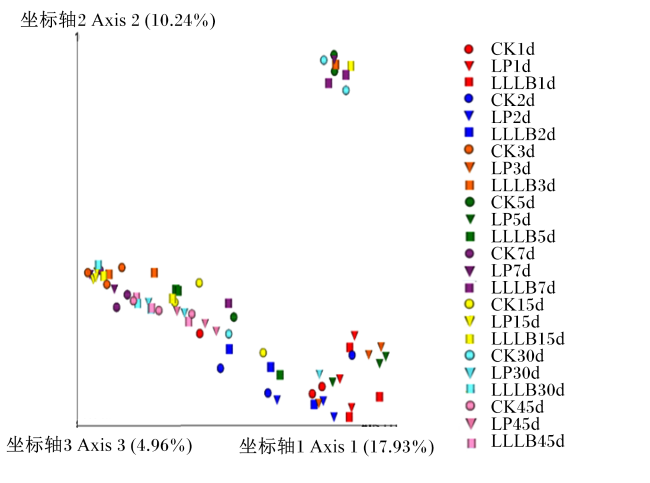
图1可知,在青贮过程中,CK组、LP组和LLLB组的样品分散在不同的位置。因此推断不同组之间的微生物区系存在差异,添加植物乳杆菌、乳酸乳球菌和布氏乳杆菌对玉米青贮微生物区系有一定影响。
图1 青贮过程中微生物β多样性分析

CK:对照组 control group;LP:植物乳杆菌添加组 Lactobacillus plantarum-added group;LLLB:乳酸乳球菌和布氏乳杆菌添加组 Lactococcus lactis and Lactobacillus buchneri-added group。1d、2d、3d、5d、7d、15d、30d、45d表示不同青贮天数 1d, 2d, 3d, 5d, 7d, 5d, 30d, 45d indicate different ensiling days。下图同 the same as below。

Fig.1 Analysis of microbial β diversity during silage

2.5.2 2种乳酸菌添加剂对全株玉米青贮微生物门、属水平相对丰度的影响

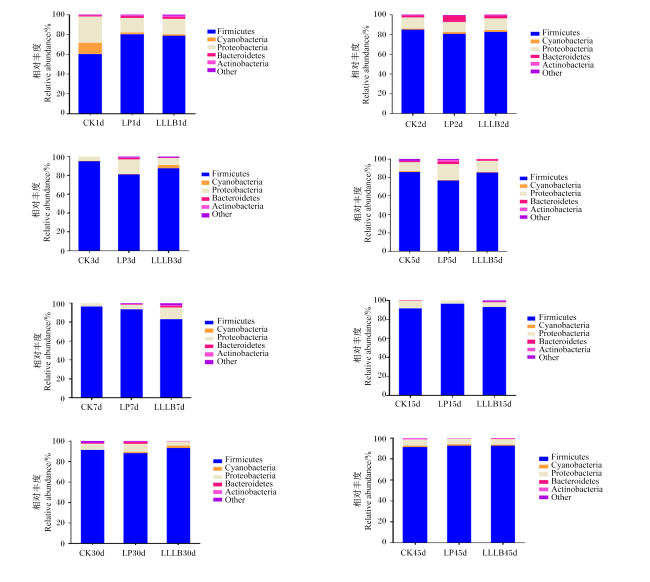
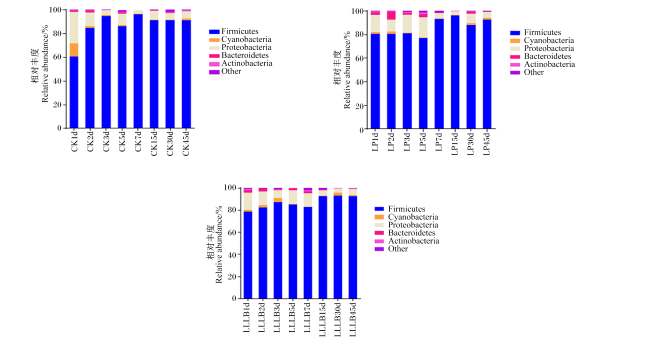
图2图3可知,在青贮过程中,优势菌门主要有厚壁菌门(Firmicutes)、蓝藻菌门(Cyanobacteria)、变形菌门(Proteobacteria)、拟杆菌门(Bacteroidetes)和放线菌门(Actinobacteria)。青贮45 d以后,Firmicutes的相对丰度增加;CK组Firmicutes的相对丰度从60.41%提高到91.19%,LP组Firmicutes的相对丰度由80.47%增加到92.53%,LLLB组Firmicutes的相对丰度由78.76%增加至92.70%。然而青贮以后,Proteobacteria的相对丰度减少;CK组Proteobacteria的相对丰度从26.60%降低到6.10%。LP组Proteobacteria的相对丰度由14.33%降低到5.31%。LLLB组Proteobacteria的相对丰度由15.47%降低至5.59%。
图2 不同组间微生物在门水平的丰度图

Firmicutes:厚壁菌门;Cyanobacteria:蓝藻菌门;Proteobacteria:变形菌门;Bacteroidetes:拟杆菌门;Actinobacteria:放线菌门;Other:其他。图3同 the same as Fig.3

Fig.2 Abundance map of microorganisms at phylum level between different groups

图3 不同青贮天数微生物在门水平的丰度图

Fig.3 Abundance map of microorganisms at phylum level for different ensiling days

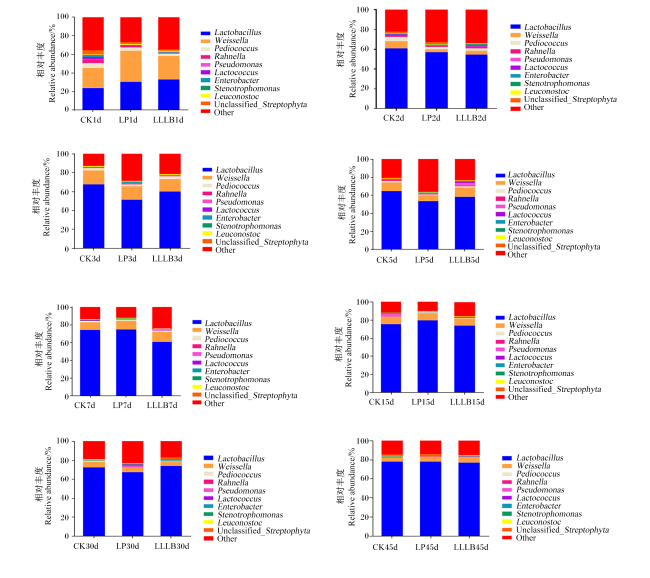
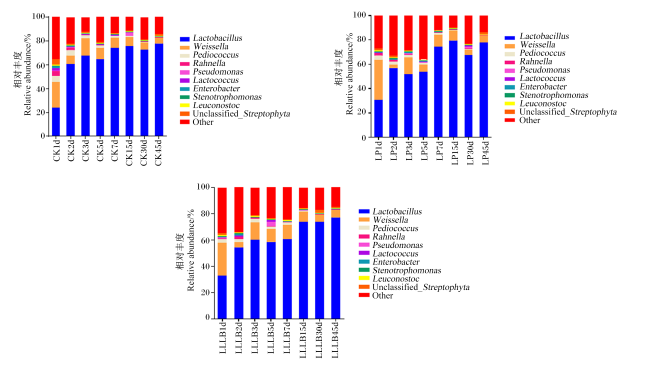
图4图5可知,随着青贮天数的延长,乳酸杆菌属(Lactobacillus)的相对丰度逐渐增加。CK组Lactobacillus的相对丰度由23.90%增加至77.95%,LP组Lactobacillus的相对丰度由30.50%增加至77.85%,LLLB组Lactobacillus的相对丰度由32.84%增加至77.23%。魏氏菌属(Weissella)相对丰度在青贮前期较高,随着青贮天数的增加而降低。CK组Weissella的相对丰度由21.63%降低至4.81%,LP组Weissella的相对丰度由33.34%降低至5.68%,LLLB组Weissella的相对丰度由25.15%降低至5.69%。发酵前期肠杆菌属(Enterobacteria)和片球菌属(Pediococcus)也存在,CK组Enterobacteria的相对丰度为1.69%,LP组为0.46%,LLLB组为0.33%;CK组Pediococcus的相对丰度为5.17%,LP组为3.41%,LLLB组为2.69%。随着青贮天数的增加,Enterobacteria相对丰度逐渐减少,青贮45 d,CK组Enterobacteria的相对丰度为0.19%,LP组为0.11%,LLLB组为0.32%。在发酵过程中,Pediococcus种类逐渐减少,青贮45 d以后,CK组Pediococcus的相对丰度为0.11%,LP组为0.11%,LLLB组为0.11%。青贮45 d以后,Pediococcus的相对丰度也发生了改变。青贮1 d,CK组Pediococcus的相对丰度为2.16%,LP组为0.20%,LLLB组为0.14%。青贮45 d,CK组Pediococcus的相对丰度为0.07%,LP组为0.04%,LLLB组为0.09%。
图4 不同组间微生物在属水平的丰度图

Lactobacillus:乳酸杆菌;Weissella:魏氏菌属;Pediococcus:片球菌属;Rahnella:拉恩氏菌属;Pseudomonas:假单胞菌属;Lactococcus:乳球菌属;Enterobacter:肠杆菌属;Stenotrophomonas:斯氏菌属;Leuconostoc:明串珠菌属;Other:其他。图5同 the same as Fig.5

Fig.4 Abundance map of microorganisms at genus level between different groups

图5 不同青贮天数微生物在属水平的丰度图

Fig.5 Abundance map of microorganisms at genus level for different ensiling days

3 讨论

3.1 青贮前全株玉米的营养成分

新鲜牧草的附生乳酸菌在发酵过程中起着重要作用。它不仅影响青贮发酵过程,还决定是否添加青贮添加剂[25]。有研究报道称,初始乳酸菌数量超过105 CFU/g FM被认为是确保青贮发酵成功的关键因素[26]。试验青贮玉米的附生乳酸菌数量充足,说明原料质量较好。当附生乳酸菌数量充足时,牧草的发酵能力主要受缓冲容量、WSC和DM含量的影响[27]。WSC含量超过50 g/kg DM是饲料高效发酵的关键因素[28]。淀粉是非结构性碳水化合物,在瘤胃内经过淀粉降解菌(主要是嗜淀粉瘤胃杆菌、栖瘤胃普雷沃氏菌)作用生成丙酸,反刍动物肝细胞利用丙酸通过糖异生作用生成葡萄糖,进而为机体提供能量。所以,淀粉含量的高低是衡量青贮能量价值的重要指标,本试验中全株玉米青贮前淀粉含量为31.21%,质量较好[29]

3.2 2种乳酸菌添加剂对全株玉米营养成分的影响

乳酸菌可以抑制青贮中不良微生物对营养物质的代谢,从而减少DM的损失[30]。本试验中,乳酸菌添加组DM的含量高于CK组的原因可能是全株玉米发酵底物充足,添加乳酸菌促进了青贮前期乳酸发酵,加速青贮内环境的酸化,进而抑制了有害微生物的活性,减少了DM的损失[31]。与此类似的结果是,Liu等[32]研究发现,在好氧暴露的第7天,乳酸菌组DM的含量显著高于对照组,可能的原因是在大麦青贮中添加乳酸菌接种剂以后,酵母菌和需氧菌的数量减少,从而减少了青贮饲料营养物质的消耗。Gallo等[33]发现,接种布氏乳杆菌和乳酸乳球菌往往会增加DM的损失。可能的原因是布氏乳杆菌在发酵过程中产生了二氧化碳,从而增加了DM的损失。本试验结果表明,发酵后可溶性糖含量降低。发酵过程中微生物的活动降低了DM、CP和WSC含量。例如,梭状芽孢杆菌以碳水化合物、蛋白质或乳酸为底物,导致饲粮中DM和营养物质的损失[34]。这与本试验结果一致,乳酸菌等微生物的发酵,以可溶性糖为底物,导致可溶性糖含量降低。此外,青贮45 d以后,LP组的ADL含量显著低于CK组和LLLB组。苗芳[35]研究发现,青贮玉米各组间ADL含量呈现下降趋势,且随着发酵的进行组间ADL含量的变化有显著差异。目前研究发现,一些布氏杆菌除了产生乙酸外,还能产生阿魏酸酯酶,其能水解ADL和半纤维素之间的阿魏酸酯键[36]。但在本研究结果中,LLLB组的ADL含量并没有显著降低,可能45 d的发酵时间不足以引起ADL含量显著变化。然而,本试验结果表明,无论是否接种乳酸菌添加剂,对青贮后淀粉含量没有显著影响。造成这一结果的原因有很多,有待进一步探究。

3.3 2种乳酸菌添加剂对全株玉米青贮CNCPS组分及可消化养分的影响

CNCPS体系中PC是不可利用氮,添加LP以后,PC含量降低,说明植物乳杆菌可以提高全株玉米青贮的利用率。王新宇[29]研究发现,CNCPS组分中的PC部分,添加乳酸菌以后,都比对照组低,PA含量高于对照组,说明乳酸菌对饲料中的蛋白质有降解作用。CB1主要成分为淀粉和果胶,试验中LP组的PB1含量高于CK组及LLLB组,表明全株玉米青贮中添加植物乳杆菌发酵剂可能会保留更多的CA。同时,tdNDF发生了变化,LP组tdNDF含量高于CK组及LLLB组,表明只添加植物乳杆菌添加剂,使全株玉米青贮保留更多可消化中性洗涤纤维。

3.4 2种乳酸菌添加剂对全株玉米青贮发酵参数的影响

pH是发酵质量的重要指标,通常发酵质量好的青贮饲料的pH在4.2以下[37]。本试验结果均在4.2以下,说明整个玉米发酵状态良好。由于乳酸的积累,pH在前期有降低的趋势。植物乳杆菌作为一种同源发酵乳酸菌,能产生大量乳酸,迅速降低饲料pH[38],这与本研究结果一致,在青贮1、7、15 d,LP组的pH低于CK组。LLLB组在发酵之初乳酸含量低于LP组,但LLLB组乙酸含量高于LP组,最终2组pH无显著差异。
氨态氮含量代表发酵过程中蛋白质的降解程度。在青贮饲料中,梭状芽孢杆菌等不良微生物的活性会导致蛋白质的分解[39]。随着发酵的进行,氨态氮含量逐渐升高。这说明饲料中的蛋白质随着发酵的进行不断在分解。这与青贮45 d以后,CP含量的下降是一致的。Basso等[40]观察到,青贮接种剂的使用产生了更低的pH,并且使蛋白质分解减少,同时氨态氮含量降低。植物乳杆菌作为同质型乳酸菌发酵剂,通过产生乳酸来降低pH,从而抑制了梭菌等不良微生物的生长繁殖,减少了蛋白质的分解,降低了氨态氮含量。Jatkauskas等[41]研究发现,布氏乳杆菌和乳酸乳球菌混合接种的青贮CP含量显著高于对照组,氨态氮含量显著低于对照组,说明布氏乳杆菌和乳酸乳球菌共同抑制了蛋白质的分解。与此类似的研究结果是Gallo等[33]的研究,与使用布氏乳杆菌和乳酸乳球菌处理的玉米青贮相比,未经处理的玉米青贮中的氨态氮含量更高。
乳酸是青贮发酵过程中的有益酸。通常乳酸菌通过分解可溶性糖产生乳酸。在青贮的1、3 d,添加植物乳杆菌显著提高了玉米青贮中乳酸含量,说明乳酸菌接种剂的添加可以加速玉米青贮中乳酸菌对各种底物的发酵,同时产生大量的乳酸[30],从而降低pH,抑制不良微生物的繁殖,提高青贮发酵品质。Jatkauskas等[41]研究表明,当布氏乳杆菌与乳酸乳球菌混合添加到玉米青贮中时,乳酸和乙酸的含量都会增加。Gallo等[33]研究发现,当布氏乳杆菌和乳酸乳球菌添加到玉米青贮中时,pH上升,乙酸和1,2-丙二醇含量也有类似的上升。但是,Saylor等[6]研究发现,接种布氏乳杆菌和乳酸乳球菌导致了全株玉米青贮有更高的乙酸和1,2-丙二醇含量,提高了pH,并且降低了乳酸含量。前人的研究表明,同型发酵具备更高的乳酸含量,异型发酵具备更多的乙酸、1,2-丙二醇,二者皆引起pH降低。本试验显示,与植物乳杆菌发酵相比,布氏乳杆菌的加入对全株玉米青贮乳酸含量无显著影响,混合发酵具备更加复杂的发酵过程,最终产生乳酸含量与同型发酵接近。
乙酸对酵母活性有抑制作用。异质乳酸菌,如布氏乳杆菌,通过分解碳水化合物等产生乙酸。但与此同时,会产生二氧化碳,增加DM损失[42]。当pH低于4.3时,更宽的跨膜pH梯度改变了同源乳杆菌的代谢,从乳酸(pKa=3.9)转变为酸度系数更高的代谢产物,主要是乙酸(pKa=4.8)、乙醇(pKa=15.9)和1,2-丙二醇(pKa=14.9)。同时,当pH接近3.8时,可促进乳杆菌对乳酸的代谢[43]。所以,在本试验pH始终低于4.2的情况下,存在部分乳酸转化为乙酸。同时,本研究结果表明,乳酸乳球菌和布氏乳杆菌的组合可以提高玉米青贮的乙酸含量,提高其有氧稳定性。肠杆菌可能参与青贮过程中乙酸的发酵[44],这与本试验结果是一致的,整个青贮期间,肠杆菌属的相对丰度虽然比较低,但一直存在。发酵过程中未检测到丙酸。Muck[45]研究表明,丙酸在较低的pH下是不耐受的,这说明由于青贮饲料的pH低于4.2,抑制了丙酸的产生。

3.5 2种乳酸菌添加剂对全株玉米青贮微生物区系的影响

3.5.1 2种乳酸菌添加剂对全株玉米青贮微生物α多样性和β多样性的影响

本研究结果表明,无论是否接种乳酸菌添加剂,发酵45 d时OTU和Chao1指数均有所降低。这表明青贮后全株玉米青贮的微生物区系丰富度下降。同时Shannon指数随着发酵过程的进行逐渐降低,说明青贮的微生物多样性随着青贮过程的进行逐渐降低。这与Liu等[32]的研究结果是一致的,即在青贮60 d后,大麦青贮中主要细菌微生物组显示多样性降低。同时,发酵15 d以后,LP组和LLLB组的OTU和Chao1指数均低于CK组,可能的原因是LP组的pH较低,从而抑制了微生物的生长[46],降低了细菌种群的丰富度。这与Mu等[47]的研究结果是一致的,在青贮30 d以后,植物乳杆菌组、纤维素酶组、植物乳杆菌和纤维素酶组合添加组的OTU、Shannon指数和Chao1指数都低于对照组,可能是由于对照组pH下降的较慢所导致的。同样的研究结果,Li等[48]通过添加乳酸菌菌剂对丁香和黑麦草进行青贮,结果表明,未添加菌剂的青贮中细菌的丰富度较高,添加菌剂降低了丁香和黑麦草微贮饲料的细菌丰富度。
在青贮过程中,CK组、LP组和LLLB组的样品分散在不同的位置。因此,笔者推断不同组之间的微生物区系存在差异,说明添加植物乳杆菌、乳酸乳球菌和布氏乳杆菌对青贮的微生物区系有一定影响。刘鑫阳[49]研究表明,通过对不同微生物添加的玉米秸秆5个不同微贮阶段细菌的PCoA,发现添加菌剂对玉米秸秆微贮的整个过程中细菌群落组成都有影响,且添加不同微生物,微贮过程中细菌群落组成变化情况不同。

3.5.2 2种乳酸菌添加剂对全株玉米青贮微生物门、属水平相对丰度的影响

Firmicutes和Proteobacteria始终是青贮饲料中最丰富的门。这与Mu等[47]的研究结果是一致的,青贮30 d以后,混合青贮料中的优势门类为Firmicutes和Proteobacteria。Firmicutes是酸水解微生物,Proteobacteria可以消化有机物,在厌氧环境中,两者都有重要的作用[50]。但在青贮后期,Proteobacteria相对丰度开始下降,Firmicutes仍是相对丰度最高的门。Mcgarvey等[51]在类似的研究中发现,在苜蓿青贮过程中,Proteobacteria相对丰度下降,Firmicutes相对丰度增加,说明了苜蓿青贮过程中细菌群落由Proteobacteria向Firmicutes的转变。这种变化的原因可能与随着发酵的进行,Proteobacteria底物减少有关。
为了进一步了解整株玉米青贮过程中微生物区系的动态,试验还在属水平上统计了微生物的相对丰度。在青贮1 d,WeissellaLactobacillus都是青贮过程中的优势菌落。随着发酵的进行,Lactobacillus逐渐成为青贮的优势菌群。与此类似的是,Ni等[52]报道在玉米青贮中发现了高丰度的Lactobacillus。而Weissella的丰度逐渐降低。造成这种结果的原因可能是青贮初期pH相对较低,随着发酵过程的进行pH逐渐降低,发酵过程中pH较低时[53],相比于耐酸的Lactobacillus,Weissella没有竞争优势[54],所以在细菌群落中出现了WeissellaLactobacillus的转变。这与本研究结果一致,随着发酵进程的进行,Lactobacillus成为优势菌群,而Weissella逐渐减少。Weissella是严格的异种发酵菌,代谢可溶性糖产生乳酸和乙酸的混合物[53]。Zheng等[55]表明,有时Weissella的组成成员会发起青贮发酵。同样的,Keshri等[56]报道,WeissellaPediococcus启动玉米青贮发酵的1~7 d。这些结果表明,Weissella参与了全株玉米青贮的早期发酵,降低了发酵过程中的pH,为Lactobacillus提供了良好的生长环境。本试验中,在青贮前期,Pediococcus和明串珠菌属(Leuconostoc)的相对丰度并不占优势,并且随着时间的推移,LeuconostocPediococcus的相对丰度逐渐下降,与本试验结果相反的是,Wang等[57]发现,在玉米青贮前3 d,Leuconostoc的相对丰度相对于LactobacillusPediococcus迅速增加,而在7 d后,Lactobacillus相对丰度迅速增加,而Leuconostoc的相对丰度急剧下降。这表明LeuconostocPediococcus成员可能参与了玉米青贮发酵的早期过程,降低了pH,从而加速了Lactobacillus的生长。Enterobacteria在青贮过程中的存在不利于青贮,因为它们与Lactobacillus争夺营养物质并产生氨态氮。青贮饲料中Enterobacteria的减少反映了良好的青贮条件、水分和营养物质的可利用性,Lactobacillus能有效地将营养物质转化为发酵产物、低pH以及适宜的温度[58]。在发酵初期,由于好氧微生物消耗氧气,Lactobacillus等厌氧微生物会生长,从而降低青贮的pH。最终,Enterobacteria等不良微生物的生长被抑制,乳酸杆菌开始在低pH环境中活跃生长,并主导青贮过程[59]。这与本试验结果一致,即随着青贮时间的延长,Enterobacteria的相对丰度逐渐降低,Lactobacillus的相对丰度逐渐升高。Parvin等[60]发现,整个玉米植株的细菌群落在发酵后会发生从EnterobacteriaLactobacillusLactococcus的转变。青贮45 d以后,LP组和LLLB组Lactobacillus相对丰度高于青贮1 d的。这说明乳酸菌添加剂提高了优势菌属Lactobacillus的数量。与本试验结果一致的是,有研究表明接种植物乳杆菌或布氏乳杆菌可增加Lactobacillus的相对丰度,细菌群落多样性也随之降低[61]。由此可见,Lactobacillus添加剂可以抑制不良微生物的生长繁殖,促进Lactobacillus等有益微生物的生长,从而提高青贮发酵品质。本试验中,全株玉米青贮45 d以后,与CK组相比,LP组和LLLB组的Weissella的相对丰度没有降低,但是与青贮1 d相比,LP组和LLLB组的Weissella相对丰度都有明显的减少。有研究报道,在青贮100 d后,接种植物乳杆菌组降低了WeissellaPediococcus的相对丰度[61]。这些结果表明,Weissella的相对丰度随着发酵过程中pH的降低而逐渐减少,这与本研究结果一致。

4 结论

综上所述,全株玉米青贮中添加植物乳杆菌添加剂或添加乳酸乳球菌和布氏乳杆菌组合对其营养价值和发酵品质的影响优于无添加剂处理。而添加植物乳杆菌添加剂对全株玉米青贮营养价值和发酵品质的影响优于添加乳酸乳球菌和布氏乳杆菌组合。
[1]
FERRARETTO L F, SHAVER R D, LUCK B D. Silage review:recent advances and future technologies for whole-plant and fractionated corn silage harvesting[J]. Journal of Dairy Science, 2018, 101(5):3937-3951.

[2]
ZHONG Z X, NIIMI M, TOBISA M, et al. Effects of establishment on growth,yield,and silage qualities of amaranth in Typhoon-Prone southern Kyushu,Japan[J]. Agriculture, 2024, 14(8):1364.

[3]
KUNG L M, SHAVER R D, GRANT R J, et al. Silage review:interpretation of chemical,microbial,and organoleptic components of silages[J]. Journal of Dairy Science, 2018, 101(5):4020-4033.

[4]
DRIEHUIS F, OUDE ELFERINK S J W H. The impact of the quality of silage on animal health and food safety:a review[J]. Veterinary Quarterly, 2000, 22(4):212-216.

[5]
陈影, 杨鑫, 孙浩轩, 等. 植物乳杆菌特性及其在饲料中的应用[J]. 当代化工, 2024, 53(11):2673-2677.

CHEN Y, YANG X, SUN H X, et al. Characteristics of Lactobacillus plantarum and its application in feed[J]. Contemporary Chemical Industry, 2024, 53(11):2673-2677. (in Chinese)

[6]
SAYLOR B A, FERNANDES T, SULTANA H, et al. Influence of microbial inoculation and length of storage on fermentation profile,N fractions,and ruminal in situ starch disappearance of whole-plant corn silage[J]. Animal Feed Science and Technology, 2020,267:114557.

[7]
MOKOENA M P. Lactic acid bacteria and their bacteriocins:classification,biosynthesis and applications against uropathogens:a mini-review[J]. Molecules, 2017, 22(8):1255.

[8]
KLEINSCHMIT D H, KUNG L Jr. A Meta-analysis of the effects of Lactobacillus buchneri on the fermentation and aerobic stability of corn and grass and small-grain silages[J]. Journal of Dairy Science, 2006, 89(10):4005-4013.

[9]
AOAC. Official methods of analysis[S]. 17th ed.Washington,D.C.:Association of Official Analytical Chemists, 2000.

[10]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[11]
OWENS V N, ALBRECHT K A, MUCK R E, et al. Protein degradation and fermentation characteristics of red clover and alfalfa silage harvested with varying levels of total nonstructural carbohydrates[J]. Crop Science, 1999, 39(6):1873-1880.

[12]
周荣, 王加启, 周振峰, 等. 饲料非蛋白氮与可溶性蛋白测定方法概述[J]. 中国奶牛, 2011(11):39-41.

ZHOU R, WANG J Q, ZHOU Z F, et al. Standardization of procedures of nonprotein nitrogen and buffer-soluble protein[J]. China Dairy Cattle, 2011(11):39-41. (in Chinese)

[13]
LICITRA G, HERNANDEZ T M, VAN SOEST P J. Standardization of procedures for nitrogen fractionation of ruminant feeds[J]. Animal Feed Science and Technology, 1996, 57(4):347-358.

[14]
National Research Council. Nutrient requirements of dairy cattle[S]. 7th ed.Washington,D.C.:National Academies Press, 2001.

[15]
李欣新. 双低菜粕和豆粕分子结构与营养特性和奶牛生产性能的关系[D]. 博士学位论文. 哈尔滨: 东北农业大学, 2016.

LI X X. The molecular structure of double-low rapeseed meal and soybean meal in relation to nutrient profiles and production performance in dairy cows[D]. Ph.D.Thesis. Harbin: Northeast Agricultural University, 2016. (in Chinese)

[16]
SNIFFEN C J, O’CONNOR J D, VAN SOEST P J, et al. A net carbohydrate and protein system for evaluating cattle diets:Ⅱ.Carbohydrate and protein availability[J]. Journal of Animal Science, 1992, 70(11):3562-3577.

[17]
NOVAMSKY I, VAN ECK R, VAN SCHOUWENBURG C, et al. Total nitrogen determination in plant material by means of the indophenol-blue method[J]. Netherlands Journal of Agricultural Science, 1974, 22(1):3-5.

[18]
YUAN X J, GUO G, WEN A Y, et al. The effect of different additives on the fermentation quality,in vitro digestibility and aerobic stability of a total mixed ration silage[J]. Animal Feed Science and Technology, 2015,207:41-50.

[19]
OLSEN R A, BAKKEN L R. Viability of soil bacteria:optimization of plate-counting technique and comparison between total counts and plate counts within different size groups[J]. Microbial Ecology, 1987, 13(1):59-74.

[20]
CHEN L Y, BAI S Q, YOU M H, et al. Effect of a low temperature tolerant lactic acid bacteria inoculant on the fermentation quality and bacterial community of oat round bale silage[J]. Animal Feed Science and Technology, 2020,269:114669.

[21]
MICHELSEN C F, PEDAS P, GLARING M A, et al. Bacterial diversity in Greenlandic soils as affected by potato cropping and inorganic versus organic fertilization[J]. Polar Biology, 2014, 37(1):61-71.

[22]
BOLYEN E, RIDEOUT J R, DILLON M R, et al. Reproducible,interactive,scalable and extensible microbiome data science using QIIME 2[J]. Nature Biotechnology, 2019, 37(8):852-857.

[23]
XIN H S, MA T, XU Y, et al. Characterization of fecal branched-chain fatty acid profiles and their associations with fecal microbiota in diarrheic and healthy dairy calves[J]. Journal of Dairy Science, 2021, 104(2):2290-2301.

[24]
DESANTIS T Z, HUGENHOLTZ P, LARSEN N, et al. Greengenes,a chimera-checked 16S rRNA gene database and workbench compatible with ARB[J]. Applied and Environmental Microbiology, 2006, 72(7):5069-5072.

[25]
YANG J S, TAN H S, CAI Y M. Characteristics of lactic acid bacteria isolates and their effect on silage fermentation of fruit residues[J]. Journal of Dairy Science, 2016, 99(7):5325-5334.

DOI PMID

[26]
OLIVEIRA A S, WEINBERG Z G, OGUNADE I M, et al. Meta-analysis of effects of inoculation with homofermentative and facultative heterofermentative lactic acid bacteria on silage fermentation,aerobic stability,and the performance of dairy cows[J]. Journal of Dairy Science, 2017, 100(6):4587-4603.

[27]
MARTINEZ-FERNANDEZ A, SOLDADO A, DE-LA-ROZA-DELGADO B, et al. Modelling a quantitative ensilability index adapted to forages from wet temperate areas[J]. Spanish Journal of Agricultural Research, 2013, 11(2):455-462.

[28]
NI K K, ZHAO J Y, ZHU B G, et al. Assessing the fermentation quality and microbial community of the mixed silage of forage soybean with crop corn or sorghum[J]. Bioresource Technology, 2018,265:563-567.

[29]
王新宇. 添加乳酸菌对全株玉米青贮发酵品质和牛能量代谢的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2021.

WANG X Y. Effects of adding lactic acid bacteria on the fermentation quality of whole-plant corn silageand cattle energy metabolism[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2021. (in Chinese)

[30]
LIU Q H, LI X Y, DESTA S T, et al. Effects of Lactobacillus plantarum and fibrolytic enzyme on the fermentation quality and in vitro digestibility of total mixed rations silage including rape straw[J]. Journal of Integrative Agriculture, 2016, 15(9):2087-2096.

[31]
CAI Y M, FUJITA Y, MURAI M, et al. Application of lactic acid bacteria(Lactobacillus plantarum Chikuso-1)for silage preparation of forage paddy rice[J]. Journal of Japanese Society of Grassland Science, 2003, 45(5):477-485.

[32]
LIU B Y, HUAN H L, GU H R, et al. Dynamics of a microbial community during ensiling and upon aerobic exposure in lactic acid bacteria inoculation-treated and untreated barley silages[J]. Bioresource Technology, 2019,273:212-219.

[33]
GALLO A, BERNARDES T F, COPANI G, et al. Effect of inoculation with Lactobacillus buchneri LB1819 and Lactococcus lactis O224 on fermentation and mycotoxin production in maize silage compacted at different densities[J]. Animal Feed Science and Technology, 2018,246:36-45.

[34]
MUCK R E, NADEAU E M G, MCALLISTER T A, et al. Silage review:recent advances and future uses of silage additives[J]. Journal of Dairy Science, 2018, 101(5):3980-4000.

[35]
苗芳. 同/异质型乳酸菌对玉米青贮品质及有氧稳定性的影响[D]. 硕士毕业论文. 石河子: 石河子大学, 2017.

MIAO F. The effects of homo- with or without heterofermentative lactic acid bacteria on the quality and aerobic stability of the corn silage[D]. Master’s Thesis. Shihezi: Shihezi University, 2017. (in Chinese)

[36]
NSEREKO V L, SMILEY B K, RUTHERFORD W M, et al. Influence of inoculating forage with lactic acid bacterial strains that produce ferulate esterase on ensilage and ruminal degradation of fiber[J]. Animal Feed Science and Technology, 2008, 145(1/2/3/4):122-135.

[37]
MCDONALD P, HENDERSON A R, HERON S J E. The biochemistry of silage[M]. 2nd ed. Aberytstwyth: Chalcombe Publications,1991.

[38]
HU W, SCHMIDT R J, MCDONELL E E, et al. The effect of Lactobacillus buchneri 40788 or Lactobacillus plantarum MTD-1 on the fermentation and aerobic stability of corn silages ensiled at two dry matter contents[J]. Journal of Dairy Science, 2009, 92(8):3907-3914.

[39]
OGUNADE I M, JIANG Y, KIM D H, et al. Fate of Escherichia coli O157∶H7 and bacterial diversity in corn silage contaminated with the pathogen and treated with chemical or microbial additives[J]. Journal of Dairy Science, 2017, 100(3):1780-1794.

[40]
BASSO F C, ADESOGAN A T, LARA E C, et al. Effects of feeding corn silage inoculated with microbial additives on the ruminal fermentation,microbial protein yield,and growth performance of lambs[J]. Journal of Animal Science, 2014, 92(12):5640-5650.

[41]
JATKAUSKAS J, VROTNIAKIENĒ V, STOŠKUS R. Variations in fermentation,bacterial population and aerobic stability in maize silage[J]. Zemdirbyste-Agriculture, 2018, 105(4):377-382.

[42]
BORREANI G, TABACCO E, SCHMIDT R J, et al. Silage review:factors affecting dry matter and quality losses in silages[J]. Journal of Dairy Science, 2018, 101(5):3952-3979.

[43]
OUDE ELFERINK S J, KROONEMAN J, GOTTSCHAL J C, et al. Anaerobic conversion of lactic acid to acetic acid and 1,2-propanediol by Lactobacillus buchneri[J]. Applied and Environmental Microbiology, 2001, 67(1):125-132.

[44]
NISHINO N, LI Y, WANG C, et al. Effects of wilting and molasses addition on fermentation and bacterial community in Guinea grass silage[J]. Letters in Applied Microbiology, 2012, 54(3):175-181.

DOI PMID

[45]
MUCK R E. Recent advances in silage microbiology[J]. Agricultural and Food Science, 2013,22:3-15.

[46]
MÉNDEZ-GARCÍA C, PELÁEZ A I, MESA V, et al. Microbial diversity and metabolic networks in acid mine drainage habitats[J]. Frontiers in Microbiology, 2015,6:475.

[47]
MU L, XIE Z, HU L X, et al. Cellulase interacts with Lactobacillus plantarum to affect chemical composition,bacterial communities,and aerobic stability in mixed silage of high-moisture amaranth and rice straw[J]. Bioresource Technology, 2020,315:123772.

[48]
LI P, ZHANG Y, GOU W L, et al. Silage fermentation and bacterial community of bur clover,annual ryegrass and their mixtures prepared with microbial inoculant and chemical additive[J]. Animal Feed Science and Technology, 2019,247:285-293.

[49]
刘鑫阳. 添加不同菌剂对玉米秸秆微贮菌群及品质的影响[D]. 硕士毕业论文. 呼和浩特: 内蒙古农业大学, 2019.

LIU X Y. Effects of adding different microbial agents on the corn stalks silage microflora and quality[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2019. (in Chinese)

[50]
YUAN X J, DONG Z H, LI J F, et al. Microbial community dynamics and their contributions to organic acid production during the early stage of the ensiling of Napier grass (Pennisetum purpureum)[J]. Grass and Forage Science, 2020, 75(1):37-44.

[51]
MCGARVEY J A, FRANCO R B, PALUMBO J D, et al. Bacterial population dynamics during the ensiling of Medicago sativa (alfalfa) and subsequent exposure to air[J]. Journal of Applied Microbiology, 2013, 114(6):1661-1670.

[52]
NI K K, MINH T T, TU T T M, et al. Comparative microbiota assessment of wilted Italian ryegrass,whole crop corn,and wilted alfalfa silage using denaturing gradient gel electrophoresis and next-generation sequencing[J]. Applied Microbiology and Biotechnology, 2017, 101(4):1385-1394.

[53]
OGUNADE I M, KIM D H, JIANG Y, et al. Control of Escherichia coli O157∶H7 in contaminated alfalfa silage:effects of silage additives[J]. Journal of Dairy Science, 2016, 99(6):4427-4436.

[54]
GRAF K, ULRICH A, IDLER C, et al. Bacterial community dynamics during ensiling of perennial ryegrass at two compaction levels monitored by terminal restriction fragment length polymorphism[J]. Journal of Applied Microbiology, 2016, 120(6):1479-1491.

DOI PMID

[55]
ZHENG M L, NIU D Z, JIANG D, et al. Dynamics of microbial community during ensiling direct-cut alfalfa with and without LAB inoculant and sugar[J]. Journal of Applied Microbiology, 2017, 122(6):1456-1470.

DOI PMID

[56]
KESHRI J, CHEN Y, PINTO R, et al. Microbiome dynamics during ensiling of corn with and without Lactobacillus plantarum inoculant[J]. Applied Microbiology and Biotechnology, 2018, 102(9):4025-4037.

[57]
WANG M S, FRANCO M, CAI Y M, et al. Dynamics of fermentation profile and bacterial community of silage prepared with alfalfa,whole-plant corn and their mixture[J]. Animal Feed Science and Technology, 2020,270:114702.

[58]
PAHLOW G, MUCK R E, DRIEHUIS F, et al. Microbiology of ensiling[J]. Silage Science and Technology, 2003,42:31-93.

[59]
DUNIÈRE L, SINDOU J, CHAUCHEYRAS-DURAND F, et al. Silage processing and strategies to prevent persistence of undesirable microorganisms[J]. Animal Feed Science and Technology, 2013, 182(1/2/3/4):1-15.

[60]
PARVIN S, WANG C, LI Y, et al. Effects of inoculation with lactic acid bacteria on the bacterial communities of Italian ryegrass,whole crop maize,Guinea grass and Rhodes grass silages[J]. Animal Feed Science and Technology, 2010, 160(3/4):160-166.

[61]
OGUNADE I M, JIANG Y, PECH CERVANTES A A, et al. Bacterial diversity and composition of alfalfa silage as analyzed by Illumina MiSeq sequencing:effects of Escherichia coli O157∶H7 and silage additives[J]. Journal of Dairy Science, 2018, 101(3):2048-2059.

文章导航

/