综述

漆酶在畜牧生产中应用的研究进展

  • 肖艳清 ,
  • 陈清华 , * ,
  • 徐伟伟 ,
  • 郑梦莉
展开
  • 湖南农业大学动物科学技术学院,长沙 410128
* 陈清华,教授,博士生导师,E-mail:

肖艳清(2001—),女,湖南衡阳人,硕士研究生,从事动物营养与饲料资源开发利用研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-10-22

  网络出版日期: 2025-05-14

基金资助

湖南省教育厅科学研究项目(HNJG-2020-0333)

Research Progress on Application of Laccase in Livestock Production

  • XIAO Yanqing ,
  • CHEN Qinghua , * ,
  • XU Weiwei ,
  • ZHENG Mengli
Expand
  • College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
* professor, E-mail:

Received date: 2024-10-22

  Online published: 2025-05-14

摘要

漆酶是一类含铜氧化酶,广泛存在于细菌、真菌、昆虫和植物中。漆酶与其他含铜氧化酶相比,具有显著的催化能力和广泛的底物特异性,能够催化多种酚类及芳香胺类化合物的氧化反应。本文介绍了漆酶的来源、结构、催化机制和酶学特性,并综述了漆酶在降解毒素、改善动物健康及生物降解等方面应用的研究进展,旨在为漆酶的广泛应用提供参考。

本文引用格式

肖艳清 , 陈清华 , 徐伟伟 , 郑梦莉 . 漆酶在畜牧生产中应用的研究进展[J]. 动物营养学报, 2025 , 37(5) : 2875 -2886 . DOI: 10.12418/CJAN2025.240

Abstract

Laccase (Lac) is a kind of copper-containing oxidase, which widely exists in bacteria, fungi, insects and plants. Compared with other copper-containing oxidases, laccase has significant catalytic ability and broad substrate specificity, and can catalyze the oxidation of various phenols and aromatic amines. This paper introduced the source, structure, catalytic mechanism and enzymatic properties of laccase, and reviewed the application of laccase in degradation of toxins, improvement of animal health and biodegradation, in order to provide reference for the wide application of laccase.

漆酶(laccase,EC 1.10.3.2)是一种广泛存在于自然界的多酚氧化酶,由于其具有广谱的氧化能力和环保的催化性质,在生物降解、环境污染治理、纺织染料脱色和食品工业等领域得到了广泛关注和应用。近年来,随着绿色养殖和国家生态可持续发展战略的推进,漆酶在畜牧生产中得到了广泛的应用,其在畜牧养殖领域中扮演着降解毒素、促进木质素降解等重要角色。本文综述了漆酶的来源、结构、催化机制和酶学特性及其在畜牧生产中应用的进展,以期为漆酶在畜牧行业的应用提供参考。

1 漆酶的概述

1.1 漆酶的来源

漆酶主要来源于细菌、真菌、昆虫和植物。细菌漆酶在高温和高pH下仍然能保持其生物活性,革兰氏阴性菌如假单胞菌、肠杆菌等和革兰氏阳性菌如芽孢杆菌、地杆菌等也能产生漆酶[1]。据报道,氮螺旋菌漆酶参与细胞色素沉着、木质素代谢产生的天然植物酚类化合物的利用和电子传递[2-4]。真菌漆酶是报道最多、分布最广的一类漆酶,白腐真菌如香菇[5]、灵芝[6]是真菌漆酶的主要来源,能够分泌大量漆酶用于木质素的降解;其亦广泛分布于子囊菌和担子菌等,它们在降解环境污染物方面发挥着不可替代的作用[7]。昆虫漆酶根据其生理作用和分布特点主要分为2种形式,即漆酶1和漆酶2[8]。漆酶1在六分枝杆菌的唾液腺、中肠、马氏管、脂肪体和表皮中表达,它可以氧化昆虫摄入的有毒化合物,从而在昆虫肠道中起保护作用[9-11]。漆酶2是甲虫表皮鞣制所需的酚氧化酶基因,在幼虫、蛹和成虫阶段参与蓖麻绦虫和六分枝杆菌的角质层鞣制[10,12]。植物漆酶的研究历史最为悠久,其广泛存在于土豆、卷心菜、萝卜、梨、苹果和其他果蔬中[13]。报道最早也最为详尽的是从日本漆树(Rhu svenicifera)中提取的漆酶,漆树漆酶目前是植物源提取的漆酶中活性最高的一类[14]。研究表明,植物漆酶参与植物细胞壁的木质化,负责维持细胞壁结构和机械刚性[15-17]

1.2 漆酶的结构与功能

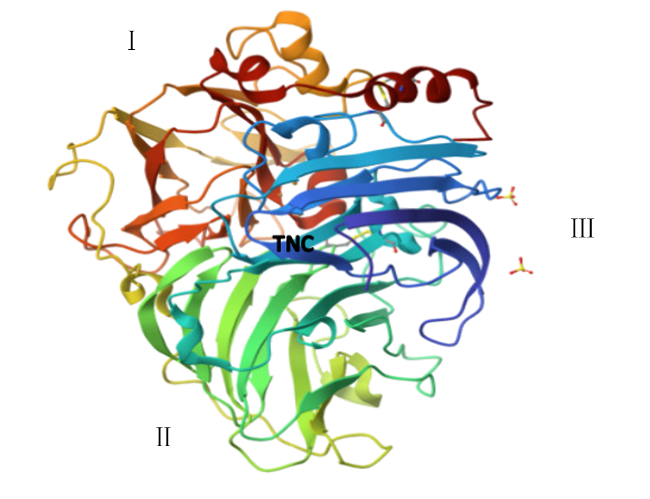
漆酶的分子质量为50~140 kDa[18],含有4个铜离子(Cu2+),其结构如图1所示。漆酶的功能单位由Ⅰ型Cu2+(T1Cu)、Ⅱ型Cu2+(T2Cu)和Ⅲ型Cu2+(T3aCu和T3bCu)组成[19]。这些Cu2+的存在得以让漆酶催化多种酚类化合物的氧化反应。T1Cu(T1位点)负责赋予酶深蓝色这一色系,在600 nm附近具有很强的电子吸收,并且可以检测到电子顺磁共振(EPR)[20];T2Cu(T2位点)是无色的,也可以检测到EPR;而T3aCu和T3bCu(T3位点)能够在紫外光谱附近产生微弱的吸光度,但没有EPR信号。T2和T3位点相近,形成一个三核中心(TNC),参与酶催化机制[21]。漆酶在自然界中存在多种形式,包括单体、二聚体和四聚体,但主要以单体形式存在[22]。漆酶的主要功能是催化酚类物质的氧化反应。通过电子传递和氧化过程,漆酶能够将酚类物质氧化成对应的醛、酮、酸等化合物,或者聚合成高分子化合物如酚醛树脂[23]。在这一过程,底物通过与Cu2+相互作用将电子传递给酶,酶再将电子传递给氧气,最终生成水[24]。这种独特的催化机制使得漆酶在生物检测、环境治理等领域具有广泛的应用前景。由于漆酶独特的催化特性,它被广泛用作高效的生物检测器。通过检测底物、辅酶、抑制剂等成分的变化,漆酶可以有效地分析这些物质的含量和活性[25]。研究表明,漆酶可以氧化木质素中的酚羟基使其变成苯氧基自由基,促进木质素的降解[26]
图1 漆酶的三维结构(PDB ID: 5ANH)

Ⅰ:Ⅰ型Cu2+ type Ⅰ Cu2+;Ⅱ:Ⅱ型Cu2+ type Ⅱ Cu2+;Ⅲ:Ⅲ型Cu2+ type Ⅲ Cu2+;TNC:三核中心 trinuclear cluster。

Fig.1 Three-dimensional structure of laccase (PDB ID: 5ANH)

1.3 漆酶的催化机制

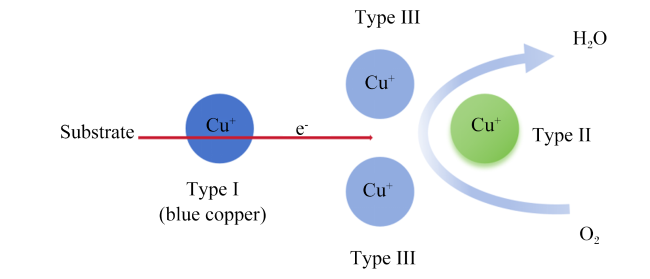
漆酶的催化机制涉及底物分子的氧化还原反应,主要涉及电子传递和氧化过程[27],分为底物结合、电子传递、底物氧化与还原、产物生成与释放这4部分。漆酶首先与底物(如酚类化合物、某些芳香胺和脂肪胺等)结合,底物的酚羟基会与活性中心的Cu2+发生相互作用,在催化过程中,底物的酚羟基释放出1个电子,该电子从T1位点开始,然后传递到T2和T3位点,最终传递给氧气,随着电子的传递,底物的酚羟基被氧化成邻位或对位的醌类化合物,同时氧气接受这些电子后被还原成水[28]。氧化后的底物(即醌类化合物)从酶上解离下来,形成最终的氧化产物。同时,酶恢复到其初始状态,准备进行下一轮的催化反应。其催化机制如图2所示。
图2 漆酶的催化机制

Substrate:底物;Type Ⅰ:Ⅰ型;Type Ⅱ:Ⅱ型;Type Ⅲ:Ⅲ型;blue copper:铜蓝。

Fig.2 Catalytic mechanism of laccase[29]

2 漆酶的酶学特性

不同来源的漆酶在最适反应温度和pH上存在差异。一般而言,漆酶发挥活性的最佳温度在50~70 ℃[30]。真菌漆酶通常具有最佳酸性pH。2,2'-联氮-双-3-乙基苯并噻唑啉-6-磺酸[ABTS]氧化的最佳pH通常在4.0以下,而2,6-二甲氧基苯酚(2,6-dimethoxyphenol)、愈创木酚(guaiacol)和丁香醛嗪(syringaldazine)等酚类化合物的氧化最佳pH在4.0~7.0[31]。从大孢粪壳菌k-hell中筛选出1个漆酶基因LacSM,以愈创木酚、丁香醛嗪、2,6-二甲氧基苯酚和ABTS为底物时漆酶LacSM对底物氧化的最佳pH分别为6、7、5和5;并且,4种底物中漆酶活性最佳时的反应温度分别为60、55、55和50 ℃[32]。来自凋落物分解菌Gymnopus luxurians的漆酶以ABTS为底物时的最适pH为2.2,适宜温度范围为55~65 ℃[33];硬毛栓孔菌(Trametes trogii)来源的漆酶Lac 37 II以ABTS为底物时,在pH 2.7和60 ℃下表现出最大活性[34]Cerrena unicolor单色菌株CGMCC 5.1011来源漆酶在ABTS、儿茶酚和愈创木酚为底物时的最适pH分别为3.0、5.5、5.0,最佳温度分别为55、45和60 ℃[35]Pycnoporus sp.SYBC-L10来源漆酶在2,6-二甲基苯酚(2,6-dimethylphenol,2,6-DMP)和ABTS 2种底物条件下的最适pH和最适温度相同,分别为3.0和70 ℃[36]。真菌漆酶的应用由于其在pH和温度等条件下的适用性而受到一定的限制。在细菌漆酶中,Pediococcus pentosaceus 4816来源漆酶以ABTS为底物时,仅在酸性pH下具有活性,适宜pH在3.0~3.5;以2,6-DMP为底物时,在pH 8.0~8.5附近检测到最高活性[37]。枯草芽孢杆菌(Bacillus subtilis)和甘薯链霉菌(Streptomyces ipomoeae)来源漆酶均在pH为8.0的条件下对2,6-DMP的氧化表现出最佳活性[38];据报道,Geobacillus yumthangensis来源的重组细菌漆酶在高酸性(pH=3下残留活性为75%,持续6 h)和碱性(pH=12下残余活性为50%,持续6 h)条件下均相对稳定[39];娄彻链霉菌(Streptomyces rochei)来源的细菌漆酶SrLA以ABTS为底物时,在80 ℃、pH=5时活性最佳[40];阿伊德尔无氧芽孢菌SK3-4(Anoxybacillus ayderensis SK3-4)来源的细菌漆酶LacAn对丁香醛嗪的氧化最佳pH和温度分别为7.0和75 ℃[41];Bacillus licheniformis来源的细菌漆酶TPNR1和TPNR6在50 ℃下均具有最大活性,而TPNR1和TPNR6的最佳pH分别为5.0和6.0[42]。相较于真菌漆酶,细菌漆酶能够在较宽pH范围内、高温和高盐浓度下发挥作用[43]。不同来源漆酶的酶学特性见表1
表1 不同来源漆酶的酶学特性

Table 1 Enzymatic properties of laccases from different sources

漆酶来源
Sources of
laccases
漆酶名称
Laccase
names
最适温度
Optimum
temperature/℃
最适pH
Optimum
pH
热稳定性
Thermal
stability
底物
Substrates
金属离子的影响
Metal ion
effects
动力学参数
Kinetic equation
parameters
参考文献
References
Gymnopus luxurians 胞外漆酶 55~65 2.2 在50 ℃下24 h
后保留约63%
的活性
2,2'-联氮-双-3-
乙基苯并噻唑啉-6-
磺酸(ABTS)
在钾离子(K+)、钠离子(Na+)
和镁离子(Mg2+)存在下,
该酶活性显著增强
该酶对ABTS的米
氏常数(Km)值
为539 μmol/L
[33]
毛头鬼伞
Coprinus comatus
毛头鬼
伞漆酶
45 5.0 35~45 ℃保温1 h
后,相对活性保持
在80.67%以上
ABTS Mg2+、铜离子(Cu2+)对
该酶表现出良好的促进效果;
锂离子(Li+)、钙离子(Ca2+)、
K+在高浓度时对该酶呈现
不同程度的抑制
该酶对ABTS
的Km值为
0.329 7 mmol/L
[44]
硬毛栓孔菌
Trametes trogii
Lac37II 60 2.7 具有较高的
热稳定性
ABTS Na+、锰离子(Mn2+)、Mg2+、钴离
子(Co2+)和Cu2+对该酶活性
的影响不大;亚铁离子
(Fe2+)、镉离子(Cd2+)和
锌离子(Zn2+)对该酶的活性
表现出抑制作用
该酶对ABTS的
Km为16.1 μmol/L
[34]
解淀粉芽孢杆菌
Bacillus
amyloliquefaciens
BmLac 55 4.0 在90 ℃下孵育1 h
后,相对活性仍保留
70%以上
ABTS 1 mmol/L的Cu2+能使该酶活
性提高;但10 mmol/L的Fe2+
铁离子(Fe3+)和铝离子(Al3+)
完全抑制该酶的活性
该酶对ABTS的
Km值为(0.451 9±
0.034 9) mmol/L
[45]
阿伊德尔无氧芽孢菌
SK3-4 Anoxybacillus
ayderensis SK3-4
LacAn 75 7.0 60 ℃以上时活
性保持稳定
丁香醛嗪 Cu2+和Mg2+显著提高了该酶
的活性,而Zn2+和Fe2+
抑制了该酶的活性
该酶对丁香醛嗪的
Km为14.2 μmol/L
[41]
猬木霉MY-5
Trichoderma
erinaceum MY-5
猬木霉
MY-5漆酶
50 5.0 60 ℃下保温24 h后,
相对活性保持在85.3%
ABTS Cu2+和Mg2+的添加提升了该
酶的活性;Na+和Zn2+对该酶的
活性均有抑制作用
[46]
秀珍菇
Pleurotus
pulmonarius
秀珍菇
漆酶
50 4.0~5.0 在20~40 ℃下孵育
1 h,相对活性维持在
80%以上
ABTS K+浓度高于0.625 mmol/L时对
该酶活性有促进作用,Ca2+、Cu2+
Mg2+、Fe2+、Fe3+、Zn2+、Al3+、铅离子
(Pb2+)、镍离子(Ni+)、Co2+、Li+
Cd2+、Mn2+和汞离子(Hg2+)对该酶
的活性均有一定程度的抑制作用
该酶对ABTS
的Km为4.64×
10-6 mol/L
[14]

3 漆酶在畜禽生产中的应用

3.1 在降解饲料中纤维物质方面的应用

漆酶可以通过降解饲料中的粗纤维,如秸秆中的木质素和酸性洗涤纤维、中性洗涤纤维等,提高饲料的营养价值,使其易于动物消化吸收。Kumar等[47]研究表明,使用固定化细胞生产的漆酶对谷子秸秆和高粱秸秆的木质素降解率在30%~40%,对水稻秸秆为27%~32%,小麦秸秆为21%,玉米秸秆为26%,能够有效提高反刍动物对秸秆中营养物质的消化率。Liu等[48]研究表明,香菇重组漆酶LeLac可以通过降解油菜秸秆酸性洗涤纤维中的木质素来改善其纤维素酶解效果,LeLac还有效地去除了原油菜秸秆中的可溶性酚类物质,使原油菜秸秆酶解能力的增强,这是LeLac去除多酚和降解木质素的综合作用的结果,表明LeLac有助于提高油菜秸秆的利用率。漆酶降解农作物秸秆中木质素的相关研究报道见表2
表2 不同来源漆酶降解木质素的相关研究报道

Table 2 Related research reports on lignin degradation by laccase from different sources

漆酶来源
Sources of laccases
漆酶名称
Laccase names
研究对象
Research objects
试验结果
Test results
参考文献
References
木质纤维素降解菌群WSC-6
Lignocellulose-degrading
microbial consortium WSC-6
LacZ1 水稻秸秆 在pH 7.0下作用1、8和24 h后木质素的降解率分别为
25.5%、42.2%和45.7%;在pH 4.5下作用1、8和24 h后
木质素的降解率分别为41.2%、56.8%和59.3%
[49]
高地芽孢杆菌SL7
Bacillus altitudinis SL7
CotA-SL7 玉米秸秆 在55 ℃和pH 5.0下,在补充有2.0 g/L木质素和
5 μg纯化的CotA-SL7的培养基中孵育12 h后观察到
木质素含量降低约31.2%
[50]
平菇
Pleurotus ostreatus
重组漆酶
X33-Lac-2
玉米秸秆 在25 ℃、120 r/min下孵育120 h后对木质素的
降解率高达18.36%
[51]
裂褶菌
Schizophyllum commune
裂褶菌漆酶 农作物秸秆 在谷子秸秆和高粱秸秆中观察到的木质最大降解率
为40.1%,其次是水稻秸秆(32%)、小麦秸秆
(21.7%)和玉米秸秆(20.9%)
[47]
平菇
Pleurotus ostreatus
PoLcc1 棉花秸秆 漆酶基因Lacc1在棉花秸秆中的过表达株
OE L1-1和OE L1-4对木质素的降解率分别为
(51.89±0.94)%和(51.10±0.31)%
[52]
硬毛粗盖孔菌Mafic-2001
Coriolopsis trogii strain Mafic-2001
Lac1 农作物秸秆 对水稻秸秆、玉米秸秆和棕榈仁饼的木质素
降解率分别为50.2%、55.5%和24.4%
[53]
未知
Unkown
商业漆酶 玉米秸秆 在pH为5.0、30 ℃下作用24 h, Lac对木质素的降解率
为11.73%;当三酶(漆酶、过氧化物酶、锰过氧化
物酶)复合降解玉米秸秆木质素时,降解率为25.79%
[54]
未知
Unkown
食品级漆酶 玉米秸秆 在pH为5.0、温度为55 ℃下作用12 h,漆酶添加量为
0.3%时,木质素降解率最高,达到了26.08%
[55]

3.2 在降解饲料中的有毒有害成分方面的应用

漆酶能够作用于饲料中诸如黄曲霉毒素等常见且危害严重的霉菌毒素,通过催化氧化反应,将其转化为低毒或无毒的代谢产物,进而有效降低有毒有害成分对动物机体的损伤风险,保障动物健康生长。Lou等[56]研究表明,食用菌如灵芝所分泌的高活性漆酶可有效降解玉米中的黄曲霉毒素B1(AFB1),降解率达92.91%,进而提高玉米的营养品质。Wang等[57]研究表明,来自枯草芽孢杆菌(Bacillus subtilis)的漆酶Bs CotA可降解AFB1和玉米赤霉烯酮(ZEN),转化过程中添加自由基介体丁香酸甲酯可显著提高Bs CotA的降解效率。Sun等[58]研究表明,来源于地衣芽孢杆菌(Bacillus licheniformis)的漆酶CotA能够同时高效降解ZEN、AFB1和交链孢酚(alternariol)3种真菌毒素,其最佳反应条件为pH 9.0和温度80 ℃。张亨[59]的选取了真菌漆酶CcLac9降解棉酚,CcLac9降解棉酚的最适pH为7.0,且1.0 U/mL CcLac9能将10 μg/mL的棉酚在2 h内完全降解;通过质谱分析发现,CcLac9能够将棉酚分子中的醛基、羟基消除并实现了开环降解,从而消除了棉酚分子上的活性基团,使棉酚的毒性减弱,进而达到降解效果。Zhang等[60]研究表明,添加漆酶CotA可在2 h内实现脱脂棉籽粕中87%~98%的游离棉酚降解;此外,CotA在37 ℃和pH 7.0与不添加氧化还原介质的条件下,1 h内实现了100%的游离棉酚降解,这表明CotA可作为脱脂棉籽粕中游离棉酚解毒的有效生物催化剂。漆酶在降解饲料中有毒有害成分方面的应用见表3。综上所述,漆酶作为一种饲料添加剂显著改善了霉菌毒素对饲料带来的不良影响,为畜禽消化道健康奠定了良好的基础。
表3 漆酶在降解饲料中有毒有害成分方面的应用

Table 3 Application of laccase in degradation of toxic and harmful components in feeds

漆酶名称
Laccase names
有毒有害成分
Injurious ingredients
降解条件与效果
Degradation conditions and effects
参考文献
References
真菌漆酶CcLac9
Fungal laccase CcLac9
棉酚 CcLac9降解棉酚的最适pH为7.0,且1.0 U/mL CcLac9
能将10 μg/mL的棉酚在2 h内完全降解
[59]
重组漆酶fmb-rL103
Recombinant laccase fmb-rL103
黄曲霉霉毒B1(AFB1) 在pH 7.0和37 ℃条件下,AFB1降解率超过60% [61]
酿酒酵母重组漆酶Lac3
Saccharomyces cerevisiae
recombinant laccase Lac3
AFB1、黄曲霉霉毒B2(AFB2)、
黄曲霉霉毒G1(AFG1)、
黄曲霉霉毒G2(AFG2)
在pH 5.7和30 ℃条件下,AFB1、AFG1和AFG2在48 h后
达到最大降解率90.33%、85.24%和87.58%,AFB2
60 h后达到最大降解率74.23%
[62]
白腐真菌Cerrena unicolor6884漆酶Lac2
White rot fungus Cerrena unicolor6884
laccase Lac2
AFB1 在45 ℃和pH 7.0条件下,Lac2在24 h内能降解92.5%的
AFB1,36 h后AFB1几乎完全降解
[63]
细菌漆酶(CotA、CueO和LcLac)
Bacterial laccases (CotA, CueO
and LcLac)
游离棉酚(FG) 在37 ℃和pH 7.0条件下,CotA 1 h内无需添加氧化还原介体
即可实现100%的FG降解;在没有氧化还原介体的情况下,
FG降解率为23%。当添加1 mmol/L的天然类氧化还原介体乙酰
愈创木酚(AS)时,CueO可以将FG降解率提升至65%;在没有
氧化还原介体的情况下,LcLac对FG的降解率为10%
[60]
重组漆酶Ery4
Recombinant laccase Ery4
AFB1 在pH 5和25 ℃条件下,在缓冲液中,AFB1(0.1 μg/mL)在1 h内
被Ery4完全降解;在玉米样品中,Ery4可减少26%的AFB1
[64]
来源于肺形侧耳和米曲霉的
2种漆酶PpLac1和AoLac2
Two laccases PpLac1 and AoLac2 from
Pleurotus pulmonarius and Aspergillus oryzae
AFB1、玉米赤霉烯酮(ZEN) PpLac1在40 ℃和pH 2.0条件下对AFB1的降解率达到了
78.51%,对ZEN的降解率达到了78.90%;AoLac2在50 ℃和
pH 3.0条件下对AFB1的降解率达到72.27%,
对ZEN的降解率达到80.60%
[65]

3.3 在提高动物生长性能方面的应用

在动物饲粮中添加漆酶可以提高动物的生长性能。Yue等[66]研究表明,玉米青贮饲料的营养物质表观消化率和中性洗涤纤维降解性随着漆酶添加量(0、0.2、0.4和0.6 g/kg DM)的增加而升高,荷斯坦公牛饲粮中添加漆酶增加了总挥发性脂肪酸(TVFA)浓度,并改变了发酵模式,使丙酸盐产量更高,从而有效保存饲料,防止霉变;漆酶的添加对公牛的干物质摄入量没有显著影响,但提高了平均日增重和饲料转化率。添加漆酶的这些有益作用主要归因于瘤胃TVFA浓度和营养物质消化率的升高;漆酶作为饲料添加剂可提高反刍动物饲料中纤维的消化率和瘤胃微生物丰度,观察到的漆酶最佳添加量为0.4 g/kg DM。
何金川等[67]研究表明,在安格斯公牛饲粮中添加包被漆酶(CL)能够显著提高试验组公牛的平均日增重、降低料重比;并且,随包被漆酶添加量(0、0.2、0.4、0.6 g/kg DM)的增加,干物质、有机物、粗蛋白质、中性洗涤纤维和酸性洗涤纤维表观消化率线性提高,瘤胃TVFA浓度、乙酸/丙酸和氨态氮浓度线性增加;总体来说,饲粮添加包被漆酶改善了公牛的生长性能、养分消化和瘤胃发酵,包被漆酶的最佳添加量为0.4 g/kg DM。李军[55]在试验组绵羊全混合日粮(TMR)中添加0.3%的漆酶,结果表明,试验组相比对照组采食量降低、日增重上升及料重比降低,说明试验组饲料转化率较高。岳子奇[68]研究表明,在荷斯坦公牛饲粮添加漆酶提高了精饲料粗蛋白质和玉米秸秆中性洗涤纤维的瘤胃降解率及养分表观消化率,机体氮沉积的增加和氮平衡的改善,进而显著提高了平均日增重,漆酶的最适添加量为0.4 mg/kg DM。Khan等[50]研究表明,将由佛罗里达侧耳(Pleurotus florida)与漆酶联合复配处理的小麦秸秆作为粗饲料提供给水牛,结果显示,TMR4(60%小麦秸秆)组的水牛末重和平均日增重均最高;随着小麦秸秆比例的增加,水牛的料重比显著降低,尤其是TMR4组的料重比最低。Fan等[69]研究表明,用凤尾菇(Pleurotus sajorcaju,FRS)与漆酶联合复配发酵稻草作为奶山羊的粗饲料,使用FRS与漆酶联合复配发酵稻草可使饲粮中干物质、粗蛋白质、中性洗涤纤维和酸性洗涤纤维在瘤胃中的有效降解性显著提高;此外,饲喂FRS与漆酶联合复配发酵稻草亦可以提高奶山羊的采食量和产奶量,而不影响奶山羊的健康。Xiang等[70]研究表明,用白腐真菌和漆酶联合复配预处理玉米秸秆能够减少羔羊的胃消化道线虫(gastrointestinal nematodes,GINs)感染,改善羊肉色泽和嫩度,肉质的改善归因于白腐真菌和漆酶联合复配预处理玉米秸秆为羔羊提供了额外的蛋白质,并分泌了一些抗线虫代谢产物以驱除GIN,从而提高了羔羊的血细胞压积(PCV)和血浆铁含量,最终消除了GIN对肉质的负面影响。Chen等[71]从凡纳对虾(Litopenaeus vannamei)中克隆出了1种新型漆酶基因LvLac2,LvLac2参与了对虾对病原体如白斑综合症病毒(WSSV)和弧菌属(Vibrio alginolyticus)感染的免疫反应;通过实时荧光定量PCR分析发现,这些病原体感染能够诱导LvLac2的表达;此外,LvLac2还参与了对虾对氧化应激的响应,LvLac2的表达能够被氧化应激诱导,并且降低LvLac2的表达对虾在经历氧化应激时出现累积死亡率增加以及肝胰腺损伤;LvLac2的表达受到核因子E2相关因子2(Nrf2)的调控,Nrf2是维持细胞氧化还原平衡的关键转录因子;上述结果表明,LvLac2可能是对虾氧化应激响应系统的一部分,通过参与调节细胞内的氧化还原状态,帮助对虾维持健康。Lin等[72]将硫磺菌(Laetiporus sulphureus)固态发酵的麦麸(LS)作为饲料添加剂,在发酵过程中产生漆酶分解麦麸中的抗营养因子如非淀粉多糖(NSP),饲料添加剂LS显著提高了肉鸡血清和回肠中免疫球蛋白A(IgA)的浓度,有助于保护肠道免受病原体侵害;同时,饲料添加剂LS降低了血清中促炎细胞因子[如肿瘤坏死因子-α(TNF-α)和白细胞介素-6(IL-6)]的浓度;这表明饲料添加剂LS具有抗炎作用,漆酶可能通过减少肠道炎症帮助维持肠道健康,从而间接促进肉鸡的生长。Sufyan等[73]系统地研究了在固态发酵条件下对小麦秸秆进行30 d的真菌(Pleurotus ostreatus)预处理,在此过程中产生的漆酶降解了33.3%的木质素,并同时增加了46.3%的粗蛋白质含量,从而改善其作为动物饲料的营养价值;漆酶作用于木质素,可以提高木质纤维素生物质在瘤胃中的发酵特性,增加体外干物质消化率(IVDMD)、总气体产量和挥发性脂肪酸产量,同时降低pH和甲烷的产生量;在泌乳奶牛TMR中使用Pleurotus ostreatus处理过的小麦秸秆替代32%的未处理小麦秸秆,增加了干物质采食量、表观全肠道干物质消化率和产奶量。

3.4 在生物降解方面的应用

漆酶作为一种绿色催化剂,在分子氧并且没有任何额外辅因子的条件下催化各种底物的氧化,并释放出副产物水,这一优势使其在养殖领域中的生物降解方面发挥了举足轻重的作用,为有害污染物降解为低毒或无毒化合物提供了一种环保的解决方案[74]。大球盖菇来源的真菌漆酶SrLacB对四环素类(TE)、磺胺类(SAs)和喹诺酮类抗生素均有降解效果,可用于环境中抗生素的去除,减少抗生素抗药基因的产生和传播,还能够用于制备降解四环素的酶膜反应器[75]。Zhang等[76]通过将枯草芽孢杆菌产生的漆酶固定在铜-均苯三甲酸(Cu-BTC)框架中,评估了其对氨苄青霉素(AM)和TE等抗生素的降解效果;在酶处理中没有化学介质,2种抗生素的降解效率都接近100%。Li等[77]研究表明,通过细胞表面展示技术将可降解SAs的漆酶基因锚定在益生菌上,形成全细胞生物催化剂,可以有效地降低鸡粪中的抗生素残留。Tian等[36]利用真菌Pycnoporus sp.产生的漆酶,在ABTS和铝离子(Al3+)、Cu2+、铁离子(Fe3+)离子存在的条件下,评估了其对氧四环素(OXT)的降解效果;结果表明,OXT在处理后被100%降解,抗微生物活性降低。Lou等[78]在水产养殖废水中通过漆酶-丁香醛介导系统降解SAs的研究中确定了最佳降解参数为温度30 ℃、pH 5.32、漆酶浓度0.5 mL/L、丁香醛浓度0.15 mmol/L;在最佳降解参数条件下,预期的磺胺嘧啶(SD)降解率为91.07%,实际降解率为94.84%。综上所述,通过漆酶对各种抗生素进行降解,有助于养殖环境的恢复与资源再利用,进而推动整个畜牧行业的可持续发展。

4 小结与展望

综上所述,漆酶在畜牧生产中具有广阔的应用前景,其能够降解饲料中的粗纤维和抗营养因子,提高动物对饲料中营养物质的消化率和吸收率;同时,漆酶在饲料改良和改善动物健康等方面的应用潜力将为畜牧生产带来更多益处;此外,漆酶在生物降解等方面也发挥了“绿色催化剂”的独到作用。但是,在实际应用仍面临一些挑战:1)漆酶的生产成本较高,限制了其大规模应用;2)漆酶的稳定性和活性在不同饲料和环境条件下可能会受到影响,需要进一步优化和改进;3)漆酶在畜牧生产中的长期效果和安全性还需要更多的研究验证。随着生物技术的发展和漆酶生产工艺的改进,漆酶在畜牧生产中的应用将不断拓展和深化,为实现绿色养殖和可持续发展提供重要支撑。
[1]
CHAUHAN P S, GORADIA B, SAXENA A. Bacterial laccase:recent update on production,properties and industrial applications[J]. 3 Biotech, 2017, 7(5):323.

[2]
GIVAUDAN A, EFFOSSE A, FAURE D, et al. Polyphenol oxidase in Azospirillum lipoferum isolated from rice rhizosphere:evidence for laccase activity in non-motile strains of Azospirillum lipoferum[J]. Fems Microbiology Letters, 1993, 108(2):205-210.

[3]
FAURE D, BOUILLANT M L, JACOUD C, et al. Phenolic derivatives related to lignin metabolism as substrates for Azospirillum laccase activity[J]. Phytochemistry, 1996, 42(2):357-359.

[4]
ALEXANDRE G, BALLY R, TAYLOR B L, et al. Loss of cytochrome c oxidase activity and acquisition of resistance to quinone analogs in a laccase-positive variant of Azospirillum lipoferum[J]. Journal of Bacteriology, 1999, 181(21):6730-6738.

[5]
VAN KUIJK S J A, DEL RÍO J C, RENCORET J, et al. Selective ligninolysis of wheat straw and wood chips by the white-rot fungus Lentinula edodes and its influence on in vitro rumen degradability[J]. Journal of Animal Science and Biotechnology, 2016, 7(1):55.

[6]
DA SILVA COELHO-MOREIRA J, BRUGNARI T, SÁ-NAKANISHI A B, et al. Evaluation of diuron tolerance and biotransformation by the white-rot fungus Ganoderma lucidum[J]. Fungal Biology, 2018, 122(6):471-478.

[7]
徐鑫, 张国庆, 胡渤洋, 等. 真菌漆酶及其介体系统:来源、机理与应用[J]. 生物技术进展, 2020, 10(1):30-39.

DOI

XU X, ZHANG G Q, HU B Y, et al. Fungal laccases and their mediator systems:sources,mechanisms and applications[J]. Current Biotechnology, 2020, 10(1):30-39. (in Chinese)

[8]
JANUSZ G, PAWLIK A, & #x015A; WIDERSKA-BUREK U, et al. Laccase properties,physiological functions,and evolution[J]. International Journal of Molecular Sciences, 2020, 21(3):966.

[9]
ANDERSEN S O. Insect cuticular sclerotization:a review[J]. Insect Biochemistry and Molecular Biology, 2010, 40(3):166-178.

[10]
DITTMER N T, SUDERMAN R J, JIANG H B, et al. Characterization of cDNAs encoding putative laccase-like multicopper oxidases and developmental expression in the tobacco hornworm,Manduca sexta,and the malaria mosquito,Anopheles gambiae[J].Insect Biochemistry and Molecular Biology, 2004, 34(1):29-41.

[11]
HATTORI M, TSUCHIHARA K, NODA H, et al. Molecular characterization and expression of laccase genes in the salivary glands of the green rice leafhopper,Nephotettix cincticeps (Hemiptera:Cicadellidae)[J]. Insect Biochemistry and Molecular Biology, 2010, 40(4):331-338.

[12]
ARAKANE Y, MUTHUKRISHNAN S, BEEMAN R W, et al. Laccase 2 is the phenoloxidase gene required for beetle cuticle tanning[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(32):11337-11342.

DOI PMID

[13]
SHRADDHA, SHEKHER R, SEHGAL S, et al. Laccase:microbial sources, production, purification,and potential biotechnological applications[J]. Enzyme Research, 2011,2011:217861.

[14]
司徒成. 常见食用菌对木质纤维素降解及酶学特性分析[D]. 硕士学位论文. 贵阳: 贵州师范大学, 2022.

SITU C. Analysis on degradation and enzymatic properties of lignocellulose by common edible fungi[D]. Master's Thesis. Guiyang: Guizhou Normal University, 2022. (in Chinese)

[15]
SATO Y, WULI B, SEDEROFF R, et al. Molecular cloning and expression of eight laccase cDNAs in loblolly pine (Pinus taeda)[J]. Journal of Plant Research, 2001, 114(2):147-155.

[16]
HOEGGER P J, KILARU S, JAMES T Y, et al. Phylogenetic comparison and classification of laccase and related multicopper oxidase protein sequences[J]. The FEBS Journal, 2006, 273(10):2308-2326.

[17]
RANOCHA P, MCDOUGALL G, HAWKINS S, et al. Biochemical characterization,molecular cloning and expression of laccases—a divergent gene family—in poplar[J]. European Journal of Biochemistry, 1999, 259(1/2):485-495.

[18]
REINHAMMAR B. Laccase[M]// Copper proteins and copper enzymes.[S.l.]: CRC Press, 2018.

[19]
HAKULINEN N, ROUVINEN J. Three-dimensional structures of laccases[J]. Cellular and Molecular Life Sciences, 2015, 72(5):857-868.

DOI PMID

[20]
LUO Q, CHEN Y, XIA J, et al. Functional expression enhancement of Bacillus pumilus CotA-laccase mutant WLF through site-directed mutagenesis[J]. Enzyme and Microbial Technology, 2018,109:11-19.

[21]
LEONTIEVSKY A, MYASOEDOVA N, POZDNYAKOVA N, et al. 'Yellow' laccase of Panus tigrinus oxidizes non-phenolic substrates without electron-transfer mediators[J]. FEBS Letters, 1997, 413(3):446-448.

[22]
PIONTEK K, ANTORINI M, CHOINOWSKI T. Crystal structure of a laccase from the fungus Trametes versicolor at 1.90-Å resolution containing a full complement of coppers[J]. Journal of Biological Chemistry, 2002, 277(40):37663-37669.

[23]
UNUOFIN J O, OKOH A I, NWODO U U. Aptitude of oxidative enzymes for treatment of wastewater pollutants:a laccase perspective[J]. Molecules, 2019, 24(11):2064.

[24]
YANG Y, ZENG H, ZHANG Q, et al. Direct electron transfer and sensing performance for catechin of nano-gold particles-polymer nano-composite with immobilized laccase[J]. Chemical Physics Letters, 2016,658:259-269.

[25]
BATTISTA E, LETTERA V, VILLANI M, et al. Enzymatic sensing with laccase-functionalized textile organic biosensors[J]. Organic Electronics, 2017,40:51-57.

[26]
LONGE L F, COUVREUR J, LERICHE GRANDCHAMP M, et al. Importance of mediators for lignin degradation by fungal laccase[J]. ACS Sustainable Chemistry & Engineering, 2018, 6(8):10097-10107.

[27]
JAYAKUMAR J, PRIYADARSHINI D, PARTHASARATHY A, et al. Recent advances in molecular oxygen assisted laccase catalyzed sustainable organic transformations[J]. Asian Journal of Organic Chemistry, 2023, 12(1):30-56.

[28]
KUDANGA T, BURTON S, NYANHONGO G S, et al. Versatility of oxidoreductases in the remediation of environmental pollutants[J]. Frontiers in Bioscience (Elite Edition), 2012, 4(3):1127-1149.

DOI PMID

[29]
谷晓丹. 漆酶Lac-W广谱高效降解饲料中六种主要霉菌毒素的研究[D]. 硕士学位论文. 郑州: 河南农业大学, 2023.

GU X D. Broad-spectrum and efficient degradation of six major mycotoxins in feed by laccase Lac-W[D]. Master's Thesis. Zhengzhou: Henan Agricultural University, 2023. (in Chinese)

[30]
LOI M, GLAZUNOVA O, FEDOROVA T, et al. Fungal laccases:the forefront of enzymes for sustainability[J]. Journal of Fungi, 2021, 7(12):1048.

[31]
BALDRIAN P. Fungal laccases-occurrence and properties[J]. FEMS Microbiology Reviews, 2006, 30(2):215-242.

[32]
YANG X R, GU C G, LIN Y. A novel fungal laccase from Sordaria macrospora k-hell:expression,characterization,and application for lignin degradation[J]. Bioprocess and Biosystems Engineering, 2020, 43(7):1133-1139.

[33]
SUN Y, LIU Z L, HU B Y, et al. Purification and characterization of a thermo- and pH-stable laccase from the litter-decomposing fungus Gymnopus luxurians and laccase mediator systems for dye decolorization[J]. Frontiers in Microbiology, 2021,12:672620.

[34]
YANG X L, WU Y Y, ZHANG Y, et al. A Thermo-Active laccase isoenzyme from Trametes trogii and its potential for dye decolorization at high temperature[J]. Frontiers in Microbiology, 2020,11:241.

[35]
YAO Y H, ZHOU G M, LIN Y H, et al. A highly thermotolerant laccase produced by Cerrena unicolor strain CGMCC 5.1011 for complete and stable malachite green decolorization[J]. AMB Express, 2020, 10(1):178.

[36]
TIAN Q P, DOU X, HUANG L, et al. Characterization of a robust cold-adapted and thermostable laccase from Pycnoporus sp.SYBC-L10 with a strong ability for the degradation of tetracycline and oxytetracycline by laccase-mediated oxidation[J]. Journal of Hazardous Materials, 2020,382:121084.

[37]
OLMEDA I, CASINO P, COLLINS R E, et al. Structural analysis and biochemical properties of laccase enzymes from two Pediococcus species[J]. Microbial Biotechnology, 2021, 14(3):1026-1043.

[38]
CORIA-ORIUNDO L L, BATTAGLINI F, WIRTH S A. Efficient decolorization of recalcitrant dyes at neutral/alkaline pH by a new bacterial laccase-mediator system[J]. Ecotoxicology and Environmental Safety, 2021,217:112237.

[39]
SHARMA N, LEUNG I K H. Novel thermophilic bacterial laccase for the degradation of aromatic organic pollutants[J]. Frontiers in Chemistry, 2021,9:711345.

[40]
BRAUNSCHMID V, BINDER K, FUERST S, et al. Comparison of a fungal and a bacterial laccase for lignosulfonate polymerization[J]. Process Biochemistry, 2021,109:207-213.

[41]
WANG J J, CHANG F, TANG X Q, et al. Bacterial laccase of Anoxybacillus ayderensis SK3-4 from hot springs showing potential for industrial dye decolorization[J]. Annals of Microbiology, 2020,70:51.

[42]
SHARMA V, UPADHYAY L S B, VASANTH D. Extracellular thermostable laccase-like enzymes from Bacillus licheniformis strains:production,purification and characterization[J]. Applied Biochemistry and Microbiology, 2020, 56(4):420-432.

[43]
李敬雯. 短小芽孢杆菌漆酶功能特性分析及其应用研究[D]. 硕士学位论文. 天津: 天津科技大学, 2022.

LI J W. Analysis of functions and properties of laccase from Bacillus pumilus and study on its application[D]. Master's Thesis.Tianjin: Tianjin University of Science and Technology, 2022. (in Chinese)

[44]
苏玉春, 向应欣, 汪珈羽, 等. 响应面优化毛头鬼伞产漆酶培养条件及酶学特性[J/OL]. 吉林农业大学学报, 2014:1-11(2024-07-20)[2024-10-01]. https://doi.org/10.13327/j.jjlau.2024.0023.

SU Y C, XIANG Y X, WANG J Y, et al. Optimization of culture conditions for laccase-producing from coprinus comatus by response surface methodology[J/OL]. Journal of Jilin Agricultural University, 2014:1-11(2024-07-20)[2024-10-01]. https://doi.org/10.13327/j.jjlau.2024.0023. in Chinese)

[45]
魏婷柳, 苗华彪, 吴倩, 等. 漆酶BmLac的异源表达、酶学特性及棉酚降解的研究[J]. 生物技术通报, 2023, 39(12):320-328.

DOI

WEI T L, MIAO H B, WU Q, et al. Heterologous expression, enzymatic characterization of laccase BmLac and degradation of gossypol by it[J]. Biotechnology Bulletin, 2023, 39(12):320-328. (in Chinese)

[46]
杨秉乾, 恽辰珂, 常思源, 等. 丹参药渣木质素降解菌的分离及酶学特性[J]. 生物技术通报, 2024, 40(11):269-276.

DOI

YANG B Q, YUN C K, CHANG S Y, et al. Isolation and enzymatic characterization of fungus degrading Salvia miltiorrhiza residue lignin[J]. Biotechnology Bulletin, 2024, 40(11):269-276. (in Chinese)

[47]
KUMAR V P, SRIDHAR M, RAO R G. Biological depolymerization of lignin using laccase harvested from the autochthonous fungus Schizophyllum commune employing various production methods and its efficacy in augmenting in vitro digestibility in ruminants[J]. Scientific Reports, 2022, 12(1):11170.

[48]
LIU C J, ZHANG W J, QU M R, et al. Heterologous expression of laccase from Lentinula edodes in Pichia pastoris and its application in degrading rape straw[J]. Frontiers in Microbiology, 2020,11:1086.

[49]
ZHANG W R, WANG W W, WANG J H, et al. Isolation and characterization of a novel laccase for lignin degradation,LacZ1[J]. Applied and Environmental Microbiology, 2021, 87(23):e0135521.

[50]
KHAN S I, SAHINKAYA M, COLAK D N, et al. Production and characterization of novel thermostable CotA-laccase from Bacillus altitudinis SL7 and its application for lignin degradation[J]. Enzyme and Microbial Technology, 2024,172:110329.

[51]
SONG Q, DENG X, SONG R Q. Expression of Pleurotus ostreatus laccase gene in Pichia pastoris and its degradation of corn stover lignin[J]. Microorganisms, 2020, 8(4):601.

[52]
LI G Q, WANG Y H, ZHU P L, et al. Functional characterization of laccase isozyme (PoLcc1) from the edible mushroom Pleurotus ostreatus involved in lignin degradation in cotton straw[J]. International Journal of Molecular Sciences, 2022, 23(21):13545.

[53]
BAO C L, LIU Y J, LI F Y, et al. Expression and characterization of laccase Lac1 from Coriolopsis trogii strain mafic-2001 in Pichia pastoris and its degradation of lignin[J]. Applied Biochemistry and Biotechnology, 2023, 195(10):6150-6167.

[54]
董子剑. 玉米秸秆木质素酶解机理及同步糖化产乙醇研究[D]. 硕士学位论文. 长春: 吉林农业大学, 2023.

DONG Z J. Study on enzymatic mechanism of corn stover lignin and simultaneous saccharification for ethanol production[D]. Master's Thesis. Changchun: Jilin Agricultural University, 2023. (in Chinese)

[55]
李军. 添加漆酶对玉米秸秆营养价值的影响[D]. 硕士学位论文. 长春: 吉林农业大学, 2018.

LI J. Effects of supplied laccase on the nutrition levels of corn stalk[D]. Master's Thesis. Changchun: Jilin Agricultural University, 2018. (in Chinese)

[56]
LOU H W, YANG C M, GONG Y, et al. Edible fungi efficiently degrade aflatoxin B1 in cereals and improve their nutritional composition by solid-state fermentation[J]. Journal of Hazardous Materials, 2023,451:131139.

[57]
WANG X L, BAI Y G, HUANG H Q, et al. Degradation of aflatoxin B1 and zearalenone by bacterial and fungal laccases in presence of structurally defined chemicals and complex natural mediators[J]. Toxins, 2019, 11(10):609.

[58]
SUN F, YU D Z, ZHOU H Y, et al. CotA laccase from Bacillus licheniformis ZOM-1 effectively degrades zearalenone,aflatoxin B1 and alternariol[J]. Food Control, 2023,145:109472.

[59]
张亨. 饲料杂粕抗营养因子降解酶挖掘及分子改良[D]. 博士学位论文. 北京: 中国农业科学院, 2022.

ZHANG H. Gene excavation and molecular engineering of enzyme to the removal of anti-nutrients from mixed meals[D]. Ph.D.Thesis. Beijing: The Chinese Academy of Agricultural Sciences, 2022. (in Chinese)

[60]
ZHANG L Y, ZHENG H, ZHANG X K, et al. Effective degradation of free gossypol in defatted cottonseed meal by bacterial laccases:performance and toxicity analysis[J]. Foods, 2024, 13(4):566.

[61]
BIAN L Y, ZHENG M X, CHANG T T, et al. Degradation of aflatoxin B1 by recombinant laccase extracellular produced from Escherichia coli[J]. Ecotoxicology and Environmental Safety, 2022,244:114062.

[62]
LIU Y L, MAO H J, HU C Q, et al. Molecular docking studies and in vitro degradation of four aflatoxins (AFB1,AFB2,AFG1,and AFG2) by a recombinant laccase from Saccharomyces cerevisiae[J]. Journal of Food Science, 2020, 85(4):1353-1360.

[63]
ZHOU Z M, LI R K, NG T B, et al. A new laccase of Lac2 from the white rot fungus Cerrena unicolor 6884 and Lac2-mediated degradation of aflatoxin B1[J]. Toxins, 2020, 12(8):476.

[64]
LOI M, DE LEONARDIS S, CIASCA B, et al. Aflatoxin B1 degradation by Ery4 laccase:from in vitro to contaminated corn[J]. Toxins, 2023, 15(5):310.

[65]
SUN Z, YOU Y X, XU H D, et al. Food-grade expression of two laccases in Pichia pastoris and study on their enzymatic degradation characteristics for mycotoxins[J]. Journal of Agricultural and Food Chemistry, 2024, 72(16):9365-9375.

[66]
YUE Z Q, XU Y Z, WANG C, et al. Effects of dietary laccase supplementation on growth performance,nutrient digestion,rumen fermentation and microbiota in dairy bulls[J]. Animal Feed Science and Technology, 2020,269:114645.

[67]
何金川, 成采遥, 刘强, 等. 包被漆酶对公牛生长性能和瘤胃发酵的影响[J]. 饲料工业, 2023, 44(3):81-85.

HE J C, CHENG C Y, LIU Q, et al. Effects of coated laccase on growth performance and rumen fermentation in bulls[J]. Feed Industry, 2023, 44(3):81-85. (in Chinese)

[68]
岳子奇. 木质纤维素复合酶对荷斯坦公牛瘤胃发酵和消化代谢的影响[D]. 硕士毕业论文. 晋中: 山西农业大学, 2021.

YUE Z Q. Effects of lignocellulolytic enzymes on rumen fermentation and nutrient digestibility in Holstein bulls[D]. Master's Thesis. Jinzhong: Shanxi Agricultural University, 2021. (in Chinese)

[69]
FAN G J, CHEN M H, LEE C F, et al. Effects of rice straw fermented with spent Pleurotus sajorcaju mushroom substrates on milking performance in Alpine dairy goats[J]. Animal Bioscience, 2022, 35(7):999-1009.

[70]
XIANG H, ZHAO X L, FANG Y, et al. Feeding fungal-pretreated corn straw improves health and meat quality of lambs infected with gastrointestinal nematodes[J]. Animals, 2020, 10(9):1659.

[71]
CHEN Y H, SONG F, MIAO Y T, et al. A novel laccase gene from Litopenaeus vannamei is involved in the immune responses to pathogen infection and oxidative stress[J]. Developmental & Comparative Immunology, 2020,105:103582.

[72]
LIN W C, LEE T T. Laetiporus sulphureus-fermented wheat bran enhanced the broiler growth performance by improving the intestinal microflora and inflammation status[J]. Poultry Science, 2020, 99(7):3606-3616.

DOI PMID

[73]
SUFYAN A, KHAN N A, AKBAR A, et al. Scaling-up fungal pretreatment of lignocellulose biomass:impact on nutritional value,ruminal degradability,methane production,and performance of lactating dairy cows[J]. Livestock Science, 2024,285:105499.

[74]
ZOFAIR S F F, AHMAD S, HASHMI M A, et al. Catalytic roles,immobilization and management of recalcitrant environmental pollutants by laccases:significance in sustainable green chemistry[J]. Journal of Environmental Management, 2022,309:114676.

[75]
欧阳斌斌. 漆酶-介体体系对兽药抗生素降解应用及作用机理研究[D]. 硕士毕业论文. 无锡: 江南大学, 2023.

OU YANG B B. Application and mechanism of laccase-mediator in the removal of sulfonamides and tetracyclines[D]. Master's Thesis. Wuxi: Jiangnan University, 2023. (in Chinese)

[76]
ZHANG C Y, YOU S P, ZHANG J X, et al. An effective in-situ method for laccase immobilization:excellent activity,effective antibiotic removal rate and low potential ecological risk for degradation products[J]. Bioresource Technology, 2020,308:123271.

[77]
LI R, ZHOU T Y, KHAN A, et al. Feed-additive of bioengineering strain with surface-displayed laccase degrades sulfadiazine in broiler manure and maintains intestinal flora structure[J]. Journal of Hazardous Materials, 2021,406:124440.

[78]
LOU Q, WU Y X, DING H J, et al. Degradation of sulfonamides in aquaculture wastewater by laccase-syringaldehyde mediator system:response surface optimization,degradation kinetics,and degradation pathway[J]. Journal of Hazardous Materials, 2022,432:128647.

文章导航

/