综述

哺乳动物雷帕霉素靶蛋白复合物1在肌肉生长发育中的调控作用及其机制研究进展

  • 弯梦辽 , 1, 2 ,
  • 余嘉懿 1, 3 ,
  • 陈家顺 2 ,
  • 段叶辉 , 1, 3, *
展开
  • 1 中国科学院亚热带农业生态研究所,中国科学院亚热带农业生态过程重点实验室,动物营养生理与代谢过程湖南重点实验室,畜禽养殖污染控制与废弃物利用国家工程实验室,长沙 410125
  • 2 湖南农业大学动物科学技术学院,长沙 410128
  • 3 中国科学院大学,北京 100039
* 段叶辉,副研究员,E-mail:

弯梦辽(2000—),男,河南漯河人,硕士研究生,从事猪营养与肉品质调控研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-10-24

  网络出版日期: 2025-05-14

基金资助

国家自然科学基金联合基金项目(U24A20445)

国家重点研发计划项目(2023YFD1301305)

长沙市杰出青年自然科学基金项目(kq2009020)

Advances in Regulatory Role of Mammalian Target of Rapamycin Complex 1 in Muscle Growth and Development and Its Mechanisms

  • WAN Mengliao , 1, 2 ,
  • YU Jiayi 1, 3 ,
  • CHEN Jiashun 2 ,
  • DUAN Yehui , 1, 3, *
Expand
  • 1 CAS Key Laboratory of Agro-Ecological Processes in Subtropical Region, Hunan Provincial Key Laboratory of Animal Nutritional Physiology and Metabolic Process, National Engineering Laboratory for Pollution Control and Waste Utilization in Livestock and Poultry Production, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
  • 3 University of Chinese Academy of Sciences, Beijing 100039, China
* associate professor, E-mail:

Received date: 2024-10-24

  Online published: 2025-05-14

摘要

肌肉生长发育不仅影响畜禽肉产品的产量和质量,还会影响机体的免疫力和基础代谢。肌肉的生长发育过程除了受到多种肌源性调节因子(如成肌分化抗原、肌细胞生成素等)的调控外,还受到哺乳动物雷帕霉素靶蛋白(mTOR)的调控。mTOR是细胞营养感应和生长的中心调控因子,可汇聚和整合来自于营养、生长因子、能量、环境胁迫等多种刺激细胞的信号,从而调节众多代谢和生理过程,如蛋白质翻译、线粒体功能等。mTOR有2种不同的蛋白质复合物,包括哺乳动物雷帕霉素靶蛋白复合物1(mTORC1)和哺乳动物雷帕霉素靶蛋白复合物2(mTORC2),mTORC1对雷帕霉素非常敏感,而mTORC2几乎不受雷帕霉素的影响。因此,本文综述了mTORC1对肌肉再生、蛋白质合成与降解、肌纤维类型转换、线粒体动力学、肌肉分泌因子等的作用及其调控机制,以期为营养学或药理学中对肌肉生长发育或肌萎缩的干预提供参考。

本文引用格式

弯梦辽 , 余嘉懿 , 陈家顺 , 段叶辉 . 哺乳动物雷帕霉素靶蛋白复合物1在肌肉生长发育中的调控作用及其机制研究进展[J]. 动物营养学报, 2025 , 37(5) : 2922 -2929 . DOI: 10.12418/CJAN2025.244

Abstract

Muscle growth and development not only affect the yield and quality of livestock and poultry meat products, but also impact immune system and basal metabolism. The growth and development of muscles are regulated not only by various myogenic regulatory factors (such as myogenic differentiation antigen and myogenin), but also by the mammalian target of rapamycin (mTOR). mTOR is a central regulatory factor for cellular nutrient sensing and growth, which can aggregate and integrate signals from various stimuli such as nutrition, growth factors, energy and environmental stress to regulate numerous metabolic and physiological processes, such as protein translation and mitochondrial function. mTOR has two different protein complexes, including mammalian target of rapamycin complex 1 (mTORC1), which is very sensitive to rapamycin, and mammalian target of rapamycin complex 2 (mTORC2), which is almost unaffected by rapamycin. Therefore, this article reviews the role and regulatory mechanisms of mTORC1 on muscle regeneration, protein synthesis and degradation, muscle fiber type conversion, mitochondrial dynamics and muscle secretion factors, in order to provide guidance for interventions in nutrition or pharmacology aimed at enhancing muscle growth and development or mitigating muscle atrophy.

哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)是机体重要的代谢调控因子,也是肌肉生长发育的关键调节因子。肌肉作为机体的重要组成部分,是机体代谢活动的主要场所,也是维持其他组织蛋白质合成的重要氨基酸储存场所,在调控机体新陈代谢方面发挥重要作用,其生长发育状况不仅影响肉产品的产量和品质,还会影响人体健康[1]。因此,促进肌肉的生长发育对畜牧业的发展和人体健康都至关重要。肌肉的生长发育依赖于蛋白质合成代谢和分解代谢之间的平衡,而mTOR可通过其下游因子,如核糖体蛋白S6激酶1(ribosomal protein S6 kinase 1,S6K1)和真核起始因子4E结合蛋白1(eukaryotic initiation factor 4E binding protein 1,4EBP1)结合mRNA来调控蛋白质合成和细胞生长速率,从而调节肌肉的生长发育[2]。mTOR有2种不同的蛋白质复合物,包括哺乳动物雷帕霉素靶蛋白复合物1(mechanistic or mammalian target of rapamycin complex 1,mTORC1)和哺乳动物雷帕霉素靶蛋白复合物2(mechanistic or mammalian target of rapamycin complex 2,mTORC2),mTORC1对雷帕霉素非常敏感,而mTORC2几乎不受雷帕霉素的影响[3-5]。基于此,本文对mTORC1在肌肉生长发育中的作用进行综述,为研究mTORC1的相关功能以及提高畜禽产肉量和改善人体健康提供参考。

1 mTOR概述

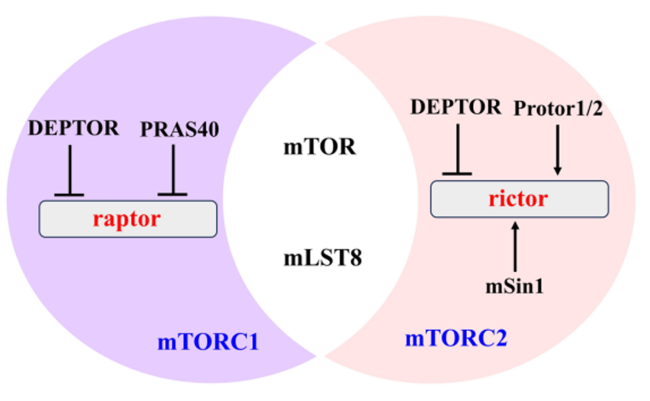
mTOR是一种存在于包括小鼠、猪和人类在内的多种物种中进化上保守的丝氨酸-苏氨酸蛋白激酶,可调节细胞生长、增殖、迁移、代谢、自噬和免疫,以维持细胞稳态。mTOR的2种蛋白质复合物都由共享和独特的蛋白质亚基组成(图1)。具体来说,mTORC1和mTORC2共享2个核心成分,即mTOR和哺乳动物致死蛋白sec-13蛋白8(mammalian lethal with sec-13 protein 8,mLST8);它们各自独特的核心亚基分别为哺乳动物雷帕霉素靶蛋白调节相关蛋白(regulatory-associated protein of mTOR,raptor)和哺乳动物雷帕霉素靶蛋白不敏感性伴随蛋白(rapamycin-insensitive companion of mTOR,rictor)。值得注意的是,raptor可被亚基包含DEP域的与哺乳类动物雷帕霉素靶蛋白相互作用的蛋白(DEP-domain containing mTOR-interacting protein,DEPTOR)和脯氨酸40 kD蛋白激酶B底物蛋白(proline protein kinase B substrate of 40 kD,PRAS40)所抑制,而rictor则含有1个抑制亚基(DEPTOR)和2个调节亚基(与rictor同时观察到的蛋白质和哺乳动物应激激活图谱激酶互作蛋白1)[3]。mTORC1是一种主要的生长调节分子,它可感受并结合不同的营养因素和环境因素,包括氨基酸、生长因子、能量水平以及细胞应激。它结合这些信号后就能将底物磷酸化以增强合成代谢(如mRNA翻译和脂质合成)或限制分解代谢(如自噬),从而促进细胞生长。与mTORC1不同,mTORC2主要受生长因子的调节,通过调节底物活性,包括蛋白激酶(protein kinase B,AKT)、血清葡糖皮质调节激酶和蛋白激酶Cα,来促进细胞存活、控制离子转运和生长以及调节细胞骨架动力学[4]
图1 mTORC1和mTORC2结构图

DEPTOR:DEP域的与哺乳类动物雷帕霉素靶蛋白相互作用的蛋白 DEP-domain containing mTOR-interacting protein;PRAS40:脯氨酸40 kD蛋白激酶B底物蛋白 proline protein kinase B substrate of 40 kD;mTOR:哺乳动物雷帕霉素靶蛋白 mechanistic or mammalian target of rapamycin;Protor1/2:与哺乳动物雷帕霉素靶蛋白不敏感性伴随蛋白同时观察到的蛋白 protein observed with rapamycin-insensitive companion of mTOR;raptor:哺乳动物雷帕霉素靶蛋白调节相关蛋白 regulatory-associated protein of mTOR;rictor:哺乳动物雷帕霉素靶蛋白不敏感性伴随蛋白 rapamycin-insensitive companion of mTOR;mLST8:哺乳动物致死蛋白sec-13蛋白8 mammalian lethal with sec-13 protein 8;mSin1:哺乳动物应激激活图谱激酶互作蛋白1 mammalian stress-activated map kinase interacting protein 1;mTORC1:哺乳动物雷帕霉素靶蛋白复合物1 mechanistic or mammalian target of rapamycin complex 1;mTORC2:哺乳动物雷帕霉素靶蛋白复合物2 mechanistic or mammalian target of rapamycin complex 2。

Fig.1 Structure diagram of mTORC1 and mTORC2

2 mTORC1对肌肉再生的调节

在肌纤维几乎完全破坏后,肌肉可以迅速再生以恢复其功能。因此,保持肌肉的再生能力对维持肌肉的生理稳态至关重要[6]。静止的骨骼肌卫星细胞被认为是固有的肌肉干细胞,位于肌纤维质膜和基底膜之间,主要有助于肌肉损伤后的骨骼肌再生[7]。小鼠试验发现,特异性敲除mTOR或raptor有效抑制了骨骼肌卫星细胞的活化、增殖和分化,从而抑制肌肉再生[8-10],与mTORC1不同,在胚胎和成人卫星细胞中敲除rictor对肌肉再生没有影响[9,11]。以上结果提示,在肌肉再生中发挥关键作用的是mTORC1而非mTORC2。为了进一步剖析mTORC1的作用机制,Zhang等[10]mTOR特异性敲除后,发现卫星细胞和成肌细胞的增殖和分化均被抑制,导致肌肉再生障碍。在mRNA和蛋白质水平上,mTOR特异性敲除后,成肌细胞表达的关键肌源性决定基因如盒转录家族成员7、生肌因子5、成肌分化抗原和肌细胞生成素等水平低于野生型成肌细胞。以上研究结果提示,mTOR对卫星细胞功能和肌肉再生的调控机制可能与控制肌源性基因的表达有关。
mTORC1对肌肉再生的调节受到营养物质和运动的调控。例如,补充亮氨酸可促进磷脂酰肌醇3激酶(phosphatidylinositol 3-kinase,PI3K)/Akt/mTOR信号通路的激活,从而改善老年啮齿动物的肌肉再生[12-13]。与亮氨酸一样,补充赖氨酸可通过激活mTORC1信号通路促进骨骼肌卫星细胞的活化,从而促进肌肉生长[14]。除了氨基酸,矿物元素也可通过mTORC1信号通路调控肌肉再生过程。例如,在老年小鼠饲粮中补充镁元素,可显著促进肌肉再生,并保护肌肉质量和力量[15]。在运动方面,Chen等[16]研究发现,运动通过胰岛素样生长因子结合蛋白7/Akt/mTOR轴保护增殖期骨骼肌卫星细胞免受衰竭,从而改善肌肉再生能力。

3 mTORC1对肌肉蛋白质合成与降解的调节

在动物出生后,肌纤维的数量不再发生变化,后期的生长发育主要体现在肌纤维直径的增大和肌纤维类型之间的转化。肌纤维直径取决于肌肉蛋白质合成与降解之间的动态平衡[17]。蛋白质合成与降解受到多种因素的调控,包括mTOR信号通路。研究发现,成年小鼠mTORC2的缺失不会引起明显的肌肉表型变化;相反,mTORC1缺乏的肌肉表现出萎缩的迹象,并逐渐变得营养不良,提示成年动物机体肌肉生长只需要mTORC1[18]。大量研究表明,mTORC1信号通路能感应上游氨基酸、生长因子、能量和环境压力的变化,经PI3K/Akt/mTOR和抑癌基因-单磷酸腺苷激活的蛋白激酶[adenosine 5'-monophosphate(AMP)-activated protein kinase,AMPK]/mTOR信号通路作用于下游效应蛋白S6K1和4EBP1,从而调控蛋白质代谢和肌肉的生长[1]。在猪上的研究表明,饲粮中补充氨基酸可激活mTORC1信号通路,促进肌肉生长。例如,以配方奶喂养的7~14日龄新生仔猪为研究对象,Yao等[19]研究发现,饲粮中补充精氨酸可增加新生仔猪肌肉中mTOR信号活性,从而增加蛋白质合成率。以生长猪为研究对象,Duan等[20]研究发现,低蛋白质饲粮中补充适宜比例的支链氨基酸(亮氨酸∶异亮氨酸∶缬氨酸=1∶0.25∶0.25~1∶0.75∶0.75)上调了生长猪背最长肌中mTOR、S6K1和raptor的磷酸化蛋白表达丰度,促进了肌肉生长。以肥育猪为研究对象,Zhang等[21]研究发现,饲粮中补充适宜比例的支链氨基酸(亮氨酸∶异亮氨酸∶缬氨酸=2∶2∶1)可激活mTOR信号通路,上调氨基酸转运载体的表达,增加肌肉量。除了猪之外,在肉鸡和山羊上也得到了类似的结论,即发现饲粮中添加蛋氨酸激活了mTOR信号通路,增强了蛋白质的合成,促进了动物肌肉生长[22-23]。值得注意的是,在年轻小鼠机体中激活mTORC1能促进肌肉生长,但在衰老小鼠个体中mTORC1若持续激活,则会诱导氧化应激,进一步导致蛋白质降解、自噬和肌肉坏死,最终致使肌肉损伤[24]
mTOR信号通路对蛋白质降解的影响说法不一。以隔日递增腹腔注射脂多糖诱导慢性免疫应激仔猪为研究对象,Yu等[25]研究发现,脂多糖注射后第5、9和15天仔猪体重分别下降了25%、11%和20%,伴随着肌肉总重、背最长肌重量和比目鱼肌重量的下降,在分子层面,伴随着磷酸化mTOR蛋白表达丰度的下调和肌肉萎缩F-box蛋白的mRNA表达丰度上调。Tang等[26]研究发现,激活mTORC1会抑制Akt的激酶活性,导致叉头盒O转录因子的激活,并增加编码E3泛素连接酶atrogin和肌肉特异性环状指蛋白1基因的表达,从而促进去神经诱导的肌肉萎缩。

4 mTORC1对肌纤维类型转化的调节

肌纤维具有很强的可塑性,为了适应机体不同的生理状态,肌纤维的类型组成会发生改变。对动物而言,氧化型肌纤维所占比例越高,肉品质越好,糖酵解型肌纤维所占比例越高,肉品质越差;对人类而言,氧化型肌纤维所占的比例与肥胖和Ⅱ型糖尿病呈负相关,而糖酵解型肌纤维所占的比例与肥胖和Ⅱ型糖尿病呈正相关。因此,肌纤维类型转化的调节不仅影响动物肉品质,还对人类健康有重要影响[27]。肌纤维类型的转化受多种因素的调节,包括遗传、年龄、性别、营养、运动等,而潜在的调节机制与mTOR信号通路有关。Bentzinger等[18]研究发现,肌肉特异性敲除mTORC1导致其代谢特性从氧化型转变为糖酵解型。Zhou等[28]研究发现,与对照组相比,饲粮补充精氨酸显著改善了小鼠耐力运动表现,同时增加了琥珀酸脱氢酶酶活性,激活了mTOR信号通路,并上调了腓肠肌和股四头肌中氧化型相关基因如肌球重链蛋白Ⅰ(myosin heavy chain Ⅰ,MyHCⅠ)和肌球重链蛋白Ⅱa(myosin heavy chain Ⅱa,MyHCⅡa)的表达。以上结果提示,精氨酸通过激活mTOR信号通路使肌纤维类型向氧化型肌纤维转变。

5 mTORC1对肌肉线粒体动力学的调节

肌肉组织正常功能的维持高度依赖于线粒体网络。线粒体是肌肉组织代谢供能及其应答病理反应的关键细胞器,在维持肌肉组织重量和功能以及修复受损肌纤维方面发挥重要作用[29]。因此,良好的线粒体网络是维持肌细胞稳态的关键,而这与线粒体动力学密切相关。线粒体动力学受2组相反过程的调节:1)线粒体分裂与融合;2)线粒体生物发生与线粒体自噬。线粒体分裂与融合以及线粒体生物发生与线粒体自噬均可受到mTOR信号通路的调节[30-33]
在线粒体分裂方面,mTORC1可通过线粒体分裂蛋白1(mitochondrial fission process 1,MTFP1)来控制线粒体分裂和细胞状态[30]。MTFP1并不是促分裂因子,而是发挥抑制线粒体内膜融合的作用,通过抑制线粒体融合来调控线粒体内膜的质量控制并维持线粒体DNA水平[34]MTFP1的表达与动力蛋白相关蛋白1(dynamin-related protein 1,DRP1)的促裂变磷酸化和4EBP1表达水平偶联。利用活性位点抑制剂抑制mTORC1活性减少了MTFP1的翻译,导致DRP1的磷酸化和定位改变,引起线粒体高融合反应,提高了细胞存活率。在mTORC1活性被抑制的情况下,如若将MTFP1从mTORC1/4EBP1信号通路中分离出来,可以阻断线粒体高融合反应,进而导致细胞死亡[30]。此外,研究表明,线粒体分裂缺失促使Akt/mTORC1激活,从而抑制糖酵解型肌纤维形成[35]。因此,mTORC1-线粒体分裂轴可参与肌纤维类型形成的调控。
在线粒体生物发生方面,mTORC1通过4EBP1依赖性翻译调节线粒体活性和生物发生。此外,mTORC1还通过转录调节剂过氧化物酶体增殖物激活受体γ共激活剂-1α(peroxisome proliferators-activated receptor γ coactivator-lα,PGC-1α)和缺氧诱导因子-1α(hypoxia inducible factor-1α,HIF-1α)刺激线粒体呼吸和生物发生。然而,PGC-1α和HIF-1α在抑制mTOR的12 h后似乎都没有损害线粒体活性[31]。因此,mTORC1可能通过同时协调翻译和转录程序来调节线粒体相关基因的表达来驱动线粒体生物合成,mTORC1介导的线粒体生物发生是肌肉生成所必需的[36]
在线粒体自噬方面,mTORC1通过磷酸化和抑制Unc-51样激酶1(UNC-51-like kinase 1,ULK1)(即酵母中的自噬相关蛋白1,autophagy-related protein 1,Atg1),在营养物质丰富(即氨基酸和葡萄糖的存在)和生长因子丰富的环境中促进合成代谢细胞过程(如蛋白质、脂质和核苷酸等的合成)并抑制自噬。因此,氨基酸剥夺和随后的mTORC1失活通过解除mTORC1对ULK1的抑制作用诱导自噬。除氨基酸剥夺外,长时间葡萄糖剥夺或线粒体毒物引起的细胞能量水平下降通过激活AMPK(酵母中的Snf1蛋白激酶)抑制mTORC1信号转导。然而,在长时间的氨基酸剥夺过程中,AMPK抑制细胞凋亡并促进mTORC1信号的重新激活,mTORC1活性正向调控AMPK磷酸化ULK1 S555的能力,从而抑制自噬[37]。因此,该研究挑战了AMPK仅促进自噬和AMPK总是抑制mTORC1的主流观点,从而需要重新审视AMPK、mTORC1和自噬在健康和疾病中的作用。除了ULK1外,mTORC1还可通过磷酸化WD重复结构域磷酸肌醇互作蛋白2直接抑制自噬体的形成[38]。线粒体自噬对肌细胞稳态和肌肉质量维持具有重要作用。Kim等[39]研究发现,在肌肉分化过程中,线粒体活性氧能够刺激PI3K/Akt/mTOR级联信号通路,激活的mTORC1随后会通过对自噬启动因子ULK1的317位丝氨酸进行磷酸化诱导自噬信号途径,并且可以上调参与自噬过程的多个Atg蛋白表达促进肌肉分化。

6 mTORC1对肌肉分泌因子合成与分泌的调节

分泌因子介导的细胞间对话在组织稳态和代谢平衡的精细调节中发挥关键作用。肌肉组织作为人体最大的运动和代谢器官,也具有分泌功能,通过合成和分泌肌因子,在机体代谢稳态调控中发挥重要作用[40]。研究表明,在衰老、萎缩的肌纤维中,mTORC1活性会增加,进而导致肌肉萎缩[41]。mTORC1诱导肌肉萎缩的机制可能与肌肉分泌肌因子有关。据报道,病理条件下mTORC1的持续激活会诱导线粒体应激和肌肉分泌肌因子,如成纤维细胞生长因子21(fibroblast growth factor 21,FGF21)和生长分化因子15(growth differentiation factor 15,GDF15)的分泌,而血液和肌肉中高水平的FGF21和GDF15表达会导致氧化应激,最终导致肌肉损伤[24,42]

7 小结

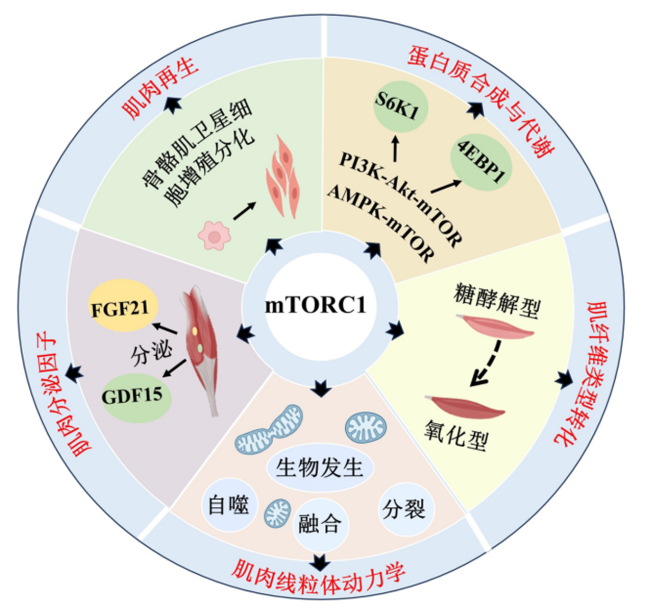
综上所述,mTORC1能调控肌肉再生、蛋白质合成与降解、肌纤维类型转化、线粒体动力学和肌肉分泌因子的合成与分泌等(图2),进而调节肌细胞的生理活动过程,在肌肉生长发育过程中发挥不可小觑的功能。虽然与肌肉生长发育相关的mTOR研究已经在逐步开展,并取得了可喜的进展,但研究大多是基于人、小鼠或肌细胞模型,在畜禽生产中的研究还不够深入和透彻。如在肌肉再生方面,mTOR在畜禽上的研究还较少,畜禽在病理状态下的肌肉损伤修复与mTOR如何关联,以及营养素如何调控mTOR以促进肌肉修复,还需进一步研究;在蛋白质合成方面,虽已认识到老年动物机体中mTORC1若持续激活会致使肌肉损伤,但畜禽在肥育阶段,mTORC1持续激活如何影响肌肉生长发育和瘦肉率的研究还比较匮乏;在肌纤维类型转化方面,在畜牧生产领域,目前尚无mTOR与肌纤维类型转化的关联性研究报道;在线粒体动力学方面,在畜禽饲粮氨基酸不平衡的状况下,营养素、AMPK信号、mTOR信号、自噬以及肌肉生长发育如何关联的研究还亟待丰富;在肌肉分泌肌因子的合成与分泌方面,在畜禽正常生理与病理状态下,mTOR分别如何调控肌肉分泌肌因子的合成与分泌进而调控肌肉生长发育的研究,还尚未有报道。因此,今后mTOR在畜禽肌肉生长发育方面的研究可朝着以上生物学功能及其发挥功能的分子机制方向继续前进,相信在不久的将来,mTOR在调控畜禽肌肉生长发育方面的研究将会取得突破性的进展。
图2 mTORC1调控肌肉生长发育示意图

Akt:蛋白激酶B protein kinase B;AMPK:单磷酸腺苷激活的蛋白激酶 adenosine 5'-monophosphate-activated protein kinase;FGF21:成纤维细胞生长因子21 fibroblast growth factor 21;GDF15:生长分化因子15 growth differentiation factor 15;mTOR:哺乳动物雷帕霉素靶蛋白 mechanistic or mammalian target of rapamycin;mTORC1:哺乳动物雷帕霉素靶蛋白复合物1 mechanistic or mammalian target of rapamycin complex 1;PI3K:磷脂酰肌醇3激酶 phosphatidylinositol 3-kinase;S6K1:核糖体蛋白S6激酶1 ribosomal protein S6 kinase-1;4EBP1:真核起始因子4E结合蛋白1 eukaryotic initiation factor 4E binding protein 1。

Fig.2 Schematic diagram of mTORC1 regulation of muscle growth and development

[1]
MATARNEH S K, SILVA S L, GERRARD D E. New insights in muscle biology that alter meat quality[J]. Annual Review of Animal Biosciences, 2021,9:355-377.

[2]
YOON M S. mTOR as a key regulator in maintaining skeletal muscle mass[J]. Frontiers in Physiology, 2017,8:788.

[3]
SAXTON R A, SABATINI D M. mTOR signaling in growth,metabolism,and disease[J]. Cell, 2017, 169(2):361-371.

[4]
MAO Z, ZHANG W Z. Role of mTOR in glucose and lipid metabolism[J]. International Journal of Molecular Sciences, 2018, 19(7):2043.

[5]
FU W X, HALL M N. Regulation of mTORC2 signaling[J]. Genes, 2020, 11(9):1045.

[6]
BAGHDADI M B, TAJBAKHSH S. Regulation and phylogeny of skeletal muscle regeneration[J]. Developmental Biology, 2018, 433(2):200-209.

[7]
WEI X Y, LUO L F, CHEN J Z. Roles of mTOR signaling in tissue regeneration[J]. Cells, 2019, 8(9):1075.

[8]
JASH S, DHAR G, GHOSH U, et al. Role of the mTORC1 complex in satellite cell activation by RNA-induced mitochondrial restoration: dual control of cyclin D1 through microRNAs[J]. Molecular and Cellular Biology, 2014, 34(19):3594-3606.

[9]
RION N, CASTETS P, LIN S, et al. mTOR controls embryonic and adult myogenesis via mTORC1[J]. Development, 2019, 146(7):dev172460.

[10]
ZHANG P P, LIANG X R, SHAN T Z, et al. mTOR is necessary for proper satellite cell activity and skeletal muscle regeneration[J]. Biochemical and Biophysical Research Communications, 2015, 463(1/2):102-108.

[11]
HUNG C M, CALEJMAN C M, SANCHEZ-GURMACHES J, et al. Rictor/mTORC2 loss in the Myf5 lineage reprograms brown fat metabolism and protects mice against obesity and metabolic disease[J]. Cell Report, 2014, 8(1):256-271.

[12]
PEREIRA M G, SILVA M T, DA CUNHA F M, et al. Leucine supplementation improves regeneration of skeletal muscles from old rats[J]. Experimental Gerontology, 2015,72:269-277.

[13]
PERRY R A, BROWN L A, LEE D E, et al. Differential effects of leucine supplementation in young and aged mice at the onset of skeletal muscle regeneration[J]. Mechanisms of Ageing and Development, 2016,157:7-16.

[14]
JIN C L, YE J L, YANG J Z, et al. mTORC1 mediates lysine-induced satellite cell activation to promote skeletal muscle growth[J]. Cells, 2019, 8(12):1549.

[15]
LIU Y T, WANG Q H, ZHANG Z F, et al. Magnesium supplementation enhances mTOR signalling to facilitate myogenic differentiation and improve aged muscle performance[J]. Bone, 2021,146:115886.

[16]
CHEN Z, LI L, WU W R, et al. Exercise protects proliferative muscle satellite cells against exhaustion via the Igfbp7-Akt-mTOR axis[J]. Theranostics, 2020, 10(14):6448-6466.

[17]
EGERMAN M A, GLASS D J. Signaling pathways controlling skeletal muscle mass[J]. Critical Reviews in Biochemistry and Molecular Biology, 2014, 49(1):59-68.

[18]
BENTZINGER C F, ROMANINO K, CLOËTTA D, et al. Skeletal muscle-specific ablation of raptor,but not of rictor,causes metabolic changes and results in muscle dystrophy[J]. Cell Metabolism, 2008, 8(5):411-424.

[19]
YAO K, YIN Y L, CHU W Y, et al. Dietary arginine supplementation increases mTOR signaling activity in skeletal muscle of neonatal pigs[J]. The Journal of Nutrition, 2008, 138(5):867-872.

[20]
DUAN Y H, GUO Q P, WEN C Y, et al. Free amino acid profile and expression of genes implicated in protein metabolism in skeletal muscle of growing pigs fed low-protein diets supplemented with branched-chain amino acids[J]. Journal of Agricultural and Food Chemistry, 2016, 64(49):9390-9400.

[21]
ZHANG L Y, GUO Q P, DUAN Y H, et al. Potential nutritional healthy-aging strategy:enhanced protein metabolism by balancing branched-chain amino acids in a finishing pig model[J]. Food & Function, 2022, 13(11):6217-6232.

[22]
ZHU X L, JIAO J Z, ZHOU C S, et al. Effects of dietary methionine and lysine supplementation on nutrients digestion,serum parameters and mRNA expression of related amino acid sensing and transporting genes in growing goats[J]. Small Ruminant Research, 2018,166:1-6.

[23]
WEN C, JIANG X Y, DING L R, et al. Effects of dietary methionine on breast muscle growth,myogenic gene expression and IGF-Ⅰ signaling in fast- and slow-growing broilers[J]. Scientific Reports, 2017, 7(1):1924.

[24]
TANG H B, INOKI K, BROOKS S V, et al. mTORC1 underlies age-related muscle fiber damage and loss by inducing oxidative stress and catabolism[J]. Aging Cell, 2019, 18(3):e12943.

[25]
YU J Y, ZHENG C B, GUO Q P, et al. LPS-related muscle loss is associated with the alteration of Bacteroidetes abundance,systemic inflammation, and mitochondrial morphology in a weaned piglet model[J]. Science China. Life Sciences, 2024, 67(9):1970-1988.

[26]
TANG H B, INOKI K, LEE M, et al. mTORC1 promotes denervation-induced muscle atrophy through a mechanism involving the activation of FoxO and E3 ubiquitin ligases[J]. Science Signaling, 2014, 7(314):ra18.

[27]
DUAN Y H, LI F N, TAN B, et al. Metabolic control of myofibers:promising therapeutic target for obesity and type 2 diabetes[J]. Obesity Reviews, 2017, 18(6):647-659.

[28]
ZHOU M, WEI Y H, FENG Y, et al. Arginine regulates skeletal muscle fiber type formation via mTOR signaling pathway[J]. International Journal of Molecular Sciences, 2024, 25(11):6184.

[29]
DEBATTISTI V, HORN A, SINGH R, et al. Dysregulation of mitochondrial Ca2+ uptake and sarcolemma repair underlie muscle weakness and wasting in patients and mice lacking MICU1[J]. Cell Reports, 2019, 29(5):1274-1286.e6.

[30]
MORITA M, PRUDENT J, BASU K, et al. mTOR controls mitochondrial dynamics and cell survival via MTFP1[J]. Molecular Cell, 2017, 67(6):922-935.e5.

[31]
MORITA M, GRAVEL S P, CHÉNARD V, et al. mTORC1 controls mitochondrial activity and biogenesis through 4E-BP-dependent translational regulation[J]. Cell Metabolism, 2013, 18(5):698-711.

[32]
PAGAN A J, LEE L J, EDWARDS-HICKS J, et al. MTOR-regulated mitochondrial metabolism limits mycobacterium-induced cytotoxicity[J]. Cell, 2022, 185(20):3720-3738.

[33]
DELEYTO-SELDAS N, EFEYAN A. The mTOR-Autophagy axis and the control of metabolism[J]. Frontiers in Cell and Developmental Biology, 2021,9:655731.

[34]
TÁBARA L C, BURR S P, FRISON M, et al. MTFP1 controls mitochondrial fusion to regulate inner membrane quality control and maintain mtDNA levels[J]. Cell, 2024, 187(14):3619-3637.e27.

[35]
YASUDA T, ISHIHARA T, ICHIMURA A, et al. Mitochondrial dynamics define muscle fiber type by modulating cellular metabolic pathways[J]. Cell Reports, 2023, 42(5):112434.

[36]
WANG X B, HUANG N, YANG M, et al. FTO is required for myogenesis by positively regulating mTOR-PGC-1α pathway-mediated mitochondria biogenesis[J]. Cell Death & Disease, 2017, 8(3):e2702.

[37]
KAZYKEN D, DAME S G, WANG C, et al. Unexpected roles for AMPK in the suppression of autophagy and the reactivation of mTORC1 signaling during prolonged amino acid deprivation[J]. Autophagy, 2024, 20(9):2017-2040.

[38]
WAN W, YOU Z Y, ZHOU L, et al. mTORC1-regulated and HUWE1-mediated WIPI2 degradation controls autophagy flux[J]. Molecular Cell, 2018, 72(2):303-315.e6.

[39]
KIM J H, CHOI T G, PARK S, et al. Mitochondrial ROS-derived PTEN oxidation activates PI3K pathway for mTOR-induced myogenic autophagy[J]. Cell Death and Differentiation, 2018, 25(11):1921-1937.

[40]
LI F N, LI Y H, DUAN Y H, et al. Myokines and adipokines:involvement in the crosstalk between skeletal muscle and adipose tissue[J]. Cytokine & Growth Factor Reviews, 2017,33:73-82.

[41]
HAM D J, BÖRSCH A, LIN S, et al. The neuromuscular junction is a focal point of mTORC1 signaling in sarcopenia[J]. Nature Communications, 2020, 11(1):4510.

[42]
OST M, IGUAL GIL C, COLEMAN V, et al. Muscle-derived GDF15 drives diurnal anorexia and systemic metabolic remodeling during mitochondrial stress[J]. EMBO Reports, 2020, 21(3):e48804.

文章导航

/