研究论文

车前草多糖对黄羽肉鸡生长发育和盲肠微生物的影响

  • 陈家磊 ,
  • 余春林 ,
  • 彭涵 ,
  • 杨礼 ,
  • 胡陈明 ,
  • 熊霞 ,
  • 朱师良 ,
  • 张增荣 ,
  • 邱莫寒 ,
  • 夏波 ,
  • 宋小燕 ,
  • 熊柱翔 ,
  • 汪江先 ,
  • 杜龙环 ,
  • 杨朝武 , *
展开
  • 四川省畜牧科学研究院,动物遗传育种四川省重点实验室,成都 610066
* 杨朝武,研究员,E-mail:

陈家磊(1992—),男,四川泸县人,助理研究员,硕士,从事畜禽疾病与防控研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-10-24

  网络出版日期: 2025-05-14

基金资助

四川省基本科研业务专项(SASA202401)

四川省财政运行专项(SASA2025CZYX002)

国家现代农业产业技术体系四川鸡创新团队(SCCXTD-2024-24)

Effects of Plantago asiatica Polysaccharide on Growth Development and Cecal Microbiota of Yellow-Feathered Broilers

  • CHEN Jialei ,
  • YU Chunlin ,
  • PENG Han ,
  • YANG Li ,
  • HU Chenming ,
  • XIONG Xia ,
  • ZHU Shiliang ,
  • ZHANG Zengrong ,
  • QIU Mohan ,
  • XIA Bo ,
  • SONG Xiaoyan ,
  • XIONG Zhuxiang ,
  • WANG Jiangxian ,
  • DU Longhuan ,
  • YANG Chaowu , *
Expand
  • Animal Breeding and Genetics Key Laboratory of Sichuan Province, Sichuan Animal Science Academy, Chengdu 610066, China
* professor, E-mail:

Received date: 2024-10-24

  Online published: 2025-05-14

摘要

本试验旨在研究车前草多糖(PLP)对黄羽肉鸡生长性能、器官发育、免疫功能和盲肠微生物的影响。选用1日龄健康的大恒肉鸡公鸡400只,随机分为2组,每组10个重复,每个重复20只。对照组饲喂基础饲粮,PLP组饲喂在基础饲粮中添加1% PLP的试验饲粮,饲喂试验持续49 d。在21和49日龄时采样,进行器官指数、肠道形态、血清免疫指标测定;在49日龄时采样,对盲肠内容物进行宏基因组测序。结果显示:1)与对照组相比,PLP组的肉鸡末重、平均日增重和平均日采食量显著提高(P<0.05),同时料重比显著降低(P<0.05)。2)21日龄时,PLP组肉鸡的法氏囊指数、十二指肠绒毛高度和绒毛高度与隐窝深度比值显著高于对照组(P<0.05);49日龄时,PLP组肉鸡的十二指肠绒毛高度显著高于对照组(P<0.05)。3)PLP组肉鸡的血清总蛋白(TP)(21和49日龄)、免疫球蛋白A(IgA)(21和49日龄)和免疫球蛋白G(IgG)含量(49日龄)显著高于对照组(P<0.05)。4)宏基因组测序结果显示,对照组和PLP组肉鸡的盲肠微生物α多样性无显著差异(P>0.05);相较于对照组,PLP组肉鸡盲肠中梭菌属(Clostridium)、厌氧马赛杆菌属(Anaeromassilibacillus)、罗氏菌属(Roseburia)、艾森伯格氏菌属(Eisenbergiella)的相对丰度显著增加(P<0.05)。5)KEGG结果显示,在第1层级和第2层级,对照组和PLP组各通路的相对丰度无显著差异(P>0.05),在第3层级,PLP组糖胺聚糖生物合成-硫酸肝素/肝素代谢通路的相对丰度较对照组显著升高(P<0.05);碳水化合物活性酶(CAZy)分析结果显示,相较于对照组,PLP组在CBM13、CBM6、GH112、GH30_1、GH113、GH13_18和GT76基因上显著富集(P<0.05)。综上所述,饲粮中添加1%的PLP可提高黄羽肉鸡的生长性能,促进免疫器官和肠道发育,提升血清免疫功能,增加盲肠中一些有益菌的相对丰度,影响盲肠微生物糖胺聚糖生物合成-硫酸肝素/肝素通路以及碳水化合物结合模块(CBMs)、糖苷水解酶类(GHs)和糖基转移酶类(GTs)家族基因的表达。

本文引用格式

陈家磊 , 余春林 , 彭涵 , 杨礼 , 胡陈明 , 熊霞 , 朱师良 , 张增荣 , 邱莫寒 , 夏波 , 宋小燕 , 熊柱翔 , 汪江先 , 杜龙环 , 杨朝武 . 车前草多糖对黄羽肉鸡生长发育和盲肠微生物的影响[J]. 动物营养学报, 2025 , 37(5) : 2988 -3003 . DOI: 10.12418/CJAN2025.249

Abstract

This study aimed to investigate the effects of Plantago asiatica polysaccharide (PLP) on the growth performance, organ development, immune function and cecal microbiota of yellow-feathered broilers. Four hundred 1-day-old healthy Daheng broiler roosters were randomly divided into 2 groups with 10 replicates per group and 20 broilers per replicate. Broilers in control group were fed a basal diet, and those in PLP group were fed the basal diet supplemented with 1% PLP. The feeding experiment lasted for 49 days. At 21 and 49 days of age, samples were collected for immune organ indexes, intestinal morphology, and serum immune indexes determination. At 49 days of age, cecal contents were collected for metagenomic sequencing analysis. The results showed as follows: 1) compared with control group, the final body weight, average daily gain and average daily feed intake of broilers in the PLP group were significantly increased (P<0.05), and the increased (P<0.05), and the ratio of feed to gain was significantly reduced (P<0.05). 2) At 21 days of age, the Fabricius index, duodenal villus height and villus height/crypt depth ratio in the PLP group were significantly higher than those in the control group (P<0.05); at 49 days of age, the duodenal villi height in the PLP group was significantly higher than that in the control group (P<0.05). 3) The contents of serum total protein (TP) (21 and 49 days of age), immunoglobulin A (IgA) (21 and 49 days of age) and immunoglobulin G (IgG) (49 days of age) in the PLP group were significantly higher than those in the control group (P<0.05). 4) The metagenomic sequencing results showed no significant differences in α diversity of cecal microbiota between control group and PLP group (P>0.05); compared with the control group, the relative abundances of cecal Clostridium, Anaeromassilibacillus, Roseburia, Eisenbergiella and Bittarella in the PLP group were significantly increased (P<0.05). 5) KEGG results showed that there was no significant difference in the relative abundance of each pathway between control group and PLP group under level 1 and level 2 (P>0.05), and the relative abundance of glycosaminoglycan biosynthesis-heparan sulfate/heparin pathway was significantly increased in the PLP group compared with the control group under level 3 (P<0.05); carbohydrate active enzyme (CAZy) analysis results showed that, compared with the control group, PLP group was significantly enriched in CBM13, CBM6, GH112, GH30_1, GH113, GH13_18 and GT76 genes (P<0.05). In conclusion, dietary supplementation of 1% PLP can improve the growth performance, promote the development of immune organs and intestine, improve serum immune function, increase the relative abundances of some cecal beneficial microorganisms and affect cecal microbial glycosaminoglycan biosynthesis-heparan sulfate/heparin pathway and the expression of carbohydrate-binding modules (CBMs), glycoside hydrolases (GHs) and glycosyl transferases (GTs) family genes.

植物多糖已被发现具有多种有益的特性,包括抗氧化、抗毒性、抗炎、抗菌和免疫调节等[1-6]。中草药多糖凭借其无毒性和潜在的药理和生物活性而受到越来越多的关注,探究中草药多糖对机体的作用效果和作用机制将对畜禽生产向高效健康、绿色有机的转型起到重要作用。车前草是一种传统中草药,主要用于缓解糖尿病、肥胖、便秘、腹泻,也可用作抗炎药物。Gamage等[7]用健康的人类粪便对消化的车前籽壳进行了体外发酵研究,发现车前籽壳的添加增加了拟杆菌属(Bacteroides)的数量。在一项类似的研究中发现,车前草壳可以减少总需氧细菌、肠杆菌科(Enterobacteriaceae)、肠球菌属(Enterococcus spp.)和乳酸菌群体的数量[8]。车前草多糖(Plantago asiatica polysaccharide,PLP)是从车前草全株植物中分离得到的一种多糖,是车前草的重要活性成分之一[9-10]。目前的研究表明,PLP具有调节糖代谢和脂代谢、改善肠道健康、调节机体免疫功能等作用[11-13];此外,PLP可以诱导树突状细胞的表型和功能成熟,重塑巨噬细胞的表型,促进炎症细胞因子的分泌和吞噬细胞的摄取;PLP还可以被肠道微生物群消耗和利用,因此有可能具有选择性地刺激肠道微生物群的生长或活性的作用[14-15]。畜禽肠道中有大量的微生物,肠道与其微生物群之间的相互作用是影响动物生长、发育和健康的重要因素。一些肠道微生物在营养物质的消化吸收、促进免疫系统发育、维持免疫稳态和抵御病原体入侵等方面发挥着重要作用。肠道微生物稳态的破坏会导致宿主的代谢紊乱,增加患病风险,而肠道微生物群的多样性和丰富度与鸡的生产性能有关。研究发现,植物乳杆菌B1、芽孢杆菌、酵母菌等益生菌对肉鸡体重、饲料转化率、肠道屏障保护等方面显著影响[16-18]。然而,PLP在畜禽生产中的应用及其对家禽肠道微生物多样性和生长性能的影响尚未见报道。因此,本研究以黄羽肉鸡为研究对象,观察PLP对黄羽肉鸡生长性能、免疫器官、肠道发育以及盲肠微生物的影响,为今后车前草多糖在畜禽生产中的开发利用提供依据。

1 材料与方法

1.1 伦理声明

本试验的动物试验方案经过四川省畜牧科学研究院审核,符合动物保护和动物福利原则,符合国家动物福利伦理的相关规定,审核编号2023011。

1.2 试验设计和样品采集

选择400只1日龄健康大恒肉公鸡随机分为2组,对照组和PLP组,每组10个重复,每个重复20只。根据前期研究[19]和预试验结果,确定饲粮中PLP的添加剂量为1%。从1日龄开始,PLP组饲喂添加1% PLP的基础饲粮,PLP有效含量为70%(多糖含量测定方法为硫酸-苯酚法[20]),对照组饲喂基础饲粮。饲养试验持续49 d,期间各组肉鸡自由采食、饮水,采用笼养方式,2组肉鸡在同一饲养环境中饲喂,所喂饲粮为粉料。参照《鸡饲养标准》(NY/T 33—2004)设计饲粮配方,基础饲粮组成及营养水平见表1。饲粮中粗蛋白质、钙和总磷含量分别参考国家标准GB/T 6432—2018、GB/T 6436—2018及GB/T 6437—2018中的方法进行测定,赖氨酸和蛋氨酸含量按照GB/T 18246—2019方法,采用塞卡姆S-433D氨基酸自动分析仪测定。代谢能参考《中国饲料成分及营养价值表(2017年第28版)》计算得出。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
1~28日龄
1 to 28 days of age
29~49日龄
29 to 42 days of age
原料Ingredients
玉米Corn 61.70 66.40
豆粕Soybean meal 25.70 20.60
玉米蛋白粉Corn gluten meal 4.00 4.00
玉米干酒糟及其可溶物Corn DDGS 3.00 3.00
大豆油Soybean oil 1.00 1.50
石粉Limestone 1.30 1.40
磷酸氢钙CaHPO4 1.50 1.30
氯化钠NaCl 0.26 0.26
赖氨酸Lys 0.38 0.32
蛋氨酸Met 0.20 0.18
苏氨酸Thr 0.06 0.08
氯化胆碱Choline chloride 0.08 0.10
预混料Premix 0.821) 0.862)
合计Total 100.00 100.00
营养水平Nutrient levels3)
代谢能ME/(MJ/kg) 12.14 12.43
粗蛋白质CP 19.85 17.42
钙Ca 0.90 0.86
总磷TP 0.62 0.53
赖氨酸Lys 1.13 1.02
蛋氨酸Met 0.48 0.45

1)预混料为每千克饲粮提供The premix provided the following per kg of diets:VA 9 900 IU,VD3 1 800 IU,VE 38 IU,VK3 3.15 mg,VB1 2.7 mg,VB2 6.75 mg,VB6 4.5 mg,VB12 31.5 &#x03BC;g,生物素 biotin 0.23 mg,泛酸钙 calcium pantothenate 15.75 mg,叶酸 folic acid 1.1 mg,烟酸 nicotinic acid 45 mg,Fe 150 mg,Cu 19 mg,Mn 132 mg,Zn 110 mg,I 0.41 mg,Se 0.49 mg。

3)代谢能为计算值,其余均为实测值。ME was a calculated value, while the others were measured values.

2)预混料为每千克饲粮提供The premix provided the following per kg of diets:VA 9 240 IU,VD3 1 680 IU,VE 35.7 IU,VK3 2.94 mg,VB1 2.52 mg,VB2 6.3 mg,VB6 4.2 mg,VB12 29.4 &#x03BC;g,生物素 biotin 0.21 mg,泛酸钙 calcium pantothenate 14.7 mg,叶酸 folic acid 1.05 mg,烟酸 nicotinic acid 42 mg,Fe 135 mg,Cu 15 mg,Mn 110 mg,Zn 114 mg,I 0.53 mg,Se 0.5 mg。

1.3 生长性能测定

以重复为单位,试验开始和结束后空腹称重,记录死淘数和耗料量,计算平均日增重(ADG)、平均日采食量(ADFI)及料重比(F/G)。

1.4 免疫器官指数、肠道组织形态学检测

试验第21、49天,从每个重复中选取1只鸡,停止给料12 h后空腹称重,颈部放血处死后收集法氏囊、脾脏和肝脏并称重,计算免疫器官指数;收集十二指肠,用生理盐水冲洗内容物,取1 cm的肠段,用4%多聚甲醛固定。将固定的肠段脱水、修剪、包埋、切片、染色、密封,显微镜检查。图像采用数字显微镜(BA210,麦奥迪工业集团有限公司)采集,将采集到的图像导入Motic Images Advanced 3.2测量肠绒毛长度和隐窝深度,并计算绒毛高度与隐窝深度比值(V/C值)。
$免疫器官指数 (\mathrm{mg} / \mathrm{g})= 免疫器官重量 (\mathrm{mg}) / 体重 (\mathrm{g}) 。$

1.5 血清免疫指标检测

试验第21、49天,从每个重复中选取1只鸡,采集外周血,分离血清,-20 ℃保存。血清总蛋白(TP)、免疫球蛋白G(IgG)、免疫球蛋白A(IgA)、白细胞介素-4(IL-4)和&#x03B3;-干扰素(IFN-&#x03B3;)含量采用酶联免疫吸附测定(ELISA)试剂盒(购自上海酶联生物技术有限公司),按操作说明进行测定。

1.6 DNA提取和宏基因组测序

试验第49天,每组随机选6个重复,每个重复选取1只鸡,空腹12 h后颈部放血处死,收集每只鸡盲肠内容物,迅速放入液氮保存。使用QIAamp®快速DNA粪便迷你试剂盒(QIAGEN,德国)从200 mg冷冻盲肠内容物中提取微生物基因组DNA。使用NanoDrop 2000分光光度计(赛默飞,美国)和琼脂糖凝胶电泳评估基因组DNA的浓度、质量和完整性。每个样本使用总计0.2 &#x03BC;g的DNA作为DNA样本制备的输入材料。输入的DNA样本通过片段化试剂片段化为300 bp的大小,然后对DNA片段进行末端修复、加A尾,并与用于BGI测序的接头连接,随后进行PCR扩增,最后纯化PCR产物,并通过Qsep400生物分析仪分析文库的大小分布。DNA文库最终在Illumina NovaSeq 6000平台(Illumina,美国)上进行150 bp的双端测序。使用DIAMOND(v0.9.7)软件将基因集代表序列(氨基酸序列)分别同NR、KEGG、COG、SWISSPROT、GO等数据库进行比对注释,BLAST比对参数设置期望值(E-value)为1e-5。并通过NR数据库对应的分类学信息数据库获得物种注释,然后使用物种对应的基因丰度综合计算该物种的丰度,并在门(phylum)、纲(class)、目(order)、科(family)、属(genus)、种(species)各个分类学水平上统计物种在各个样品中的丰度,从而构建相应分类学水平上的丰度谱。

1.7 数据统计分析

试验数据用平均值±标准差表示,采用SPSS 25.0统计软件对2组数据进行独立样本t检验,P<0.05为差异显著;宏基因组数据从不同层级的物种丰度表、功能丰度表出发,利用Wilcoxon秩和检验方法对2组间的物种丰度数据进行假设检验得到P值,P<0.05认为其具有显著性差异。

2 结果

2.1 PLP对黄羽肉鸡生长性能的影响

表2可知,与对照组相比,PLP组肉鸡的末重、ADG分别显著增高7.92%和8.10%(P<0.05);PLP组的F/G显著低于对照组(P<0.05);PLP组的ADFI显著高于对照组(P<0.05)。
表2 PLP对黄羽肉鸡生长性能的影响

Table 2 Effects of PLP on growth performance of yellow-feathered broilers

项目Items 对照组Control group PLP组PLP group PP-value
初重IBW/g 35.20±0.79 35.20±0.79 1.000
末重FBW/g 1 893.50±63.90b 2 043.50±92.11a <0.001
平均日增重ADG/g 37.92±1.31b 40.99±1.89a <0.001
平均日采食量ADFI/g 84.62±2.43b 88.36±3.10a 0.008
料重比F/G 2.23±0.03a 2.16±0.04b <0.001
死亡率Mortality/% 2.00 1.50

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 PLP对黄羽肉鸡免疫器官指数的影响

表3可知,在21日龄时,PLP组肉鸡的法氏囊指数显著高于对照组(P<0.05),脾脏指数和肝脏指数较对照组高,但差异不显著(P>0.05);在49日龄时,PLP组与对照组的法氏囊指数、脾脏指数和肝脏指数均无显著差异(P>0.05)。
表3 PLP对黄羽肉鸡免疫器官指数的影响

Table 3 Effects of PLP on immune organ indexes of yellow-feathered broilers mg/g

项目
Items
日龄
Days of age
对照组
Control group
PLP组
PLP group
P
P-value

法氏囊指数Fabricius index
21 2.58±0.24b 3.33±0.28a 0.004
49 2.11±0.76 2.42±0.43 0.450

脾脏指数Spleen index
21 1.24±0.26 1.64±0.50 0.199
49 1.63±0.37 1.60±0.26 0.872

肝脏指数Liver index
21 30.19±2.95 38.13±6.56 0.061
49 21.59±1.83 21.56±0.82 0.971

2.3 PLP对黄羽肉鸡十二指肠形态的影响

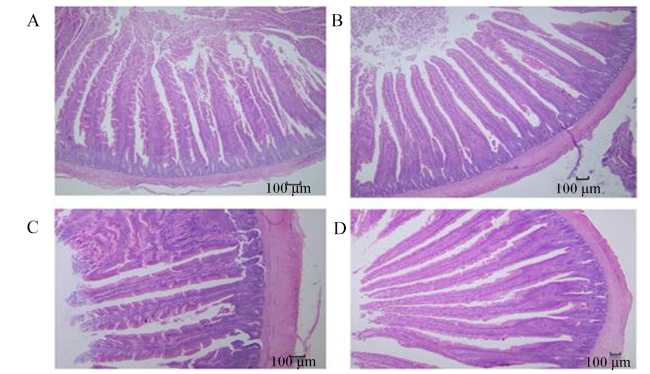
对照组和PLP组黄羽肉鸡十二指肠切片见图1。由表4可知,在21日龄时,PLP组肉鸡的十二指肠绒毛高度和V/C值较对照组显著升高(P<0.05),隐窝深度与对照组无显著差异(P>0.05);在49日龄时,PLP组肉鸡的十二指肠绒毛高度较对照组显著升高(P<0.05),隐窝深度和V/C值与对照组无显著差异(P>0.05)。
表4 PLP对黄羽肉鸡十二指肠形态的影响

Table 4 Effects of PLP on duodenal morphology of yellow-feathered broilers

项目
Items
日龄
Days of age
对照组
Control group
PLP组
PLP group
P
P-value

绒毛高度Villous height/&#x03BC;m
21 1 226.98±150.44b 1 502.38±206.82a <0.001
49 1 543.51±135.53b 1 863.87±146.08a 0.030

隐窝深度Crypt depth/&#x03BC;m
21 178.75±41.76 163.89±39.57 0.326
49 226.00±40.86 241.78±20.01 0.505

绒毛高度与隐窝深度比值V/C ratio
21 7.12±1.35b 9.63±2.68a 0.004
49 6.74±0.71 7.70±0.94 0.123
图1 对照组和PLP组黄羽肉鸡十二指肠组织切片

A:对照组21日龄 21 days of age in control group;B:PLP组21日龄 21 days of age in PLP group;C:对照组49日龄 49 days of age in control group;D:PLP组49日龄 49 days of age in PLP group。

Fig.1 Duodenal tissue section of yellow-feathered broilers in control group and PLP group

2.4 PLP对黄羽肉鸡血清免疫指标的影响

表5可知,在21日龄时,PLP组肉鸡的血清TP和IgA含量显著高于对照组(P<0.05),IL-4含量显著低于对照组(P<0.05),IgG和IFN-&#x03B3;含量与对照组无显著差异(P>0.05);在49日龄时,PLP组肉鸡的血清TP、IgG和IgA含量显著高于对照组(P<0.05),IL-4和IFN-&#x03B3;含量与对照组无显著差异(P>0.05)。
表5 PLP对黄羽肉鸡血清免疫指标的影响

Table 5 Effects of PLP on serum immune indexes of yellow-feathered broilers

项目
Items
日龄
Days of age
对照组
Control group
PLP组
PLP group
P
P-value

总蛋白TP/(&#x03BC;g/mL)
21 1 349.13±57.23b 1 456.67±72.76a 0.017
49 1 238.61±35.89b 1 363.33±97.13a 0.016

免疫球蛋白G IgG/(&#x03BC;g/mL)
21 1 319.55±86.96 1 560.45±291.83 0.119
49 1 246.82±142.00b 1 650.23±349.88a 0.032

免疫球蛋白A IgA/(&#x03BC;g/mL)
21 327.61±21.52b 355.51±14.35a 0.025
49 303.31±28.90b 338.74±23.43a 0.042

白细胞介素-4 IL-4/(pg/mL)
21 95.72±10.77a 73.29±9.49b 0.003
49 65.75±9.24 74.46±7.19 0.099

&#x03B3;-干扰素IFN-&#x03B3;/(pg/mL)
21 67.29±4.24 67.48±6.55 0.957
49 63.33±5.22 58.93±4.68 0.199

2.5 PLP对黄羽肉鸡盲肠微生物组成的影响

2.5.1 组间基因数目分布情况
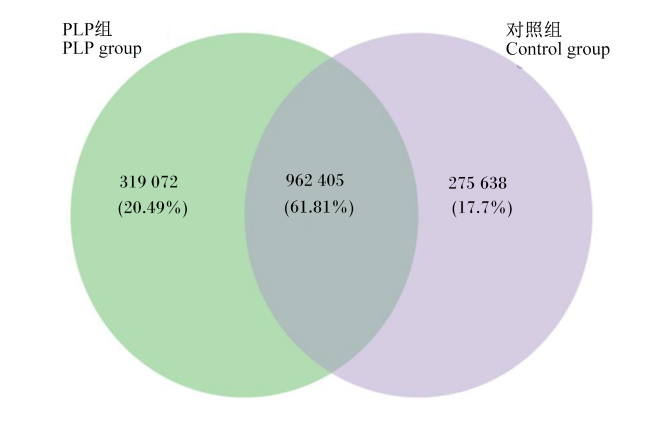
在12个样本中每组有2个样本DNA提取质检不合格,因此后续测序过程每组4个样本,共8个样本。图2显示,对照组和PLP组分别检测到1 238 043和1 281 477个基因,其中PLP组独有的基因有319 072个,对照组独有的基因有275 638个,所有样本共有的基因有962 405个。
图2 基因数维恩图谱分析

Fig.2 Analysis of Venn map of gene number

2.5.2 PLP对黄羽肉鸡盲肠微生物相对丰度和α多样性的影响

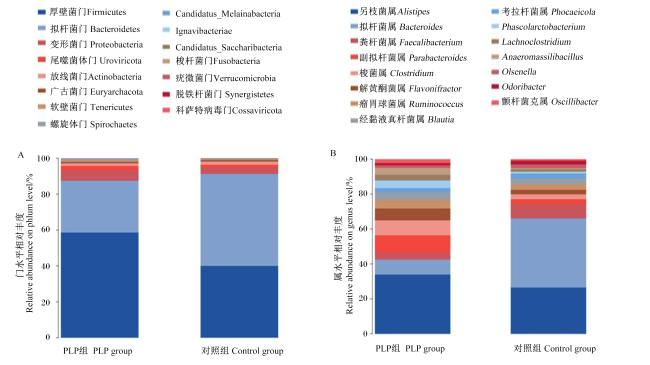
图3所示,在门水平上,PLP组盲肠中优势菌门为厚壁菌门(Firmicutes),对照组盲肠中优势菌门为拟杆菌门(Bacteroidetes);2组盲肠中相对丰度前5的菌门均为Firmicutes、Bacteroidetes、变形菌门(Proteobacteria)、尾噬菌体门(Uroviricota)和放线菌门(Actinobacteria),占盲肠微生物种群的78%以上。与对照组相比,PLP组盲肠中厚壁菌门相对丰度有所升高,而拟杆菌门相对丰度有所下降。
图3 盲肠微生物门和属水平组成

图A:相对丰度前15的菌门;图B:相对丰度前15的菌属。

Fig.3 Composition of cecal microbiota at phylum and genus levels

Figure A: the top 15 phyla in relative abundance; figure B: the top 15 genera in relative abundance.

图3所示,在属水平上,对照组盲肠中相对丰度前5的菌属为Bacteroides、另枝菌属(Alistipes)、粪杆菌属(Faecalibacterium)、经黏液真杆菌属(Blautia)和瘤胃球菌属(Ruminococcus);PLP组盲肠中相对丰度前5的菌属为Alistipes、副拟杆菌属(Parabacteroides)、Bacteroides、梭菌属(Clostridium)和解黄酮菌属(Flavonifractor)。
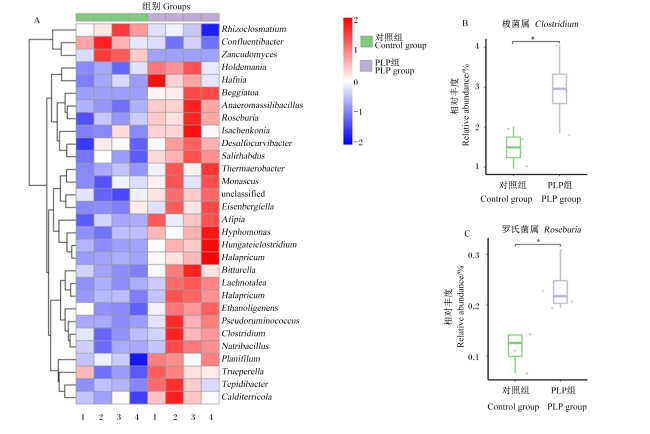
图4所示,与对照组相比,PLP组多个菌属的相对丰度显著增加(P<0.05),如Clostridium、厌氧马赛杆菌属(Anaeromassilibacillus)和罗氏菌属(Roseburia)等,而根梭菌属(Rhizoclosmatium)、汇合杆菌属(Confluentibacter)、赞库菌属(Zancudomyces)的相对丰度则显著降低(P<0.05)。
图4 属水平前30显著差异微生物热图及显著差异代表菌属

Rhizoclosmatium:根梭菌属;Confluentibacter:汇合杆菌属;Zancudomyces:赞库菌属;Holdemania:霍尔德曼氏菌属;Hafnia:哈夫尼菌属;Beggiatoa:贝吉亚托菌属;Anaeromassilibacillus:厌氧马赛杆菌属;Roseburia:罗氏菌属;Isachenkonia:伊萨陈孔菌属;Desulfocurvibacter:脱硫杆菌属;Thermaerobacter:嗜热菌属;Monascus:红曲霉属;unclassified:未分类的;Eisenbergiella:艾森伯格氏菌属;Afipia:阿菲波菌属;Hyphomonas:生丝单胞菌属;Hungateiclostridium:匈牙利梭菌属;Halapricum:盐堆属;Pseudoruminococcus:假瘤胃球菌属;Clostridium:梭菌属;Natribacillus:硝杆菌属;Tepidibacter:温热杆菌属。

图A中横坐标表示不同组别的个体编号;图B和图C中*表示对照组和PLP组之间存在显著差异(P<0.05)。图7图8图9图10图12同。In figure A, the abscissa represents the individual numbers of the different groups; in figure B and figure C, * indicated significant difference between control group and PLP group (P<0.05). The same as Fig.7, Fig.8, Fig.9, Fig.10 and Fig.12.

Fig.4 Top 30 significantly different microbial heat map at genus level and significant differences representing bacterial genera

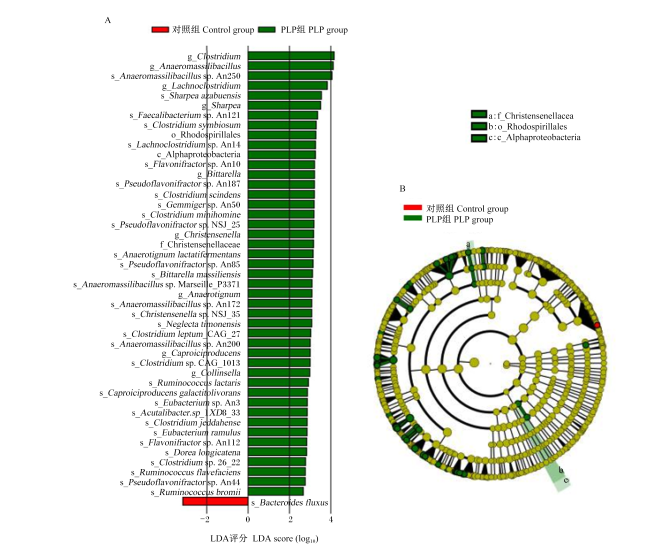
线性判别分析效应大小(LefSe)结果也显示了添加PLP对肉鸡盲肠微生物组成和丰富度的特有影响。在对照组和PLP组中共发现46个核心标记物,其中PLP组主要富集于红螺菌目(Rhodospirillales)、α-变形杆菌纲(Alphaproteobacteria)、克里斯滕森菌科(Christensenellaceae)、AnaeromassilibacillusClostridium、梭状芽孢杆菌(Clostridium scindens)等的相对丰度,对照组主要富集于氟拟杆菌(Bacteroides fluxus)[图5-A,线性判别分析(LDA)评分>2]。此外,进化分枝图还显示了对照组和PLP组类群中差异微生物的系统发育分布,Rhodospirillales、Alphaproteobacteria和Christensenellaceae为PLP组中相对丰度较高的差异显著物种(图5-B)。
图5 线性判断分析图(A,LDA评分>2)和进化分支图(B)

g_Clostridium:梭菌属;g_Anaeromassilibacillus:厌氧马赛杆菌属;s_Anaeromassilibacillus sp. An250:厌氧马赛杆菌属未分类种An250;g_Lachnoclostridium:毛梭菌属;s_Sharpea azabuensis:阿扎夏普氏菌;g_Sharpea:普氏菌属;s_Faecalibacterium sp. An121:粪杆菌属未分类种An121;s_Clostridium symbiosum:共生梭菌;o_Rhodospirillales:红螺菌目;s_Lachnoclostridium sp. An14:毛梭菌属未分类种An14;c_Alphaproteobacteria:α-变形杆菌纲;s_Flavonifractor sp. An10:解黄酮菌属未分类种An10;s_Pseudoflavonifractor sp. An187:伪黄酮菌属未分类种An187;s_Clostridium scindens:梭状芽孢杆菌;s_Gemmiger sp. An50:芽殖菌属未分类种An50;s_Clostridium minihomine:微小梭菌;s_Pseudoflavonifractor sp. NSJ_25:伪黄酮菌属未分类种NSJ_25;g_Christensenella:克里斯滕森菌属;f_Christensenellaceae:克里斯滕森菌科;s_Anaerotignum lactatifermentans:乳酸厌氧菌;s_Pseudoflavonifractor sp. An85:伪黄酮菌属未分类种An85;s_Anaeromassilibacillus sp. Marseille_P3371:厌氧马赛杆菌属未分类种Marseille_P3371;s_Anaeromassilibacillus sp. An172:厌氧马赛杆菌属未分类种An172;s_Christensenella sp. NSJ_35:克里斯滕森菌属未分类种NSJ_35;s_Clostridium leptum_CAG_27:柔嫩梭菌CAG_27株;s_Anaeromassilibacillus sp. An200:厌氧马赛杆菌属未分类种An200;s_Clostridium sp. CAG_1013:梭菌属未分类种CAG_1013;g_Collinsella:柯林斯氏菌属;s_Ruminococcus lactaris:乳瘤胃球菌;s_Caproiciproducens galactitolivorans:半乳糖己酸菌;s_Eubacterium sp. An3:真细菌属未分类种An3;s_Clostridium jeddahense:吉达氏梭菌;s_Eubacterium ramulus:细枝真杆菌;s_Flavonifractor sp. An112:解黄酮菌属未分类种An112;s_Dorea longicatena:长链多灵菌;s_Clostridium sp. 26_22:梭菌属未分类种26_22;s_Ruminococcus flavefaciens:黄化瘤胃球菌;s_Pseudoflavonifractor sp. An44:伪黄酮菌属未分类种An44;s_Ruminococcus bromii:布氏瘤胃球菌;s_Bacteroides fluxus:氟拟杆菌。

Fig.5 Linear discriminant analysis diagram (A, LDA score>2) and cladogram (B)

为了比较2组肉鸡肠道菌群的丰富度和均匀度,采用Chao1指数、Shannon指数、Simpson指数和ACE指数进行了α多样性评估。由表6可知,PLP组和对照组之间Chao1指数、Shannon指数、Simpson指数和ACE指数均无显著差异(P>0.05)。
表6 α多样性结果

Table 6 α-diversity results

项目Items 对照组Control group PLP组PLP group PP-value
Chao1指数Chao1 index 8 425.43±556.85 8 711.69±806.66 0.583
Shannon指数Shannon index 4.54±0.64 5.03±0.32 0.239
Simpson指数Simpson index 0.95±0.03 0.97±0.01 0.325
ACE指数ACE index 8 289.14±548.94 8 579.77±797.14 0.573

2.5.3 PLP对黄羽肉鸡盲肠微生物群功能的影响

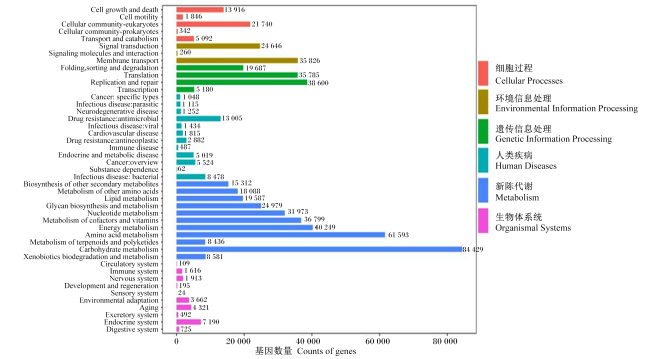
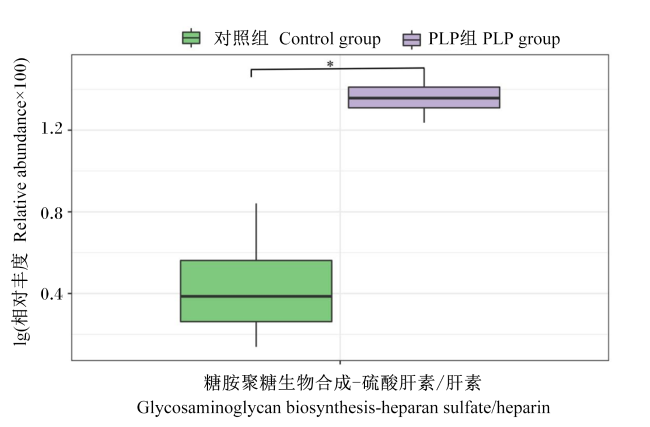
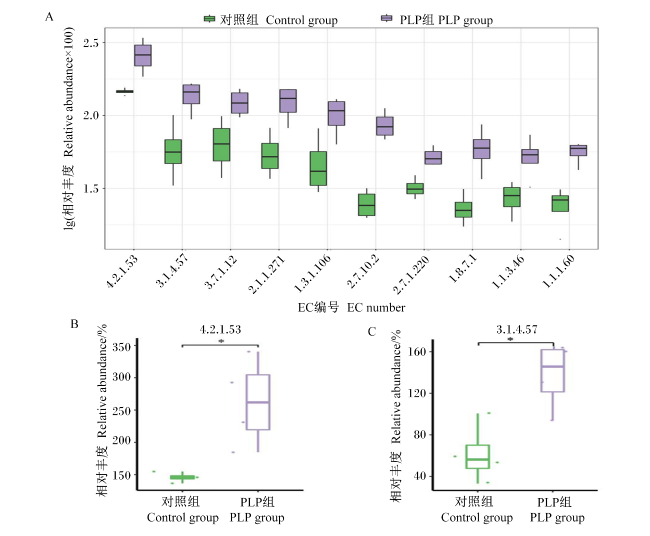
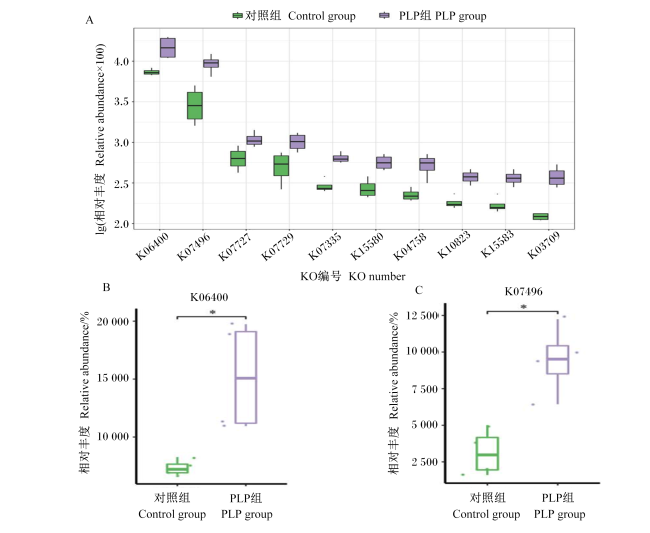
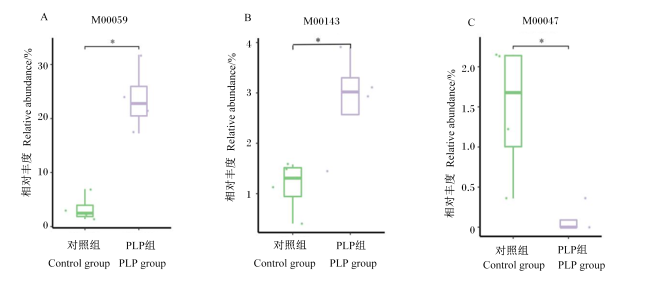
为了研究PLP对黄羽肉鸡盲肠微生物群功能的影响,利用KEGG和CAZy数据库对盲肠微生物基因进行了注释。从图6可以看出,在KEGG功能基因分类中,在第1层级(level 1),新陈代谢(metabolism)是基因富集最多的通路,生物体系统(organismal systems)是基因富集最少的通路;在第2层级(level 2),碳水化合物代谢(carbohydrate metabolism)是基因富集最多的通路,基因数为84 429个,感觉系统(sensory system)是基因富集最少的通路,基因数为24个。在level 1和level 2上,PLP组和对照组各通路的相对丰度均无显著差异(P>0.05);在第3层级(level 3)上,PLP组糖胺聚糖生物合成-硫酸肝素/肝素(glycosaminoglycan biosynthesis-heparan sulfate/heparin)通路的相对丰度较对照组显著升高(P<0.05,图7)。在KEGG分析结果中一共发现21个EC编号存在显著差异(P<0.05,图8中仅展示前10个),如PLP组EC4.2.1.53和EC3.1.4.75的相对丰度显著高于对照组(P<0.05);在KO分析结果中一共发现80个KO存在显著差异(P<0.05,图9中仅展示前10个),如PLP组K06400和K07496相对丰度均显著高于对照组(P<0.05);在模块(module)分析结果中一共发现3个功能模块有显著差异(P<0.05,图10),其中PLP组M00059和M00143相对丰度显著高于对照组(P<0.05),M00047相对丰度显著低于对照组(P<0.05)。
图6 KEGG功能注释

Cell growth and death:细胞生长和死亡;Cell motility:细胞运动性;Cellular community-eukaryotes:细胞社群-真核生物;Cellular community-prokaryotes:细胞社群-原核生物;Transport and catabolism:转运和代谢;Signal transduction:信号转导;Signaling molecules and interaction:信号分子和相互作用;Membrane transport:膜输送,膜转运;Folding,sorting and degradation:折叠、整理和降解;Translation:翻译;Replication and repair:复制和修复;Transcription:转录;Cancer: specific types:癌症:特定类型;Infectious disease:parasitic:传染病:寄生虫;Neurodegenerative disease:神经变性疾病;Drug resistance:antimicrobial:耐药性:抗菌;Infectious disease:viral:传染性疾病:病毒性;Cardiovascular disease:心血管病;Drug resistance:antineoplastic:耐药性:抗肿瘤;Immune disease:免疫性疾病;Endocrine and metabolic disease:内分泌和代谢性疾病;Cancer:overview:癌症:概述;Substance dependence:药物依赖;Infectious disease: bacterial:传染病:细菌;Biosynthesis of other secondary metabolites:其他次生代谢物的生物合成;Metabolism of other amino acids:其他氨基酸的代谢;Lipid metabolism:类脂(化合)物代谢作用;Glycan biosynthesis and metabolism:糖聚糖的生物合成和代谢;Nucleotide metabolism:核苷酸代谢;Metabolism of cofactors and vitamins:辅助因子和维生素的代谢;Energy metabolism:能量代谢;Amino acid metabolism:氨基酸代谢;Metabolism of terpenoids and polyketides:萜类和聚酮类物质的代谢;Carbohydrate metabolism:碳水化合物代谢;Xenobiotics biodegradation and metabolism:异种生物体的生物降解和代谢;Circulatory system:循环系统;Immune system:免疫系统;Nervous system:神经系统;Development and regeneration:发育和再生;Sensory system:感觉系统;Environmental adaptation:环境适应性;Aging:衰老;Excretory system:排泄系统;Endocrine system:内分泌系统;Digestive system:消化系统。

Fig.6 KEGG function annotation

图7 t检验有显著差异的代谢通路的相对丰度

Fig.7 t-test for relative abundance of metabolic pathway with significant difference

图8 t检验有显著差异的EC的相对丰度

Fig.8 t-test for relative abundances of EC with significant differences

图9 t检验有显著差异的KO的相对丰度

Fig.9 t-test for relative abundances of KO with significant differences

图10 t检验有显著差异的功能模块的相对丰度

Fig.10 t-test for relative abundances of function modules with significant differences

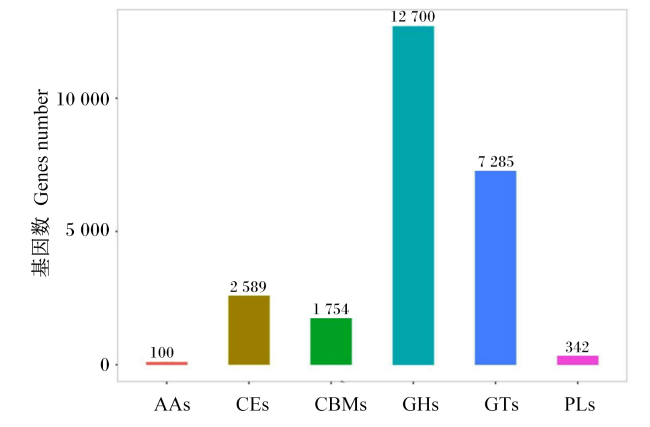
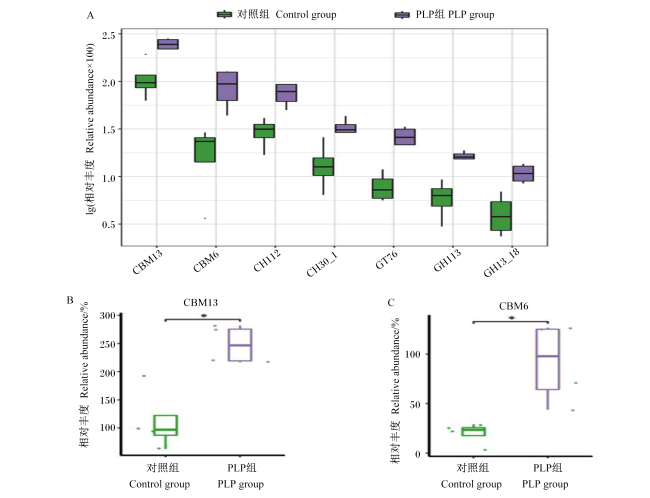
在碳水化合物活性酶(CAZy)功能注释中,糖苷水解酶类(GHs)和糖基转移酶类(GTs)是所有样本中富集基因最多的2类家族(图11)。从图12可以看出,在GHs、GTs和碳水化合物结合模块(CBMs)家族中有基因在对照组和PLP组之间存在显著差异(P<0.05);相较于对照组,PLP组中显著富集CBM13、CBM6、GH112、GH30_1、GH113、GH13_18和GT76基因(P<0.05)。
图11 CAZy功能注释

AAs:辅助模块酶类 auxiliary activities;CEs:碳水化合物酯酶类 carbohydrate esterases;CBMs:碳水化合物结合模块 carbohydrate-binding modules;GHs:糖苷水解酶 glycoside hydrolases;GTs:糖基转移酶类 glycosyl transferases;PLs:多糖裂合酶类 polysaccharide lyases。

Fig.11 CAZy functional annotation

图12 t检验有显著差异的CAZy家族基因的相对丰度

Fig.12 t-test for relative abundances of genes in CAZy family with significant differences

2.5.4 PLP组黄羽肉鸡盲肠关键差异微生物与生长性能指标、十二指肠形态指标和血清免疫指标的相关性分析
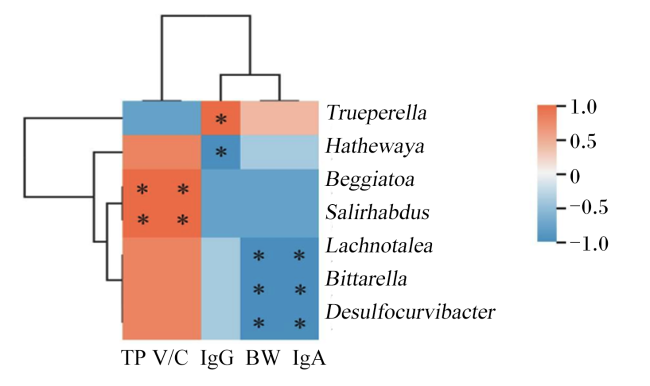
图13所示,盲肠隐秘杆菌属(Trueperella)相对丰度与血清IgG含量呈显著正相关(P<0.05),而盲肠Hathewaya相对丰度与血清IgG含量呈显著负相关(P<0.05);盲肠贝吉亚托菌属(Beggiatoa)和Salirhabdus相对丰度与血清TP含量和十二指肠V/C值呈显著正相关(P<0.05);盲肠LachnotaleaBittarella和脱硫杆菌属(Desulfocurvibacter)相对丰度与体重(49日龄)和血清IgA含量呈显著负相关(P<0.05)。
图13 盲肠关键差异微生物与生长性能指标、十二指肠形态指标和血清免疫指标的相关性分析

Trueperella:隐秘杆菌属;Hathewaya:哈撒韦氏菌属;Beggiatoa:贝吉亚托菌属;Desulfocurvibacter:脱硫杆菌属;TP:血清总蛋白含量 serum TP content;V/C:十二指肠V/C值 duodenal V/C ratio;血清IgG含量:serum IgG content;BW:体重(49日龄) body weight (49 days of age);血清IgA含量:serum IgA content。

*表示显著相关(P<0.05)。* mean significant correlation (P<0.05).

Fig.13 Correlation analysis of cecal key differential microorganisms with growth performance indexes, duodenal morphology indexes and serum immune indexes

3 讨论

3.1 PLP对黄羽肉鸡生长性能的影响

车前草的有效成分包括黄酮类、生物碱、萜类、酚酸衍生物、环烯醚醚糖苷、脂肪酸和多糖,其中多糖是最丰富的成分,其多种功能已被广泛研究和报道[21]。研究表明,PLP具有调节糖代谢和脂代谢、抗肿瘤、调节免疫功能、诱导DC细胞成熟等多种生物学活性[22-23]。本研究发现,饲粮中添加1%的PLP可显著提高黄羽肉鸡的ADG,增加ADFI,显著降低F/G,这可能与PLP促进免疫器官发育和小肠发育有关。此外,也有研究表明PLP影响肝脏中抗氧化酶的活性,改善高脂肪饮食小鼠代谢指标[24],提示PLP可能通过影响机体代谢从而调控体重。虽然目前无相关研究表明PLP可以提高肉鸡或其他畜禽的生长性能,但已有研究显示许多天然多糖可促进动物的生长发育,比如海带多糖可提高肉鸭的生长性能[25],用黄芪、党参、山楂组成的中药复方多糖可显著提高肉仔鸡的ADG[26],浒苔多糖可显著提升生长猪[27]和肉牛[28]的生长性能。

3.2 PLP对黄羽肉鸡免疫器官发育和十二指肠形态的影响

免疫器官指数是反映免疫器官发育的重要指标之一,在本研究中发现,饲粮中添加1%的PLP可提高21日龄时黄羽肉鸡法氏囊指数、脾脏指数和肝脏指数,其中法氏囊指数显著提高,而在49日龄时PLP组和对照组免疫器官指数无显著差异,表明PLP可促进黄羽肉鸡免疫器官的早期发育。肠道的形态结构是动物有效消化吸收的关键,完善且健康的肠道结构能促进动物的生长发育,是维持和提高动物生产性能的基础。肠道形态发育一般可通过测定绒毛高度、隐窝深度和V/C值来评估,较高的V/C值被认为可以有效地分泌黏液蛋白,保护肠道结构,更好地发挥消化吸收功能。本研究发现,饲粮中添加1%的PLP显著提高了黄羽肉鸡十二指肠绒毛高度和V/C值,同时降低了十二指肠隐窝深度,表明PLP可改善黄羽肉鸡肠道结构,促进肠道发育,提示PLP可促进肠道发育,改善小肠的消化吸收功能,从而促进黄羽肉鸡增重。

3.3 PLP对黄羽肉鸡血清免疫指标的影响

血清TP含量高,表明蛋白质的合成和代谢能力强劲,有利于机体对蛋白质的吸收和利用,可以作为肝脏蛋白质合成能力提高的标志,有利于动物生长和饲料转化效率提高[29]。本研究发现,饲粮中添加1%的PLP提高了黄羽肉鸡血清TP含量,说明PLP可能通过促进氮代谢,从而提高饲料转化效率,促进黄羽肉鸡生长。此外,本研究结果显示,PLP可提高黄羽肉鸡血清IgG和IgA含量,说明PLP可增强黄羽肉鸡的体液免疫功能,这可能与PLP具有促进肉鸡法氏囊早期发育的能力有关。相似的,有研究发现PLP对环磷酰胺所致免疫低下小鼠有免疫增强作用[30]。研究显示,PLP通过丝裂原活化蛋白激酶(MAPK)和核转录因子-κB(NF-κB)信号通路诱导树突状细胞成熟,并通过改善对幼稚T淋巴细胞的抗原呈递来增强免疫应答[23,31],表明PLP对机体体液免疫和细胞免疫功能均有调节作用。本课题前期研究也发现PLP可以提高肉鸡血清新城疫和禽流感疫苗抗体效价[19]

3.4 PLP对黄羽鸡盲肠微生物结构的影响

肠道微生物在肉鸡的生长发育、肠道免疫、维持肠道的完整性和促进消化和吸收方面起着至关重要的作用。多糖通常在胃肠道中抵抗消化,并可以到达结肠,体内和体外的研究均表明从车前草中提取的多糖具有抗消化性[32-33],因此多糖可以在肠道发挥其生物学活性,同时对肠道微生物产生一定影响。
在本研究中,PLP的添加对黄羽肉鸡盲肠微生物的α多样性没有显著影响,但对多种肠道微生物的相对丰度具有显著的调控作用,PLP组肉鸡盲肠Lachnoclostrdium相对丰度高于对照组,而Lachnoclostrdium可产生短链脂肪酸(SCFAs),对促进肠道有益菌生长和维持肠道健康有重要作用[34-35];PLP组肉鸡盲肠Clostridium相对丰度显著高于对照组,Clostridium作为肠道共生菌,其代谢产物具有改善肠道免疫及维持肠道内稳态的特性,Clostridium scindens不仅可以改变大肠上皮内淋巴细胞的分布,还能促进结肠黏膜Treg细胞的累积,提高结肠中转化生长因子-β的含量[36]。既往研究表明,PLP可以提高小鼠结肠内发酵乳杆菌和罗伊氏乳杆菌的相对丰度[37],促进人体内嗜酸乳杆菌、植物乳杆菌、清酒乳杆菌和短乳杆菌的增殖[38]。而本研究发现,PLP降低了肉鸡盲肠中黏膜乳酸菌的相对丰度,表明PLP对不同乳酸菌的具有不同的调节功能。同时,本研究还发现,饲粮中添加1%的PLP增加了某些有益菌的相对丰度,如Clostridium scindens、布氏瘤胃球菌(Ruminococcus bromii)和黄化瘤胃球菌(Ruminococcus flavefaciens)。以上结果表明,PLP可以促进黄羽肉鸡盲肠部分益生菌的生长,具有保护肠道健康的作用。

3.5 PLP对黄羽肉鸡盲肠微生物群功能的影响

本研究发现,在CAZy功能注释中,所有样本的酶解基因都主要富集在GHs和GTs家族基因中;功能差异分析显示,PLP显著增加了CBM13、CBM6、GH112、GH30_1、GH113、GH13_18和GT76基因的相对丰度,肠道微生物群的基因组中有大量的GHs,可以很好地利用膳食多糖[39],而PLP可能通过增加肠道微生物中这些酶的活性来提高对碳水化合物降解,从而促进肉鸡肠道对营养物质的消化和吸收。肠道微生物发酵产生的SCFAs主要包括醋酸、丙酸和丁酸,这些SCFAs不仅是肠道黏膜细胞的主要能量来源,而且有助于调节肠道环境的pH,抑制有害菌增殖,具有抗炎作用。在一项研究中发现,PLP显著增加了小鼠盲肠和结肠中总SCFAs、丙酸和正丁酸的浓度[40]。本研究发现,PLP可以提高黄羽肉鸡盲肠Roseburia的相对丰度,而Roseburia是一类产生SCFAs、分解不可消化的碳水化合物的重要微生物,这表明PLP可能促进肠道菌群产生更多SCFAs,抑制有害菌增殖,从而保护肠道健康。

4 结论

饲粮中添加1%的PLP可以提高黄羽肉鸡的免疫功能,调控盲肠中多种有益菌的增殖以及CBMs、GHs、GTs家族基因的表达,促进黄羽肉鸡的生长发育。
[1]
XU X M, WANG L J, ZHANG K, et al. Managing metabolic diseases:the roles and therapeutic prospects of herb-derived polysaccharides[J]. Biomedicine & Pharmacotherapy, 2023,161:114538.

[2]
JIA D S, TANG Y J, QIN F X, et al. Ganoderma lucidum polysaccharide alleviates Cd toxicity in common carp (Cyprinus carpio):neuropeptide,growth performance and lipid accumulation[J]. Comparative Biochemistry and Physiology Part C:Toxicology & Pharmacology, 2023,271:109663.

[3]
TU J, HE Y F, ZHANG H F, et al. Anti-tumor effect of Crocus sativus petals polysaccharides by reconstructing tumor microenvironment[J]. International Journal of Biological Macromolecules, 2023,248:125878.

[4]
LIU L Q, LI M Z, YU M L, et al. Natural polysaccharides exhibit anti-tumor activity by targeting gut microbiota[J]. International Journal of Biological Macromolecules, 2019,121:743-751.

[5]
NGUYEN T P, PHAN H N, DO T D, et al. Polysaccharide and ethanol extracts of Anoectochilus formosanus Hayata:antioxidant,wound-healing,antibacterial,and cytotoxic activities[J]. Heliyon, 2023, 9(3):e13559.

[6]
MZOUGHI Z, MAJDOUB H. Pectic polysaccharides from edible halophytes:insight on extraction processes,structural characterizations and immunomodulatory potentials[J]. International Journal of Biological Macromolecules, 2021,173:554-579.

[7]
GAMAGE H K A H, TETU S G, CHONG R W W, et al. Fiber supplements derived from sugarcane stem,wheat dextrin and psyllium husk have different in vitro effects on the human gut microbiota[J]. Frontiers in Microbiology, 2018,9:1618.

[8]
TAMARGO A, CUEVA C, ALVAREZ M D, et al. Physical effects of dietary fibre on simulated luminal flow,studied by in vitro dynamic gastrointestinal digestion and fermentation[J]. Food & Function, 2019, 10(6):3452-3465.

[9]
LUKOVA P K, KARCHEVA-BAHCHEVANSKA D P, BIVOLARSKI V P, et al. Enzymatic hydrolysis of water extractable polysaccharides from leaves of Plantago major L[J]. Folia Medica, 2017, 59(2):210-216.

[10]
ARMITA F, MOHAMMAD S, ASIE S, et al. Evaluation of antiinflammatory effects of leaf and seed extracts of Plantago major on acetic acid induced ulcerative colitis in rats[J]. Ethnopharmacol, 2022,298:115595.

[11]
JI X L, HOU C Y, GUO X D. Physicochemical properties,structures,bioactivities and future prospective for polysaccharides from Plantago L. (Plantaginaceae):a review[J]. International Journal of Biological Macromolecules, 2019,135:637-646.

[12]
YU Y, SHEN M Y, SONG Q Q, et al. Biological activities and pharmaceutical applications of polysaccharide from natural resources:a review[J]. Carbohydrate Polymers, 2018,183:91-101.

[13]
CHEN F, HUANG G L. Preparation and immunological activity of polysaccharides and their derivatives[J]. International Journal of Biological Macromolecules, 2018,112:211-216.

[14]
OLIPHANT K, ALLEN-VERCOE E. Macronutrient metabolism by the human gut microbiome:major fermentation by-products and their impact on host health[J]. Microbiome, 2019, 7(1):91.

[15]
HU J, NIE S, LI C, et al. In vitro fermentation of polysaccharide from the seeds of Plantago asiatica L. by human fecal microbiota[J]. Food Hydrocolloids, 2013, 33(2):384-392.

[16]
PENG Q, ZENG X F, ZHU J L, et al. Effects of dietary Lactobacillus plantarum B1 on growth performance,intestinal microbiota,and short chain fatty acid profiles in broiler chickens[J]. Poultry Science, 2016, 95(4):893-900.

[17]
RAMLUCKEN U, RAMCHURAN S, MOONSAMY G, et al. A novel Bacillus based multi-strain probiotic improves growth performance and intestinal properties of Clostridium perfringens challenged broilers[J]. Poultry Science, 2020, 99(1):331-341.

[18]
TURULA H, WOBUS C E. The role of the polymeric immunoglobulin receptor and secretory immunoglobulins during mucosal infection and immunity[J]. Viruses, 2018, 10(5):237-241.

[19]
陈家磊, 熊霞, 刘思洋, 等. 车前草多糖对肉鸡免疫功能的影响[J]. 现代畜牧兽医, 2022(4):44-49.

CHEN J L, XIONG X, LIU S Y, et al. Effect of Plantago asiatica L. polysaccharide on immune function of broilers[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2022(4):44-49. (in Chinese)

[20]
罗春萍, 陆友利, 王星星. 苯酚-硫酸法快速测定多糖方法的优化[J]. 化工管理, 2021(3):90-91,94.

LUO C P, LU Y L, WANG X X. Optimization of the method for rapid polysaccharide determination by the phenol-sulfuric acid method[J]. Chemical Industry Management, 2021(3):90-91,94. (in Chinese)

[21]
ZHANG S S, HU J L, SUN Y G, et al. Review of structure and bioactivity of the Plantago (Plantaginaceae) polysaccharides[J]. Food Chemistry, 2021,12:100158.

[22]
ZHANG J T, GUI J W, GAO J F, et al. Polysaccharides of Plantago asiatica enhance antitumor activity via regulating macrophages to M1-like phenotype[J]. Biomedicine & Pharmacotherapy, 2023,159:114246-114257.

[23]
JIANG L M, HUANG D F, NIE S P, et al. Polysaccharide isolated from seeds of Plantago asiatica L. induces maturation of dendritic cells through MAPK and NF-κB pathway[J]. Saudi Journal of Biological Sciences, 2018, 25(6):1202-1207.

[24]
张力凡, 朱俊义. 车前草多糖对高脂日粮饲喂小鼠脂代谢和氧化应激的影响[J]. 中国兽医杂志, 2023, 59(12):129-134.

ZHANG L F, ZHU J Y. Effects of plantain polysaccharide on lipid metabolism and oxidative stress in mice fed with high-fat diet[J]. Chinese Journal of Veterinary Medicine, 2023, 59(12):129-134. (in Chinese)

[25]
LIU A X, KIM E, CUI J M, et al. Laminaria japonica polysaccharide improved the productivities and systemic health of ducks by mediating the gut microbiota and metabolome[J]. Journal of Agricultural and Food Chemistry, 2023, 71(19):7382-7395.

[26]
方磊涵, 王振, 王留, 等. 中药复方多糖对肉仔鸡生长性能和免疫功能的影响[J]. 中国兽医杂志, 2018, 54(9):56-59.

FANG L H, WANG Z, WANG L, et al. Effect of TCM compound polysaccharides on growth performance and immune function in broilers[J]. Chinese Journal of Veterinary Medicine, 2018, 54(9):56-59. (in Chinese)

[27]
郑晓冬. 浒苔多糖对生长猪生长性能、肉质品质和消化酶活性的影响[J]. 中国饲料, 2024(16):37-40.

ZHENG X D. The effects of polysaccharides from Enteromorpha prolifera on growth performance,meat quality,and digestive enzyme activity in growing pigs[J]. China Feed, 2024(16):37-40. (in Chinese)

[28]
李耀光, 郭春燕. 浒苔多糖对肉牛生长性能、血清生化指标和瘤胃发酵参数的影响[J]. 中国饲料, 2024(16):25-28.

LI Y G, GUO C Y. The effects of enteromorpha polysaccharide on growth performance,serum biochemical indicators,and rumen fermentation parameters of beef cattle[J]. China Feed, 2024(16):25-28. (in Chinese)

[29]
黄文琴, 祁敏丽, 吕小康, 等. 饲粮能量和蛋白质水平对21-60日龄湖羊生长、消化性能及血清指标的影响[J]. 畜牧兽医学报, 2019, 50(1):105-114.

HUANG W Q, QI M L, XIAOKANG L, et al. Effects of dietary energy and protein levels on the growth,digestion performance and serum indexes of 21-60 days old Hu sheep lambs[J]. Chinese Journal of Animal and Veterinary Sciences, 2019, 50(1):105-114. (in Chinese)

[30]
董升, 梁晗业, 王禹捷, 等. 车前草粗多糖对环磷酰胺所致免疫低下小鼠的免疫增强作用[J]. 食品工业科技, 2018, 39(18):289-293.

DONG S, LIANG H Y, WANG Y J, et al. Immunological enhancement of crude polysaccharides from Plantago asiatica L.on immunosuppressed mice induced by cyclophosphamide[J]. Science and Technology of Food Industry, 2018, 39(18):289-293. (in Chinese)

[31]
HUANG D F, TANG Y F, NIE S P, et al. Effect of phenylethanoid glycosides and polysaccharides from the seed of Plantago asiatica L. on the maturation of murine bone marrow-derived dendritic cells[J]. European Journal of Pharmacology, 2009, 620(1/2/3):105-111.

[32]
WONG J M W, JENKINS D J A. Carbohydrate digestibility and metabolic effects[J]. Journal of Nutrition, 2007, 137(Suppl.11):2539S-2546S.

[33]
OGATA M, OGITA T, TARI H, et al. Supplemental psyllium fibre regulates the intestinal barrier and inflammation in normal and colitic mice[J]. British Journal of Nutrition, 2017, 118(9):661-672.

[34]
CHEN L L, ZHOU X Y, WANG Y W, et al. Propionate and butyrate produced by gut microbiota after probiotic supplementation attenuate lung metastasis of melanoma cells in mice[J]. Molecular Nutrition & Food Research, 2021, 65(15):e2100096.

[35]
SERINO M. SCFAs—the thin microbial metabolic line between good and bad[J]. Nature Reviews Endocrinology, 2019, 15(6):318-319.

[36]
ATARASHI K, TANOUE T K H, SHIMA T, et al. Induction of colonic regulatory T cells by indigenous Clostridium species[J]. Science, 2011, 331(6015):337-341.

[37]
HU J L, NIE S P, WU Q M, et al. Polysaccharide from seeds of Plantago asiatica L. affects lipid metabolism and colon microbiota of mouse[J]. Journal of Agricultural and Food Chemistry, 2014, 62(1):229-234.

[38]
LUKOVA P, NIKOLOVA M, PETIT E, et al. Prebiotic activity of poly-and oligosaccharides obtained from Plantago major L. leaves[J]. Applied Sciences (Switzerland), 2020, 10(8):2648.

[39]
OLIPHANT K, ALLEN-VERCOE E. Macronutrient metabolism by the human gut microbiome:major fermentation by-products and their impact on host health[J]. Microbiome, 2019, 7(1):91.

[40]
HU J L, NIE S P, XIE M Y. High pressure homogenization increases antioxidant capacity and short-chain fatty acid yield of polysaccharide from seeds of Plantago asiatica L[J]. Food Chemistry, 2013, 138(4):2338-2345.

文章导航

/