研究论文

代乳粉饲喂量对42日龄断奶牦牛犊牛生长性能和瘤胃发育的影响

  • 别欣亚 , 1 ,
  • 袁金泉 1 ,
  • 周亚楠 1 ,
  • 徐玉麟 1 ,
  • 谷颖超 1 ,
  • 周玉青 2 ,
  • 丁海玲 1 ,
  • 杨得玉 1 ,
  • 刘书杰 1 ,
  • 崔占鸿 , 1, *
展开
  • 1 青海大学畜牧兽医科学院,农业农村部青藏高原放牧牦牛藏羊动物营养与饲草料重点实验室,青海省牦牛工程技术研究中心,青海省高原放牧家畜动物营养与饲料科学重点实验室,西宁 810016
  • 2 海北藏族自治州高原生态畜牧业科技示范园管委会,海晏 810299
* 崔占鸿,研究员,博士生导师,E-mail:

别欣亚(2000—),女,河南南阳人,硕士研究生,从事反刍动物营养与饲料科学的研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-10-31

  网络出版日期: 2025-05-14

基金资助

国家自然科学基金项目(32260853)

青海省重大科技专项(2021-NK-A5)

青海省“昆仑英才∙高端创新创业人才”培养领军人才

Effects of Milk Replacer Feeding Amount on Growth Performance and Rumen Development of 42-Day-Old Weaned Yak Calves

  • BIE Xinya , 1 ,
  • YUAN Jinquan 1 ,
  • ZHOU Ya'nan 1 ,
  • XU Yulin 1 ,
  • GU Yingchao 1 ,
  • ZHOU Yuqing 2 ,
  • DING Hailing 1 ,
  • YANG Deyu 1 ,
  • LIU Shujie 1 ,
  • CUI Zhanhong , 1, *
Expand
  • 1 Key Laboratory of Plateau Grazing Animal Nutrition and Feed Science of Qinghai Province, Yak Engineering Technology Research Center of Qinghai Province, Ministry of Agriculture and Rural Affairs Key Laboratory of Animal Nutrition and Forage-Feed of Grazing Yak and Tibetan Sheep in Qinghai-Tibetan Plateau, Qinghai Academy of Animal Husbandry and Veterinary Sciences in Qinghai University, Xining 810016, China
  • 2 Management Committee of Plateau Ecological Animal Husbandry Science and Technology Demonstration Park, Haibei Tibetan Autonomous Prefecture, Haiyan 810299, China
* professor, E-mail:

Received date: 2024-10-31

  Online published: 2025-05-14

摘要

本试验旨在探究代乳粉饲喂量对42日龄断奶牦牛犊牛生长性能和瘤胃发育的影响。选取14头体重[(36.30±1.09) kg]相近、健康的42日龄断奶牦牛犊牛(公),随机分为2组,每组7头牛。2组代乳粉饲喂量分别为0.8%(dC组)和1.2%平均体重(dH组)。预试期30 d,正试期112 d。结果表明:1)dH组的终末体重、平均日增重、净增重、体斜长和管围均显著高于dC组(P<0.05),胸围极显著高于dC组(P<0.01)。2)dH组的瘤胃纤维素酶和木聚糖酶活性显著高于dC组(P<0.05)。3)在门水平上,dH组的瘤胃厚壁菌门的相对丰度显著高于dC组(P<0.05);在属水平上,dH组的瘤胃毛螺菌科-ND3007群的相对丰度显著高于dC组(P<0.05)。4)在代谢组学中,主要的差异代谢通路有:嘌呤代谢、硫胺素代谢、甘油磷脂代谢、天冬氨酸代谢、色氨酸代谢、维生素B6代谢和鞘脂代谢。由此可见,提高代乳粉饲喂量能够改善牦牛犊牛瘤胃发酵功能,增加瘤胃毛螺菌科-ND3007群的相对丰度,促进丁酸的生成和纤维素的分解,从而提高牦牛犊牛生长性能。

本文引用格式

别欣亚 , 袁金泉 , 周亚楠 , 徐玉麟 , 谷颖超 , 周玉青 , 丁海玲 , 杨得玉 , 刘书杰 , 崔占鸿 . 代乳粉饲喂量对42日龄断奶牦牛犊牛生长性能和瘤胃发育的影响[J]. 动物营养学报, 2025 , 37(5) : 3136 -3150 . DOI: 10.12418/CJAN2025.260

Abstract

This experiment was conducted to investigate the effects of milk replacer feeding amount on growth performance and rumen development of 42-day-old weaned yak calves. Fourteen healthy 42-day-old weaned yak calves (male) with similar body weight [(36.30±1.09) kg] were selected and randomly divided into 2 groups with 7 calves in each group. The milk replacer feeding amount in 2 groups were 0.8% (dC group) and 1.2% average body weight (dH group), respectively. The pre-experimental period lasted for 30 days, and the experimental period lasted for 112 days. The results showed as follows: 1) the final body weight, average daily gain, net weight gain, body oblique length and cannon circumference of dH group were significantly higher than those of dC group (P<0.05), and the chest circumference was significantly higher than that of dC group (P<0.01). 2) The activities of cellulase and xylanase in rumen of dH group were significantly higher than those of dC group (P<0.05). 3) At the phylum level, the rumen Firmicutes relative abundance of dH group was significantly higher than that of dC group (P<0.05); at the genus level, rumen Lachnospiraceae_ND3007_group relative abundance of dH group was significantly higher than that of dC group (P<0.05). 4) In metabolomics, the main differential metabolic pathways were: purine metabolism, thiamine metabolism, glycerophospholipid metabolism, aspartic acid metabolism, tryptophan metabolism, vitamin B6 metabolism and sphingolipid metabolism. In summary, increasing the milk replacer feeding amount can improve the rumen fermentation function of yak calves, increase the rumen Lachnospiraceae_ND3007_group relative abundance, and promote the generation of butyric acid and the decomposition of cellulase, thereby improving the growth performance of yak calves.

牦牛主要栖息在海拔高、气压低、生长季节短暂、寒冷季节漫长以及饲料稀缺等极端恶劣环境的高冷山区草原,因此营养常处于匮乏状态,严重阻碍了牦牛犊牛的生长发育[1]。母乳是牦牛犊牛早期生长的主要营养来源,由于牦牛每天平均产奶量仅有1.29 kg,且放牧时能够获得的营养有限,所以仅靠母乳很难达到犊牛的生长发育需求[2]。随着犊牛生长,营养供给与需求之间的差距会越来越大,如果不对犊牛进行适当的营养补充,其生长发育将受到严重影响,这也会进一步影响日后的生长性能。
断奶前营养策略可以调控犊牛断奶及断奶后的生长性能和营养物质吸收利用,早期代乳粉或母乳的饲喂量及采食液体饲料中的营养成分与犊牛断奶前或断奶后的生长性能密切相关。代乳粉的生产主要使用脱脂奶粉和乳清蛋白粉,同时加入精选的植物性蛋白质和植物油。在经过均质化、杀菌和喷雾干燥等一系列工艺处理后,能够提供与天然乳汁相似的营养成分,充分满足幼小动物成长所需的营养和能量[3]。对于代乳粉的饲喂量,在羊和肉牛上已经有了一定基础。张千[4]发现增加液体饲料的饲喂量能加速羔羊断奶前的生长,进而提升其生长性能。曹学浩等[5]发现利用犊牛饲喂站同时增加代乳粉的饲喂量,有增加犊牛生长指标的趋势。许先查等[6]发现合理的液体饲料饲喂量对犊牛的生长性能有促进作用,并且有助于犊牛的消化吸收过程。目前本课题组对使用代乳粉饲喂牦牛犊牛已有一定研究基础[7-9],但关于代乳粉饲喂量的研究较少,因此,本试验以代乳粉饲喂量为切入点,针对牦牛犊牛的生理特点和营养需求,研究并优化了代乳粉的定量饲喂技术。从宏观到微观,将微生物学和代谢组学相结合,系统阐释了代乳粉饲喂量调控牦牛犊牛的瘤胃发育,为提高牦牛犊牛的生存率和生长发育速度,减轻母牛哺乳负担,提高繁殖效率做准备,从而为青藏高原地区牦牛犊牛舍饲养殖中科学调控其营养水平提供重要依据。

1 材料与方法

1.1 试验设计

本试验已通过青海省畜牧兽医科学院试验动物管理委员会批准,审批号:2024-QHMKY-002。
选取14头体重[(36.30±1.09) kg]相近、健康的42日龄牦牛犊牛(公),采用随机分组设计分为2组,每组7头牛。2组代乳粉饲喂量分别为0.8%(dC组)和1.2%平均体重(dH组),代乳粉饲喂量参照本课题组前期工作设定[7-9]。预试期30 d,正试期112 d。试验犊牛每隔15 d称重后依据平均体重调整代乳粉饲喂量,自由采食苜蓿干草和开食料。代乳粉和开食料均由北京精准动物营养研究中心提供,苜蓿干草则由青海奔盛农牧科技有限责任公司供应。开食料、苜蓿干草和代乳粉的营养水平见表1,其中粗蛋白质(CP)、粗脂肪(EE)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、钙(Ca)、磷(P)含量分别参照GB/T 6432—2018、GB/T 6433—2006、GB/T 20806—2022、NY/T 1459—2022、GB/T 6436—2018、GB/T 6437—2018中方法进行测定。
表1 开食料、苜蓿干草和代乳粉的营养水平(干物质基础)

Table 1 Nutrient levels of starter, alfalfa hay and milk replacer (DM basis) %

营养水平Nutrient levels 代乳粉Milk replacer 开食料Starter 苜蓿干草Alfalfa hay
粗蛋白质CP 26.24 21.34 13.68
粗脂肪EE 27.79 7.01 5.79
中性洗涤纤维NDF 15.55 43.00
酸性洗涤纤维ADF 4.90 29.39
钙Ca 2.50 0.80 1.45
磷P 1.40 0.55 0.34

1.2 饲养管理

试验时间为2023年6月至2023年11月,牦牛犊牛饲养于青海省海北州海晏县高原现代生态畜牧业科技试验示范园。试验开始时,称量牦牛犊牛体重,根据代乳粉饲喂量进行相应的饲喂处理。试验期间牦牛犊牛单栏舍饲,预试期每天分早、中、晚(07:00、12:00、17:00)3次饲喂。正式试验后每天分为早、晚(07:00和17:00)2次饲喂,代乳粉饲喂比例按照平均体重的0.8%和1.2%计算,每隔15 d称重后依据平均体重调整代乳粉饲喂量。代乳粉与温水按1∶5比例冲泡,所有犊牛使用奶瓶人工饲喂。每天在饲喂代乳粉后,补充开食料和苜蓿干草,开食料为粉料,开食料和苜蓿干草的比例为3∶7,供犊牛自由采食。当牦牛犊牛平均体重达到60 kg以上、6月龄且采食量达到1 kg以上时,每组随机选取5头进行屠宰。

1.3 样品采集

牦牛犊牛于屠宰前1天16:00断食断水,次日进行屠宰。在瘤胃内部取瘤胃液,用4层纱布过滤后一部分用酸度计立即测定pH,另一部分分装在离心管内立即投入液氮保存,用于后续瘤胃发酵参数测定和16S rRNA高通量测序。取瘤胃中部的内容物于5 mL无菌冻存管并置液氮中保存,用于后续消化酶活性和代谢组学的测定。

1.4 指标测定及方法

1.4.1 生长性能

试验开始和结束时,称量牦牛犊牛体重,计算平均日增重和净增重;屠宰前1天,记录犊牛的体高、体斜长、胸围和管围,测定方法参照赵芸君等[10]

1.4.2 瘤胃发酵参数

瘤胃氨态氮(NH3-N)含量采用冯宗慈等[11]的比色法测定,微生物蛋白(MCP)含量采用考马斯亮蓝法进行测定,挥发性脂肪酸(VFA)含量采用气相色谱仪(GC-2014,日本岛津公司)测定[12]

1.4.3 瘤胃消化酶活性

使用酶联免疫吸附测定试验(ELISA)测定瘤胃中纤维素酶、内切葡聚糖酶、淀粉酶、木聚糖酶活性,测定方法参照周亚楠等[13]

1.4.4 瘤胃微生物区系

将1管5 mL的瘤胃液样本在干冰条件下,送至上海欧易生物技术公司进行测序分析。利用Illumina NovaSeq 6000测序平台,对瘤胃液中的细菌扩增子进行深度测序。在构建测序文库的过程中,选用MagPure Soil DNA LQ Kit试剂盒,并遵循标准的操作流程:从样本的初步处理开始,依次进行DNA的提取与质量评估、PCR扩增、产物纯化、文库构建及其质量验证,最终将文库送至Illumina测序平台进行高通量测序。采用了特定的通用引物343F(5'-TACGGRAGGCAGCAG-3')和798R(5'-AGGGTATCTAATCCT-3')扩增16S rRNA基因的V3~V4可变区进行PCR反应。经过严格的质量控制流程,确保扩增产物符合测序要求后,将其送入测序仪进行测序。测序完成后,对下机数据进行均一化处理,以确保各样本之间的数据可比性。随后进行Alpha多样性分析和Beta多样性分析,以全面评估瘤胃液中细菌群落的多样性和结构特征。

1.4.5 瘤胃代谢组学

瘤胃内容物取60 mg置于1.5 mL离心管中,随后加入2颗小钢珠及600 μL甲醇-水溶液(体积比为4∶1,含4 μg/mL的混合内标)。将此离心管在-40 ℃冰箱中预冷2 min后,放入研磨机,以60 Hz的频率研磨2 min。在冰水浴中进行超声提取10 min,然后于-40 ℃静置2 h。以13 000×g的速度在4 ℃下离心20 min,使用注射器吸取150 μL上清液,并通过0.22 μm的有机相针孔过滤器过滤,将滤液转移至进样小瓶中,并在-80 ℃下保存,直至进行液相色谱-质谱(LC-MS)分析。
分析采用Waters ACQUITY UPLC I-Class plus与Thermo QE HF超高效液相串联高分辨质谱仪组成的液质联用系统。色谱柱选用ACQUITY UPLC HSS T3(100 mm×2.1 mm,1.8 μm),柱温设定为45 ℃。流动相由0.1%甲酸(A相)和乙腈(B相)组成,流速为0.35 mL/min,进样体积为2 μL。质谱仪的质量扫描范围设置为70~1 050 m/z,一级质谱扫描分辨率为60 000,二级质谱扫描分辨率为15 000,碰撞能量分别设定为10、20和40 eV。LC-MS数据由Progenesis QI V2.3软件进行处理,并参考人类代谢组数据库(Human Metabolome Database,HMDB)、Lipidmaps (V2.3)、Metlin以及自建数据库,基于精确的质荷比、次级片段和同位素分布对化合物进行鉴定。经过定量结果的标准化处理后,最终获得代谢物的鉴定和相对定量结果,代谢组学数据分析由上海鹿明生物科技有限公司进行。

1.5 数据处理与统计分析

采用Excel 2019软件对数据进行初步整理,采用SPSS 27.0软件的独立样本t检验分析方法对2组牦牛犊牛各个指标的显著性进行分析,数据均以平均值±标准误表示,P<0.05作为显著差异的标准,P<0.01作为极显著差异的标准,0.05≤P<0.10则具有显著差异趋势。

2 结果与分析

2.1 代乳粉饲喂量对牦牛犊牛生长性能的影响

表2可知,dH组的终末体重、平均日增重、净增重、体斜长和管围均显著高于dC组(P<0.05),胸围极显著高于dC组(P<0.01),体高有高于dC组的趋势(0.05≤P<0.10)。
表2 代乳粉饲喂量对牦牛犊牛生长性能的影响

Table 2 Effects of milk replacer feeding amount on growth performance of yak calves

项目Items 组别Groups PP-value
dC dH
初始体重Initial body weight/kg 35.00±1.14 37.60±1.03 0.129
终末体重Final body weight/kg 69.00±0.99b 76.80±2.14a 0.011
平均日增重Average daily gain/(g/d) 323.81±14.21b 373.33±15.25a 0.045
净增重Net weight gain/kg 39.20±1.56b 45.10±1.47a 0.025
体斜长Body oblique length/cm 85.90±0.24b 87.90±0.71a 0.029
体高Body height/cm 82.40±1.21 86.20±1.15 0.052
胸围Chest circumference/cm 102.50±1.58B 109.30±1.11A 0.008
管围Cannon circumference/cm 11.50±0.00b 12.10±0.24a 0.040

同行数据肩标不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean significant difference (P<0.01), while with no letter superscript mean no significant difference (P>0.05). The same as below.

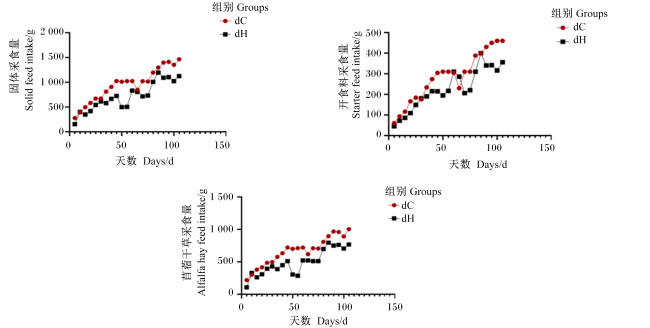
图1可知,随着日龄增加,2组牦牛犊牛固体采食量均呈现上升趋势,dC组的固体采食量高于dH组;开食料采食量和苜蓿干草采食量变化趋势与固体采食量总体相似,但dH组的开食料采食量于60~67 d时高于dC组。
图1 牦牛犊牛采食量

Fig.1 Feed intake of yak calves

2.2 代乳粉饲喂量对牦牛犊牛瘤胃发酵参数的影响

表3可知,dH组的瘤胃丁酸和总挥发性脂肪酸(TVFA)含量有高于dC组的趋势(0.05≤P<0.10),2组间其他瘤胃发酵参数均差异不显著(P>0.05)。
表3 代乳粉饲喂量对牦牛犊牛瘤胃发酵参数的影响

Table 3 Effects of milk replacer feeding amount on rumen fermentation parameters of yak calves

项目Items 组别Groups PP-value
dC dH
pH 5.87±0.18 5.92±0.79 0.823
氨态氮NH3-N/(mg/dL) 5.39±0.31 5.43±0.31 0.932
微生物蛋白MCP/(mg/dL) 11.12±0.51 11.11±0.61 0.991
乙酸Acetate/(mmol/L) 14.62±2.62 27.89±5.86 0.732
丙酸Propionate/(mmol/L) 3.40±0.60 6.71±1.50 0.134
丁酸Butyrate/(mmol/L) 2.35±0.42 4.01±0.74 0.082
总挥发性脂肪酸TVFA/(mmol/L) 22.33±3.81 40.89±8.40 0.074
乙酸/丙酸Acetate/propionate 3.66±0.30 4.16±0.10 0.143

2.3 代乳粉饲喂量对牦牛犊牛瘤胃消化酶活性的影响

表4可知,dH组的瘤胃纤维素酶和木聚糖酶活性显著高于dC组(P<0.05)。2组间瘤胃淀粉酶和内切葡聚糖酶活性差异不显著(P>0.05)。
表4 代乳粉饲喂量对牦牛犊牛瘤胃消化酶活性的影响

Table 4 Effects of milk replacer feeding amount on rumen digestive enzyme activities of yak calves

项目Items 组别Groups PP-value
dC dH
纤维素酶Cellulase/(U/mL) 245.21±18.49b 346.21±16.60a 0.015
淀粉酶Amylase/(U/L) 483.03±50.77 510.89±52.02 0.712
木聚糖酶Xylanase/(U/mL) 382.12±16.29b 459.00±15.50a 0.027
内切葡聚糖酶Endoglucanase/(U/L) 90.52±11.54 89.61±7.81 0.950

2.4 代乳粉饲喂量对牦牛犊牛瘤胃微生物区系的影响

2.4.1 操作分类单元(OTU)聚类及基础分析结果

样本在高通量测序后,在97%的距离上,从10个不同的样本总共获得3 708个OTU,数据处理后得到800 188个原始数列,质控后得到582 719个有效序列,质控有效率为72.82%。

2.4.2 牦牛犊牛瘤胃微生物OTU Venn图

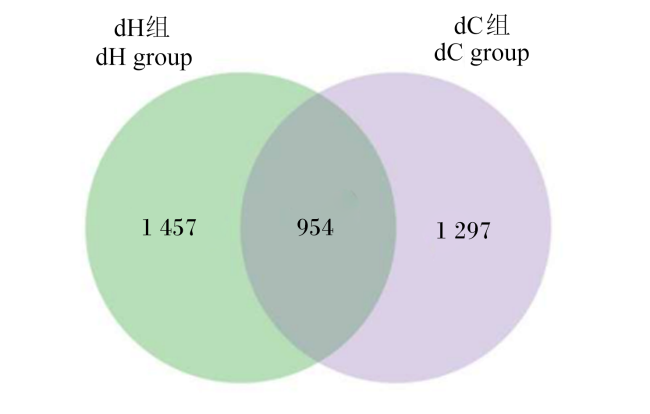
图2可知,dC组和dH组的OTU数目分别为2 411和2 251个,2组相同的OTU数目为954个,dC组和dH组特有的OTU数目分别为1 457和1 297个。
图2 牦牛犊牛瘤胃微生物OTU Venn图

Fig.2 OTU Venn diagram of rumen microorganisms of yak calves

2.4.3 瘤胃微生物Alpha多样性指数

表5可知,覆盖率大于0.99,说明样本测序量合理;而2组间瘤胃微生物的Chao1指数、ACE指数、Shannon指数、Simpson指数均无显著差异(P>0.05)。
表5 牦牛犊牛瘤胃微生物Alpha多样性指数

Table 5 Alpha diversity index of rumen microorganisms of yak calves

项目Items 组别Groups PP-value
dC dH
Chao1指数Chao1 index 656.64±51.11 731.40±44.88 0.304
ACE指数ACE index 655.89±50.53 730.66±44.37 0.298
覆盖率Good's coverage 0.99±0.00A 1.00±0.00B 0.008
Shannon指数Shannon index 7.08±0.36 7.40±0.31 0.513
Simpson指数Simpson index 0.97±0.01 0.97±0.01 0.592

2.4.4 瘤胃微生物优势菌门和菌属相对丰度

表6可知,dH组的瘤胃厚壁菌门和毛螺菌科-ND3007群的相对丰度显著高于dC组(P<0.05),瘤胃螺旋体门的相对丰度有低于dH组的趋势(0.05≤P<0.10)。2组优势菌门均为拟杆菌门和厚壁菌门,优势菌属均为F082和普雷沃氏菌属。
表6 代乳粉饲喂量对牦牛犊牛瘤胃微生物优势菌门和菌属相对丰度的影响

Table 6 Effects of milk replacer feeding amount on relative abundances of dominant phylum and genus of rumen microorganism of yak calves

项目Items 组别Groups PP-value
dC dH
门水平Phylum level 拟杆菌门Bacteroidota 84.88±1.37 82.39±0.81 0.156
厚壁菌门Firmicutes 12.19±1.30b 15.75±0.82a 0.049
变形菌门Proteobacteria 1.24±0.28 0.75±0.11 0.147
螺旋体门Spirochaetota 0.90±0.24 0.37±0.08 0.065
纤维杆菌门Fibrobacterota 0.30±0.13 0.11±0.03 0.199
脱硫细菌门Desulfobacterota 0.34±0.08 0.31±0.09 0.801
弯曲杆菌门Campilobacterota 0.05±0.01 0.10±0.03 0.172
浮游菌门Planctomycetota 0.08±0.04 0.01±0.01 0.110
髌骨细菌门Patescibacteria 0.05±0.03 0.02±0.01 0.374
迷踪菌门Elusimicrobiota 0.04±0.01 0.02±0.01 0.337
属水平Genus level F082 25.29±6.86 22.91±5.22 0.789
普雷沃氏菌属Prevotella 33.93±4.30 30.74±6.32 0.687
理研菌科RC9肠道群Rikenellaceae-RC9-gut-group 9.21±1.41 8.32±0.91 0.609
拟杆菌属Bacteroides 6.30±0.96 6.56±1.95 0.911
普雷沃氏菌科-UCG-003 Prevotellaceae-UCG-003 2.40±0.40 4.63±1.51 0.192
普雷沃氏菌科-UCG-001 Prevotellaceae-UCG-001 2.14±0.51 2.60±0.57 0.560
毛螺菌科-ND3007群Lachnospiraceae_ND3007_group 0.64±0.28b 3.33±0.96a 0.028
拟杆菌目-RF16群Bacteroidales_RF16_group 1.62±0.54 1.22±0.28 0.518
梭状芽孢杆菌属-UCG-014 Clostridium_UCG-014 1.05±0.37 1.47±0.39 0.462
拟杆菌目-BS11-肠道群Bacteroidales-BS11-gut-group 1.04±0.58 2.61±1.57 0.124

2.5 牦牛犊牛瘤胃代谢组学分析

2.5.1 主成分分析(PCA)

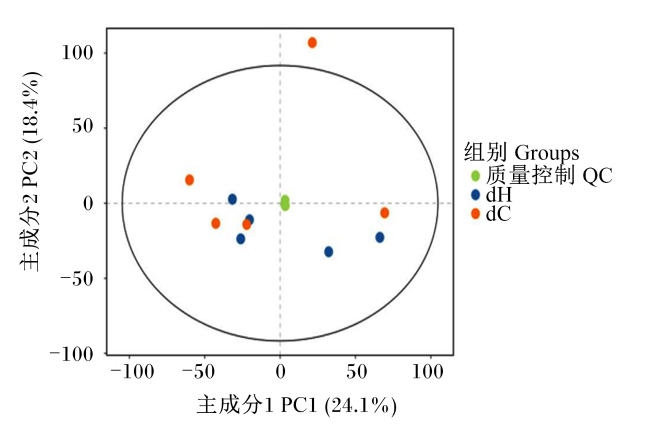
图3可知,质量控制(QC)样本在PCA图中形成了良好的聚集性,标志着分析系统具有高稳定性和重复性,为试验数据的准确性和可靠性提供了坚实保障。
图3 PCA图

Fig.3 PCA diagram

2.5.2 正交偏最小二乘判别分析(OPLS-DA)

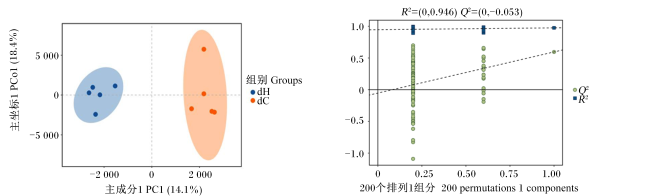
图4可知,2组样本在OPLS-DA得分图上具有明显的差异。R2大于Q2Q2回归直线与Y轴的截距均小于0,说明本试验中的模型没有“过拟合”,则模型准确可信,可进行后续分析。
图4 瘤胃代谢产物OPLS-DA

Fig.4 OPLS-DA of rumen metabolites

2.5.3 瘤胃微生物差异代谢产物

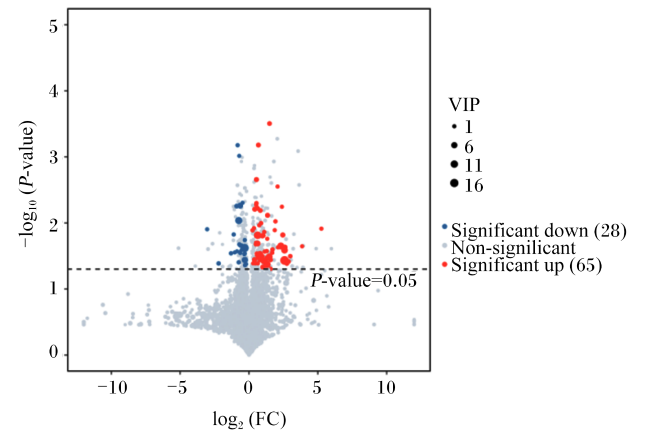
图5可知,对dC组和dH组进行组间分析,共得到差异代谢物93个,其中显著上调和下调的差异代谢物分别为65和28个。
图5 火山图

P-value:P值;FC:差异倍数 fold change; VIP:变量投影重要性 variable importance in projection;Significant down:显著下降;Non-signilicant:无显著变化;Significant up:显著上升。

Fig.5 Volcano plot

表7可知,2组间比较分析后得到的KEGG通路以及与该通路相关的差异代谢产物中,主要的代谢通路有:嘌呤代谢、硫胺素代谢、甘油磷脂代谢、天冬氨酸代谢、色氨酸代谢、维生素B6代谢和鞘脂代谢。与dC组相比,dH组在嘌呤代谢途径中,腺嘌呤、腺嘌呤核苷酸、脱氧肌苷二磷酸含量显著上调(P<0.05);在甘油磷脂代谢通路中,[(2R)-3-十七碳酰氧基-2-羟基丙基]2-(三甲基铵基)乙基磷酸酯含量极显著上调(P<0.01);在维生素B6代谢途径中,4α-甲基苄醇-4-羧酸含量显著上调(P<0.05);在鞘脂代谢途径中,磷酸鞘氨醇含量显著上调(P<0.05)。
表7 42日龄牦牛犊牛瘤胃差异代谢产物(dC组vs dH组)

Table 7 Differential metabolites in rumen of 42-day-old yak calves (dC group vs dH group)

代谢通路Metabolic pathways 代谢产物Metabolites 质荷比m/z 保留时间Retention time/min log2(差异倍数)log2(FC) PP-value 变量投影重要性VIP 上调/下调Up-regulated/down-regulated
嘌呤代谢Purine metabolism 腺嘌呤核苷酸Adenosine 268.104 1.276 2.587 0.037 19.157 上调
次黄嘌呤Hypoxanthine 137.046 1.074 -0.743 0.009 10.535 下调
腺嘌呤Adenine 136.062 1.067 2.584 0.026 7.992 上调
脱氧肌苷二磷酸Deoxyinosine diphosphate 411.012 1.260 2.872 0.038 2.083 上调
硫胺素代谢Thiamine metabolism 4-氨基-5-羟甲基-2-甲基嘧啶4-amino-5-hydroxymethyl-2-methylpyrimidine 140.082 14.066 -0.318 0.024 17.086 下调
甘油磷脂代谢Glycerophospholipid metabolism [(2R)-3-十七碳酰氧基-2-羟基丙基]2-(三甲基铵基)乙基磷酸酯[(2R)-3-heptadecanoyloxy-2-hydroxypropyl] 2-(trimethylazaniumyl)ethyl phosphate 554.346 10.924 1.492 <0.001 2.176 上调
天冬氨酸代谢Aspartate metabolism L-天冬氨酸L-asparagine 115.051 14.650 -0.222 0.042 1.893 下调
色氨酸代谢Tryptophan metabolism 5-羟基-N-甲酰基犬尿氨酸5-hydroxy-N-formylkynurenine 270.109 1.276 2.753 0.041 1.863 上调
维生素B6代谢Vitamin B6 metabolism 4α-甲基苄醇-4-羧酸4α-methylzymosterol-4-carboxylic acid 460.378 12.958 0.567 0.029 1.617 上调
鞘脂代谢Sphingolipid metabolism 磷酸鞘氨醇Sphinganine phosphate 362.247 9.345 1.064 0.016 1.067 上调

2.5.4 KEGG富集分析

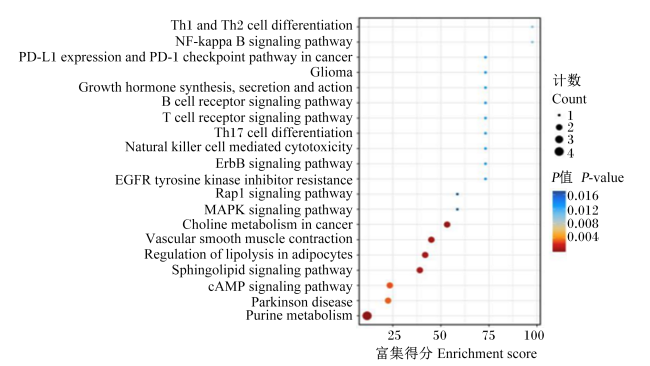
根据2组牦牛犊牛瘤胃的差异代谢产物进行KEGG富集分析,由富集分析的气泡图可知(图6),与瘤胃微生物差异代谢产物相关的主要通路有嘌呤代谢、环磷酸腺苷(cAMP)信号通路、鞘脂信号途径、脂肪细胞的脂肪分解调节、血管平滑肌收缩、丝裂原活化蛋白激酶(MAPK)信号通路、Rap1信号通路、表皮生长因子受体酪氨酸激酶抑制剂抗药性、ErbB信号通路、自然杀伤细胞介导的细胞毒性、Th17细胞分化、T细胞受体信号通路、B细胞受体信号通路等。其中,嘌呤代谢、鞘脂信号途径、脂肪细胞的脂肪分解调节和血管平滑肌收缩等通路发生了极显著变化(P<0.01)。
图6 牦牛犊牛差异代谢物KEGG富集分析气泡图

Purine metabolism:嘌呤代谢;Parkinson disease:帕金森病;cAMP signaling pathway:cAMP信号通路;Sphingolipid signaling pathway:鞘脂信号途径;Regulation of lipolysis in adipocytes:脂肪细胞的脂肪分解调节;Vascular smooth muscle contraction:血管平滑肌收缩;Choline metabolism in cancer:癌症中的胆碱代谢;MAPK signaling pathway:MAPK信号通路;Rap1 signaling pathway:Rap1信号通路;EGFR tyrosine kinase inhibitor resistance:表皮生长因子受体酪氨酸激酶抑制剂的抗药性;ErbB signaling pathway:ErbB信号通路;Natural killer cell mediated cytotoxicity:自然杀伤细胞介导的细胞毒性;Th17 cell differentiation:Th17细胞分化;T cell receptor signaling pathway:T细胞受体信号通路;B cell receptor signaling pathway:B细胞受体信号通路;Growth hormone synthesis, secretion and action:生长激素的合成、分泌和作用;Glioma:胶质瘤;PD-L1 expression and PD-1 checkpoint pathway in cancer:癌症中的PD-L1表达和PD-1检查点通路;NF-kappa B signaling pathway:NF-kappa B信号通路;Th1 and Th2 cell differentiation:Th1和Th2细胞分化。

Fig.6 KEGG enrichment analysis bubble diagram of differential metabolites of yak calves

3 讨论

3.1 代乳粉饲喂量对牦牛犊牛生长性能的影响

营养供应是决定犊牛生长和发育的核心要素,但其过程受品种、环境和饲养管理等因素的影响[14]。岳喜新等[15]研究发现,补饲代乳粉组羔羊增重比母羊哺乳组高3.47 kg,平均日增重高49.57 g。Zhang等[16]通过探究不同钙、磷水平的代乳粉对奶牛犊牛生长性能和营养物质消化率的影响,发现适当的钙、磷比例可以提高犊牛的生长性能和营养物质的消化率。Liu等[17]和Feng等[18]研究代乳粉中钙和磷的补充对奶犊牛的影响,强调了钙、磷比例对犊牛骨骼健康和生长性能的重要性。本试验中,dC组牦牛犊牛平均日增重为323.81 g,dH组牦牛犊牛平均日增重为373.33 g,dH组的平均日增重、胸围和管围显著或极显著高于dC组,说明随着代乳粉饲喂量的增加,牦牛犊牛摄入的蛋白质、脂肪、钙和磷等含量也在增加,能够更好地促进犊牛的生长发育。这与许先查等[6]的研究结果一致。体尺主要用来反映骨骼的生长发育状况[19]。dH组各体尺数据均不同程度高于dC,这有可能是dH组牦牛犊牛摄入干物质和蛋白质含量高于dC组,与张千[4]研究结果一致。

3.2 代乳粉饲喂量对牦牛犊牛瘤胃发酵参数和消化酶活性的影响

瘤胃pH可以反映微生物发酵活动,是评价瘤胃内环境稳定性的重要指标之一。反刍动物瘤胃pH的正常范围是5.5~7.5[20]。本试验结果显示,2组pH在5.80~6.00,属于正常范围之内,表明代乳粉饲喂量的多少对瘤胃内环境未产生负面影响。挥发性脂肪酸是瘤胃微生物降解饲粮碳水化合物的主要产物[21-22],瘤胃中乙酸、丙酸和丁酸含量占挥发性脂肪酸的95%左右,在机体代谢过程中发挥重要作用,瘤胃中丁酸的吸收率最高,丙酸次之,乙酸最低,因此正常的瘤胃中乙酸含量最高,丁酸含量最低[23-24],这与本试验瘤胃发酵参数研究结果一致。研究发现,在促进幼龄反刍动物瘤胃的发育中,丁酸可能也具有重要作用[25]。由此可推测,与dC组相比,dH组的代乳粉饲喂量为瘤胃产丁酸微生物提供了更充足的底物,后者产生了足够的丁酸,促进了瘤胃的发育并改善了牦牛犊牛的健康状况,从而促进犊牛的生长发育[26],这与Malmuthuge等[25]研究结果一致。挥发性脂肪酸不仅是反刍动物能量代谢的重要指标,还是体内体脂、乳脂和血糖的主要前体物质,对反刍动物的消化代谢具有重要作用,乙酸/丙酸对瘤胃发酵的影响最显著[27]。本试验中,瘤胃乙酸/丙酸在1.05~5.15,说明对瘤胃微生物发酵无不利影响[25]
在反刍动物消化过程中,瘤胃微生物发挥着至关重要的作用,它们分泌的酶能够分解饲料中的碳水化合物,反映了微生物对饲料中纤维物质的分解能力,以及它们合成微生物蛋白的效率[28]。木聚糖酶是一类能够将木聚糖分解成木糖的酶,对半纤维素有分解消化能力[29]。本试验结果表明,dH组的瘤胃木聚糖酶活性显著高于dC组,表明提高代乳粉饲喂量能够提升牦牛犊牛瘤胃中某些纤维分解菌的数量及其活力,增强这些菌分解饲料中纤维物质的能力,这一结果与微生物区系结果相一致。纤维素酶的本质是一种糖蛋白[30-31],由碳水化合物和蛋白质组成,通过水解纤维素中的β-1,4-糖苷键发挥作用,其活性可以反映瘤胃微生物对饲料中纤维物质的分解能力。纤维素酶的糖基化修饰对其活性、稳定性等性质有重要影响[32]。本研究中,dH组的瘤胃纤维素酶活性显著高于dC组,表明提高代乳粉饲喂量有助于提高犊牛瘤胃中纤维素酶的活性,进而提高其对纤维类物质的消化吸收[33],消化吸收的增加就可能导致体重增加,这与生长性能的结果相对应。

3.3 代乳粉饲喂量对牦牛犊牛微生物区系和代谢组学的影响

瘤胃中最重要的微生物类群是细菌,这类菌群的相对丰度可能长期处于一种动态平衡状态,但也可能会受到诸如饮食、动物年龄和饲料添加剂等多种因素的影响。本试验中,2组间瘤胃微生物的Chao1指数、ACE指数、Shannon指数、Simpson指数均无显著差异,说明代乳粉饲喂量对瘤胃微生物的多样性不会有负面影响。本试验结果表明,2组的优势菌门为拟杆菌门和厚壁菌门,与Kittelmann等[34]研究结果基本一致。厚壁菌门可以利用木聚糖、纤维素和半纤维素等碳水化合物作为能量来源。研究表明,厚壁菌门的相对丰度与平均日增重呈显著正相关,在反刍动物的消化体系中,厚壁菌门有助于宿主对能量的吸收和储存。特别是厚壁菌门中的乳酸杆菌属、琥珀酸菌属和瘤胃杆菌属,作为瘤胃中主要的纤维分解菌,对饲料中纤维素的分解起到关键作用,从而有助于促进动物的生长。这些菌属通过其纤维降解能力,增强了宿主的能量获取,进而支持宿主的生长和发育[35]。本试验中,dH组的瘤胃厚壁菌门相对丰度显著高于dC组,而平均日增重和纤维素酶活性也显著高于dC组,这与之相对应[36]。毛螺菌科在为宿主制造有益的代谢产物方面扮演着关键角色,其中有些表现出显著的水解能力[37]。毛螺菌属和瘤胃球菌属可促进碳水化合物的分解及丁酸的生成[38-39],而且毛螺菌科通常作为丁酸的产生者参与代谢,影响次级胆汁酸的生成、脂质代谢和炎症反应[40-41]。丁酸不仅对维持反刍动物肠道健康、发挥抗炎作用至关重要[42],还为肠道上皮细胞提供能量,促进瘤胃乳头发育,增强胃肠道的结构和功能,同时增加瘤胃中有益微生物的群体[43-44]。本试验中,dH组的瘤胃毛螺菌科-ND3007群的相对丰度显著高于dC组,且瘤胃丁酸含量有高于dC组的趋势,两者相对应。这说明提高代乳粉饲喂量可以提高瘤胃内有益微生物的数量,促进瘤胃的发育。
嘌呤代谢也与部分微生物的活性有关。鸟嘌呤和腺嘌呤是DNA和RNA碱基,经分解生成次黄嘌呤和黄嘌呤,次黄嘌呤可进一步氧化为黄嘌呤,最终生成尿酸[45]。尿酸是嘌呤代谢的最终产物。而某些属于厚壁菌门的细菌能够产生脲酶,该酶能够分解尿素生成氨和二氧化碳,间接影响尿酸的排泄[46];并且厚壁菌门产生的某些代谢产物,如短链脂肪酸,可能影响宿主的嘌呤代谢[47]
周胜花等[48]研究发现,2-甲基丁酸能增加瘤胃纤维分解菌数量并提高纤维分解酶活性,间接表明丁酸类物质(如2-甲基丁酸)与纤维素酶之间呈正相关趋势。丁酸作为瘤胃上皮功能发育的重要刺激因子,能够维持瘤胃上皮细胞的结构完整性,并影响其营养代谢过程。李文静[49]通过转录组学和代谢组学分析,发现丁酸能够影响瘤胃上皮细胞的多种代谢途径,包括嘌呤代谢。本试验中,dH组的瘤胃厚壁菌门相对丰度和纤维素酶活性显著高于dC组,瘤胃丁酸含量有高于dC组的趋势,这与代谢组学中嘌呤代谢结果相一致。研究发现,饲喂精料的牦牛瘤胃可能更容易发生微生物核酸降解[50],表明核酸代谢影响瘤胃微生物活性和发酵速率。腺嘌呤、腺嘌呤核苷酸和脱氧肌苷二磷酸等代谢产物在2组均被检测到,但均在dH组中显著上调,表明dH组的牦牛犊牛瘤胃可能具有更高效的微生物活性,这与微生物和瘤胃发酵参数结果相对应,从侧面反映出提高代乳粉饲喂量可提高瘤胃菌群丰富度和发酵效率。
色氨酸是一种必需的芳香族氨基酸,在微生物和宿主生物体内扮演着合成多种代谢物的基本前体角色[51-52]。研究表明,色氨酸的不足会妨碍动物的生长和发育,并且不利于体内脂肪的储存[53-54]。Antonia等[53]研究发现,色氨酸对于动物的健康成长和脂肪积累具有重要作用,缺乏这种氨基酸可能会对动物的生理机能产生负面影响。Zhang等[55]研究发现,色氨酸作为支链氨基酸之一,影响瘤胃中挥发性脂肪酸的产生,色氨酸的代谢可能与瘤胃微生物的活性和发酵效率呈正相关;而且色氨酸是血清素和褪黑素的前体,这些化合物在免疫调节中发挥作用,丁酸可能通过影响瘤胃微生物群落的平衡,间接影响色氨酸的可用性。代谢组学结果显示,5-羟基-N-甲酰基犬尿氨酸在dH组显著上调,表明色氨酸在dH组具有更高降解率且色氨酸的分解不会受到抑制,促进牦牛犊牛的生长;在瘤胃发酵参数的结果与其相对应[55]。鞘脂代谢产物在细胞生长、分化和细胞程序性死亡等过程中扮演着关键角色,这些生物活性分子不仅参与了细胞膜的构建,还作为信号分子调节多种细胞活动;Liu等[56]研究发现,在幼年反刍动物中,饲喂代乳粉能够促进瘤胃细菌在上皮细胞中的鞘脂代谢。维生素B6参与血清素和褪黑素的合成,这些神经递质可能影响动物的行为和能量消耗,间接影响丁酸的产生[57]。本试验中,鞘脂代谢通路在dH组的瘤胃中得到了富集,并且磷酸鞘氨醇含量上调,表明增加代乳粉的饲喂量可能通过影响瘤胃微生物的代谢活动,进而对犊牛的瘤胃发育产生积极影响,这与马满鹏[58]研究结果一致。B族维生素由瘤胃中的细菌合成,可作为辅酶因子或辅因子的前体[59],参与脂肪酸合成、支链氨基酸分解代谢和糖异生等代谢过程[60]。研究发现,维生素B6的缺乏可能会干扰色氨酸的正常代谢,进而影响体内脂质代谢,导致犊牛体重减轻[56]。在本试验中,相对于dC组,dH组在维生素B6代谢途径中,4α-甲基苄醇-4-羧酸含量显著上升,它可能作为维生素B6代谢途径的产物,间接影响细胞的能量供应和物质合成,从而对生长产生一定的作用,这与杨磊[54]的研究结果一致。

4 小结

提高代乳粉饲喂量能够改善牦牛犊牛瘤胃发酵功能,增加瘤胃毛螺菌科-ND3007群的相对丰度,促进丁酸的生成和纤维素的分解,从而提高牦牛犊牛生长性能。
[1]
杜延萍. 不同饲养方式对牦犊牛生产性能的影响[J]. 农技服务, 2015, 32(3):163.

DU Y P. Effects of different feeding methods on production performance of yak calves[J]. Agricultural services, 2015, 32(3):163. (in Chinese)

[2]
崔占鸿. 牦牛犊牛培育方式对生长和消化道发育的影响[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2020.

CUI Z H. Effects of rearing patterns on growth and digstive tract development in yak calves[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[3]
罗焱鹏. 酸化乳对犊牛生长性能、粪便微生物和血清代谢物的影响[D]. 硕士学位论文.成都.四川农业大学, 2023.

LUO Y P. Effects of acidified milk on growth performance, fecal microorganisms and serum metabolites of calves[D]. Master's.Thesis. Chengdu: Sichuan Agricultural University, 2023. (in Chinese)

[4]
张千. 代乳粉饲喂量对羔羊生产性能和免疫功能的影响及机理研究[D]. 博士学位论文. 兰州: 兰州大学, 2019.

ZHANG Q. Effect and mechanism of milk replacer feeding allowance on production performance and immune function of lambs[D]. Ph.D.Thesis. Lanzhou: Lanzhou University, 2019. (in Chinese)

[5]
曹学浩, 陈龙宾, 王丽学, 等. 饲喂站中代乳粉饲喂量对犊牛生长性能的影响[J]. 黑龙江畜牧兽医, 2018(6):67-68.

CAO X H, CHEN L B, WANG L X, et al. Effect of feeding amount of milk replacer in feeding station on growth performance of calves[J]. Heilongjiang Animal Science and Veterinary Medicine, 2018(6):67-68. (in Chinese)

[6]
许先查, 刁其玉, 屠焰, 等. 液体饲料饲喂量对哺乳期犊牛生长性能、消化代谢的影响[J]. 饲料工业, 2010, 31(19):47-50.

XU X C, DIAO Q Y, TU Y, et al. Effects of feeding levels of a liquid feed on growth performance digestion and metabolism of nutrients in per-ruminant calves[J]. Feed Industry, 2010, 31(19):47-50. (in Chinese)

[7]
周亚楠. 不同粗饲料来源饲粮对哺乳期牦牛犊牛生长和复胃发育的影响[D]. 硕士学位论文. 西宁: 青海大学, 2023.

ZHOU Y N. Effects of different dietary roughage sources on the growth and compound stomach development of suckling yak calves[D]. Master's Thesis. Xining: Qinghai University, 2023. (in Chinese)

[8]
郝文君, 薛国良, 刘书杰, 等. 补饲开食料对早期断奶牦牛犊牛胸腺和脾脏发育的转录组学分析[J]. 动物营养学报, 2023, 35(2):977-994.

DOI

HAO W J, XUE G L, LIU S J, et al. Transcriptomic analysis of starter feed supplementation on thymus and spleen development in early weaned yak calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):977-994. (in Chinese)

DOI

[9]
段嘉钰, 刘书杰, 周磊, 等. 采食限制对哺乳期牦牛犊牛生长性能、腹泻频率及主要内脏器官指数的影响[J]. 饲料工业, 2022, 43(21):47-53.

DUAN J Y, LIU S J, ZHOU L, et al. Effects of feed restriction on growth performance,diarrhea frequency and main visceral organ index of lactating yak calves[J]. Feed Industry, 2022, 43(21):47-53. (in Chinese)

[10]
赵芸君, 刘艳丰, 王文奇, 等. 在夏季天然草场放牧加补饲对瑞士褐牛与新疆褐牛杂交后代体重、体尺的影响[J]. 草食家畜, 2010(1):45-48.

ZHAO Y J, LIU Y F, WANG W Q, et al. Effects of concentrate supplement on weight and body size of Switzerland brown cattle×Xinjiang brown cattle on the summer natural grazing grassland[J]. Grass-Feeding Livestock, 2010(1):45-48. (in Chinese)

[11]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of colorimetric method for determination of ammonia nitrogen in rumen fluid[J]. Animal husbandry and feed science, 2010, 31(6/7):37. (in Chinese)

[12]
TIAN K, LIU J H, SUN Y W, et al. Effects of dietary supplementation of inulin on rumen fermentation and bacterial microbiota,inflammatory response and growth performance in finishing beef steers fed high or low-concentrate diet[J]. Animal Feed Science and Technology, 2019,258:114299.

[13]
周亚楠, 刘书杰, 杨得玉, 等. 苜蓿干草与燕麦干草及其混合饲喂对哺乳期牦牛犊牛复胃组织形态和消化酶活性的影响[J]. 动物营养学报, 2023, 35(5):3141-3153.

DOI

ZHOU Y N, LIU S J, YANG D Y, et al. Effects of alfalfa hay,oat hay and their mixed feeding on compound stomach morphology and digestive enzyme activities of yak calves during lactation period[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):3141-3153. (in Chinese)

[14]
王府, 韩勇, 陈胜昌, 等. 补饲不同水平代乳粉对贵州黑山羊双羔羔羊生长发育的影响[J]. 中国畜牧杂志, 2019, 55(1):97-100.

WANG F, HAN Y, CHEN S C, et al. Effects of different levels of milk replacer on growth and development of Guizhou black goat twin lambs[J]. Chinese Journal of Animal Science, 2019, 55(1):97-100. (in Chinese)

[15]
岳喜新, 刁其玉, 马春晖, 等. 饲喂代乳粉对羔羊生长性能和血清生化指标的影响[J]. 饲料工业, 2011, 32(1):20-23.

YUE X X, DIAO Q Y, MA C H, et al. Effects of milk replacer on growth performance and serum biochemical indexes in early weaned lambs[J]. Feed Industry, 2011, 32(1):20-23. (in Chinese)

[16]
ZHANG H, SUN X, ZHAO X. Effects of milk replacer with different calcium and phosphorus levels on growth performance and nutrient digestibility in dairy calves[J]. Journal of Dairy Science, 2018, 101(2):1021.

[17]
LIU G, WANG J, KONG X. Calcium and phosphorus supplementation in milk replacers for dairy calves: a review[J]. Animal Nutrition, 2019, 5(1):34-45.

[18]
FENG S, ZHANG S, LI X, et al. The impact of calcium and phosphorus on the growth performance and bone health of young cattle[J]. Livestock Science,2020:103824.

[19]
刁其玉, 张乃峰, 屠焰, 等. 犊牛代乳粉的研究进展[J]. 饲料工业, 2003, 24(8):6-8.

DIAO Q Y, ZHANG N F, TU Y, et al. Advance in milk equivalence of calf[J]. Feed Industry, 2003, 24(8):6-8. (in Chinese)

[20]
董利锋, 杨修竹, 高彦华, 等. 日粮不同NDF/NFC水平对周岁后荷斯坦奶牛生产性能、营养物质消化率、瘤胃发酵特征和甲烷排放的影响[J]. 草业学报, 2021, 30(2):156-165.

DOI

DONG L F, YANG X Z, GAO Y H, et al. Effects of dietary NDF:NFC ratio on growth performance,nutritive digestibility,ruminal fermentation characteristics and methane emissions of Holstein heifers[J]. Acta Prataculturae Sinica, 2021, 30(2):156-165. (in Chinese)

[21]
张萌, 赵敏霖, 刘萍, 等. 棕榈脂肪粉对杂交泌乳水牛泌乳性能、瘤胃发酵及血清生化指标的影响[J]. 黑龙江畜牧兽医, 2024(12):83-88.

ZHANG M, ZHAO M L, LIU P, et al. Effects of palm fat powder on lactation performance,rumen fermentation indexes and serum biochemical indexes of hybrid lactating buffalo[J]. Heilongjiang Animal Science and Veterinary Medicine, 2024(12):83-88. (in Chinese)

[22]
付建, 陈志远, 陈勇, 等. 放牧补饲对草地藏系绵羊的生长性能、瘤胃发酵参数及血清生化、免疫和抗氧化指标的影响[J]. 畜牧与兽医, 2024, 56(6):42-48.

FU J, CHEN Z Y, CHEN Y, et al. Effects of grazing supplementation on growth performance,rumen fermentation parameters and serum biochemical,immunological and antioxidant indices in grassland Tibetan sheep[J]. Animal Husbandry & Veterinary Medicine, 2024, 56(6):42-48. (in Chinese)

[23]
周颖, 王弘浩, 刘维平, 等. 中草药水提物复合制剂对幼龄滩羊瘤胃发酵和细菌组成的影响[J]. 中国畜牧兽医, 2024, 51(11):4743-4754.

DOI

ZHOU Y, WANG H H, LIU W P, et al. Effect of compound preparation of Chinese herbal aqueous extract on ruminal fermentation and bacterial composition in Tan lambs[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(11):4743-4754. (in Chinese)

[24]
马丽娜, 高总元, 高海慧, 等. 饲粮蛋白水平对断奶犊牛生长性能、血清指标、瘤胃发酵参数及微生物组成的影响[J]. 饲料研究, 2023, 46(17):5-11.

MA L N, GAO Z Y, GAO H H, et al. Effect of dietary protein level on growth performance,serum indexes,rumen fermentation parameters and microbial composition of weaned calves[J]. Feed Research, 2023, 46(17):5-11. (in Chinese)

[25]
MALMUTHUGE N, LIANG G A, GUAN L L. Regulation of rumen development in neonatal ruminants through microbial metagenomes and host transcriptomes[J]. Genome Biology, 2019, 20(1):172.

DOI PMID

[26]
刘永嘉, 王聪, 刘强, 等. 日粮补充异丁酸对犊牛生长性能、瘤胃发酵和纤维分解菌菌群的影响[J]. 草业学报, 2019, 28(7):151-158.

DOI

LIU Y J, WANG C, LIU Q, et al. Effects of isobutyrate supplementation on growth performance,ruminal fermentation and cellulolytic bacterial abundance in calves[J]. Acta Prataculturae Sinica, 2019, 28(7):151-158. (in Chinese)

[27]
LI X, HØJBERG O, CANIBE N, et al. Phylogenetic diversity of cultivable butyrate-producing bacteria from pig gut content and feces[J]. Journal of Animal Science, 2016, 94(S3):377-381.

[28]
潘利国, 陈晓东, 柯文灿, 等. 柠条资源饲料化开发技术及在反刍动物生产中应用的研究进展[J]. 饲料工业, 2024, 45(18):7-13.

PAN L G, CHEN X D, KE W C, et al. Research progress on the feed utilization technology of Caragana korshinskii resources and its application in ruminant animal production[J]. Feed Industry, 2024, 45(18):7-13. (in Chinese)

[29]
郝志敏, 王景, 朱靓婧, 等. 乙酸/丙酸比例对瘤胃微生物体外发酵和蛋白产量的影响[J]. 广东饲料, 2011(8):20-24.

HAO Z M, WANG J, ZHU L J, et al. Effects of acetic acid/propionic acid ratio on in vitro rumen microbial fermentation and protein production[J]. Guangdong Feed, 2011(8):20-24. (in Chinese)

[30]
PATEL N, GANGAWANE A K. Isolation of potential extracellular cellulase producer and determination of cellulase production efficiency with various raw substrates[J]. International Journal of Life Science and Pharma Research, 2021, 11(2):L131-L134.

[31]
沙如意, 张沙沙, 余瞻, 等. 假木质素沉积及对纤维素酶解的影响研究进展[J]. 林业科学, 2020, 56(3):127-143.

SHA R Y, ZHANG S S, YU Z, et al. Advances in pseudo-lignin deposition and its effects on enzymatic hydrolysis of cellulose[J]. Scientia Silvae Sinicae, 2020, 56(3):127-143. (in Chinese)

[32]
顾方媛, 陈朝银, 石家骥, 等. 纤维素酶的研究进展与发展趋势[J]. 微生物学杂志, 2008, 28(1):83-87.

GU F Y, CHEN C Y, SHI J J, et al. Advances in cellulase and its development tendency[J]. Journal of Microbiology, 2008, 28(1):83-87. (in Chinese)

[33]
KIM B J, SINGH S P, HAYASHI K. Characteristics of chimeric enzymes constructed between Thermotoga maritima and Agrobacterium tumefaciens β-glucosidases:role of C-terminal domain in catalytic activity[J]. Enzyme and Microbial Technology, 2006, 38(7):952-959.

[34]
KITTELMANN S, SEEDORF H, WALTERS W A, et al. Simultaneous amplicon sequencing to explore co-occurrence patterns of bacterial, archaeal and eukaryotic microorganisms in rumen microbial communities[J]. PLoS One, 2013, 8(2):e47879.

[35]
KOMAROFF A L. The microbiome and risk for obesity and diabetes[J]. JAMA, 2017, 317(4):355-356.

DOI PMID

[36]
姚海博, 胡晋升, 孙晨旭, 等. 沙葱粉对牦牛瘤胃体外发酵参数、营养物质降解率及微生物区系的影响[J]. 动物营养学报, 2024, 36(6):3739-3755.

DOI

YAO H B, HU J S, SUN C X, et al. Effects of Allium mongolicum regel powder on rumen in vitro fermentation parameters,nutrient degradation rate and microflora of yaks[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3739-3755. (in Chinese)

[37]
SAGHEDDU V, PATRONE V, MIRAGOLI F, et al. Infant early gut colonization by Lachnospiraceae:high frequency of Ruminococcus gnavus[J]. Frontiers in Pediatrics, 2016,4:57.

[38]
MEEHAN C J, BEIKO R G. A phylogenomic view of ecological specialization in the Lachnospiraceae,a family of digestive tract-associated bacteria[J]. Genome Biology and Evolution, 2014, 6(3):703-713.

[39]
RINNINELLA E, RAOUL P, CINTONI M, et al. What is the healthy gut microbiota composition? A changing ecosystem across age,environment,diet,and diseases[J]. Microorganisms, 2019, 7(1):14.

[40]
赵艳. 丁酸钠通过肠-肺轴对细菌性肺炎的保护作用及机制探究[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2024.

ZHAO Y. Protective effect and mechanism of sodium butyrate on bacterial pneumonia via gut-lung axis[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2024. (in Chinese)

[41]
唐郑, 林伟刚, 余仁欢, 等. 基于中焦理论的肠道-器官轴中医内涵综述[J]. 时珍国医国药, 2024, 35(10):2421-2426.

TANG Z, LIN W G, YU R H, et al. Review of TCM connotation of intestinal-organ axis based on Zhongjiao theory[J]. Lishizhen Medicine and Materia Medica Research, 2024, 35(10):2421-2426. (in Chinese)

[42]
MCCURDY D E, WILKINS K R, HILTZ R L, et al. Effects of supplemental butyrate and weaning on rumen fermentation in Holstein calves[J]. Journal of Dairy Science, 2019, 102(10):8874-8882.

DOI PMID

[43]
O'HARA E, KELLY A, MCCABE M S, et al. Effect of a butyrate-fortified milk replacer on gastrointestinal microbiota and products of fermentation in artificially reared dairy calves at weaning[J]. Scientific Reports, 2018, 8(1):14901.

DOI PMID

[44]
崔双, 乌日力嘎, 阿拉达尔, 等. 放牧条件下补充酵母硒对绵羊胃肠道微生物区系的影响[J]. 中国畜牧兽医, 2023, 50(3):952-965.

DOI

CUI S, WURLIG, ALDER, et al. Effects of yeast selenium supplementation on gastrointestinal microflora in sheep under grazing conditions[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(3):952-965. (in Chinese)

[45]
张瑞. 玉米不同加工处理对东湖杂一代奶绵羊泌乳性能,瘤胃微生物区系及代谢物的影响[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2023.

ZHANG R. Effects of different corn processing on lactation performance,rumen microbiota and metabolite in DHF1[D]. Master's Thesis. Yangling: Northwest A&F University, 2023. (in Chinese)

[46]
JANSSEN A, JANSEN F. Urea hydrolysis in the rumen of cattle and its potential role in the utilization of dietary nitrogen[J]. Canadian Journal of Animal Science, 2001, 81(4):551-558.

[47]
CHENX, ZENG X,ZHU W.Rumen microbial communities and their roles in the digestion of structural carbohydrates,protein,and urea in yaks (Bos taurus)[J]. Animal Nutrition, 2015, 1(2):87-95.

[48]
周胜花, 宋献艺. 2-甲基丁酸和纤维素酶对泌乳牛生产性能的影响[J]. 黑龙江畜牧兽医, 2018(15):160-162.

ZHOU S H, SONG X Y. Effects of 2-methylbutyric acid and cellulase on production performance of lactating cows[J]. Heilongjiang Animal Science and Veterinary Medicine, 2018(15):160-162. (in Chinese)

[49]
李文静. 基于转录组学和代谢组学分析丁酸对奶牛瘤胃上皮细胞营养代谢的影响[D]. 硕士学位论文. 郑州: 河南农业大学, 2021.

LI W J. Effects of butyrate on nutrition metabolism of rumen epithelial cells of dairy cow based on transcriptome and metabolome analysis[D]. Master's Thesis. Zhengzhou: Henan Agricultural University, 2021. (in Chinese)

[50]
ZHANG R Y, ZHU W Y, JIANG L S, et al. Comparative metabolome analysis of ruminal changes in Holstein dairy cows fed low- or high-concentrate diets[J]. Metabolomics, 2017, 13(6):74.

[51]
陶柱萍, 龙宇, 李灿委, 等. 肠道菌群在中草药抗溃疡性结肠炎中的作用[J]. 药学学报, 2021, 56(2):391-402.

TAO Z P, LONG Y, LI C W, et al. Role of gut microbiota in the treatment of ulcerative colitis with traditional Chinese medicine[J]. Acta Pharmaceutica Sinica, 2021, 56(2):391-402. (in Chinese)

[52]
朱洁, 侯宝龙, 程雯, 等. 基于血清代谢组学探究色胺酮抗小鼠溃疡性结肠炎的作用机制[J]. 中国中药杂志, 2023, 48(8):2193-2202.

ZHU J, HOU B L, CHENG W, et al. Mechanism of tryptanthrin in treatment of ulcerative colitis in mice based on serum metabolomics[J]. China Journal of Chinese Materia Medica, 2023, 48(8):2193-2202. (in Chinese)

[53]
ANTONIA ÁLVAREZ-FERNÁNDEZ M, FERNÁNDEZ-CRUZ E, VALERO E, et al. Efficiency of three intracellular extraction methods in the determination of metabolites related to tryptophan and tyrosine in winemaking yeast's metabolism by LC-HRMS[J]. Food Chemistry, 2019,297:124924.

[54]
杨磊. 冬季不同饲养方式对妊娠母羊增重,血液指标及脂质代谢的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2022.

YANG L. Effects of different feeding methods in winter on weight gain,blood indexes and lipid metabolism of pregnant ewes[D]. Master's Thesis. Hohhot: Inner Mongolia Agricultural University, 2022. (in Chinese)

[55]
ZHANG H L, CHEN Y, XU X L, et al. Effects of branched-chain amino acids on in vitro ruminal fermentation of wheat straw[J]. Asian-Australasian Journal of Animal Sciences, 2013, 26(4):523-528.

[56]
LIU J, BIAN G, SUN D, et al. Starter feeding altered ruminal epithelial bacterial communities and some key immune-related genes' expression before weaning in lambs[J]. Journal of Animal Science, 2017, 95(2):910-921.

DOI PMID

[57]
JANSEN F, JANSSON H. Microbiological and nutritional aspects of rumen and ruminant digestion[J]. Canadian Journal of Animal Science, 2002, 81(4):551-558.

[58]
马满鹏. 日粮中性洗涤纤维来源对断奶犊牛生长性能和瘤胃发育的影响[D]. 硕士学位论文兰州: 甘肃农业大学, 2020.

MA M P. Effects of diets with NDF source on the growth performance and rumen development in post weaning calves[D]. Master's Thesis. Lanzhou: Gansu Agricultural University, 2020. (in Chinese)

[59]
RUSSELL J B, RYCHLIK J L. Factors that alter rumen microbial ecology[J]. Science, 2001, 292(5519):1119-1122.

DOI PMID

[60]
CHEN B, WANG C, WANG Y M, et al. Effect of biotin on milk performance of dairy cattle:a Meta-analysis[J]. Journal of Dairy Science, 2011, 94(7):3537-3546.

文章导航

/