研究论文

不同乳蛋白率奶山羊的瘤胃发酵参数及微生物区系比较分析

  • 牛惠冬 ,
  • 孔鹏辉 ,
  • 许晓改 ,
  • 孙默涵 ,
  • 杜冠辰 ,
  • 蔡含芳 ,
  • 汪亚苹 ,
  • 李明 , * ,
  • 许会芬 , *
展开
  • 河南农业大学动物科技学院,郑州 450046
* 李 明,教授,博士生导师,E-mail: ;
许会芬,副教授,硕士生导师,E-mail:

牛惠冬(1998—),女,河南登封人,硕士研究生,研究方向为动物遗传育种与繁殖。E-mail:

Copy editor: 陈 鑫

收稿日期: 2024-09-26

  网络出版日期: 2025-05-14

基金资助

国家自然科学基金项目(U2004159)

国家自然科学基金项目(31702100)

河南省现代农业产业技术体系建设专项基金资助(HARS-22-13-G1)

Comparative Analysis of Rumen Fermentation Parameters and Microbiota in Dairy Goats with Different Milk Protein Percentages

  • NIU Huidong ,
  • KONG Penghui ,
  • XU Xiaogai ,
  • SUN Mohan ,
  • DU Guanchen ,
  • CAI Hanfang ,
  • WANG Yaping ,
  • LI Ming , * ,
  • XU Huifen , *
Expand
  • College of Animal Science and Technology, Henan Agricultural University, Zhengzhou 450046, China
* LI Ming, professor, E-mail: ;
XU Huifen, associate professor, E-mail:

Received date: 2024-09-26

  Online published: 2025-05-14

摘要

本研究旨在探究在相同饲粮结构及饲养环境下,不同乳蛋白率奶山羊的瘤胃发酵参数及微生物区系的差异,并筛选出与乳蛋白合成相关的标志微生物,为奶山羊乳品质改良提供基础支撑。选取体重[(54.45±3.05) kg]相近、胎次相同(2胎次)、日产奶量[(1.41±0.23) kg/d]相近,且同处于泌乳中后期[(150±5) d]的60只健康西农萨能奶山羊,随机分栏,在相同饲养管理条件下饲喂15 d。试验期间连续跟踪记录产奶量,每周采集奶样,测定乳成分指标。根据试验第1天和第8天测定的乳蛋白率,选择产奶量无显著差异(P>0.05)的5只高乳蛋白率(3.21%)奶山羊(HP组)和5只低乳蛋白率(2.46%)奶山羊(LP组),采集乳样和瘤胃液,测定乳成分和瘤胃发酵参数,并通过16S rDNA测序技术分析不同乳蛋白率的奶山羊瘤胃微生物区系的差异。结果显示:1)HP组奶山羊的乳蛋白率极显著高于LP组(P<0.01)。2组奶山羊的日产奶量、乳脂率、乳糖率和乳尿素氮含量均无显著差异(P>0.05)。2)HP组奶山羊瘤胃液中乙酸比例和总挥发性脂肪酸(TVFA)含量显著高于LP组(P<0.05),乙酸/丙酸极显著高于LP组(P<0.01)。3)2组奶山羊瘤胃微生物结构存在显著差异(P<0.05)。其中,HP组奶山羊瘤胃中厚壁菌门、拟杆菌门、髌骨菌门、赖氨酸芽孢杆菌属、瘤胃球菌科UCG-014、解琥珀酸菌属、产乙酸糖发酵菌属、Candidatus_Saccharimonas、瘤胃球菌科UCG-005的相对丰度均显著高于LP组(P<0.05),变形菌门的相对丰度显著低于LP组(P<0.05)。4)关联分析结果显示,乳蛋白率与赖氨酸芽孢杆菌属、普雷沃氏菌属-1、解琥珀酸菌属、Candidatus_Saccharimonas、拟杆菌目RF16菌群、普雷沃氏菌科UCG-003、瘤胃球菌科UCG-014、韦荣球菌科_UCG-001、产乙酸糖发酵菌属、瘤胃球菌科UCG-005的相对丰度呈显著正相关(P<0.05),与肠杆菌属的相对丰度呈显著负相关(P<0.05)。综上所述,与LP组奶山羊相比,HP组奶山羊的瘤胃中乙酸含量、乙酸/丙酸及总挥发性脂肪酸含量显著升高。高乳蛋白率和低乳蛋白率奶山羊瘤胃微生物的多样性、组成及发酵产物存在显著差异,瘤胃差异微生物与乳蛋白率存在强相关性。

本文引用格式

牛惠冬 , 孔鹏辉 , 许晓改 , 孙默涵 , 杜冠辰 , 蔡含芳 , 汪亚苹 , 李明 , 许会芬 . 不同乳蛋白率奶山羊的瘤胃发酵参数及微生物区系比较分析[J]. 动物营养学报, 2025 , 37(5) : 3151 -3162 . DOI: 10.12418/CJAN2025.261

Abstract

This study aimed to explore the differences in rumen fermentation parameters and microbiota between dairy goats with different milk protein percentages under the same feed structure and rearing environment, and to identify key rumen microorganisms associated with milk protein synthesis, providing basic support for improving the quality of dairy goat milk. Sixty healthy Xinong Saanen dairy goats at mid lactation [(150±5) d] and similar body weight [(54.45±3.05) kg], second parity, and similar milk yield [(1.41±0.23) kg/d] were used in a feeding study for 15 days. During the experiment, milk yield from every goat was recorded every day, and milk samples from every goat collected once a week to evaluate composition. Based on the results of milk protein percentage determination on the 1st and 8th days of the experiment, 5 high milk protein percentage (3.21%, HP group) and 5 low milk protein percentage (2.46%, LP group) dairy goats with no significant difference in milk yield (P>0.05) were selected for further analysis. Rumen fluid samples were collected, and the differences in rumen microbial composition between dairy goats with different milk protein percentages were analyzed by 16S rDNA sequencing technology. The results showed as follows: 1) the milk protein percentage in the HP group was significantly higher than that in the LP group (P<0.01). There were no significant differences in daily milk yield, milk fat percentage, milk lactose percentage, and milk urea nitrogen content between the two groups (P>0.05). 2) The acetate poportion and total volatile fatty acids (TVFA) content in the rumen fluid in the HP group were significantly higher than those in the LP group (P<0.05), and the acetate/propionate was significantly higher in the HP group (P<0.01). 3) There were significant differences in the rumen microbial structure between the two groups (P<0.05). The relative abundance of Firmicutes, Bacteroidetes, Patescibacteria, Lysinibacillus, Ruminococcaceae_UCG-014, Succiniclasticum, Saccharofermentans, Candidatus_Saccharimonas, Ruminococcaceae_UCG-005 were significantly higher in the HP group than in the LP group (P<0.05), while the relative abundance of Proteobacteria was significantly lower in the LP group (P<0.05). 4) The correlation analysis results showed that the relative abundance of Lysinibacillus, Prevotella_1, Succiniclasticum, Candidatus_Saccharimonas, Bacteroidales_RF16_group, Prevotellaceae_UCG-003, Veillonellaceae_UCG-001, Saccharofermentans, Ruminococcaceae_UCG-005 were positively correlated with milk protein percentage, while the relative abundance of Enterobacter was negatively correlated with milk protein percentage. In conclusion, compared to the group of dairy goats with low milk protein percentage, the group with high milk protein percentage exhibits higher acetate/propionate, acetate poportion and TVFA content. There are significant differences in the diversity, composition, and fermentation parameters of rumen microbiota between dairy goats with high and low milk protein percentages.

山羊奶富含生物活性化合物,具有易消化吸收、营养丰富等优点,对人体具有明显的保健作用,因此受到越来越多消费者的关注[1-2]。乳蛋白是乳的重要组成部分,其含量是评价奶畜泌乳性能的关键经济性状[3]。乳蛋白的合成受到饲养管理、饲粮营养组成、瘤胃微生物组成、宿主代谢等的综合影响[4-5]。在同等饲养管理条件下,群体间个体奶畜的乳蛋白含量也会表现出显著差异[6-7]。近期研究表明,奶畜的泌乳性能与瘤胃微生物区系存在密切关联[8]。瘤胃微生物对于维持机体良好的瘤胃生态、健康和生产力至关重要,在消化纤维饲料和为宿主提供必需营养方面具有关键作用[9]。因此,确定瘤胃微生物区系与奶山羊乳蛋白合成之间的相关性,对提高奶山羊泌乳性能和乳品质具有重要意义。大量研究发现,奶牛瘤胃微生物组成及功能与奶牛重要的生产表型(如甲烷排放、乳产量和乳成分等)存在密切相关性。Jiang等[10]发现,奶牛瘤胃中普雷沃氏菌属、丁酸弧菌属和拟杆菌属等微生物,可能在瘤胃和宿主脂质代谢中起关键作用,有助于提高产奶量和乳脂产量。Bai等[11]发现,奶牛在相同饲养管理下,瘤胃内马赛假瘤胃球菌(Pseudoruminococcus massiliensis)和瘤胃球菌属(Ruminococcus)这2种微生物与产奶量具有显著相关性。沈子亮等[12]研究发现,不同乳脂率奶牛在相同饲粮条件下,瘤胃发酵参数和微生物组成存在差异。Fan等[13]分析不同乳蛋白产量的泌乳牦牛的瘤胃微生物,发现在高产和低产乳蛋白的牦牛之间,瘤胃微生物的组成、多样性和瘤胃发酵参数存在显著差异。Xue等[14]研究发现,几种普雷沃氏菌属的相对丰度在高乳蛋白产量奶牛的瘤胃中明显更高,有助于改善与支链氨基酸生物合成相关的功能,满足宿主利用瘤胃微生物进行乳蛋白生物合成的需求。Amin等[7]发现,高乳蛋白和低乳蛋白奶牛的瘤胃微生物组成及其功能存在差异。目前,关于奶畜瘤胃微生物与乳脂合成调控之间的研究逐渐增多,但对奶山羊瘤胃微生物与乳蛋白合成之间相关性的报道较少,奶山羊瘤胃微生物与瘤胃发酵和乳蛋白合成的关系仍需进一步探究。因此,本研究旨在探究在相同饲粮结构及饲养环境下,不同乳蛋白率奶山羊的瘤胃发酵参数及瘤胃微生物区系的差异,并筛选出与乳蛋白合成相关的标志微生物,为研究奶山羊瘤胃微生物与乳蛋白合成的互作机制提供科学依据。

1 材料与方法

1.1 试验动物与样品采集

本试验方案已获得河南农业大学实验动物伦理委员会的批准(No.2022015)。
试验于2022年6月22日至2022年7月6日在西北农林科技大学萨能羊原种场进行。随机选择60只胎次相同(2胎次)、体重[(54.45±3.05) kg]相近、日产奶量[(1.41±0.23)kg/d]无显著差异(P>0.05),且均处于泌乳中后期[(150±5) d]的健康西农萨能奶山羊为试验对象。在相同饲养条件下饲养15 d,饲养期间每天记录日产奶量,每周采集奶样并测定乳成分。根据奶山羊的日产奶量及试验第1天和第8天的乳成分(n=60)测定结果,在群体中进一步挑选5只高乳蛋白率(3.21%,HP组)和5只低乳蛋白率(2.46%,LP组)的奶山羊作为研究对象,并在试验第15天,分别采集研究对象(n=5)的羊奶样品和瘤胃液样品,用于后续的检测及测序分析。

1.2 乳成分指标测定

试验期间,每天06:30和15:30饲喂前挤奶,2次挤奶的总量计为日产奶量,并统计15 d的日产奶量平均值。在试验第1、8和15天,将2次奶样按4∶6的比例混合,取50 mL,采用乳品分析仪(FOSS MilkScan FT-120,美国)测定乳成分指标。

1.3 瘤胃液采集及瘤胃发酵参数测定

在试验第15天晨饲前,通过瘤胃口腔导管法采集试验奶山羊(n=5)的瘤胃内容物。使用口腔导管抽取50 mL瘤胃液,使用PHB-4型pH计测定瘤胃液pH,4层无菌纱布过滤瘤胃液,分装于冻存管,立即投入液氮罐中速冻并转运至实验室。一部分用于瘤胃内挥发性脂肪酸(VFA)含量测定,一部分用于瘤胃微生物区系分析,另一部分于-80 ℃保存备用。VFA含量测定方法同王亚玲等[15],瘤胃液解冻后2 862×g离心10 min,取上清液加入0.2 mL的25%含内标物为巴豆酸的偏磷酸去蛋白溶液,混匀后冰浴30 min,9 610×g离心10 min后,用0.22 μm滤膜过滤上清,加入到2 mL棕色样品瓶,采用气相色谱仪Agilent-7890B(GC System, Hewlett Packard公司,美国)检测VFA的含量。

1.4 16S rDNA测序

瘤胃液样品委托广州基迪奥生物科技有限公司进行DNA提取、扩增和纯化。使用1.0%琼脂糖凝胶电泳观察DNA条带有无降解和断裂,使用紫外分光光度计NanoDrop 2000检测DNA的浓度和纯度。随后扩增16S rDNA的V3~V4区,特异性引物序列参照王亚玲等[15]:上游引物341F:5'-CCTACGGGNGGCWGCAG-3';下游引物806R:5'-GGACTACHVGGGTATCTAAT-3'。使用AMPure XP Beads对扩增产物进行纯化,用Qubit 3.0荧光定量仪(Thermo Fisher Scientific,美国)进行定量,根据NovaSeq 6000的PE250式pooling上机测序。使用QIIME 22019.4进行微生物组生物信息学分析。使用demux插件将原始序列数据解复用,然后用cutadapt插件切割引物。通过DADA 2插件进行序列的质量过滤、去噪、合并和嵌合体去除。根据相似性将上述序列分组以生成特征序列(ASV),并且通过使用Greengenes数据库将ASV的特征序列与数据库中的参考序列进行比较来获得对应于每个ASV的分类信息。通过对抽平后的ASV表进行统计,得到各个样品各分类水平下微生物区系的具体组成表,并利用QIIME 2(2019.4)软件绘制物种在门、属水平组成的柱状图。用R语言vegan包对Bray-Curtis距离矩阵进行非度量多维尺度(NMDS)分析。

1.5 数据统计分析

使用统计软件SPSS 24.0对数据进行处理分析,采用Student's t-test分析数据,试验数据以“平均值±标准差”表示,P<0.05为差异显著,P<0.01为差异极显著。使用非参数检验Anosim进行统计检验,判别2组样本的Beta多样性是否存在显著差异。使用非参数检验Mann-Whitney U test,对2组奶山羊的瘤胃微生物丰度差异进行统计分析。通过LefSe分析以定位2组奶山羊的标志性差异物种。通过GenesCloud平台(https://www.genescloud.cn)对奶山羊泌乳性能、瘤胃发酵参数及瘤胃微生物进行Spearman相关性分析。

2 结果

2.1 不同乳蛋白率奶山羊的乳成分分析

表1可知,2组奶山羊的日产奶量差异不显著(P>0.05)。HP组奶山羊的乳蛋白率极显著高于LP组(P<0.001)。2组奶山羊的其他乳成分指标(乳脂率、乳糖率、全乳总固体物含量和乳尿素氮含量)均无显著差异(P>0.05)。
表1 不同乳蛋白率奶山羊乳成分指标

Table 1 Milk component indexes in dairy goats with different milk protein percentages

项目
Items
组别Groups P
P-value
LP HP
日产奶量Daily milk yield/(kg/d) 1.41±0.11 1.27±0.24 0.273
乳蛋白率Milk protein percentage/% 2.46±0.19 3.21±0.18 <0.001
乳脂率Milk fat percentage/% 3.22±1.25 4.33±1.37 0.218
乳糖率Milk lactose percentage/% 4.23±0.15 4.27±0.20 0.681
全乳总固体物含量Whole milk total solids content/% 10.83±1.40 12.68±1.56 0.086
乳尿素氮含量MUN content/(mg/dL) 23.44±4.40 25.24±3.07 0.475

2.2 不同乳蛋白率奶山羊瘤胃发酵参数分析

表2可知,HP组奶山羊瘤胃液的pH低于LP组,但差异不显著(P>0.05)。HP组奶山羊瘤胃液中总挥发性脂肪酸(TVFA)含量和乙酸比例均显著高于LP组(P<0.05),而丙酸、丁酸、异丁酸、戊酸、异戊酸的比例极显著低于LP组(P<0.01),乙酸/丙酸极显著高于LP组(P=0.004)。
表2 不同乳蛋白率奶山羊瘤胃发酵参数

Table 2 Rumen fermentation parameters in dairy goats with different milk protein percentages

项目
Items
组别Groups P
P-value
LP HP
pH 7.05±0.13 6.91±0.13 0.126
总挥发性脂肪酸TVFA/(mmol/L) 15.76±1.45 28.46±8.31 0.010
乙酸Acetate/% 50.28±4.31 73.37±11.23 0.003
丙酸Propionate/% 23.06±1.82 14.84±4.68 0.006
丁酸Butyrate/% 19.90±2.78 11.68±2.72 0.001
异丁酸Isobutyrate/% 1.99±0.18 1.25±0.38 0.004
戊酸Valerate/% 1.34±0.15 0.80±0.28 0.005
异戊酸Isovalerate/% 3.43±0.31 2.08±0.74 0.005
乙酸/丙酸Acetate/propionate 2.20±0.38 5.36±1.69 0.004

2.3 不同乳蛋白率奶山羊瘤胃微生物区系

2.3.1 不同乳蛋白率奶山羊瘤胃微生物Alpha多样性分析

不同乳蛋白率奶山羊的瘤胃微生物的Alpha多样性分析结果显示(表3),HP组瘤胃微生物区系的Shannon指数和Pieloue指数均显著高于LP组(P<0.05),Chao1指数、Simpson指数、观察到的物种数高于LP组,但差异不显著(P>0.05)。
表3 不同乳蛋白率奶山羊瘤胃微生物Alpha多样性指数

Table 3 Alpha diversity indexes of rumen microbiota of dairy goats with different milk protein percentages

项目
Items
组别Groups P
P-value
LP HP
Chao1指数Chao1 index 5 826.21±672.78 6 127.68±589.24 0.473
Shannon指数Shannon index 8.17±0.96 9.55±0.74 0.033
Simpson指数Simpson index 0.93±0.05 0.98±0.01 0.069
观察到的物种数Number of observed species 4 464.84±596.66 5 025.26±634.8 0.188
Pieloue指数Pieloue index 0.67±0.07 0.78±0.05 0.026

2.3.2 不同乳蛋白率奶山羊瘤胃微生物Beta多样性分析

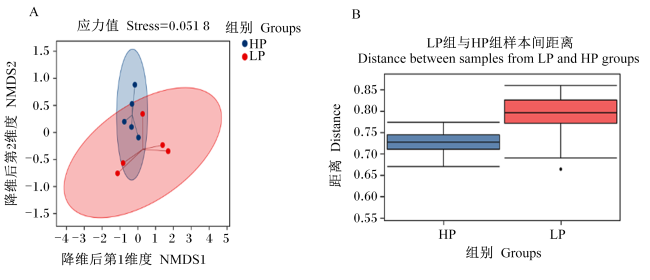
基于Bray-Curtis距离矩阵的NMDS展示分组间微生物区系的组成差异(图1-A),结果所示,LP组和HP组奶山羊瘤胃微生物样本明显聚为2类,但存在部分重合,2个组组内样本聚类较好,HP组组内样本差异较小。NMDS结果的应力值(Stress)为0.051 8,当Stress<0.2时,NMDS分析的结果较可靠。此外,Anosim检验(图1-B)显示2组奶山羊样本的组间差异大于组内差异,2组奶山羊瘤胃微生物组成存在显著差异(P=0.046)。
图1 不同乳蛋白率奶山羊瘤胃微生物的非度量多维尺度分析(A)和非参数检验(B)

Fig.1 NMSD analysis (A) and Anosim (B) of rumen microbiota at ASV level of dairy goats with different milk protein percentages

2.3.3 不同乳蛋白率奶山羊瘤胃微生物区系组成分析

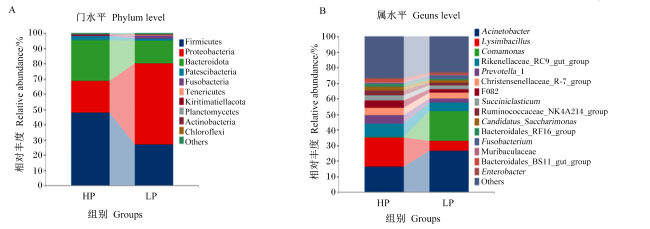
从门和属水平上探究高乳蛋白率和低乳蛋白率奶山羊瘤胃微生物区系的组成。如图2-A所示,在门水平上相对丰度平均值排名前10的物种中,厚壁菌门、拟杆菌门、变形菌门为2组奶山羊的优势菌门。HP组厚壁菌门的相对丰度(47.48%)高于LP组(26.85%),HP组拟杆菌门的相对丰度(26.67%)高于LP组(14.72%),HP组变形菌门的相对丰度(20.98%)低于LP组(53.21%)。如图2-B所示,2组样品在属水平上相对丰度平均值排名前15的物种中,优势菌属主要包括不动杆菌属、赖氨酸芽孢杆菌属、丛毛单胞菌属、理研菌科RC9肠道群。HP组赖氨酸芽孢杆菌属的相对丰度(18.38%)高于LP组(6.40%),HP组普雷沃氏菌属-1的相对丰度(15.61%)高于LP组(2.73%)。
图2 不同乳蛋白率奶山羊瘤胃微生物组成

Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Bacteroidota:拟杆菌门;Patescibacteria:髌骨菌门;Fusobacteria:梭杆菌门;Tenericutes:软壁菌门;Planctomycetes:浮霉菌门;Actinobacteria:放线菌门;Chloroflexi:绿弯菌门;Others:其他;Acinetobacter:不动杆菌属;Lysinibacillus:赖氨酸芽孢杆菌属;Comamonas:丛毛单胞菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Prevotella_1:普雷沃氏菌属-1;Christensenellaceae_R-7_group:克里斯滕菌科R-7群;Succiniclasticum:解琥珀酸菌属;Ruminococcaceae_NK4A214_group:瘤胃球菌科NK4A214群;Bacteroidales_RF16_group:拟杆菌目RF16群;Fusobacterium:梭杆菌属;Bacteroidales_BS11_gut_group:拟杆菌目BS11肠道群;Enterobacter:肠杆菌属。

Fig.2 Rumen microbial composition of dairy goats with different milk protein percentages

2.3.4 不同乳蛋白率奶山羊瘤胃差异微生物分析

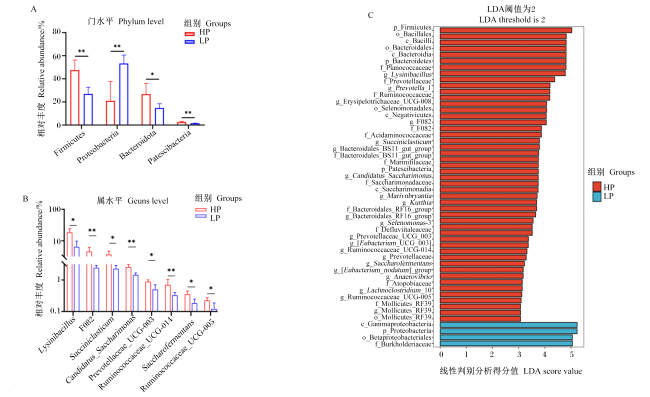
对HP组和LP组奶山羊的瘤胃微生物丰度差异进行统计分析,Mann-Whitney U检验结果如图3-A所示,相对丰度排名前10的菌门中有4个菌门的相对丰度在不同乳蛋白率奶山羊中具有显著差异(P<0.05)。HP组中厚壁菌门、拟杆菌门和髌骨菌门的相对丰度均显著高于LP组(P<0.05),变形菌门的相对丰度极显著低于LP组(P<0.01)。如图3-B所示,相对丰度排名前50的菌属中有8个属的相对丰度在不同乳蛋白率奶山羊中存在显著差异(P<0.05)。HP组中赖氨酸芽孢杆菌属、F082、解琥珀酸菌属、Candidatus_Saccharimonas、普雷沃氏菌科UCG-003、瘤胃球菌科UCG-014、产乙酸糖发酵菌属和瘤胃球菌科UCG-005的相对丰度均显著高于LP组(P<0.05)。
图3 不同乳蛋白率奶山羊瘤胃差异微生物分析

*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。* represents significant difference (P<0.05), and ** represents extremely significant difference (P<0.01).

Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Bacteroidota:拟杆菌门;Patescibacteria:髌骨菌门;Lysinibacillus:赖氨酸芽孢杆菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Succiniclasticum:解琥珀酸菌属;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;Saccharofermentans:产乙酸糖发酵菌属;Ruminococcaceae_UCG-005:瘤胃球菌科UCG-005;Bacillales:芽孢杆菌目;Bacilli:芽孢杆菌纲;Bacteroidales:拟杆菌目;Bacteroidia:拟杆菌纲;Bacteroidetes:拟杆菌门;Planococcaceae:动球菌科;Lysinibacillus:赖氨酸芽孢杆菌属;Prevotellaceae:普雷沃氏菌科;Prevotella_1:普雷沃氏菌属-1;Ruminococcaceae:瘤胃球菌科;Erysipelotrichaceae_UCG-008:丹毒丝菌科UCG-008;Selenomonadales:月形单胞菌目;Acidaminococcaceae:氨基酸球菌科;Succiniclasticum:解琥珀酸菌属;Bacteroidales_BS11_gut_group:拟杆菌目BS11肠道群;Patescibacteria:髌骨菌门;Kurthia:库特菌属;Bacteroidales_RF16_group:拟杆菌目RF16群;Selenomonas-3:月形单胞菌属-3;Prevotellaceae_UCG_003:普雷沃氏菌科UCG-003;Ruminococcaceae_UCG-014:瘤胃球菌科UCG-014;Prevotellaceae:普雷沃氏菌科;Saccharofermentans:产乙酸糖发酵菌属;Anaerovibrio:厌氧弧菌属;Atopobiaceae:奇异菌科;Ruminococcaceae_UCG-005:瘤胃球菌科UCG-005;Gammaproteobacteria:变形菌纲;Proteobacteria:变形菌门;Betaproteobacteriales:β-变形菌目;Burkholderiaceae:伯克氏菌科。

Fig.3 Analysis of rumen differential microbiota in dairy goats with different milk protein percentages

LefSe分析(图3-C)显示了在2组中具有差异代表性的细菌分类群,赖氨酸芽孢杆菌属、普雷沃氏菌属-1、丹毒丝菌科UCG-008、解琥珀酸菌属、拟杆菌目BS11群、Candidatus_SaccharimonasMarvinbryantia、拟杆菌目RF16群、月形单胞菌属-3、Defluviitaleaceae_UCG-011、普雷沃氏菌科UCG-003、瘤胃球菌科UCG-014、普雷沃氏菌科、产乙酸糖发酵菌属、厌氧弧菌属、瘤胃球菌科UCG-005、Lachnoclostridium_10、Mollicutes_RF39等在HP组显著富集(P<0.05)。变形菌纲、变形菌门、β-变形菌目和伯克氏菌科在LP组显著富集(P<0.05)。

2.4 奶山羊泌乳性能、瘤胃发酵参数与瘤胃微生物关联分析

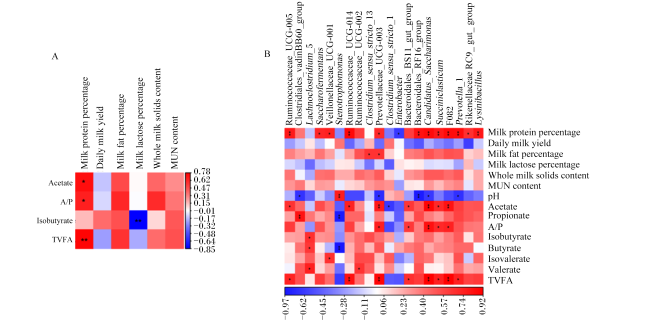
奶山羊瘤胃发酵参数与泌乳性能的相关性如图4-A所示,乳蛋白率与乙酸含量(r=0.733, P=0.016)、TVAF含量(r=0.782, P=0.008)和乙酸/丙酸(r=0.661, P=0.038)呈显著正相关,乳糖率与异丁酸比例(r=-0.799, P=0.006)呈显著负相关。奶山羊瘤胃发酵参数、泌乳性能与瘤胃微生物的相关性如图4-B所示,乳蛋白率与赖氨酸芽孢杆菌属(r=0.794, P=0.006)、理研菌科RC9肠道群(r=0.673, P=0.033)、普雷沃氏菌属-1(r=0.842, P=0.002)、解琥珀酸菌属(r=0.782, P=0.008)、Candidatus_Saccharimonas(r=0.855, P=0.002)、拟杆菌目RF16群(r=0.818, P=0.004)、普雷沃氏菌科UCG-003(r=0.709, P=0.022)、瘤胃球菌科UCG-014(r=0.867, P=0.001)、韦荣球菌科_UCG-001(r=0.745, P=0.013)、产乙酸糖发酵菌属(r=0721, P=0.019)、瘤胃球菌科UCG-005(r=0.782, P=0.008)的相对丰度呈显著正相关,与肠杆菌属相对丰度(r=-0.632, P=0.049)呈显著负相关。乳脂率与普雷沃氏菌科UCG-003的相对丰度(r=0.661, P=0.036)呈显著正相关。乙酸比例与解琥珀酸菌属(r=0.709, P=0.217)、Candidatus_Saccharimonas(r=0.891, P=0.001)、普雷沃氏菌科UCG-003(r=0.782, P=0.008)、瘤胃球菌科UCG-014(r=0.745, P=0.014)的相对丰度呈显著正相关。
图4 奶山羊瘤胃发酵参数、泌乳性能与瘤胃微生物相关性分析

每一对变量之间的相关强度用颜色和*表示,*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。用红色表示相关系数接近+1,蓝色表示相关系数接近-1。The correlation strength between each pair of variables is represented by color and *. * indicates significant correlation (P<0.05), and ** indicates highly significant correlation (P<0.01). Red indicates a correlation coefficient close to +1, and blue indicates a correlation coefficient close to -1.

Acetate:乙酸;A/P:乙酸/丙酸 acetate/propionate;Isobutyrate:异丁酸;Milk protein percentage:乳蛋白率;Daily milk yield:日产奶量;Milk fat percentage:乳脂率;Milk lactose percentage:乳糖率;Whole milk solids content:全乳总固体物含量;MUN content:乳尿素氮含量;Propionate:丙酸;Butyrate:丁酸;Isovalerate:异戊酸;Valerate:戊酸;TVFA:总挥发性脂肪酸 total volatile fatty acids;Lysinibacillus:赖氨酸芽孢杆菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Prevotella_1:普雷沃氏菌属-1;Succiniclasticum:解琥珀酸菌属;Bacteroidales_RF16_group:拟杆菌目RF16群;Bacteroidales_BS11_gut_group:拟杆菌目BS11肠道群;Enterobacter:肠杆菌属;Clostridium_sensu_stricto_1:狭义梭菌属1;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;Clostridium_sensu_stricto_13:狭义梭菌属13;Ruminococcaceae_UCG-002:瘤胃球菌科UCG-002;Ruminococcaceae_UCG-014:瘤胃球菌科UCG-014;Stenotrophomonas:寡养单胞菌属;Veillonellaceae_UCG-001:韦荣球菌科_UCG-001;Saccharofermentans:产乙酸糖发酵菌属;Ruminococcaceae_UCG-005:瘤胃球菌科UCG-005。

Fig.4 Analysis of correlation between rumen fermentation parameters, lactation performance, and rumen microbiota in dairy goats

3 讨论

3.1 不同乳蛋白率奶山羊瘤胃发酵参数比较

反刍动物的瘤胃液pH是评价瘤胃内环境稳定性的重要指标之一,可反映瘤胃微生物发酵活动,正常的瘤胃液pH为5.5~7.5[16-17]。本研究结果显示,HP组和LP组奶山羊瘤胃液的pH分别为6.91和7.05,均处于正常范围内,表明2组奶山羊瘤胃内环境稳定,瘤胃微生物发酵活动正常。饲料中纤维素分解产生的VFA使瘤胃酸度降低[18],本研究中,HP组奶山羊瘤胃中具有更多的纤维素降解菌,产生了较高含量的VFA,使得其瘤胃液pH低于LP组。反刍动物瘤胃中栖息着大量的微生物,包括细菌、古菌、真菌和原虫等[5],这些瘤胃微生物降解碳水化合物产生VFA,它们共同维持瘤胃微生态稳定、对宿主生长、生产性能及机体健康至关重要[19-20]。乙酸、丙酸和丁酸作为瘤胃微生物发酵的主要产物,它们共同提供了宿主近70%的能量需求[21-22],乳蛋白合成的前体物质大部分来自瘤胃发酵产物,其含量和比例是影响乳蛋白合成的主要因素[23]。本研究中,与LP组奶山羊相比,HP组奶山羊瘤胃液中TVFA的含量、乙酸比例和乙酸/丙酸显著升高,这可能是由于HP组奶山羊瘤胃微生物的多样性及丰富度增高,几种纤维降解菌的相对丰度升高,提高了对纤维素的降解水平,从而促进VFA的产生。瘤胃乙酸/丙酸可以用来评价瘤胃发酵模式,相较于LP组奶山羊,HP组奶山羊的乙酸/丙酸显著升高,使瘤胃发酵更趋向于乙酸型发酵,为奶山羊提供更多的能量。Fan等[13]研究发现,高乳蛋白产量牦牛的瘤胃液中TVFA、乙酸、丙酸和异丁酸含量高于乳蛋白产量低的奶牛。Xue等[24]研究发现,高产奶量和高乳蛋白含量奶牛的瘤胃中TVFA、丙酸、丁酸、戊酸和异丁酸的含量高于低产奶量和低乳蛋白含量奶牛。Weimer等[25]发现与低产奶效率荷斯坦奶牛相比,高产奶效率荷斯坦奶牛具有更高含量的VFA,这可能归因于瘤胃细菌群落的差异。Tong等[26]高产奶牛瘤胃发酵产生的VFA含量高于低产奶牛。这些报道均与本研究结果一致。有研究发现,乙酸可以调控奶牛乳腺对氨基酸的摄取,促进乳蛋白合成相关基因αS1-酪蛋白(CSN1S1)、κ-酪蛋白(CSN3)、Janus激酶2(JACK2)和信号转导及转录激活因子5(STAT5)mRNA的表达,进而调控乳蛋白合成[27-28],乙酸也可作为信号分子调节下丘脑的分泌功能,影响与泌乳相关激素的释放,进而影响乳蛋白的合成[23]。同时,乙酸盐可以通过一磷酸腺苷(AMP)激活的激酶信号通路影响蛋白质合成[29]。生冉[30]研究表明,添加6 mmol/L的乙酸盐会上调牛乳腺上皮细胞中β-酪蛋白(CSN2)、CSN3 mRNA的相对表达量以及CSN2的蛋白表达水平,表明乙酸作为乳脂合成的前体物同时影响乳脂和乳蛋白的合成。郭咏梅等[31]也发现,在奶牛乳腺上皮细胞中单独添加0.006 mol/L的乙酸盐更利于乳蛋白的合成。本研究发现,高乳蛋白率奶山羊瘤胃能够产生更多的乙酸、TVFA,关联分析显示乙酸比例、TVFA含量与乳蛋白率存在一定相关性,表明高乳蛋白率奶山羊经瘤胃微生物发酵产生的TVFA及乙酸可能为宿主的乳蛋白合成提供了更多的能量。

3.2 不同乳蛋白率奶山羊瘤胃微生物区系比较

本研究发现,不同乳蛋白率奶山羊瘤胃中的差异微生物与乳蛋白率显著相关。厚壁菌门和拟杆菌门是瘤胃中的优势菌门,它们参与饲粮的消化吸收和能量代谢,并抵御外来病原菌入侵[21],而这2种菌门均在高乳蛋白率奶山羊中显著富集。厚壁菌门主要包括多种纤维溶解和纤维素分解菌属[21],拟杆菌门能够促进瘤胃中结构多糖的分解,还可以将氨基酸发酵成乙酸[32]。产乙酸糖发酵菌属含有多种碳水化合物活化酶,可发酵淀粉或碳水化合物产生延胡索酸、乳酸和乙酸[33]Candidatus_Saccharimonas已被证明参与多糖的代谢和氨基酸的生物合成[34],Wang等[35]也发现,Candidatus_Saccharimonas相对丰度与丙酸、丁酸和氨基酸含量呈显著正相关,普雷沃氏菌属、普雷沃氏菌科UCG-003相对丰度与乙酸盐摩尔比呈正相关。本试验发现,普雷沃氏菌科及其属(普雷沃氏菌科、普雷沃氏菌属-1、普雷沃氏菌科UCG-003)均在高乳蛋白率奶山羊瘤胃中显著富集。相关分析表明,普雷沃氏菌属-1、普雷沃氏菌科UCG-003可能对乳蛋白率、乙酸和TVFA含量产生积极影响。这些微生物可以利用纤维素、淀粉和蛋白质等多种底物,主要产生乙酸、丁酸和丙酸等[36-37]。Fan等[38]研究发现,牦牛的乳蛋白含量与瘤胃中普雷沃氏菌属-1的相对丰度呈正相关。Xue等[14]研究发现,普雷沃氏菌是奶牛牛奶蛋白合成前体的重要贡献者,多种普雷沃氏菌在高乳蛋白产量奶牛的瘤胃中显著丰富,其有助于改善与支链氨基酸生物合成相关的功能,可能影响宿主氨基酸代谢,这些与本研究结果一致。Pedersen等[39]也发现,普雷沃氏菌相对丰度与氨基酸代谢呈正相关,尤其是支链氨基酸。Zhang等[8]发现,普雷沃氏菌属和瘤胃球菌属可以通过影响瘤胃中L-酪氨酸和L-色氨酸来调节乳蛋白合成。总体而言,这些研究表明,普雷沃氏菌对乳蛋白前体的合成至关重要。前人研究结果表明,瘤胃球菌科的成员高度参与纤维素分解和淀粉水解,具有加强肠道屏障和免疫调节等有益的生理功能[40-41]。普雷沃氏菌科的成员、瘤胃球菌科的成员以及Candidatus_Saccharimonas,因其与奶山羊的高乳蛋白率存在显著正相关而被鉴定出来,并且这些微生物与乙酸、TVFA含量等呈正相关,这些瘤胃关键微生物的变化可能与瘤胃发酵参数和乳成分的显著差异密切相关,进而可能对奶山羊的泌乳产生影响。这些标志性瘤胃微生物有助于碳水化合物和蛋白质代谢功能,在VFA的合成中起着重要作用,促进高乳蛋白率奶山羊瘤胃中乙酸、TVFA的产生,为奶山羊提供更多的能量。在高乳蛋白率奶山羊的瘤胃中,微生物的多样性和丰度以及标志性瘤胃微生物为宿主创造了一个极好的瘤胃微生物环境,使其能够生产更多的VFA为机体提供能量。

4 结论

不同乳蛋白率奶山羊的瘤胃发酵产物、瘤胃微生物组成、丰富度和多样性存显著差异。高乳蛋白率奶山羊瘤胃液中乙酸比例和TVFA含量显著高于低乳蛋白率奶山羊。赖氨酸芽孢杆菌属、普雷沃氏菌属-1、解琥珀酸菌属、Candidatus_Saccharimonas、拟杆菌目RF16群、普雷沃氏菌科UCG-003、瘤胃球菌科UCG-014、产乙酸糖发酵菌属、瘤胃球菌科UCG-005的相对丰度在高和低乳蛋白率奶山羊之间存在显著差异,可作为高乳蛋白率奶山羊的潜在标志性瘤胃微生物。
[1]
STERGIADIS S, NØRSKOV N P, PURUP S, et al. Comparative nutrient profiling of retail goat and cow milk[J]. Nutrients, 2019, 11(10):2282.

[2]
史怀平, 罗军, 党立峰, 等. 山羊奶的营养成分及营养价值的提高途径[J]. 黑龙江畜牧兽医, 2017(5):118-122.

SHI H P, LUO J, DANG L F, et al. Review on improvement approaches of nutrition composition and nutritional value in goat milk[J]. Heilongjiang Animal Science and Veterinary Medicine, 2017(5):118-122. (in Chinese)

[3]
王砀砀. 奶山羊消化道微生物特征及其长期影响胃肠道发酵和生产性能的机制[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2023.

WANG D D. The digestive tract microbiome features of dairy goats and their long-term effects on gastrointestinal fermentation and production performance[D]. Ph.D.Thesis. Yangling: Northwest A & F University, 2023. (in Chinese)

[4]
庞承义. 规模奶牛场提高奶牛乳蛋白含量的营养调控技术综述[J]. 中国乳业, 2024(5):69-73,78.

PANG C Y. A review of nutritional regulation techniques to increase milk protein content of dairy cows in large-scale dairy farms[J]. China Dairy, 2024(5):69-73,78. (in Chinese)

[5]
薛茗元. 瘤胃微生态影响奶牛乳蛋白产量的作用机制[D]. 博士学位论文. 杭州: 浙江大学, 2020.

XUE M Y. Mechanism of rumen microbiome involved in milk protein yield in lactating dairy cows[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2020. (in Chinese)

[6]
WANG X, ZENG H, XU J, et al. Characteristics of ruminal microbiota and metabolome in Holstein cows differing in milk protein concentrations[J]. Journal of Animal Science, 2022, 100(11):skac253.

[7]
AMIN A B, ZHANG L, ZHANG J, et al. Metagenomics analysis reveals differences in rumen microbiota in cows with low and high milk protein percentage[J]. Applied Microbiology and Biotechnology, 2023,107:4887-4902.

[8]
ZHANG C G, WANG M Y, LIU H F, et al. Multi-omics reveals that the host-microbiome metabolism crosstalk of differential rumen bacterial enterotypes can regulate the milk protein synthesis of dairy cows[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):63.

DOI PMID

[9]
WALLACE R J, SASSON G, GARNSWORTHY P C, et al. A heritable subset of the core rumen microbiome dictates dairy cow productivity and emissions[J]. Science Advances, 2019, 5(7):eaav8391.

[10]
JIANG B X, QIN C B, XU Y X, et al. Multi-omics reveals the mechanism of rumen microbiome and its metabolome together with host metabolome participating in the regulation of milk production traits in dairy buffaloes[J]. Frontiers in Microbiology, 2024,15:1301292.

[11]
BAI H, LAI Z, ZHANG J W, et al. Host genetic regulation of specific functional groups in the rumen microbiome of dairy cows: implications for lactation trait[J]. Journal of advanced research, 2024, 11(12):S 2090-1232(24)00531-9.

[12]
沈子亮, 王全, 曹辉, 等. 不同乳脂率奶牛瘤胃微生物及其代谢物差异分析[J]. 动物营养学报, 2022, 34(5):3000-3011.

DOI

SHEN Z L, WANG Q, CAO H, et al. Differential analysis of rumen microbes and their metabolites for dairy cows with different milk fat percentages[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):3000-3011. (in Chinese)

DOI

[13]
FAN Q S, WANAPAT M, HOU F J. Rumen bacteria influence milk protein yield of yak grazing on the Qinghai-Tibet plateau[J]. Animal Bioscience, 2021, 34(9):1466-1478.

[14]
XUE M Y, SUN H Z, WU X H, et al. Multi-omics reveals that the rumen microbiome and its metabolome together with the host metabolome contribute to individualized dairy cow performance[J]. Microbiome, 2020, 8(1):64.

[15]
王亚玲, 孔鹏辉, 袁冬冬, 等. 饲粮添加乙酸钠对奶山羊泌乳性能和瘤胃微生物区系的影响[J]. 动物营养学报, 2023, 35(1):428-438.

DOI

WANG Y L, KONG P H, YUAN D D, et al. Effects of dietary sodium acetate on lactation performance and rumen microbiota of dairy goats[J]. Chinese Journal of Animal Nutrition, 2023, 35(1):428-438. (in Chinese)

DOI

[16]
凌浩. 血根碱对奶山羊生产性能、血液指标和瘤胃功能的影响[D]. 硕士学位论文. 长沙: 湖南农业大学, 2021.

LING H. Effects of sanguinarine on production performance,blood indexes and rumen function of dairy goats[D]. Master's Thesis. Changsha: Hunan Agricultural University, 2021. (in Chinese)

[17]
姚海博, 胡晋升, 孙晨旭, 等. 沙葱粉对牦牛瘤胃体外发酵参数、营养物质降解率及微生物区系的影响[J]. 动物营养学报, 2024, 36(6):3739-3755.

DOI

YAO H B, HU J S, SUN C X, et al. Effects of Allium mongolicum regel powder on rumen in vitro fermentation parameters,nutrient degradation rate and microflora of yaks[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3739-3755. (in Chinese)

[18]
于锦皓, 郎朝丽, 于维, 等. 反刍动物瘤胃微生物蛋白合成的影响因素[J]. 黑龙江畜牧兽医, 2018(9):45-48.

YU J H, LANG C L, YU W, et al. Factors influencing rumen microbial protein synthesis in ruminants[J]. Heilongjiang Animal Science and Veterinary Medicine, 2018(09):45-48. (in Chinese)

[19]
仝钰洁, 魏勇, 马晓姣, 等. 影响奶牛乳蛋白合成的主要营养因素分析[J]. 饲料工业, 2023, 44(5):84-88.

TONG Y J, WEI Y, MA X J, et al. Analysis of the main nutritional factors affecting milk protein synthesis in dairy cattle[J]. Feed Industry, 2023, 44(5):84-88. (in Chinese)

[20]
罗治杰, 马露, 卜登攀, 等. 瘤胃发酵产物乙酸和丙酸比对奶牛生产性能及乳成分影响的荟萃分析[J]. 中国畜牧兽医, 2021, 48(5):1613-1624.

DOI

LUO Z J, MA L, BU D P, et al. Meta-analysis:how the ruminal acetic acid to propionic acid ratio affect the production and milk composition of dairy cow[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(5):1613-1624. (in Chinese)

[21]
ZHANG Y K, ZHANG X X, LI F D, et al. Characterization of the rumen microbiota and its relationship with residual feed intake in sheep[J]. Animal, 2021, 15(3):100161.

[22]
WU X, HUANG S, HUANG J F, et al. Identification of the potential role of the rumen microbiome in milk protein and fat synthesis in dairy cows using metagenomic sequencing[J]. Animals, 2021, 11(5):1247.

[23]
余烨, 陶杨, 付斌龙, 等. 泌乳相关因子对乳蛋白合成影响的研究进展[J]. 饲料研究, 2021, 44(16):124-127.

YU Y, TAO Y, FU B L, et al. Research progress on effect of lactation related factors on milk protein synthesis[J]. Feed Research, 2021, 44(16):124-127. (in Chinese)

[24]
XUE M Y, SUN H Z, WU X H, et al. Assessment of rumen bacteria in dairy cows with varied milk protein yield[J]. Journal of Dairy Science, 2019, 102(6):5031-5041.

DOI PMID

[25]
WEIMER P J, COX M S, VIEIRA DE PAULA T, et al. Transient changes in milk production efficiency and bacterial community composition resulting from near-total exchange of ruminal contents between high- and low-efficiency Holstein cows[J]. Journal of Dairy Science, 2017, 100(9):7165-7182.

DOI PMID

[26]
TONG J J, ZHANG H, YANG D L, et al. Illumina sequencing analysis of the ruminal microbiota in high-yield and low-yield lactating dairy cows[J]. PLoS One, 2018, 13(11):e0198225.

[27]
赵艳丽, 刘锦涛, 闫素梅. 乙酸与蛋氨酸互作效应对奶牛乳腺上皮细胞内乳蛋白合成的影响[J]. 饲料研究, 2023, 46(1):85-90.

ZHAO Y L, LIU J T, YAN S M. Effect of interaction between acetic acid and methionine on milk protein synthesis in bovine mammary epithelial cells[J]. Feed Research, 2023, 46(1):85-90. (in Chinese)

[28]
ZHAO Y L, YAN S M, CHEN L, et al. Effect of interaction between leucine and acetate on the milk protein synthesis in bovine mammary epithelial cells[J]. Animal Science Journal, 2019, 90(1):81-89.

DOI PMID

[29]
RICO D E, PARALES J E, CORL B A, et al. Abomasally infused SFA with varying chain length differently affect milk production and composition and alter hepatic and mammary gene expression in lactating cows[J]. The British Journal of Nutrition, 2020, 124(4):386-395.

DOI PMID

[30]
生冉. 乙酸参与奶牛乳腺上皮细胞内乳脂肪与乳蛋白合成的调控机理研究[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2015.

SHENG R. Regulation mechanism of acetate involved in milk fat and milk protein synthesis in the bovine mammary epithelial cells[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2015. (in Chinese)

[31]
郭咏梅, 刘阳, 武汭, 等. 维生素A和乙酸交互作用对奶牛乳腺上皮细胞中乳成分合成相关基因表达的影响[J]. 中国农业科学, 2023, 56(21):4344-4358.

DOI

GUO Y M, LIU Y, WU R, et al. Effect of interaction between vitamin A and acetic acid on the expression of genes related to milk composition synthesis in bovine mammary epithelial cells[J]. Scientia Agricultura Sinica, 2023, 56(21):4344-4358. (in Chinese)

DOI

[32]
CALLAWAY T R, DOWD S E, EDRINGTON T S, et al. Evaluation of bacterial diversity in the rumen and feces of cattle fed different levels of dried distillers grains plus solubles using bacterial tag-encoded FLX amplicon pyrosequencing[J]. Journal of Animal Science, 2010, 88(12):3977-3983.

DOI PMID

[33]
WANG S M, CHEN L, HE M Z, et al. Different rearing conditions alter gut microbiota composition and host physiology in Shaoxing ducks[J]. Scientific Reports, 2018, 8(1):7387.

[34]
OGUNADE I, SCHWEICKART H, MCCOUN M, et al. Integrating 16S rRNA sequencing and LC-MS-based metabolomics to evaluate the effects of live yeast on rumen function in beef cattle[J]. Animals:an Open Access Journal From MDPI, 2019, 9(1):28.

[35]
WANG D, CHEN L, TANG G, et al. Multi-omics revealed the long-term effect of ruminal keystone bacteria and the microbial metabolome on lactation performance in adult dairy goats[J]. Microbiome, 2023, 11(1):215.

DOI PMID

[36]
METZLER-ZEBELI B U, SCHMITZ-ESSER S, KLEVENHUSEN F, et al. Grain-rich diets differently alter ruminal and colonic abundance of microbial populations and lipopolysaccharide in goats[J]. Anaerobe, 2013,20:65-73.

[37]
张洁, 张力莉, 徐晓锋. 反刍动物瘤胃内普雷沃氏菌的研究进展[J]. 中国饲料, 2020(7):17-21.

ZHANG J, ZHANG L L, XU X F. Research progress of Prevotella in the rumen of ruminants[J]. China Feed, 2020(7):17-21. (in Chinese)

[38]
FAN Q S, WANAPAT M, HOU F J. Chemical composition of milk and rumen microbiome diversity of yak,impacting by herbage grown at different phenological periods on the Qinghai-Tibet plateau[J]. Animals, 2020, 10(6):1030.

[39]
PEDERSEN H K, GUDMUNDSDOTTIR V, NIELSEN H B, et al. Human gut microbes impact host serum metabolome and insulin sensitivity[J]. Nature, 2016, 535(7612):376-381.

[40]
KLIEVE A V, MCLENNAN S R, OUWERKERK D. Persistence of orally administered Megasphaera elsdenii and Ruminococcus bromii in the rumen of beef cattle fed a high grain (barley) diet[J]. Animal Production Science, 2012,52:297-304.

[41]
NAVA G M, STAPPENBECK T S. Diversity of the autochthonous colonic microbiota[J]. Gut Microbes, 2011, 2(2):99-104.

DOI PMID

文章导航

/