研究论文

产蛋后期蛋鸡肝脂率对脂质代谢指标及肝脏基因表达的差异分析

  • 李永峰 ,
  • 曲亮 ,
  • 邵丹 ,
  • 王强 ,
  • 卢建 ,
  • 窦套存 ,
  • 王星果 ,
  • 马猛 ,
  • 胡玉萍 ,
  • 郭军 ,
  • 郭伟 ,
  • 童海兵 , *
展开
  • 江苏省家禽科学研究所,扬州 225125
* 童海兵,研究员,硕士生导师,E-mail:

李永峰(1989—),男,河南新乡人,助理研究员,硕士,研究方向为家禽遗传育种与繁殖。E-mail:

Copy editor: 武海龙

收稿日期: 2024-10-24

  网络出版日期: 2025-05-14

基金资助

科技创新2030-重大项目(2023ZD04052)

现代农业产业技术体系专项资金项目(CARS-40-S23)

Differential Analysis of Lipid Metabolic Indices and Liver Gene Expression in Different Hepatic Lipid Ratio Laying Hens during Later Laying Period

  • LI Yongfeng ,
  • QU Liang ,
  • SHAO Dan ,
  • WANG Qiang ,
  • LU Jian ,
  • DOU Taocun ,
  • WANG Xingguo ,
  • MA Meng ,
  • HU Yuping ,
  • GUO Jun ,
  • GUO Wei ,
  • TONG Haibing , *
Expand
  • Jiangsu Institute of Poultry Science, Yangzhou 225125, China
* professor, E-mail:

Received date: 2024-10-24

  Online published: 2025-05-14

摘要

本试验旨在比较产蛋后期高、低肝脂率蛋鸡脂质代谢指标及肝脏基因表达差异,筛选肝脏脂质沉积相关评价指标及重要候选基因和信号通路。随机选取62周龄海兰褐蛋鸡147只,测定每只鸡体重、体尺及血浆、屠宰和肝脏抗氧化等脂质代谢相关指标。将肝脂率小于5%的蛋鸡定为低肝脂率组(L组),肝脂率大于5%的蛋鸡定为高肝脂率组(H组)。从中选取肝脂率最高的4个样品和肝脂率最低的4个样品,构建8个转录组测序文库。使用Fastp、Bowtie 2、HISAT等软件对原始数据进行质控及比对分析,利用RSEM软件计算样本基因表达量。使用DESeq2软件进行基因表达差异分析,利用GO和KEGG数据库对差异表达基因进行富集分析。结果表明:43只蛋鸡肝脂率小于5%,101只蛋鸡肝脂率在5%~10%,3只蛋鸡肝脂率大于10%。2组间肝脂率差异极显著(P<0.01)。H组肝脏质量、肝脏指数、腹脂质量、腹脂指数及肝脏表面颜色亮度(L*)、黄度(b*)值极显著高于L组(P<0.01)。H组体重极显著高于L组(P<0.01),体斜长、胫长显著高于L组(P<0.05)。H组血浆甘油三酯(TG)和总胆固醇(TC)含量极显著高于L组(P<0.01)。体重与肝脂率呈极显著中等相关(P<0.01),体斜长和血浆TG含量与肝脂率呈显著弱相关(P<0.05)。与L组相比,H组肝脏有5个基因表达显著上调(P<0.05),3个基因表达显著下调(P<0.05)。其中,胆碱激酶α(CHKA)与脂质代谢相关,Discoidin、CUB和LCCL结构域Ⅰ型(DCBLD1)与糖代谢相关,前列腺素E受体3(PTGER3)、前列腺素还原酶2(PTGR2)和四次跨膜蛋白1(TSPAN1)与细胞炎症反应相关。GO和KEGG富集分析结果表明,甘油磷脂代谢通路是唯一有显著性差异的通路(P<0.05),CHKA是该通路的唯一富集基因。由此可见,产蛋后期蛋鸡体重、体斜长可能是蛋鸡肥胖程度的重要评价指标;血浆TG和TC含量可能是肝脏脂质沉积的重要评价指标;甘油磷脂代谢通路可能是蛋鸡肝脏脂质沉积的重要信号通路,CHKA可能是该通路中影响脂质沉积的重要基因。

本文引用格式

李永峰 , 曲亮 , 邵丹 , 王强 , 卢建 , 窦套存 , 王星果 , 马猛 , 胡玉萍 , 郭军 , 郭伟 , 童海兵 . 产蛋后期蛋鸡肝脂率对脂质代谢指标及肝脏基因表达的差异分析[J]. 动物营养学报, 2025 , 37(5) : 3342 -3354 . DOI: 10.12418/CJAN2025.275

Abstract

This experiment was conducted to screen evaluation indices related to liver lipid deposition and important candidate genes and signaling pathways by comparing the differences of lipid metabolic indices and liver gene expression in different hepatic lipid ratio laying hens during the later laying period. A total of 147 Hy-Line brown laying hens at 62 weeks of age were randomly selected, and the indices related to lipid metabolic were measured, such as body weight, body measurement and plasma, slaughter and liver antioxidant indices. Hens with a hepatic lipid ratio less than 5% were classified as the low lipid content group (L group), and those with a hepatic lipid ratio greater than 5% were classified as the high lipid content group (H group). The 4 samples with the highest hepatic lipid ratio and 4 samples with the lowest hepatic lipid ratio were selected to construct 8 RNA-seq libraries. We performed quality control and comparative analysis on the raw data by the Fastp, Bowtie 2, HISAT software, calculated the gene expression level of the sample by the RSEM software, performed differential gene expression analysis by the DESeq2 software, and performed enrichment analysis on differentially expressed genes by GO and KEGG databases. The results showed that 43 laying hens had a hepatic lipid ratio of less than 5%, 101 laying hens had a hepatic lipid ratio between 5% and 10%, and 3 laying hens had a hepatic lipid ratio of more than 10%. The hepatic lipid ratio between the two groups was significant difference (P<0.01). The liver weight, liver index, abdominal fat weight, abdominal fat index, and liver surface color of brightness (L*) and yellowness (b*) values of group H were significantly higher than those of group L (P<0.01). The body weight of group H was significantly higher than that of group L (P<0.01), and the body slope length and tibia length were significantly higher than those of group L (P<0.05). The plasma triglyceride (TG) and total cholesterol (TC) contents of group H were significantly higher than those of group L (P<0.01). The body weight showed a significant moderate correlation with hepatic lipid rate (P<0.01), the body slope length and plasma TG content showed a weak correlation with hepatic lipid rate (P<0.05). Compared with the L group, 5 genes in livers of H group were significantly up-regulated (P<0.05), and 3 genes were significantly down-regulated (P<0.05). Among the genes, choline kinase alpha (CHKA) was associated with lipid metabolism, while Discoidin, CUB and LCCL domain containing 1 (DCBLD1) was associated with glucose metabolism. Prostaglandin E receptor 3 (PTGER3), prostaglandin reductase 2 (PTGR2) and tetraspanin 1 (TSPAN1) were associated with cellular inflammatory responses. The GO and KEGG enrichment analysis revealed that the glycerophospholipid metabolism pathway was the only one with significant differences (P<0.05), and CHKA was the only gene enriched for this pathway. In conclusion, the body weight, body slope length of laying hens during the later laying period may be the important significant indices for the evaluation of the obesity degree of laying hens. The plasma TG and TC contents may may be the important evaluation indices for the evaluation of the liver lipid deposition. The glycerophospholipid metabolic pathway may be the important signaling pathway for hepatic lipid deposition of laying hens, and CHKA may be an important gene in this pathway affecting lipid deposition.

肝脏合成了蛋鸡体内约90%的脂肪,对产蛋性能具有重要的影响[1]。肝脏脂肪过渡沉积是蛋鸡产蛋后期面临的主要健康问题[2]。肝脂率是反映肝脏脂肪沉积程度的重要指标。因此,开展产蛋后期肝脂率对蛋鸡脂质代谢指标及肝脏基因表达的影响研究,不仅为蛋鸡后期的生产管理及营养调控提供理论依据,而且对揭示蛋鸡肝脏脂质代谢机制及改善生产性能具有重要意义。肝脏脂质代谢异常会引起机体多项指标发生变化。首先,体重指数与脂肪肝发生率密切相关[3],体重、体尺性状与产肝性能相关性较强[4]。其次,血液生化指标能够间接反映肝脏脂肪沉积程度。与正常蛋鸡相比,患有脂肪肝的蛋鸡血清甘油三酯(triglyceride,TG)、总胆固醇(total cholesterol,TC)含量显著上升[5-7]。肝脏氧化损伤是造成肝脏脂肪异常沉积的因素之一。天门冬氨酸氨基转移酶(aspartate aminotransferase,AST)和丙氨酸氨基转移酶(alanine aminotransferase,ALT)会从损伤的肝细胞中释放出来进入血液,导致血液中其活性发生变化[4]。因此,AST和ALT是反映肝细胞损伤的重要指标[8]。腹脂是脂肪沉积的主要组织之一,腹脂指数反映了机体的脂肪沉积情况,与肝脏脂肪沉积密切相关。然而,肝脏储存脂肪的能力较弱,过多的脂肪沉积会造成肝脏形态、生化和抗氧化等指标发生变化。与正常鸡只相比,患有脂肪肝的鸡只肝脏质量偏大,表面颜色偏黄,谷胱甘肽过氧化物酶(glutathione peroxidase,GPX)活性显著降低,丙二醛(malonaldehyde,MDA)含量显著升高[9-10]
随着转录组测序技术的成熟,其在鸡肝脏脂质代谢的研究中广泛应用[11-13]。黑羽坝上长尾鸡和白来航鸡肝脏组织转录组测序结果表明,显著差异基因有527个,其中7个显著富集在类固醇生物合成代谢通路,其中脂肪细胞型脂肪酸结合蛋白(adipocyte fatty acid-binding protein,A-FABP)、长链酯酰辅酶A合成酶1(long-chain acyl-coenzyme A synthetases 1,ACSL1)和乙酰辅酶A合成酶2(acety1-CoA synthetase 2,ACSS2)基因的突变对其体重、体尺性状均具有显著影响[14]。与对照组相比,雌激素处理组的鸡肝脏中黑皮质素受体辅助蛋白(melanocortin receptor accessory protein,MRAP)的mRNA和蛋白相对表达水平显著增加,过氧化物酶体增殖物激活受体γ(peroxisome proliferator activated receptor γ,PPARγ)的mRNA相对表达水平显著降低[12]。与普通饲粮饲喂的肉鸡相比,高脂饲粮饲喂的肉鸡肝脏和腹脂组织转录组显著差异基因和差异剪接基因显著富集到甘油磷脂代谢、胰岛素信号通路、胰高血糖素信号通路、腺苷酸激活蛋白激酶(adenosine 5'-monophosphate activated protein kinase,AMPK)信号通路等脂肪生成通路,推测饲喂高脂饲粮可能通过影响基因可变剪接过程,激活前脂肪细胞的增殖和脂肪生成相关细胞代谢,导致肉鸡腹脂沉积[15]
目前,关于蛋鸡肝脏脂质代谢的研究多集中在病理状态下。一方面相关病理指标不能及时反映生理状态下蛋鸡肝脏脂肪沉积情况;另一方面生理状态下蛋鸡肝脏脂质代谢的分子机制尚不清晰。因此,有必要对生理状态下蛋鸡肝脏脂肪沉积情况评价指标及脂质代谢分子机制进行研究。本研究选取产蛋后期正常生产鸡群,比较高、低肝脂率组脂质代谢指标及肝脏基因表达差异,筛选出肝脏脂肪沉积情况的评价指标和影响肝脂率的候选基因与通路,为缓解产蛋后期蛋鸡肝脏脂肪过度沉积、改善生产性能提供理论基础。

1 材料与方法

1.1 试验设计和饲养管理

本试验经江苏省家禽科学研究所实验动物福利与动物实验伦理审查委员会批准(No.2022-0025)。
试验鸡群共计600只蛋鸡,随机选取147只62周龄健康鸡只,屠宰前1 d禁食12 h,测定体重体尺指标。采用翅静脉采血2 mL于抗凝管中,静置2 h,待分层后于1 288.80×g离心10 min制备血浆,-20 ℃冻存,用于测量血浆脂质代谢相关指标。采用颈动脉放血法处死鸡只,取出完整肝脏称重并测定表面颜色,采取组织样及分子样分别暂存于冰块和液氮中,之后迅速转移至-80 ℃超低温冰箱中保存。测定肝脂率和抗氧化指标,对肝脂率与其他脂质代谢指标进行相关性分析;将肝脂率小于5%的蛋鸡定为低肝脂率组(L组),肝脂率大于5%的蛋鸡定为高肝脂率组(H组),对2组间脂质代谢指标进行单因素方差分析;选取H组肝脂率最高的4个样本,L组肝脂率低的4个样本进行转录组测序分析。
本试验所用海兰褐蛋鸡来自扬州翔龙禽业发展有限公司,所有鸡只饲养条件一致,并按常规程序免疫,试验饲粮购自于江苏盐城源耀饲料有限公司,其组成及营养水平见表1。饲粮中粗蛋白质、钙和总磷含量分别参照GB/T 6432—2018、GB/T 6436—2018和GB/T 6437—2018的方法进行测定;代谢能、氨基酸和有效磷为计算值,参照NY/T 33—2004进行计算。
表1 试验饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the experimental diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 62.50
豆粕Soybean meal 25.00
豆油Soybean oil 1.00
石粉Limestone 9.50
磷酸氢钙CaHPO4 1.00
蛋氨酸Met 0.20
氯化钠NaCl 0.35
氯化胆碱Choline chloride 0.15
微量元素Microelements1) 0.10
多维Multi-vitamins2) 0.04
复合酶Compound enzyme3) 0.16
合计Total 100.00
营养水平Nutrient levels4)
代谢能ME/(MJ/kg) 11.30
粗蛋白质CP 16.50
蛋氨酸Met 0.46
赖氨酸Lys 0.85
钙Ca 3.90
总磷TP 0.52
有效磷AP 0.30

1)微量元素为每千克饲粮提供 Microelements provided the following per kg of the diet:Cu 8 mg,Fe 100 mg,Mn 110 mg,Se 0.15 mg,I 0.35 mg。

2)多维为每千克饲粮提供 Multi-vitamins provided the following per kg of the diet:VA 11 550.00 IU,VD3 4 375.00 IU,VE 52.50 IU,VK3 7.00 mg,VB1 3.50 mg,VB2 10.50 mg,VB6 10.50 mg,VB12 0.035 mg,生物素 biotin 0.26 mg,泛酸 pantothenic acid 21 mg,烟酸 nicotinic acid 70 mg,叶酸 folic acid 1.75 mg。

3)每克复合酶包含 One gram of compound enzyme contained the following:纤维素酶 cellulase≥500 U,木聚糖酶 xylanase≥25 000 U,β-葡聚糖酶 β-glucanase≥2 000 U,甘露聚糖酶 mannanase≥2 500 U,淀粉酶 amylase≥1 000 U,蛋白酶 protease≥8 000 U,果胶酶 pectinase≥1 000 U。

4)粗蛋白质、钙和总磷为实测值,代谢能、氨基酸和有效磷为计算值。CP, Ca and TP were measured values, while ME, amino acids and AP were calculated values.

1.2 测定指标与方法

1.2.1 肝脂率测定

采用索氏抽提法测定粗脂肪含量。用低沸点石油醚抽提肝脏组织样脂肪后,蒸发除去溶剂,干燥,得到游离态脂肪的含量。肝脂率计算公式如下:
$\text { 肝脂率 }(\%)=\left[\left(m_{2}-m_{0}\right) / m_{1}\right] \times 100 \text { 。 }$
式中:m0为圆底烧瓶的质量(g);m1为试样的质量(g);m2为恒重后圆底烧瓶和脂肪的质量(g)。

1.2.2 体重、体尺指标测定

屠宰前测定每只鸡体重、体斜长、龙骨长、胫长、胫围,方法参照《家禽生产性能名词术语和度量计算方法》(NY/T 823—2020)进行测定。

1.2.3 屠宰指标测定

屠宰后,完整取出腹脂和肝脏进行称重,并计算腹脂指数和肝脏指数,计算公式如下:
$腹脂指数 (\%)=( 腹脂重 / 体重 ) \times 100 ;肝脏指数 (\%)=( 肝脏重 / 体重 ) \times 100 。$
肝脏称重后,平铺在采样板上,使用色彩色差仪(CR-400,柯尼卡美能达控股公司)测定肝脏表面颜色亮度(L*)、红度(a*)、黄度(b*)值。

1.2.4 血浆指标测定

采用全自动生化分析仪(AU680,美国贝克曼库尔特有限公司)测定血浆TG、TC、极低密度脂蛋白(very low density lipoprotein,VLDL)含量和AST、ALT活性,采用酶联免疫吸附试验(ELISA)测定血浆雌二醇(estradiol,E2)含量。试剂盒均购自南京奥青生物技术有限公司。

1.2.5 肝脏抗氧化指标测定

使用微板法测定肝脏总抗氧化能力(total antioxidant capacity,T-AOC)、MDA含量及超氧化物歧化酶(superoxide dismutase,SOD)和GPX活性。

1.3 肝脏转录组文库构建和测序

从H组中选取肝脂率最高的4个样品,L组中选取肝脂率最低的4个样品,构建8个转录组测序文库。首先使用Trizol试剂(Life Technologies公司,美国)提取肝脏组织的总RNA,并进行质量检测。然后使用带有Oligo(dT)的磁珠富集mRNA,用缓冲液(buffer)把mRNA打断。以片段化的mRNA为模版,随机寡核苷酸为引物,在M-MuLV逆转录酶体系中合成cDNA第1条链;随后用RNaseH降解RNA链,并在DNA polymerase Ⅰ体系下,以脱氧核苷三磷酸(dNTPs)为原料合成cDNA第2条链。双链cDNA经过纯化后进行末端修复、加poly(A)尾并连接测序接头,用AMPure XP beads筛选200 bp左右的cDNA,进行PCR扩增并再次使用AMPure XP beads纯化PCR产物,构建cDNA文库。测序由广州基迪奥生物科技有限公司进行。

1.4 肝脏转录组测序数据分析

使用Fastp[16]对下机原始数据进行质控,过滤低质量数据,去除含adapter、含N比例大于10%、全部都是A碱基和质量值Q≤20的碱基数占整条read的50%以上的reads,获得clean reads,随后分析碱基组成及质量分布。使用Bowtie 2[17]去除clean reads中比对到鸡的核糖体数据库的reads,剩余的unmapped reads用于后续转录组分析。使用HISAT[18]软件,开展基于鸡参考基因组的比对分析。根据HISAT的比对结果,利用StringTie[19]重构转录本,并利用RSEM[20]计算每个样本中所有基因的表达量。使用DESeq2[21]软件进基因表达差异分析,设定错误发现率(false discovery rate,FDR)<0.05、|log2[差异倍数(fold change,FC)]|>1为差异筛选条件。利用GO数据库和KEGG数据库对差异表达基因进行富集分析。

1.5 数据统计与分析

使用Excel 2016进行数据统计。运用SPSS 26.0软件进行单因素方差分析和相关性分析,显著差异和相关水平为P<0.05,极显著差异和相关水平为P<0.01。皮尔逊相关系数在0.8~1.0为极强相关,0.6~0.8为强相关,0.4~0.6为中等程度相关,0.2~0.4为弱相关,0~0.2为极弱相关或无相关。使用R语言ggplot 2软件包绘制箱形图。

2 结果与分析

2.1 蛋鸡肝脂率描述性统计及分组

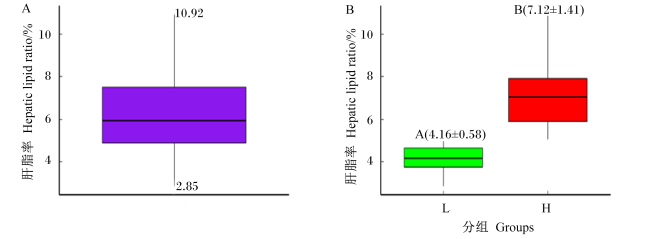
正常情况下,肝脏脂肪含量小于5%。肝脏脂肪含量大于5%为轻度脂肪肝,大于10%为中度脂肪肝,大于25%为重度脂肪肝[3]。如图1-A所示,肝脂率最小值为2.85%,最大值为10.92%,其中43只鸡肝脂率小于5%,101只鸡肝脂率在5%~10%,肝脂率大于10%的鸡仅有3只,这说明约2/3的鸡只处于轻度脂肪肝阶段。因此,将肝脂率小于5%的蛋鸡定为L组,肝脂率大于5%的蛋鸡为H组。如图1-B所示,2组间肝脂率差异极显著(P<0.01)。
图1 肝脂率箱形图

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下图同。

Fig.1 Boxplot of hepatic lipid ratio

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05), with different capital letters mean highly significant difference (P<0.01). The same as below.

2.2 不同肝脂率组体重、体尺指标差异分析

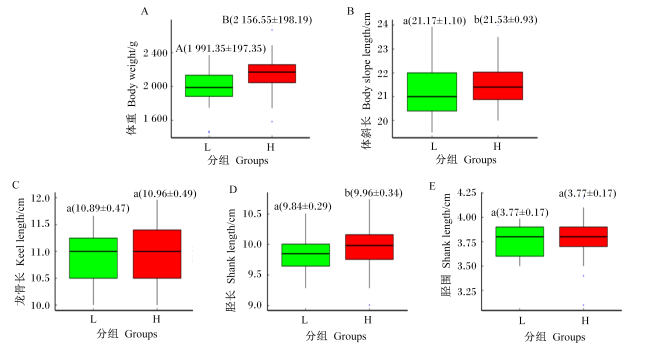
图2所示,H组体重极显著高于L组(P<0.01),体斜长、胫长显著高于L组(P<0.05)。2组间龙骨长、胫围差异不显著(P>0.05)。
图2 体重、体尺指标箱形图

Fig.2 Boxplot of body weight and body measurement indices

2.3 不同肝脂率组屠宰指标差异分析

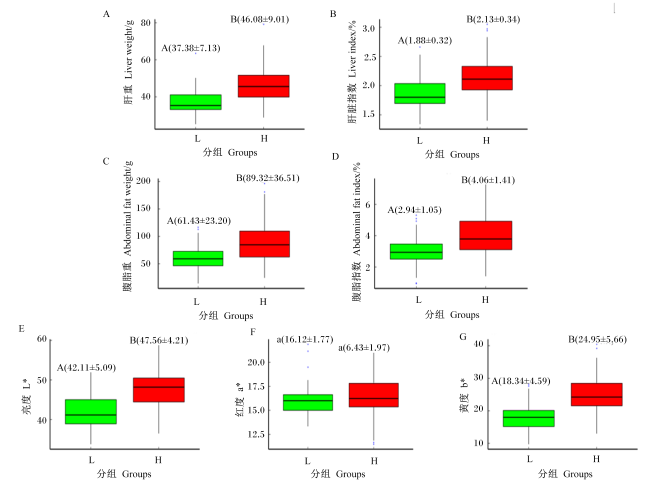
图3所示,H组肝脏质量、肝脏指数、腹脂重、腹脂指数和肝脏表面颜色L*、b*值极显著高于L组(P<0.01)。2组间肝脏表面颜色a*值差异不显著(P>0.05)。
图3 屠宰指标箱形图

Fig.3 Boxplot of slaughter indices

2.4 不同肝脂率组血浆指标差异分析

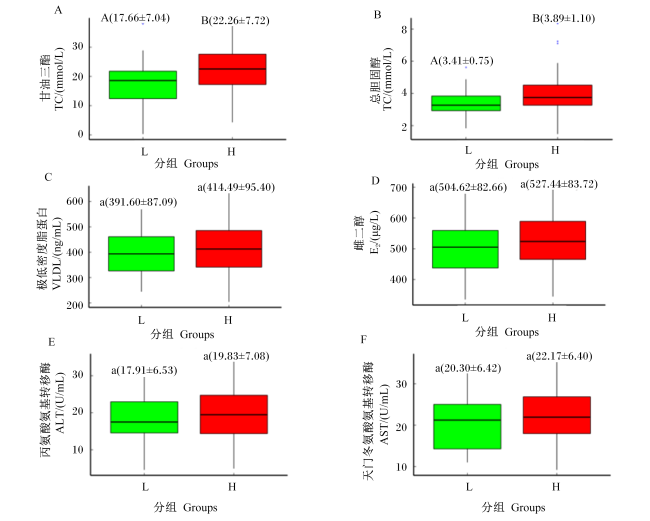
图4所示,H组血浆TG和TC含量极显著高于L组(P<0.01)。2组间血浆VLDL、E2含量及ALT、AST活性无显著差异(P>0.05)。
图4 血浆指标箱形图

Fig.4 Boxplot of plasma indices

2.5 不同肝脂率组肝脏抗氧化指标差异分析

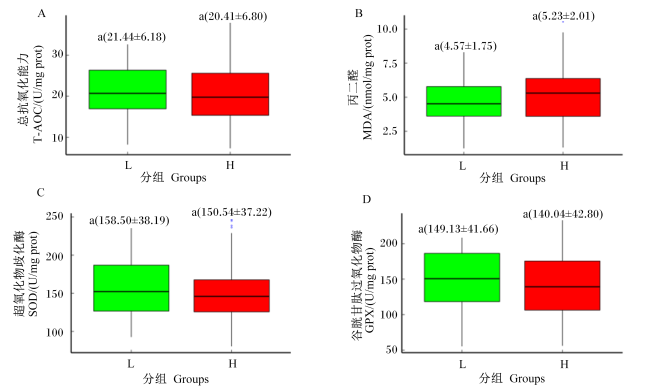
图5所示,2组间肝脏T-AOC、MDA含量及SOD、GPX活性无显著差异(P>0.05)。
图5 肝脏抗氧化指标箱形图

Fig.5 Boxplot of liver antioxidant indices

2.6 肝脂率与体重、体尺及脂质代谢指标的相关性分析

表2可知,肝脏表面颜色L*和b*值与肝脂率呈极显著强相关(P<0.01);体重、肝脏质量、肝脏指数、腹脂质量、腹脂指数与肝脂率呈极显著中等程度相关(P<0.01);血浆TG含量与肝脂率呈极显著弱相关(P<0.01);体斜长与肝脂率呈显著弱相关(P<0.05)。
表2 肝脂率与体重、体尺及脂质代谢指标的相关性分析

Table 2 Correlation analysis of hepatic lipid ratio with body weight, body measurement and lipid metabolic indices

项目
Items
相关系数
Correlation
coefficient
项目
Items
相关系数
Correlation
coefficient
体重Body weight 0.457** 黄度b* 0.648**
体斜长Body slope length 0.208* 甘油三酯TG 0.278**
龙骨长Keel length 0.064 总胆固醇TC 0.198*
胫长Shank length 0.165* 极低密度脂蛋白VLDL 0.115
胫围Shank circumference 0.050 雌二醇E2 0.083
肝脏质量Liver weight 0.581** 丙氨酸氨基转移酶ALT 0.156
肝脏指数Liver index 0.450** 天门冬氨酸氨基转移酶AST 0.167*
腹脂质量Abdominal fat weight 0.470** 总抗氧化能力T-AOC -0.112
腹脂指数Abdominal fat index 0.450** 丙二醛MDA 0.163*
亮度L* 0.609** 超氧化物歧化酶SOD -0.153
红度a* 0.064 谷胱甘肽过氧化物酶GPX -0.126

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

* mean significant correlation (P<0.05), and ** mean extremely significant correlation (P<0.01).

2.7 转录组测序样品及数据质量分析

分别选取L组肝脂率最低的4个肝脏组织和H组肝脂率最高的4个肝脏组织进行转录组测序。由表3可知,L组肝脂率平均值3.21%,H组肝脂率平均值为10.34%,2组组间差异极显著(P<0.01)。8个样品的原始reads数目为37 858 390~43 004 424,过滤低质量数据后,得到高质量reads数目为37 694 150~42 778 876,高质量reads数目比率为99.29%~99.60%,均大于99%。进一步分析高质量reads数目碱基质量,Q20(碱基正确率为99%)占比为97.67%~98.48%,均大于97%;Q30(碱基正确率为99.9%)占比为93.29%~95.13%,均大于93%。这说明测序数据质量高,可用于后续生物信息学分析。
表3 测序数据质量分析

Table 3 Sequencing data quality analysis

样品名称
Sample
names
肝脂率
Hepatic lipid
ratio/%
原始
reads数目
Raw reads
number
高质量
reads数目
Clean reads
number
高质量
碱基数
Clean base
number/bp
Q20占比
Q20
proportion/
%
Q30占比
Q30
proportion/
%
高质量reads
数目比率
Clean reads
number ratio/%
L1 2.91 42 874 258 42 700 676 6 389 452 566 98.48 95.13 99.60
L2 3.19 43 004 424 42 778 876 6 398 046 784 98.10 94.21 99.48
L3 3.29 37 858 390 37 694 150 5 635 919 791 98.15 94.25 99.57
L4 3.47 40 315 212 40 142 326 6 002 283 685 97.81 93.53 99.57
H1 9.96 38 681 814 38 493 774 5 758 761 917 97.68 93.29 99.51
H2 10.02 39 325 530 39 129 938 5 848 589 127 97.79 93.59 99.50
H3 10.48 39 594 240 39 406 054 5 892 136 366 97.81 93.61 99.52
H4 10.92 38 661 184 38 387 980 5 741 158 430 97.67 93.33 99.29

2.7 转录组测序差异表达基因分析

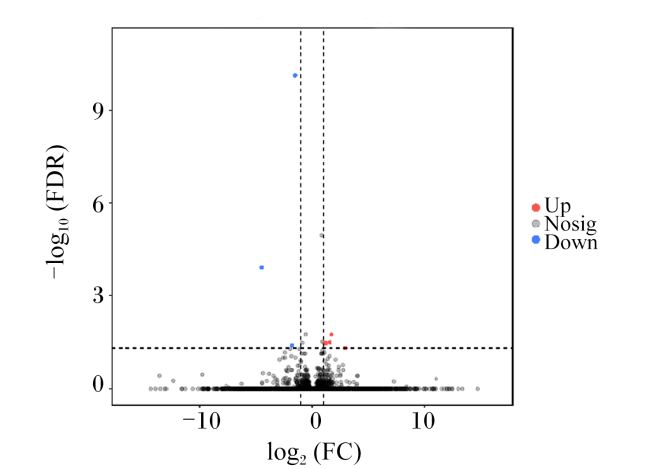
使用DESeq2软件对L组和H组海兰褐蛋鸡肝脏组织转录组测序数据进行差异表达基因分析,以FDR<0.05、|log2FC|>1为显著差异表达基因筛选条件,结果见表4图6。2组共计得到8个差异表达基因。与L组相比,H组差异表达基因上调的有5个,下调的有3个。
表4 差异表达基因

Table 4 Differentially expressed genes

基因
Genes
|log2(差异倍数)|
|log2(FC)|
错误发现率
FDR
上调/下调
Up-regulated/
down-regulated
肌动蛋白结合蛋白KPTN 1.74 0.018 上调
前列腺素E受体3 PTGER3 1.57 0.032 上调
前列腺素还原酶2 PTGR2 1.23 0.034 上调
胆碱激酶α CHKA 1.09 0.034 上调
GATA5转录因子GATA5 3.01 0.049 上调
Discoidin、CUB和LCCL结构域Ⅰ型DCBLD1 1.51 0.000 下调
腈水解酶1 NIT1 4.46 0.000 下调
四次跨膜蛋白1 TSPAN1 1.78 0.041 下调
图6 差异表达基因火山图

FDR:错误发现率 false discovery rate;FC:差异倍数 fold change;Up:上调 up-regulated;Nosig:不显著 no significant;Down:下调 down-regulated。

Fig.6 Volcano plot of differentially expressed genes

2.8 差异表达基因GO和KEGG富集分析

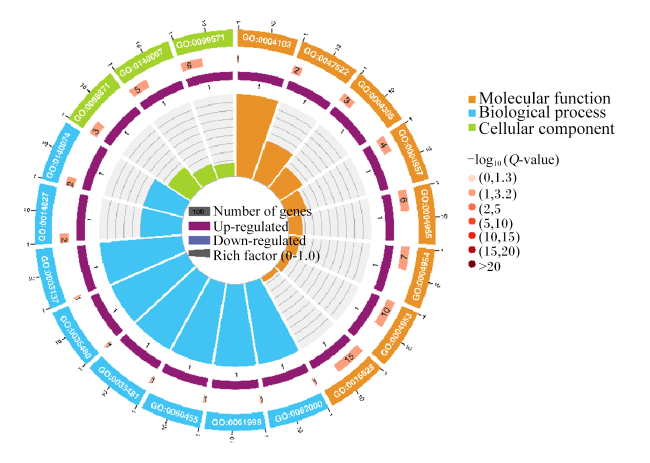
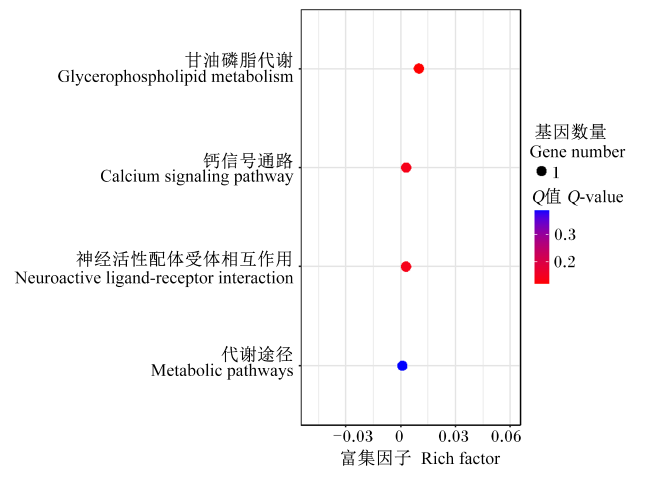
对8个差异表达的基因进行GO和KEGG富集分析。GO富集结果见图7,共显著富集到19个GO term,其中分子功能8个,富集显著差异基因为胆碱激酶α(CHKA)、前列腺素还原酶2(PTGR2)和列腺素E受体3(PTGER3);生物过程8个,富集显著差异基因为GATA5转录因子(GATA5)和PTGER3;细胞组分3个,显著差异基因为肌动蛋白结合蛋白(KPTN)。KEGG富集结果见图8,主要富集在甘油磷脂代谢、钙信号通路、神经活性配体受体相互作用和代谢途径4条通路,富集显著差异基因为CHKAPTGER3。
图7 差异表达基因GO富集圈图

Number of genes:基因数量;Up-regulated:上调;Down-regulated:下调;Rich factor:富集因子;Molecular function:分子功能;Biological process:生物过程;Cellular component:细胞组分;Q-value:Q值。

Fig.7 GO enrichment circle map of differentially expressed genes

图8 差异表达基因KEGG富集气泡图

Fig.8 KEGG enrichment bubble map of differentially expressed genes

3 讨论

3.1 不同肝脂率蛋鸡脂质代谢指标差异分析

由肝脂率结果可知,约2/3的鸡只处于轻度脂肪肝状态。这说明正常生产条件下,产蛋后期鸡群脂肪肝发生风险较高,有必要进行定期检查,做到早发现、早治疗。本研究中,H组体斜长、龙骨长、胫长和胫围均大于L组,但2组间所有体尺指标的平均值相差并不大,这说明H组鸡只体型虽然比L组偏大,但并不明显。而H组体重极显著高于L组,说明H组鸡只较L组肥胖;且H组腹脂重及腹脂指数极显著高于L组,说明H组肥胖鸡只主要为腹型肥胖。这与他人的研究结果相似,肥胖和腹型肥胖群体是脂肪肝的高发群体[3-4]。体斜长越大,蛋鸡体型及腹腔容积越大,自由采食情况下,更易导致机体营养过剩及失衡,影响正常脂质和能量代谢,造成肝脏脂肪过渡沉积。本研究中,体重和体斜长与肝脂率达到极显著或显著相关,且在2组间达到极显著或显著差异。这说明通过测定蛋鸡体重和体斜长,能够简单评估蛋鸡肥胖程度,通过对肥胖鸡只进行体重控制,可以降低脂肪肝发生风险,但具体方法仍需进一步研究
正常情况下,血浆中的TG和TC含量维持动态平衡[4]。本研究结果表明,血浆TG含量与肝脂率呈极显著相关,且H组血浆TG和TC含量极显著高于L组,说明通过血浆TG和TC含量能够明显区分正常肝脏和轻度脂肪肝,可以作为评价肝脏脂肪沉积情况的有效指标。当肝细胞受损时,血浆AST和ALT活性升高[22]。本研究中,血浆AST和ALT活性与肝脂率无相关性,且2组间二者活性没有显著差异,说明H组鸡只肝脏相比L组未有明显的肝脏损伤情况发生。肝脏表面颜色L*和b*值与肝脂率呈极显著强相关,肝脏质量和肝脏指数与肝脂率呈极显著中等相关,且H组肝脏重量、肝脏指数及肝脏表面颜色亮度L*和b*值极显著大于L组,说明肝脏脂肪过渡沉积会造成鸡只肝脏大小、颜色等形态发生明显变化。而2组间肝脏的T-AOC、MDA、SOD、GPX等抗氧化指标没有显著差异,说明轻度脂肪肝阶段内肝细胞没有明显损伤情况发生,这与血浆AST和ALT活性测定结果相对应。因此,血浆AST和ALT活性不适宜作为早期肝脏脂肪沉积情况的评价指标。
综上所述,正常生产状态下,产蛋后期蛋鸡体型越肥胖的个体肝脏脂肪沉积越严重,体重、体斜长可能是评价蛋鸡肥胖程度的有效指标。血浆TG和TC含量在轻度脂肪肝和正常肝脏间表现出较高的敏感性,可以作为蛋鸡肝脏脂肪沉积情况的评价指标。

3.2 不同肝脂率蛋鸡肝脏组织基因表达差异分析

差异表达基因分析结果表明,H组显著上调表达基因5个,分别是KPTNPTGER3、PTGR2、CHKAGATA5。显著下调表达基因3个,分别是Discoidin、CUB和LCCL结构域Ⅰ型(DCBLD1)、腈水解酶1(NIT1)和四次跨膜蛋白1(TSPAN1)。KPTN编码肌动蛋白结合蛋白kaptin,参与肌动蛋白聚合的调节,多与智力残疾、身体发育迟缓、大头畸形以及癫痫等神经性疾病相关[23-25]PTGER3编码前列腺素E受体3,是炎症介质E2的受体,通过调控促炎介质转录致小鼠精原细胞损伤或死亡而发生精子异常[26]PTGR2编码前列素还原酶2,参与前列腺素催化和炎症反应,与肠道特应性皮炎相关[27]CHKA编码胆碱激酶α,在脂肪分解中发挥作用[28],可以作用于胆胺参与鞘脂物质生成,抑制鹅原代肝细胞和HepG2细胞中炎症的发生[29]。本研究中,H组蛋鸡肝脏中CHKA显著上调,可能促进了脂肪分解并抑制了肝细胞炎症发生。GATA5可以维持组织发育及发育后的正常功能,并能够抑制人肝癌细胞系HLE和人肝癌细胞系HepG2的增殖、迁移、划痕等恶性行为,通过抑制磷脂酰肌醇3-激酶/蛋白激酶B(PI3K/AKT)信号通路发挥抑癌作用[30-31]DCBLD1编码Discoidin、CUB和LCCL结构域Ⅰ型蛋白,其过表达能够激活磷酸戊糖途径促进癌症进展[32]。磷酸戊糖途径为脂肪合成提供氢体,在脂类合成旺盛的组织比较活跃。本研究中,H组中DCBLD1显著下调,可能通过抑制磷酸戊糖途径而降低脂肪合成。NIT1编码腈水解酶1是潜在的肿瘤抑制因子,但具体作用机制尚不清楚[33]TSPAN1是膜受体家族的一员,与细胞存活、增殖和侵袭有关[34]。沉默TSPAN1促进了雨蛙素诱导的AR42J细胞的增殖并抑制了炎症反应[35]
GO和KEGG富集分析结果表明,主要富集的4条通路在Q值检验中均没有达到显著性差异,但是甘油磷脂代谢通路在P值检验中达到了显著性差异,同时它也是唯一富集到的脂质代谢通路。CHKA是唯一富集到该通路的显著差异基因,其编码的胆碱激酶α是胞苷二磷酸胆碱(CDP-胆碱)通路的关键酶,可以将胆碱磷酸化为磷酸胆碱,磷酸胆碱在磷酸胆碱胞苷转移酶的催化下生成CDP-胆碱[36]。本研究中,H组CHKA表达上调,肝脏中胆碱激酶α活性升高,促进CDP-胆碱的合成。CDP-胆碱与磷脂之间发生碱基交换反应生成磷脂酰胆碱,有助于维持肝脏中磷脂酰胆碱的合成和VLDL的运输[37]。因此,甘油磷脂代谢通路可能是蛋鸡肝脏脂质沉积的重要信号通路,CHKA可能是该通路中影响脂质沉积的重要基因。
综上所述,CHKA可能通过甘油磷脂代谢途径直接参与肝脏脂质代谢,并能抑制肝细胞炎症发生。DCBLD1可能通过糖代谢间接参与肝脏脂肪合成。PTGER3、PTGR2和TSPAN1在相关的研究中均与器官或细胞炎症反应相关,GATA5则与组织器官发育及功能维持相关,它们可能与蛋鸡肝脏炎症反应相关,但其具体作用机制仍需要进一步研究。本研究中没有明显的肝损伤情况发生,可能是因为轻度脂肪肝阶段,蛋鸡肝脏脂肪过度沉积一方面会负反馈调节脂质代谢过程,促进脂肪分解,降低脂肪合成,从而减少脂质沉积;另一方面可能会触发肝脏的炎症保护机制,通过上调或下调炎症反应相关基因,保护肝脏免受损伤,从而维持正常肝功能。

4 结论

正常生产状态下,产蛋后期蛋鸡体重、体斜长可能是评估蛋鸡肥胖程度的重要评价指标;血浆TG和TC含量可能是肝脏脂质沉积的重要评价指标;甘油磷脂代谢通路可能是蛋鸡肝脏脂质沉积的重要信号通路,CHKA可能是该通路中影响脂质沉积的重要基因。
[1]
王玉洁, 刘佳, 魏庆, 等. 高能低蛋白日粮诱导的脂肪肝出血综合征(FLHS)蛋鸡脂肪组织代谢差异的比较[J]. 中国兽医学报, 2020, 40(10):2061-2065.

WANG Y J, LIU J, WEI Q, et al. Comparison of adipose tissue metabolism differences in fatty liver hemorrhage syndrome (FLHS) hens induced by high energy and low protein diet[J]. Chinese Journal of Veterinary Science, 2020, 40(10):2061-2065. (in Chinese)

[2]
陈璎, 简华锋, 董信阳. 蛋鸡脂肪肝出血综合征及其营养调控的研究进展[J]. 动物营养学报, 2024, 36(11):6841-6852.

DOI

CHEN Y, JIAN H F, DONG X Y. Research advances in fatty liver hemorrhagic syndrome and its nutritional regulation in laying hens[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):6841-6852. (in Chinese)

DOI

[3]
李婷. 体质量指数、 肥胖类型与脂肪肝关系的观察[J]. 中国医药指南, 2019, 17(32):147-148.

LI T. Observations on the relationship between body mass index,type of obesity and fatty liver disease[J]. Guide of China Medicine, 2019, 17(32):147-148. (in Chinese)

[4]
李硕. 高低肝脂蛋鸡血液生化指标和肠道微生物比较研究[D]. 硕士学位论文. 扬州: 扬州大学, 2020.

LI S. Comparative study on blood biochemical indexes and intestinal microflora between high and low fatty liver layers[D]. Master's Thesis. Yangzhou: Yangzhou University, 2020. (in Chinese)

[5]
刘海隆, 张艳, 马榕菲, 等. 拟杆菌对高能低蛋白饲粮诱导的脂肪肝出血综合征蛋鸡肝脏脂质代谢的影响[J]. 饲料研究, 2024, 47(7):39-43.

LIU H L, ZHANG Y, MA R F, et al. Effect of Bacteroides on liver lipid metabolism of laying hens with fatty liver hemorrhage syndrome induced by high energy and low protein diet[J]. Feed Research, 2024, 47(7):39-43. (in Chinese)

[6]
谭晓冬, 刘冉冉, 赵桂苹, 等. 矮脚黄鸡轻度脂肪肝对其屠宰性能和肉品质的影响[J]. 中国畜牧兽医, 2019, 46(6):1713-1722.

DOI

TAN X D, LIU R R, ZHAO G P, et al. Effects of mild fatty liver on slaughter performance and meat quality in dwarf yellow chickens[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(6):1713-1722. (in Chinese)

[7]
YANG F, RUAN J M, WANG T C, et al. Improving effect of dietary soybean phospholipids supplement on hepatic and serum indexes relevant to fatty liver hemorrhagic syndrome in laying hens[J]. Animal Science Journal, 2017, 88(11):1860-1869.

DOI PMID

[8]
DAVAIL S, GUY G, ANDRÉ J M, et al. Metabolism in two breeds of geese with moderate or large overfeeding induced liver-steatosis[J]. Comparative Biochemistry and Physiology A:Molecular & Integrative Physiology, 2000, 126(1):91-99.

[9]
刘振. 饲粮类型对鸡脂肪肝形成的影响及表观调控机制[D]. 硕士学位论文. 北京: 中国农业科学院, 2016.

LIU Z. Study of the effect of diets type on fatty liver syndrome in chicken and the underlying epigenetic mechanisms in chicken[D]. Master's Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2016. (in Chinese)

[10]
李晓丽, 何万领, 王毅博, 等. 女贞子提取物预防产蛋后期蛋鸡脂肪肝的研究[J]. 河南农业大学学报, 2022, 56(1):124-132,142.

LI X L, HE W L, WANG Y B, et al. Effect of Ligustrum lucidum extract on lipid deposition in the liver of laying hens in late laying period[J]. Journal of Henan Agricultural University, 2022, 56(1):124-132,142. (in Chinese)

[11]
王星果, 曲亮, 窦套存, 等. 育成期高能饮食对蛋鸡肝脏转录组的影响[J]. 南方农业学报, 2020, 51(8):1864-1871.

WANG X G, QU L, DOU T C, et al. Effects of high energy diet on liver transcriptome of laying hens during growing period[J]. Journal of Southern Agriculture, 2020, 51(8):1864-1871. (in Chinese)

[12]
任俊晓. 雌激素处理鸡肝脏转录组分析及候选基因受雌激素调控的分子机制研究[D]. 硕士学位论文. 郑州: 河南农业大学, 2017.

REN J X. Study on estrogen treated chicken liver transcriptome and estrogen regulation molecular mechanism on the candidate genes[D]. Master's Thesis. Zhengzhou: Henan Agricultural University, 2017. (in Chinese)

[13]
欧正淼, 周家文, 刘莉莉, 等. 基于RNA-Seq的无量山乌骨鸡肝脏组织脂代谢相关基因筛选及其表达分析[J]. 畜牧兽医学报, 2023, 54(3):976-988.

DOI

OU Z M, ZHOU J W, LIU L L, et al. Screening and expression analysis of genes related to lipid metabolism in liver tissue of Wuliangshan sooty chicken based on RNA-Seq[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(3):976-988. (in Chinese)

[14]
陈芝媛. 坝上长尾鸡脂质代谢关键基因SNPs筛查及其与生长发育性状的关联性分析[D]. 硕士学位论文. 秦皇岛: 河北科技师范学院, 2024.

CHEN Z Y. Screening of SNPs in key genes of lipidmetabolism in Bashang long-tail chicken and analysis of their correlation with growth and development traits[D]. Master's Thesis. Qinhuangdao: Hebei Normal University of Science & Technology, 2024. (in Chinese)

[15]
敖广宇, 陈庚华, 夏燚琳, 等. 高脂饲喂对肉鸡腹脂和肝脏组织RNA可变剪接的影响[J]. 广东农业科学, 2024, 51(2):112-123.

AO G Y, CHEN G H, XIA Y L, et al. Effects of high-fat diet on alternative splicing of RNA in abdominal fat and liver tissues of broilers[J]. Guangdong Agricultural Sciences, 2024, 51(2):112-123. (in Chinese)

[16]
CHEN S F, ZHOU Y Q, CHEN Y R, et al. Fastp:an ultra-fast all-in-one FASTQ preprocessor[J]. Bioinformatics, 2018, 34(17):i884-i890.

[17]
LANGMEAD B, SALZBERG S L. Fast gapped-read alignment with bowtie 2[J]. Nature Methods, 2012, 9(4):357-359.

DOI PMID

[18]
KIM D, LANGMEAD B, SALZBERG S L. HISAT:a fast spliced aligner with low memory requirements[J]. Nature Methods, 2015, 12(4):357-360.

[19]
PERTEA M, PERTEA G M, ANTONESCU C M, et al. StringTie enables improved reconstruction of a transcriptome from RNA-Seq reads[J]. Nature Biotechnology, 2015, 33(3):290-295.

DOI PMID

[20]
LI B, DEWEY C N. RSEM:accurate transcript quantification from RNA-Seq data with or without a reference genome[J]. BMC Bioinformatics, 2011,12:323.

[21]
LOVE M I, HUBER W, ANDERS S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2[J]. Genome Biology, 2014, 15(12):550.

[22]
崔恒敏, 张富, 李英伦, 等. 肉鸡脂肪肝综合征血液流变学和生化指标变化的研究[J]. 中国兽医科学, 2006, 36(3):225-229.

CUI H M, ZHANG F, LI Y L, et al. Studies on hemorrheological and biochemical indexes of chickens with fatty liver syndrome[J]. Veterinary science in China, 2006, 36(3):225-229. (in Chinese)

[23]
纵亮, 韩东一, 兰兰, 等. KCNN4及KPTN基因在中国DFNA4型耳聋中的突变检测[J]. 中国耳鼻咽喉头颈外科, 2006, 13(10):673-677.

ZONG L, HAN D Y, LAN L, et al. Detection of KCNN4 and KPTN gene mutations in Chinese DFNA4 family[J]. Chinese Archives of Otolaryngology-Head and Neck Surgery, 2006, 13(10):673-677. (in Chinese)

[24]
RAWLINS L E, CRINO P B, IFFLAND P H, et al. KPTN-related disorder[M]// ADANN P, FELDMANJ, MIRZAAG M, et al. Gene reviews.Seattle: University of Washington,2024:1-18.

[25]
LEVITIN M O, RAWLINS L E, SANCHEZ-ANDRADE G, et al. Models of KPTN-related disorder implicate mTOR signalling in cognitive and overgrowth phenotypes[J]. Brain, 2023, 146(11):4766-4783.

[26]
潘廷伟. COX2/PGE2/PTGER3通路调控促炎介质转录在锰致小鼠精子发生异常中的作用[D]. 硕士学位论文. 沈阳: 中国医科大学, 2023.

PAN T W. The role of COX2/PGE2/PTGER3 pathway in regulating the transcription of pro-inflammatory mediators in manganese-induced abnormal spermatogenesis in mice[D]. Master's Thesis. Shenyang: China Medical University, 2023. (in Chinese)

[27]
KIM J H, LEE S H, KANG M J, et al. Host-microbial interactions between PTGR2 and Bifidobacterium in the early life gut of atopic dermatitis children[J]. Pediatric Allergy and Immunology:Official Publication of the European Society of Pediatric Allergy and Immunology, 2022, 33(2):e13724.

[28]
LIU R, LEE J H, LI J Y, et al. Choline kinase alpha 2 acts as a protein kinase to promote lipolysis of lipid droplets[J]. Molecular Cell, 2021, 81(13):2722-2735.e9.

DOI PMID

[29]
温康. 胆胺抑制非酒精性脂肪肝中炎症发生的机制研究[D]. 博士学位论文. 扬州: 扬州大学, 2023.

WEN K. Study on the mechanism of ethanolamine inhibiting inflammation in the non-alcoholic fatty liver[D]. Ph.D.Thesis. Yangzhou: Yangzhou University, 2023. (in Chinese)

[30]
冯海鹏. AFP抑制GATA5功能后激活PI3K/AKT通路对肝癌细胞恶性行为的影响[D]. 硕士学位论文. 海口: 海南医科大学, 2019.

FENG H P. Effect of AFP inhibiting GATA5 function activation ofPI3K/AKT pathway on malignant behavior of hepatocellular[D]. Master's Thesis. Haikou: Hainan Medical University, 2019. (in Chinese)

[31]
WANG Q, LIU Z, ZHAI G, et al. Overexpression of GATA5 inhibits prostate cancer progression by regulating PLAGL2 via the FAK/PI3K/AKT pathway[J]. Cancers, 2022, 14(9):2074.

[32]
MENG Q F, SUN H H, ZHANG Y H, et al. Lactylation stabilizes DCBLD1 activating the pentose phosphate pathway to promote cervical cancer progression[J]. Journal of Experimental & Clinical Cancer Research:CR, 2024, 43(1):36.

[33]
PERACCHI A, VEIGA-DA-CUNHA M, KUHARA T, et al. Nit1 is a metabolite repair enzyme that hydrolyzes deaminated glutathione[J]. Proceedings of the National Academy of Sciences of the United States of America, 2017, 114(16):E3233-E3242.

[34]
GARCIA-MAYEA Y, MIR C, CARBALLO L, et al. TSPAN1,a novel tetraspanin member highly involved in carcinogenesis and chemoresistance[J]. Biochimica et Biophysica Acta:Reviews on Cancer, 2022, 1877(1):188674.

[35]
WANG J, HUANG J, HUANG L. TSPAN1 silencing protects against cerulein-induced pancreatic acinar cell injury via targeting AGR2[J]. Drug Development Research, 2022, 83(1):158-166.

[36]
齐晨, 徐志飞. 胆碱激酶α在肿瘤中的作用[J]. 第二军医大学学报, 2016, 37(6):738-743.

QI C, XU Z F. The role of choline kinase α in tumorigenesis[J]. Academic Journal of Naval Medical University, 2016, 37(6):738-743. (in Chinese)

[37]
SIMON J, NUÑEZ-GARCÍA M, FERNÁNDEZ-TUSSY P, et al. Targeting hepatic glutaminase 1 ameliorates non-alcoholic steatohepatitis by restoring very-low-density lipoprotein triglyceride assembly[J]. Cell Metabolism, 2020, 31(3):605-622.e10.

DOI PMID

文章导航

/