研究论文

高日增重和低日增重荷斯坦奶公犊血浆差异代谢物及其代谢通路筛选

  • 宋忠慧 ,
  • 李梦吉 * ,
  • 曹佩佩 ,
  • 马学虎 ,
  • 马燕芬 , **
展开
  • 宁夏大学动物科技学院,银川 750021
** 马燕芬,研究员,博士生导师,E-mail:

* 同等贡献作者

宋忠慧(2001—),女,河南安阳人,硕士研究生,研究方向为动物营养调控与免疫。E-mail:

Copy editor: 武海龙

收稿日期: 2024-10-11

  网络出版日期: 2025-05-14

基金资助

宁夏反刍动物营养科技创新团队(2024CXTD008)

宁夏重点研发计划项目(2023BCF01034)

银川市奶牛高效健康养殖科研创新团队(2023CXTD32)

Screen of Plasma Differential Metabolites and Their Metabolic Pathways of Holstein Milk Bull Calves with High Daily Weight Gain and Low Daily Weight Gain

  • SONG Zhonghui ,
  • LI Mengji * ,
  • CAO Peipei ,
  • MA Xuehu ,
  • MA Yanfen , **
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
** professor, E-mail:

* Contributed equally

Received date: 2024-10-11

  Online published: 2025-05-14

摘要

本试验旨在筛选相同饲喂条件下高日增重和低日增重荷斯坦奶公犊血浆差异代谢物及其代谢通路。于奶公犊出生60~70日龄筛选高日增重(平均日增重>950 g)和低日增重(平均日增重<600 g)荷斯坦奶公犊各6头,采用非靶向代谢组学测序技术测定高日增重和低日增重奶公犊出生后40、60、70和80日龄血浆代谢物,筛选血浆差异代谢物,并对其代谢通路进行相关性分析。结果发现:1)高日增重和低日增重奶公犊血浆中共筛选出73个差异代谢物。2)与低日增重奶公犊相比,高日增重奶公犊血浆中缬氨酸异亮氨酸、5-[(1-氨基乙基)氨基]-2-氨基戊酸、亮氨酰甘氨酸、邻苯二甲酸二乙酯等43个差异代谢物显著上调(P<0.05),十二碳四烯酸异丁酰胺、异戊酸甲酯、Oct-5-烯二酰基肉毒碱、吲哚-3-乙酸、牛磺脱氧胆酸等30个差异代谢物显著下调(P<0.05)。3)京都基因与基因组百科全书(KEGG)通路分析发现差异代谢物主要富集在γ-氨基丁酸(GABA)能突触,缬氨酸,亮氨酸和异亮氨酸的生物合成,丙氨酸、天门冬氨酸和谷氨酸代谢等通路。小分子通路数据库(SMPDB)分析发现差异代谢物主要富集在胆汁酸生物合成和氨循环通路(P<0.05)。综上所述,高日增重和低日增重奶公犊血浆中共筛选出73个差异代谢物,这些差异代谢物主要富集在GABA能突触,缬氨酸,亮氨酸和异亮氨酸的生物合成,丙氨酸、天门冬氨酸和谷氨酸代谢,胆汁酸生物合成及氨循环通路。本研究结果可为深层次探究奶公犊生长以及进一步提升平均日增重提供理论基础。

本文引用格式

宋忠慧 , 李梦吉 , 曹佩佩 , 马学虎 , 马燕芬 . 高日增重和低日增重荷斯坦奶公犊血浆差异代谢物及其代谢通路筛选[J]. 动物营养学报, 2025 , 37(5) : 3355 -3369 . DOI: 10.12418/CJAN2025.276

Abstract

The aim of this experiment was to screen the plasma differential metabolites and their metabolic pathways of Holstein milk bull calves with high daily weight gain and low daily weight gain under the same feeding condition. Six high daily weight gain (average daily gain>950 g) and six low daily weight gain (average daily gain<600 g) Holstein milk bull calves were screened at 60 to 70 days of age, and the plasma metabolites of milk bull calves with high daily weight gain and low daily weight gain were measured on 40, 60, 70 and 80 days of age after birth using non-targeted metabolomics sequencing technology, screened the plasma differential metabolites, and analyzed the correlation of their metabolism pathways. The results showed as follows: 1) seventy-three differential metabolites were screened in plasma of milk bull calves with high daily weight gain and low daily weight gain. 2) Compared with milk bull calves with low daily weight gain, forty-three plasma different metabolites including valine isoleucine, 5-[(1-aminoethyl)amino]-2-aminopentanoic acid, leucylglycine and diethyl phthalate et al of milk bull calves with high daily weight gain were significantly up-regulated (P<0.05), and thirty plasma different metabolites including isobutyramide dodecatetraenoic acid, methyl isovalerate, Oct-5-enediylcarnitine, indole-3-acetic acid, taurocholate and oxalic acid et al were significantly up-regulated (P<0.05). 3) The Kyoto kncyclopedia of genes and genomes (KEGG) pathway analysis revealed that the differential metabolites were mainly enriched in the pathways of γ-aminobutyric acid (GABA)-ergic synapses, biosynthesis of valine, leucine and isoleucine, and metabolism of alanine, aspartate and glutamate. The small molecule pathway database (SMPDB) analysis revealed that the differential metabolites were mainly enriched in the pathways of bile acid biosynthesis and ammonia cycle pathways (P<0.05). In conclusion, seventy-three plasma differential metabolites are identified in milk bull calves with high daily weight gain and low daily weight gain, and these differential metabolites are mainly enriched in GABAergic synapses, valine, leucine and isoleucine biosynthesis, alanine, aspartate and glutamate metabolism, bile acid biosynthesis and ammonia cycling pathways. The results of this study may provide a theoretical basis for a deeper investigation into the growth of dairy bull calves and further enhancement of average daily weight gain.

犊牛生长性能和机体健康不仅关系到牛群的稳定生长和牛场的可持续发展,还关系到牛场的经济效益[1]。即使是相同饲养方式饲养的奶公犊,其生长也会受到较多因素影响。目前,调控奶公犊生长的研究主要集中于饲粮组成[2-5]、结构[6]、蛋白质水平[4,7]和管理水平[8]等方面,而在相同饲养方式下,不同日增重奶公犊血浆差异代谢物及其代谢通路是如何变化的则鲜有报道。因此,开展奶公犊生长过程中变化显著的血浆差异代谢物及其代谢通路研究,对促进奶公犊生长、获得最大的经济效益具有重要的实用价值和现实意义。
近年来,组学技术在畜牧行业中的推广应用迅速,为提高动物临床检验水平奠定了坚实的基础。随着科学技术的发展,继基因组学、转录组学、蛋白质组学之后,代谢组学应运而生。与其他组学不同的是,代谢组学分析的样本主要是易获得的血液、尿液等生物体液[9],代谢物含量可以直接反映基因、蛋白质和代谢物之间的关系[10]。陈浩[11]分析补饲组和放牧组母牛血清代谢物,发现相关差异代谢物主要富集在能量和氨基酸代谢通路上,为提高能量水平调节肉牛体内代谢变化的分子机制提供了更为深入的见解。然而,使用代谢组学进行奶公犊血浆代谢物的相关研究较少。小分子通路数据库(small molecule pathway database,SMPDB)是专门设计用于支持代谢组学、转录组学、蛋白质组学和系统生物学中的通路阐明和通路发现[12]。基于此,本试验采用液相色谱-质谱(liquid chromatograph mass,LC-MS/MS)联用仪分析高日增重和低日增重奶公犊血浆代谢物特征,筛选找寻血浆差异代谢物,并对差异代谢物进行京都基因与基因组百科全书(Kyoto kncyclopedia of genes and genomes,KEGG)通路分析和SMPDB通路分析,从代谢角度层面探究高日增重和低日增重奶公犊血浆代谢物变化及相关代谢通路的变化,为从基因和蛋白质角度开展营养调控促进奶公犊生长发育提供理论依据和技术支撑。

1 材料与方法

1.1 试验设计

本试验于2023年3月中旬从宁夏一规模化商业奶牛场选取出生日期、出生体重[(39.5±4.2) kg]相近的40头奶公犊,于出生后60日龄开始断奶,70日龄断奶完毕。根据奶公犊60~70日龄的平均日增重从40头奶公犊中分别筛选出6头奶公犊,平均日增重>950 g为高日增重组(DWG_H组),平均日增重<600 g为低日增重组(DWG_L组),采集这12头奶公犊出生后40、60、70和80日龄的血液进行代谢组学测序(筛除患疾病或用药的奶公犊)。

1.2 饲养管理

犊牛出生后单独安放于犊牛舍中,自由饮水。犊牛出生后每天饲喂4 L牛奶(早晚各1次,2 L/次),1月龄时增加到每天饲喂6 L牛奶(早晚各1次,3 L/次)。犊牛于出生后60日龄开始断奶,70日龄完全断奶。从犊牛出生后1周开始饲喂开食料并逐渐增加,期间自由采食,自由饮水。

1.3 样品采集

分别于奶公犊出生后40、60、70、80日龄早晨采食前,使用一次性真空采血管采集每头奶公犊前腔静脉血5 mL于抗凝管中,室温下3 000×g离心10 min后收集血浆,置于-80 ℃冰箱保存,用于后续样品分析。

1.4 血浆代谢物测定

将100 μL血浆样品与400 μL预冷的甲醇/乙腈(1∶1,V/V)充分混合,涡旋搅拌后将混合物在冰浴中超声处理1 h,于-20 ℃下孵育1 h进行蛋白质沉淀,之后在4 ℃、14 000×g离心20 min后收集上清液,采用LC-MS/MS进行测定分析。

1.5 LC-MS/MS分析

1.5.1 色谱分离

血浆代谢组学测序由上海鹿明生物科技有限公司进行。分析仪器为超高效液相串联高分辨质谱仪组成的液质联用系统。色谱条件如下,色谱柱:ACQUITY UPLC HSS T3(100 mm×2.1 mm,1.8 μm);柱温:45 ℃;流动相A(A):水(含0.1%甲酸),流动相B(B):乙腈;流速:0.35 mL/min;进样体积:2 μL。洗脱梯度为:0~2 min,95%(A):5%(B)至95%(A):5%(B);2~4 min,95%(A):5%(B)至70%(A):30%(B);4~8 min,70%(A):30%(B)至50%(A):50%(B);8~10 min,50%(A):50%(B)至20%(A):80%(B);10~14 min,20%(A):80%(B)至0%(A):100%(B);14~15 min,0(A):100%(B)至0(A):100%(B);15~15.1 min,0(A):100%(B)至95%(A):5%(B);15.1~16 min,95%(A):5%(B)至95%(A):5%(B)。

1.5.2 数据处理和分析

使用MS-DIAL软件对原始质谱数据进行峰对齐、保留时间校正和峰面积提取处理。通过与人类代谢组数据库(human metabolome data base,HMDB)、Lipidmaps(v2.3)和代谢物信息数据库以及LuMet-Animal(3.0)本地数据库进行比对,确定代谢物的准确质量(质量公差小于10 mg/kg)和串联质谱(MS/MS)数据(质量公差小于0.02 Da)。对提取到的数据进行缺失值处理、0值替换、打分筛选、数据合并等处理。所有多变量数据分析和建模均使用R(4.0.3版)和R软件包。模型建立在主成分分析(principal component analysis,PCA)和正交偏最小二乘判别分析(orthogonal partial least squares-discriminant analysis,OPLS-DA)上。

2 结果与分析

2.1 高日增重和低日增重奶公犊血浆代谢物多元统计分析

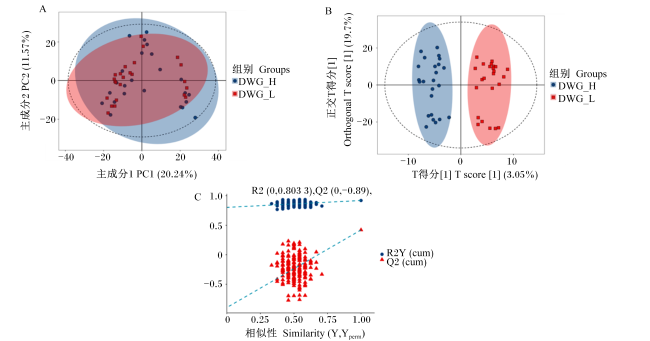
多元统计分析利用无监督的PCA确定各待测样本之间的总体分布和整个试验分析过程的稳定性。结果发现,在正负混合模式下,质控(quality control,QC)样本紧密聚集在一起,说明试验重复性好(图1-A)。为了更精确地比较DWG_H组和DWG_L组奶公犊血浆代谢物差异性,本试验对其进行OPLS-DA,OPLS-DA是结合了正交信号矫正和偏最小二乘判别分析(partial least squares-discriminant analysis,PLS-DA)2个方法,将X矩阵信息分解成与Y相关和不相关的2类信息,通过去除不相关的差异,相关的信息就集中表现在第一个预测成分中。OPLS-DA结果发现DWG_H组和DWG_L组奶公犊血浆代谢物分布范围较大(图1-B),表明2组奶公犊血浆代谢物之间存在显著差异。上述结果证明,本试验构建的OPLS-DA分析模型符合要求,没有出现过拟合,证明该模型预测效果较好(图1-C)。综合以上结果表明该模型质量高,差异代谢物筛选可靠性强。
图1 高日增重和低日增重奶公犊血浆代谢物多元统计分析图

A:质控样本的PCA得分图;B:OPLS-DA分析模型的得分图;C:OPLS-DA置换检验图。R2Y表示模型对Y矩阵的解释率,Q2表示模型预测能力。

Fig.1 Multivariate statistical analysis chart of plasma metabolites of dairy bull calves with high daily weight gain and low daily weight gain

A: PCA score graph of quality control samples; B: score graph of OPLS-DA analysis model; C: OPLS-DA permutation test graph. R2Y indicates the explanation rate of the model on Y matrix; Q2 indicate the predictive power of the model.

2.2 高日增重和低日增重奶公犊血浆代谢物分类

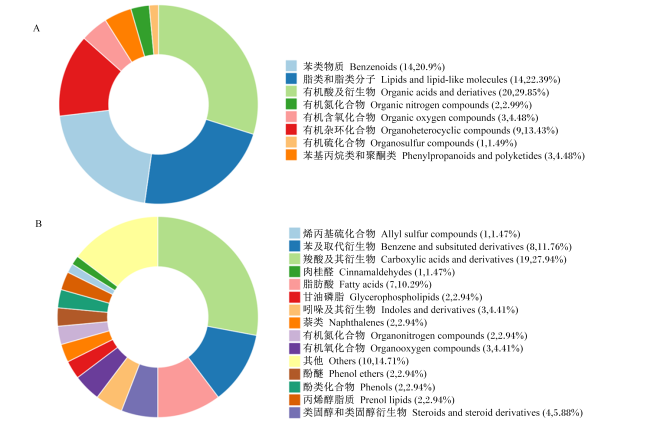
为了对筛选出的血浆代谢物进行分类,本试验依据代谢物的结构和功能,对高日增重和低日增重奶公犊血浆代谢物进行Super Class分类和Class分类统计。由图2可知,Super Class分类的奶公犊血浆代谢物主要有苯类物质、脂质和类脂质分子、有机酸及其衍生物、有机氮化合物、有机含氧化合物、有机杂环化合物、有机硫化合物以及苯基丙烷类和聚酮类(图2-A)。Class分类的奶公犊血浆代谢物主要包括烯丙基硫化合物、苯及取代衍生物、羧酸及其衍生物、肉桂醛、脂肪酸、甘油磷脂、吲哚及其衍生物、萘类、有机氮化合物、有机氧化合物、酚醚、其他、酚类化合物、丙烯醇脂质以及类固醇和类固醇衍生物(图2-B)。
图2 高日增重和低日增重奶公犊血浆代谢物分类扇形图

A:Super Class分类 Super Class classification;B:Class分类 Class classification。

Fig.2 Fan chart of metabolites classification of dairy bull calves with high daily weight gain and low daily weight gain

2.3 高日增重和低日增重奶公犊血浆差异代谢物分析

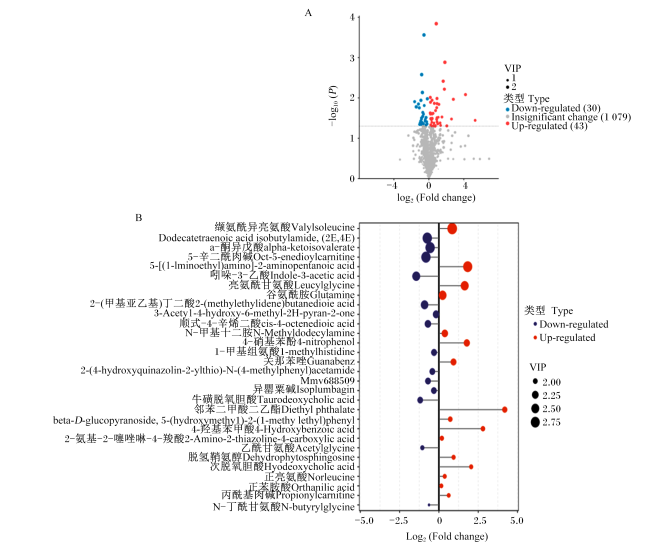
对高日增重和低日增重奶公犊血浆差异代谢物进行分析,以DWG_H组奶公犊为对照,以P<0.05、变量投影重要性(VIP)>1.0为筛选标准绘制火山图,共筛选出高日增重和低日增重奶公犊血浆差异代谢物73种,其中上调差异代谢物有43种,下调差异代谢物有30种(图3-A)。将高日增重和低日增重奶公犊血浆代谢物中的上调差异代谢物和下调差异代谢物中VIP最大的30个差异代谢物绘制棒棒图(图3-B),结果发现表达显著上调的差异代谢物有缬氨酸异亮氨酸、5-[(1-氨基乙基)氨基]-2-氨基戊酸、亮氨酰甘氨酸、邻苯二甲酸二乙酯等(表1,P<0.05),表达显著下调的差异代谢物有十二碳四烯酸异丁酰胺、异戊酸甲酯、Oct-5-烯二酰基肉毒碱、吲哚-3-乙酸、牛磺脱氧胆酸等(表2,P<0.05)。
图3 高日增重和低日增重奶公犊血浆差异代谢物筛选

A:差异代谢物火山图 differential metabolite volcano plot;B:VIP差异倍数和VIP图(前30) VIP multiplicity of difference and VIP plot (top 30)。

VIP:变量投影重要性 variable importance in projection;P:PP-value;Fold change:差异倍数;Down-regulated:下调;Insignificant change:无显著变化;Up-regulated:上调;Dodecatetraenoic acid isobutylamide, (2E,4E):十二碳四烯酸异丁酰胺;3-acetyl-4-hydroxy-6-methyl-2H-pyran-2-one:3-乙酰基-4-羟基-6-甲基-2H-吡喃-2-酮;5-[(1-iminoethyl)amino]-2-aminopentanoic acid:5-[(1-氨基乙基)氨基]-2-氨基戊酸;2-(4-hydroxyquinazolin-2-ylthio)-N-(4-methylphenyl)acetamide:2-(4-羟基喹唑啉-2-硫基)-N-(4-甲基苯基)乙酰胺;beta-D-glucopyranoside, 5-(hydroxymethyl)-2-(1-methylethyl)phenyl:β-D-吡喃葡萄糖苷,5-(羟甲基)-2-(1-甲基乙基)苯基。

Fig.3 Screening of plasma differential metabolites of milk bull calves with high daily weight gain and low daily weight gain

表1 高日增重和低日增重奶公犊血浆中表达上调的差异代谢物

Table 1 Plasma differential metabolites with up-regulated expression of milk bull calves with high daily weight gain and low daily weight gain

差异代谢物
Differential metabolites
变量投影
重要性
VIP
log2(差异
倍数)
log2(FC)
P
P-value
差异代谢物
Differential metabolites
变量投影
重要性
VIP
log2(差异
倍数)
log2(FC)
P
P-value
缬氨酰异亮氨酸Valylisoleucine 2.94 0.85 <0.001 N-甲基十二胺N-methyldodecylamine 2.21 0.38 0.032
5-[(1-氨基乙基)氨基]-2-氨基戊酸
5-[(1-iminoethyl)amino]-2-aminopentanoic acid
2.78 1.83 0.001 3,4,5-三甲氧基肉桂醛
3,4,5-trimethoxycinnamic aldehyde
1.79 0.22 0.240
亮氨酰甘氨酸Leucylglycine 2.50 1.64 0.004 正苯胺酸Orthanilic acid 1.95 0.15 0.024
对羟基苯甲酸4-nitrophenol 1.98 2.80 0.011 N-果糖基异亮氨酸N-fructosyl isoleucine 1.90 0.48 0.024
邻苯二甲酸二乙酯Diethyl phthalate 2.05 4.19 0.008 特拉唑嗪Terazosin 1.44 0.30 0.035
关那苯Guanabenz 2.13 0.93 0.010 2,6-二羟基苯甲酸酯2,6-dihydroxybenzoate 1.64 5.30 0.036
对羟基苯甲酸4-hydroxybenzoic acid 1.98 2.80 0.011 亮丙氨酸Leucylalanine 1.78 0.93 0.039
苯丙氨酸果糖基N-fructosyl phenylalanine 1.50 0.33 0.040 缬氨酰-亮氨酸Val-Leu 1.60 1.29 0.042
正亮氨酸Norleucine 1.95 0.37 0.011 谷氨酰亮氨酸Glutamylleucine 1.74 0.37 0.025
2-氨基-2-噻唑啉-4-羧酸
2-amino-2-thiazoline-4-carboxylic acid
1.96 0.19 0.013 3-亚甲基吲哚烯酸
3-methylene-indolenine
1.57 0.18 0.025
丙酰基肉碱Propionylcarnitine 1.93 0.62 0.014 2-羟基苯乙酸2-hydroxyphenylacetic acid 1.70 1.50 0.030
脱氢鞘氨醇Dehydrophytosphingosine 1.96 0.93 0.014 三唑酮Triadimefon 1.26 1.08 0.030
二氟氯乙酸Chlorodifluoroacetic acid 1.85 1.15 0.014 谷氨酰胺Glutamine 2.48 0.23 0.033
N-阿魏酰辛多巴胺N-feruloyloctopamine 1.76 0.90 0.017 二烯丙基硫醚Diallyl sulfide 1.08 0.37 0.033
马尿酸Hippuric acid 1.61 2.59 0.033 吡格列酮Pioglitazone 1.77 0.90 0.034
N-(5-氟-3-甲基-1H-吲哚-1-基)-4-甲基-
2-(吡啶-2-基)嘧啶-5-甲酰胺
N-(5-fluoro-3-methyl-1H-indol-1-yl)-4-methyl-2-(pyridin-2-yl)pyrimidine-5-carboxamide
1.81 0.77 0.021 N-[(1E)-2-(2-羟基萘基)-1-氮杂乙烯基]-2-(3,5-二氧代(2H,4H-1,2,4-三嗪-6-基))乙酰胺
N-[(1E)-2-(2-hydroxynaphthyl)-1-azavinyl]-2-(3,5-dioxo(2H,4H-1,2,4-triazin-6-y l))acetamide
1.81 0.93 0.031
1,4-二羟基十七碳-16-烯-2-醇乙酸酯
1,4-dihydroxyheptadec-16-en-2-yl acetate
1.62 0.59 0.042 3-氨基-2,2-二甲基丙酸
3-amino-2,2-dimethylpropanoic acid
1.37 0.23 0.046
双乙酰基二氨基戊烷
Bis-(acetyl)diaminopentane
1.81 1.02 0.044 对甲酚p-cresol 1.79 0.22 0.046
草氨酸Oxamic acid 1.47 1.35 0.048 5-羟基吲哚乙酸酯5-hydroxyindoleacetate 1.56 0.74 0.048
2-氨基-4-(3-羟基苯基)-5
-氧代-6-氢-4H-吡喃[3,2-c]喹啉-3-腈
2-amino-4-(3-hydroxyphenyl)-5
-oxo-6-hydro-4H-pyrano[3,2-c]quinoline-3-carbonit rile
1.65 0.53 0.049 β-D-吡喃葡萄糖苷,5-(羟甲基)-2-(1-甲基乙基)苯基
Beta-D-glucopyranoside, 5-(hydroxymethyl)-2-(1-methylethyl)phenyl
1.99 0.72 0.049
过氧胆酸Hyodeoxycholic acid 1.95 2.05 0.049 硝酸匹罗卡品Pilocarpine nitrate 1.44 0.33 0.049
表2 高日增重和低日增重奶公犊血浆中表达下调的差异代谢物

Table 2 Plasma differential metabolites with down-regulated expression of milk bull calves with high daily weight gain and low daily weight gain

差异代谢物
Differential metabolites
变量投影
重要性VIP
log2(差异
倍数)
log2(FC)
P
P-value
差异代谢物
Differential metabolites
变量投影
重要性VIP
log2(差异
倍数)
log2(FC)
P
P-value
十二碳四烯酸异丁酰胺
Dodecatetraenoic acid isobutylamide
2.87 -0.74 0.007 异戊酸甲酯
Ketoisovalerate
2.86 -0.56 <0.001
Oct-5-烯二酰基肉毒碱
Oct-5-enedioylcarnitine
2.84 -0.82 0.003 吲哚-3-乙酸
Indole-3-acetic acid
2.51 -1.44 0.017
牛磺脱氧胆酸
Taurodeoxycholic acid
2.11 -1.19 0.014 2-(甲基亚乙基)丁二酸
2-(methylethylidene)butanedioic acid
2.41 -0.91 0.011
3-乙酰基-4-羟基-6-甲基-2H-吡喃-2-酮
3-acetyl-4-hydroxy-6-methyl-2H-pyran-2-one
2.25 -0.18 0.010 顺式-4-辛烯二酸
Cis-4-octenedioic acid
2.23 -0.70 0.029
1-甲基组氨酸
1-methylhistidine
2.14 -0.31 0.046 2-(4-羟基喹唑啉-2-硫基)-N-(4-甲基苯基)乙酰胺
2-(4-hydroxyquinazolin-2-ylthio)-N-
(4-methylphenyl)acetamide
2.12 -0.42 0.037
Mmv688509 2.12 -0.69 0.002 异铅蛋白Isoplumbagin 2.11 -0.32 0.031
乙酰甘氨酸Acetylglycine 1.96 -1.05 0.045 N-丁酰甘氨酸N-butyrylglycine 1.90 -0.63 0.043
牛磺胆硷酸Taurolithocholic acid 1.88 -1.63 0.043 牛磺鹅去氧胆酸Taurochenodeoxycholic acid 1.85 -0.93 0.037
黏连抑制剂D Macrosphelide D 1.84 -0.85 0.031 2-异丙基丙二酸2-isopropylmalic acid 1.81 -0.83 0.032
PC(14∶0/20∶3) 1.72 -0.53 0.015 乙基葡萄糖醛酸Ethylglucuronide 1.63 -0.82 0.040
丁酸,3-甲基-,(1S,4aS,6S,7R,7aS)-7-[(乙酰氧基)甲基]-4-[(beta-D-吡喃葡萄糖氧基)甲基]-1,4a,5,6,7,7a-六氢-6,7-二羟基环戊并[c]吡喃-1-基酯
Butanoic acid, 3-methyl-, (1S,4aS,6S,7R,7aS)-7-[(acetyloxy)methyl]-4-[(beta-D-glucopyranosyloxy)methyl]-1,4a,5,6,7,7a-hexahydro-6,7-dihydroxycyclopenta[c]pyran-1-yl ester
1.76 -0.89 0.045 4-脱氧赤藓酸
4-deoxyerythronic acid
1.76 -0.61 0.025
γ-氨基丁酸GABA 1.61 -0.24 0.039 硫辛酸Lipoic acid 1.58 -0.41 0.034
PFSM-全氟烷基磺酰胺
PFSM-perfluoroalkyl_sulfonamide
1.57 -0.85 0.034 LPI(18:0) 1.43 -0.19 0.044
甲氧基胺Methoxamine 1.41 -0.31 0.047 全氟烷基磺酰胺PFSM-amine 1.38 -0.77 0.040
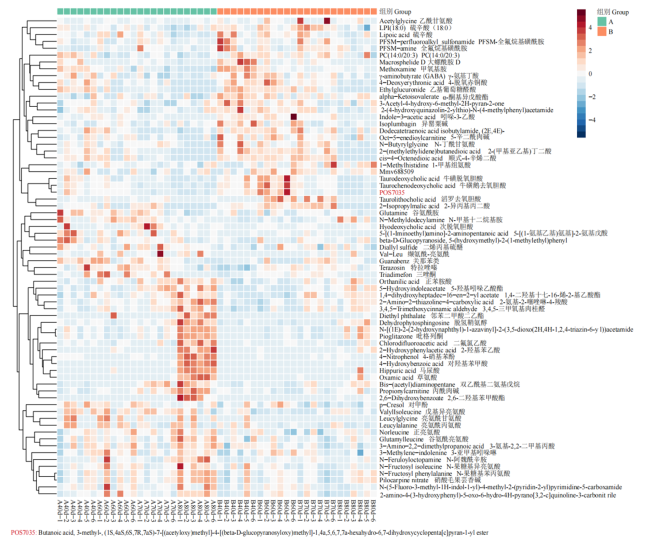
将高日增重和低日增重奶公犊血浆差异代谢物表达量进行层次聚类,发现高日增重和低日增重奶公犊血浆代谢物表达丰度差异显著(P<0.05),高日增重奶公犊血浆代谢物中缬氨酰异亮氨酸、4-硝基苯酚、5-[(1-氨基乙基)氨基]-2-氨基戊酸、亮氨酰甘氨酸、邻苯二甲酸二乙酯的表达丰度显著高于低日增重奶公犊(图4,P<0.05)。
图4 高日增重和低日增重奶公犊差异代谢物聚类分析图

N-[(1E)-2-(2-hydroxynaphthyl)-1-azavinyl]-2-(3,5-dioxo(2H,4H-1,2,4-triazin-6-y l)acetamide:N-[(1E)-2-(2-羟基萘基)-1-氮杂乙烯基]-2-(3,5-二酮(2H,4H-1,2,4-三嗪-6-基))乙酰胺;N-(5-Fluoro-3-methyl-1H-indol-1-yl)-4-methyl-2-(pyridin-2-yl)pyrimidine-5-carboxamide:N-(5-氟-3-甲基-1H-吲哚-1-基)-4-甲基-2-(吡啶-2-基)嘧啶-5-甲酰胺;2-amino-4-(3-hydroxyphenyl)-5-oxo-6-hydro-4H-pyrano[2-c]quinoline-3-carbonit rile:2-氨基-4-(3-羟基苯基)-5-氧代-6-氢-4H-吡喃并[2-c]喹啉-3-腈;Butanoic acid, 3-methyl-, (1S,4aS,6S,7R,7aS)-7-[(acetyloxy)methyl]-4-[(beta-D-glucopyranosyloxy)methyl]-1,4a,5,6,7,7a-hexahydro-6,7-dihydroxycyclopenta[c]pyran-1-yl ester:丁酸,3-甲基-(1S,4aS,6S,7R,7aS)-7-[(乙酰氧基)甲基]-4-[(beta-D-吡喃葡萄糖氧基)甲基]-1,4a,5,6,7,7a-六氢-6,7-二羟基环戊并[c]吡喃-1-基酯。

Fig.4 Cluster analysis plot of differential metabolites of milk bull calves with high daily weight gain and low daily weight gain

2.4 高日增重和低日增重奶公犊血浆差异代谢通路富集分析

2.4.1 KEGG通路富集分析
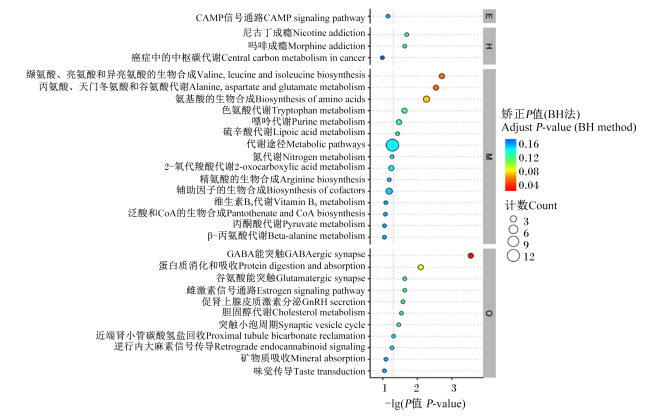
利用KEGG在线数据库和通路分析,筛选出高日增重和低日增重奶公犊血浆差异代谢物中显著性富集的通路,确定出差异代谢物参与的最主要生化代谢途径和信号转导途径。结果发现筛选出的一级代谢通路主要富集在代谢(metabolism,M)、环境信息处理(environmental information processing,E)、生物体系统(organismal systems,O)和人类疾病(human diseases,H)这四大类代谢通路上(图5),其中富集在γ-氨基丁酸(GABA)能突触(GABAergic synapse),缬氨酸、亮氨酸和异亮氨酸的生物合成(valine,leucine and isoleucine biosynthesis)以及丙氨酸、天门冬氨酸和谷氨酸代谢(alanine,aspartate and glutamate metabolism)这3条代谢通路上的差异代谢物最多也最为显著(P<0.05)。由表3可见,进一步说明GABA能突触,缬氨酸、亮氨酸和异亮氨酸的生物合成和丙氨酸、天门冬氨酸和谷氨酸代谢这3条代谢通路是影响奶公犊生长的关键代谢通路。
图5 高日增重和低日增重奶公犊血浆代谢物KEGG分析气泡图

Fig.5 KEGG analysis bubble diagram of milk bull calves with high daily weight gain and low daily weight gain

表3 高日增重和低日增重奶公犊血浆差异代谢物KEGG显著富集通路

Table 3 KEGG significant enrichment pathway of differential metabolites of milk bull calves with high daily weight gain and low daily weight gain

代谢通路
Metabolic pathway
富集系数
Rich factor
一级代谢通路
Level 1 metabolic
pathway
P
P-value
代谢通路
Metabolic pathway
富集系数
Rich factor
一级代谢通路
Level 1 metabolic
pathway
P
P-value
GABA能突触
GABAergic synapse
75.76 生物体系统
Organismal systems
<0.001 吗啡成瘾
Morphine addiction
42.62 人类疾病
Human diseases
0.023
缬氨酸、亮氨酸和异亮氨酸的生物合成
Valine, leucine and isoleucine
biosynthesis
29.65 代谢
Metabolism
0.002 色氨酸代谢
Tryptophan metabolism
8.22 代谢
Metabolism
0.024
丙氨酸、天门冬氨酸和谷氨酸代谢
Alanine, aspartate and glutamate metabolism
24.35 代谢
Metabolism
0.003 性腺激素分泌
GnRH secretion
37.88 生物体系统
Organismal systems
0.026
氨基酸的生物合成
Biosynthesis of amino acids
7.99 代谢
Metabolism
0.005 胆固醇代谢
Cholesterol metabolism
34.09 生物体系统
Organismal systems
0.030
蛋白质的消化和吸收
Protein digestion and absorption
14.51 生物体系统
Organismal systems
0.008 嘌呤代谢
Purine metabolism
6.75 代谢
Metabolism
0.034
雌激素信号通路
Estrogen signaling pathway
42.62 生物体系统
Organismal systems
0.023 突触小泡循环
Synaptic vesicle cycle
28.41 生物体系统
Organismal systems
0.035
谷氨酸能突触
Glutamatergic synapse
42.62 生物体系统
Organismal systems
0.023 硫辛酸代谢
Lipoic acid metabolism
26.22 代谢
Metabolism
0.037
近端肾小管碳酸氢盐回收
Proximal tubule bicarbonate
20.05 生物体系统
Organismal systems
0.049 尼古丁成瘾
Nicotine addiction
48.70 人类疾病
Human diseases
0.020

2.4.2 SMPDB通路富集分析

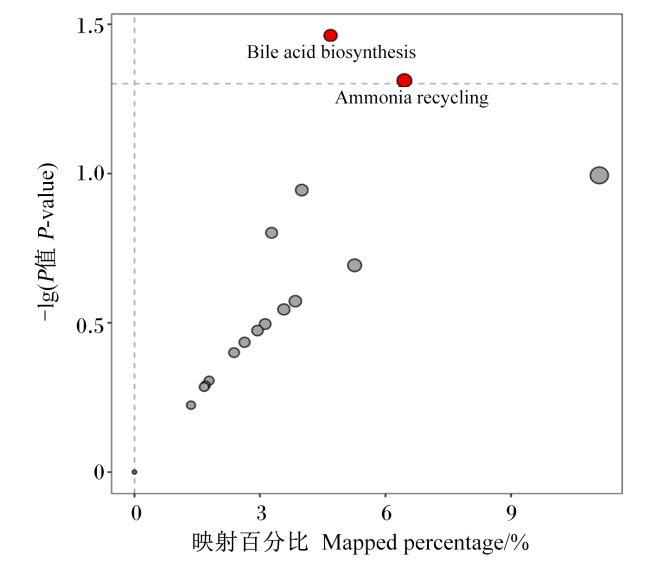
HMDB包含了人体中发现的代谢物的详细信息,其中包括了20多万个代谢物条目。基于此,对HMDB的子库SMPDB的Primary Pathways富集进行富集分析,其中横坐标表示匹配到的血浆差异代谢物的占比,纵坐标表示P值的负对数转化;气泡填充色由深到浅表示P值增大,显著性降低(图6)。结果发现,与DWG_L组相比,DWG_H组奶公犊血浆差异代谢物主要富集在胆汁酸生物合成(bile acid biosynthesis)和氨循环(ammonia recycling)通路,说明胆汁酸生物合成和氨循环是影响奶公犊生长的关键通路。
图6 高日增重和低日增重奶公犊血浆代谢物SMPDB分析气泡图

Bile acid biosynthesis:胆汁酸生物合成;Ammonia recycling:氨循环。

Fig.6 Bubble plot of plasma metabolite SMPDB analysis of milk bull calves with high daily weight gain and low daily weight gain

3 讨论

3.1 GABA能突触与奶公犊生长发育

促进奶公犊生长发育的差异代谢物主要集中在脂类、苯类及其衍生物和氨基酸,这些相关代谢物在奶公犊的生长发育过程中起着至关重要的作用。具体来说,蛋白质、碳水化合物和脂肪通过提供必要的氨基酸、糖分和能量,促进奶公犊的体重增加和身体发育。维生素和矿物质主要参与体内的各种生化反应,维持正常的生理功能[13]。GABA被认为是快速抑制性突触传递的主要神经递质,通常分布在动植物的组织中[14],是中枢神经的主要抑制剂之一[15]。已有研究表明,GABA对减少产热和发热具有重要作用,对肉鸡的抗氧化功能和免疫反应有积极影响[16]。除了神经传递功能外,GABA还具有增强记忆力和增强对抗应激的免疫力,并且还具有镇静和维持血压的作用[17]。大脑在发育过程中会经历突触形成、突触稳定和突触坏死3个阶段,GABA能突触的形成主要依赖于细胞黏附因子如神经配蛋白和富含亮氨酸跨膜蛋白,它们与突触前的轴突蛋白和突触前的蛋白酪氨酸磷酸酶结合的Slit-和Trk样家族蛋白相互作用[18-20]。本试验中,高日增重奶公犊血浆差异代谢物亮氨酸上调,GABA能突触通路显著富集,GABA可与ATP和腺苷在突触处以依赖性方式共同释放,导致ATP和腺苷在GABA能突触发生过程中释放增加[21],相较于低日增重奶公犊,GABA能突触为高日增重奶公犊的生长提供了相对较多的ATP,更有利于促进奶公犊的生长。

3.2 脂肪族氨基酸富集与奶公犊生长发育

氨基酸是构成蛋白质的基础物质,脂肪族氨基酸是动物机体生长中的重要调节因子。本试验发现,缬氨酸、亮氨酸和异亮氨酸的生物合成与丙氨酸、天门冬氨酸和谷氨酸代谢这2条脂肪族氨基酸代谢通路在高日增重和低日增重奶公犊血浆代谢物显著上调。亮氨酸是机体不可或缺的一种氨基酸,可刺激肝脏中支链氨基酸的分解代谢[22],如给猪喂食含有过量亮氨酸的饲粮,由于亮氨酸或其代谢物对支链氨基酸降解酶的刺激作用,缬氨酸和异亮氨酸的降解可能会增加[23];饲粮中过量亮氨酸不仅会减少蛋白质合成[22],而且会导致奶公犊饲料摄入量和生长性能降低,这可能是因为缬氨酸和异亮氨酸的降解增加导致支链氨基酸供应不平衡所致。天冬氨酸作为一种非必需氨基酸,以L-天冬氨酸(L-Asp)和D-天冬氨酸(D-Asp)存在,L-Asp为嘌呤环提供1个氮原子,为嘧啶环提供3个碳原子和1个氮原子,嘌呤和嘧啶结构中氮原子的第2个来源是谷氨酰胺的γ氮[24],谷氨酰胺酶对谷氨酰胺的脱酰胺产生谷氨酸,谷氨酸是L-Asp合成的直接底物,L-Asp在核苷酸合成中的应用与谷氨酰胺代谢密切相关;肌肉中L-Asp、谷氨酸、谷氨酰胺和丙氨酸合成的主要氮来源是线粒体中的支链氨基酸(branched chain amino acids,BCAA)分解代谢[25],支链氨基酸的供应可提高血液中的L-Asp、丙氨酸和谷氨酰胺含量[26]。生理状态下,肌肉中的丙氨酸合成在饥饿的初始阶段被激活,主要用于葡萄糖合成,新合成的葡萄糖可以从肝脏释放并返回骨骼肌,称为葡萄糖-丙氨酸循环的循环[27]。相比低日增重奶公犊,高日增重奶公犊中的谷氨酰胺参与的嘌呤-核苷酸循环更为密切,可为奶公犊生长发育提供更为稳定的能量供应。
动物生长性能并不与氨基酸含量呈线性关系,但高水平氨基酸则会导致饲粮内氨基酸不平衡,最终影响动物生长性能[28]。相对于低日增重奶公犊,高日增重奶公犊血浆代谢物中异戊酸甲酯和α-酮基异戊酸2个脂肪族氨基酸差异代谢物显著下调,异戊酸是一种由肠道细菌产生的代谢产物,当机体缺乏维生素B1时,异戊酸就会积累并引起中毒反应;而维生素B1主要是通过增加瘤胃纤维分解菌丰度,提高瘤胃上皮紧密连接蛋白表达,减少炎症因子分泌来缓解瘤胃酸中毒[29-30]。相较于低日增重奶公犊,高日增重奶公犊因维生素B1含量较为丰富,奶公犊患病风险可能会更低,更有利于奶公犊的健康生长。

3.3 氨循环富集与奶公犊生长发育

氨是动物肠道中最主要的代谢毒性产物之一,它可以造成不同组织、器官和细胞的功能障碍,并引发相关疾病。在动物体内,氨气主要源于肠道,通过氨基酸脱氨基和肝脏合成的尿素水解和氨基酸脱氨基产生[31],在体内经代谢后,依然会在不同程度上对神经系统、肝脏、肾脏、细胞等造成损伤,导致机体产生功能性障碍[32]。氨在体内的主要去路有2条,一条是在肝内通过鸟氨酸循环(尿素循环)生成无毒的尿素,然后由肾排出体外[33];另一条是氨可通过在谷氨酰胺合成酶的作用下重新合成谷氨酰胺,以此有利于氨的运输[34]。氨在瘤胃中的浓度受饲粮中蛋白质被微生物降解的速度和微生物合成菌体蛋白质的速度影响,一般不会积累;但当有大量蛋白质被降解,且降解速度快于合成速度时,则氨就会在瘤胃内积聚,此时瘤胃中氨将被胃壁吸收,经血液输送到肝脏,并在肝中转变成尿素,转化的尿素一部分经血液和唾液返回瘤胃,另有一部分经肾脏随尿排出,这种氨和尿素的生成和再返回瘤胃的过程就是瘤胃氮素循环。相较于低日增重奶公犊,高日增重奶公犊氨循环通路显著上调。已有研究发现,高浓度氨还会导致肠道免疫和营养代谢有关的蛋白质下调,降低了小肠黏膜对营养物质的吸收和肠道自身的抗微生物的能力,其肠道免疫力处于较低水平时,极大增加了细菌及其病毒感染的可能性,从而降低了动物的生长速度[35]。谷氨酰胺显著上调会减少氨在机体的累积,有利于促进奶公犊健康生长,但目前对于氨循环与奶公犊生长的相关性研究较少,还需要进一步深入挖掘探讨。

3.4 胆汁酸代谢下调与奶公犊生长发育

胆汁酸在肝脏中通过细胞色素P450介导的胆固醇氧化作用生成[36],肝脏中生成的胆汁酸先进入肠道参与消化吸收,后经肠道重吸收,大约95%的胆汁酸经门静脉返回肝脏,仅有少部分进入血液循环[37],其余5%则通过粪便排出体外[38],留下的胆汁酸与牛磺酸或氨基酸、甘氨酸、硫酸盐或葡萄糖醛酸结合,储存在胆囊中[39]。牛磺胆酸、牛磺鹅脱氧胆酸是初级胆汁酸的重要活性物质,也是脂肪性物质代谢的重要介质[40]。已有研究发现,胆酸可以调节大鼠肠道微生物群的组成,促进大鼠小肠中膳食脂肪和维生素的吸收[41],进而影响能量代谢[42]、血脂和脂蛋白代谢[43];胆汁酸还可通过法尼醇X受体(Farnesoid X receptor,FXR)和G蛋白偶联受体5(G protein-coupled receptor 5,TGR5)信号通路调节糖代谢和脂代谢[44-45]。本试验中,高日增重奶公犊血浆代谢物中次脱氧胆酸上调,头孢脱氧胆酸、滔罗脱氧胆酸和牛磺熊胆酸下调,胆汁酸代谢通路显著富集,总体呈现下调趋势,但奶公犊并未出现消瘦、消化不良等症状。原因可能是高日增重奶公犊肠道处于正常稳态,同时肠道微生物有助力其采食的营养物质的消化吸收。因此,尽管高日增重奶公犊血浆中胆汁酸分泌量低于低日增重奶公犊,但对奶公犊的日增重并未产生显著影响,其具体调控机制仍有待进一步研究。

4 结论

高日增重和低日增重奶公犊血浆中共筛选出73个差异代谢物。与低日增重奶公犊相比,高日增重奶公犊血浆代谢物中缬氨酸、亮基甘氨酸、2,6-二羟基苯甲酸酯、邻苯二甲酸二乙酯、对羟基苯甲酸、马尿酸、次脱氧胆酸等43个代谢物显著上调,十二碳四烯酸异丁基酰胺、α-酮症酸乙酯、Oct-5-烯二酰基肉毒碱、吲哚-3-乙酸、牛磺脱氧胆酸、乙酰甘氨酸、头孢脱氧胆酸等30个代谢物显著下调。与低日增重奶公犊相比,高日增重奶公犊血浆差异代谢物富集的GABA突触,缬氨酸,亮氨酸和异亮氨酸的生物合成及丙氨酸、天门冬氨酸和谷氨酸代谢通路显著上调,而富集的胆汁酸代谢通路显著下调。
[1]
LEBLANC S J, LISSEMORE K D, KELTON D F, et al. Major advances in disease prevention in dairy cattle[J]. Journal of Dairy Science, 2006, 89(4):1267-1279.

PMID

[2]
李博, 张元庆, 程景, 等. 不同饲粮结构对荷斯坦奶公犊肉品质的影响[J]. 中国畜牧杂志, 2020, 56(11):135-139.

LI B, ZHANG Y Q, CHENG J, et al. Effects of different ration structures on meat quality of Holstein dairy bull calves[J]. Chinese Journal of Animal Science, 2020, 56(11):135-139. (in Chinese)

[3]
孙国虎. 不同饲草对奶牛公犊生长发育的影响[J]. 甘肃畜牧兽医, 2018, 48(12):75-78.

SUN G H. Effects of different forages on growth and development of dairy bull calves[J]. Gansu Animal and Veterinary Sciences, 2018, 48(12):75-78. (in Chinese)

[4]
LA S K, LI H, WANG C, et al. Effects of rumen-protected folic acid and dietary protein level on growth performance,ruminal fermentation,nutrient digestibility and hepatic gene expression of dairy calves[J]. Journal of Animal Physiology and Animal Nutrition, 2019, 103(4):1006-1014.

[5]
GAO S T, ZHOU Z, WANG J Q, et al. Diet composition affects liver and mammary tissue transcriptome in primiparous Holstein dairy cows[J]. Animals, 2020, 10(7):1191.

[6]
SHAHVARANI A, SERAJ A, KHORSHIDI K J. Effects of four diet structure and two protein percentage content on growth performance and biometric measurements of Holstein calves[J]. Iranian Journal of Applied Animal Science, 2018, 8(3):423-429.

[7]
武晓旭, 刘强, 王聪, 等. 不同蛋白日粮补充过瘤胃叶酸对肉牛生长和消化代谢的影响[J]. 饲料工业, 2018, 39(7):34-38.

WU X X, LIU Q, WANG C, et al. Effects of dietary protein levels and rumen-protected folic acid on growth performance,digestion and metabolism in calves[J]. Feed Industry, 2018, 39(7):34-38. (in Chinese)

[8]
BROWN A J, SCOLEY G, O'CONNELL N E, et al. The impact of plane of nutrition and ambient temperature on the energy utilisation,performance,health and behaviour of newborn dairy-bred bull calves[J]. Animal-Science Proceedings, 2023, 14(2):399-400.

[9]
CHEN M X, WANG S Y, KUO C H, et al. Metabolome analysis for investigating host-gut microbiota interactions[J]. Journal of the Formosan Medical Association, 2019, 118(Suppl.1):S10-S22.

[10]
ZHANG A H, SUN H, HAN Y, et al. Urinary metabolic biomarker and pathway study of hepatitis B virus infected patients based on UPLC-MS system[J]. PLoS One, 2013, 8(5):e64381.

[11]
陈浩. 基于16S rRNA和代谢组学解析营养调控对肉用母牛生产性能的影响机制[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2021.

CHEN H. Analysis of the effect of nutritional regulation on the performance of beef cows based on 16S rRNA and metabolomics[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2021. (in Chinese)

[12]
JEWISON T, SU Y L, DISFANY F M, et al. SMPDB 2.0:big improvements to the small molecule pathway database[J]. Nucleic Acids Research,2014,42:D478-D484.

[13]
王永超. 日粮组成对奶公犊牛生长性能、营养物质消化代谢及肉品质的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2013.

WANG Y C. Effects of diet composition on growth performance,nutrient digestibilities and metabolism,and meat quality of dairy bull calves[D]. Master's Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2013. (in Chinese)

[14]
EL-NAGGAR K, EL-KASSAS S, ABDO S E, et al. Role of gamma-aminobutyric acid in regulating feed intake in commercial broilers reared under normal and heat stress conditions[J]. Journal of Thermal Biology, 2019,84:164-175.

[15]
JONAIDI H, ABBASSI L, YAGHOOBI M M, et al. The role of GABAergic system on the inhibitory effect of ghrelin on food intake in neonatal chicks[J]. Neuroscience Letters, 2012, 520(1):82-86.

DOI PMID

[16]
FATHI M, SAEEDYAN S, KAOOSI M. Gamma-amino butyric acid (GABA) supplementation alleviates dexamethasone treatment-induced oxidative stress and inflammation response in broiler chickens[J]. Stress, 2023, 26(1):2185861.

[17]
HAYAKAWA K, KIMURA M, KASAHA K, et al. Effect of a gamma-aminobutyric acid-enriched dairy product on the blood pressure of spontaneously hypertensive and normotensive Wistar-Kyoto rats[J]. The British Journal of Nutrition, 2004, 92(3):411-417.

[18]
KRUEGER-BURG D, PAPADOPOULOS T, BROSE N. Organizers of inhibitory synapses come of age[J]. Current Opinion in Neurobiology, 2017,45:66-77.

[19]
CRAIG A M, KANG Y H. Neurexin-neuroligin signaling in synapse development[J]. Current Opinion in Neurobiology, 2007, 17(1):43-52.

PMID

[20]
SÜDHOF T C. Towards an understanding of synapse formation[J]. Neuron, 2018, 100(2):276-293.

DOI PMID

[21]
GOMEZ-CASTRO F, ZAPPETTINI S, PRESSEY J C, et al. Convergence of adenosine and GABA signaling for synapse stabilization during development[J]. Science, 2021, 374(6568):eabk2055.

[22]
KWON W B, TOUCHETTE K J, SIMONGIOVANNI A, et al. 120 Effects of dietary leucine concentration on branched-chain amino acid metabolism in growing pigs[J]. Journal of Animal Science, 2019,97:65-66.

[23]
WILTAFSKY M K, PFAFFL M W, ROTH F X. The effects of branched-chain amino acid interactions on growth performance,blood metabolites,enzyme kinetics and transcriptomics in weaned pigs[J]. British Journal of Nutrition, 2010, 103(7):964-976.

[24]
LANE A N, FAN T W M. Regulation of mammalian nucleotide metabolism and biosynthesis[J]. Nucleic Acids Research, 2015, 43(4):2466-2485.

DOI PMID

[25]
GALIM E B, HRUSKA K, BIER D M, et al. Branched-chain amino acid nitrogen transfer to alamine in vivo in dogs.Direct isotopic determination with [15N] leucine[J]. The Journal of Clinical Investigation, 1980, 66(6):1295-1304.

[26]
HOLECEK M, SIMAN P, VODENICAROVOVA M, et al. Alterations in protein and amino acid metabolism in rats fed a branched-chain amino acid- or leucine-enriched diet during postprandial and postabsorptive states[J]. Nutrition & Metabolism, 2016,13:12.

[27]
DI BUONO M, WYKES L J, COLE D E C, et al. Regulation of sulfur amino acid metabolism in men in response to changes in sulfur amino acid intakes[J]. The Journal of Nutrition, 2003, 133(3):733-739.

[28]
李文泉. 日粮氨基酸对犊牛生长和健康的影响[J]. 畜牧兽医科学(电子版), 2020(22):10-11.

LI W Q. Effects of dietary amino acids on calf growth and health[J]. Animal Husbandry and Veterinary Science (Electronic Edition), 2020(22):10-11. (in Chinese)

[29]
PAN X H, XUE F G, NAN X M, et al. Illumina sequencing approach to characterize thiamine metabolism related bacteria and the impacts of thiamine supplementation on ruminal microbiota in dairy cows fed high-grain diets[J]. Frontiers in Microbiology, 2017,8:1818.

[30]
ASCHENBACH J R, ZEBELI Q, PATRA A K, et al. Symposium review:the importance of the ruminal epithelial barrier for a healthy and productive cow[J]. Journal of Dairy Science, 2019, 102(2):1866-1882.

[31]
王凤鸽. 黄芪甲苷对氨诱导的奶牛乳腺上皮细胞氧化应激和凋亡的缓解作用及其机制研究[D]. 博士学位论文. 长春: 吉林大学, 2019.

WANG F G. Protective effect and mechanism of astragaloside Ⅳ against oxidative stress and apoptosis induced by ammonia in bovine mammary epithelial cells[D]. Ph.D.Thesis. Changchun: Jilin University, 2019. (in Chinese)

[32]
高冠民. 高血氨对肝细胞损伤和凋亡机制的研究[D]. 博士学位论文. 郑州: 郑州大学, 2014.

GAO G M. Research on the mechanism of hepatocyte injury and apoptosis caused by hyper-ammonia[D]. Ph.D.Thesis. Zhengzhou: Zhengzhou University, 2014. (in Chinese)

[33]
KESHET R, SZLOSAREK P, CARRACEDO A, et al. Rewiring urea cycle metabolism in cancer to support anabolism[J]. Nature Reviews Cancer, 2018, 18(10):634-645.

[34]
BOTT A J, SHEN J L, TONELLI C, et al. Glutamine anabolism plays a critical role in pancreatic cancer by coupling carbon and nitrogen metabolism[J]. Cell Reports, 2019, 29(5):1287-1298.e6.

DOI PMID

[35]
ZHANG J Z, LI C, TANG X F, et al. Proteome changes in the small intestinal mucosa of broilers (Gallus gallus) induced by high concentrations of atmospheric ammonia[J]. Proteome Science, 2015,13:9.

[36]
LI T G, APTE U. Bile acid metabolism and signaling in cholestasis,inflammation,and cancer[J]. Advances in Pharmacology, 2015,74:263-302.

[37]
郭延生, 贾启鹏, 陶金忠. 基于GC-MS策略的奶牛热应激血液代谢组学研究[J]. 畜牧兽医学报, 2015, 46(8):1356-1362.

GUO Y S, JIA Q P, TAO J Z. Blood metabolomic studies of heat stress cow with GC-MS[J]. Acta Veterinaria et Zootechnica Sinica, 2015, 46(8):1356-1362. (in Chinese)

DOI

[38]
SCHAAP F G, TRAUNER M, JANSEN P L M. Bile acid receptors as targets for drug development[J]. Gastroenterology & Hepatology, 2014, 11(1):55-67.

[39]
JIA W, WEI M L, RAJANI C, et al. Targeting the alternative bile acid synthetic pathway for metabolic diseases[J]. Protein & Cell, 2021, 12(5):411-425.

[40]
SHIFFKA S J, KANE M A, SWAAN P W. Planar bile acids in health and disease[J]. Biochimica et Biophysica Acta:Biomembranes, 2017, 1859(11):2269-2276.

[41]
ISLAM K B M S, FUKIYA S, HAGIO M, et al. Bile acid is a host factor that regulates the composition of the cecal microbiota in rats[J]. Gastroenterology, 2011, 141(5):1773-1781.

DOI PMID

[42]
SHAPIRO H, KOLODZIEJCZYK A A, HALSTUCH D, et al. Bile acids in glucose metabolism in health and disease[J]. The Journal of Experimental Medicine, 2018, 215(2):383-396.

DOI PMID

[43]
DI CIAULA A, GARRUTI G, LUNARDI BACCETTO R, et al. Bile acid physiology[J]. Annals of Hepatology, 2017, 16(S1): S4-S14.

[44]
VÍTEK L, HALUZÍK M. The role of bile acids in metabolic regulation[J]. The Journal of Endocrinology, 2016, 228(3):R85-R96.

[45]
VAN NIEROP F S, SCHELTEMA M J, EGGINK H M, et al. Clinical relevance of the bile acid receptor TGR5 in metabolism[J]. The Lancet: Diabetes & Endocrinology, 2017, 5(3):224-233.

文章导航

/