研究论文

酮病奶牛血浆差异代谢物及其主要代谢通路分析

  • 马敏 , 1 ,
  • 沙萍 1, * ,
  • 马学虎 1 ,
  • 曹佩佩 1 ,
  • 杨文飞 2 ,
  • 马燕芬 , 1, **
展开
  • 1 宁夏大学动物科技学院,银川 750021
  • 2 宁夏新澳农牧有限公司,银川 750406
** 马燕芬,研究员,博士生导师,E-mail:

* 同等贡献作者

马 敏(1999—),女,甘肃庆阳人,硕士研究生,研究方向为动物营养调控与免疫。E-mail:

Copy editor: 武海龙

收稿日期: 2024-10-11

  网络出版日期: 2025-05-14

基金资助

宁夏反刍动物营养科技创新团队(2024CXTD008)

银川市奶牛高效健康养殖科研创新团队(2023CXTD32)

Analysis of Plasma Differential Metabolites and Their Major Metabolic Pathways of Ketosis Cows

  • MA Min , 1 ,
  • SHA Ping 1, * ,
  • MA Xuehu 1 ,
  • CAO Peipei 1 ,
  • YANG Wenfei 2 ,
  • MA Yanfen , 1, **
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Ningxia Xin'ao Agricultural and Animal Husbandry Co., Ltd., Yinchuan 750406, China
** professor, E-mail:

* Contributed equally

Received date: 2024-10-11

  Online published: 2025-05-14

摘要

本试验旨在筛选相同饲喂条件下健康奶牛和酮病奶牛血浆差异代谢物及相关代谢通路。试验选取体重为(641±53) kg、胎次为(2.13±1.12)胎且分娩日期相近的24头奶牛,用血酮仪测定血浆β-羟基丁酸(BHBA)含量,筛选出健康奶牛(BHBA含量≤1.0 mmol/L)和酮病奶牛(BHBA含量≥2.1 mmol/L)各6头,并采用非靶向代谢组学测序技术筛选健康奶牛和酮病奶牛血浆差异代谢物,对其代谢通路进行相关性分析。结果表明:健康奶牛和酮病奶牛血浆中共筛选出109个差异代谢物,在正离子和负离子模式下分别各筛选出61个和48个差异代谢物。其中,正离子模式下有脱氢乙二胺(dehydroevodiamine)、N-肉桂酰甘氨酸(N-cinnamoylglycine)、3-甲基巴豆酰甘氨酸(3-methylcrotonylglycine)等36个差异代谢物上调,苯甲酰乌头原碱(benzoylhypaconine)、L-丙氨酸(L-alanine)等25个差异代谢物下调;负离子模式下有3-羟基丁酸(3-hydroxybutanoic acid)等27个差异代谢物上调,伊马替尼(imatinib)等21个差异代谢物下调。与健康奶牛相比,酮病奶牛差异代谢物主要为生物碱类和脂类,主要富集在中心碳代谢、脂肪酸生物合成和不饱和脂肪酸生物合成通路上;其中,中心碳代谢通路显著下调(P<0.05),脂肪酸生物合成和不饱和脂肪酸生物合成通路显著上调(P<0.05)。综上所述,中心碳代谢途径的显著抑制以及脂肪酸生物合成途径的过度激活,这可能是奶牛酮病发病的重要代谢机制。

本文引用格式

马敏 , 沙萍 , 马学虎 , 曹佩佩 , 杨文飞 , 马燕芬 . 酮病奶牛血浆差异代谢物及其主要代谢通路分析[J]. 动物营养学报, 2025 , 37(5) : 3370 -3382 . DOI: 10.12418/CJAN2025.277

Abstract

The aim of this experiment was to screen the different metabolites and related metabolic pathways in plasma of healthy cows and ketosis cows under the same feeding conditions. Twenty-four cows with body weight of (641±53) kg, litter size of (2.13±1.12) and similar delivery dates were selected for the experiment, and their plasma β-hydroxybutyric acid (BHBA) contents were measured by blood ketone meter, and six cows each were screened for healthy cows (BHBA content<1.2 mmol/L) and ketosis cows (BHBA content≥1.2 mmol/L), and used non-targeted metabolomics sequencing technology to screen the plasma differential metabolites of healthy cows and ketosis cows, and analyzed the correlation of their metabolic pathways. The results showed as that a total of 109 different metabolites were screened in the plasma of healthy cows and ketosis cows, and 61 and 48 different metabolites were screened in positive and negative ion modes, respectively. In the positive ion mode, the N-cinnamoylglycine, 3-methylcrotonylglycine and 36 other differential metabolites were up-regulated, and the benzoylhypaconine, L-alanine and 25 other differential metabolites were down-regulated; in the negative ion mode, and the 3-hydroxybutanoic acid and 27 other differential metabolites were up-regulated, and the imatinib and 21 other differential metabolites were down-regulated. Compared with healthy cows, the differential metabolites of ketosis cows were mainly alkaloids and lipids, which were mainly enriched in central carbon metabolism, fatty acid biosynthesis and unsaturated fatty acid biosynthesis pathways; among them, the central carbon metabolism pathway was significantly down-regulated (P<0.05), and fatty acid biosynthesis and unsaturated fatty acid biosynthesis pathways were significantly up-regulated (P<0.05). In conclusion, the significant inhibition in central carbon metabolism and the overactivation in fatty acid synthesis may be an important metabolic mechanism of ketosis in dairy cows.

酮病是一种常见的奶牛产后代谢疾病,通常由产后能量负平衡引发的碳水化合物与脂肪代谢失调导致[1]。产后奶牛主要通过脂肪动员产生非酯化脂肪酸(non-esterified fatty acids,NEFA),经血液进入肝脏产生酮体β-羟基丁酸(β-hydroxybutyric acid,BHBA),并输送到血液循环的外周组织提供能量。若奶牛不能适应这种代谢变化,严重的脂肪动员将导致NEFA和BHBA在奶牛体内持续积累,最终导致奶牛酮病的发生[2]。奶牛发生酮病会严重影响产奶量,降低繁殖性能,诱发奶牛乳房炎、子宫炎和脂肪肝等疾病,严重时会被淘汰[3-4]。根据奶牛是否有明显临床症状及血浆中BHBA含量可分为临床酮病和亚临床酮病[5]。据不完全统计,我国奶牛产后临床酮病发病率为2%~20%,亚临床酮病发病率为10%~30%[6],亚临床酮病发病率较临床酮病高2倍多,部分牧场甚至达到60%~80%[7],严重制约我国奶业健康可持续发展。
代谢组学技术是阐明疾病病因和识别疾病诊断、检测和监测的生物标志物的有力工具[8],并有助于剖析反刍动物的复杂生物学机制[9-10]。近年来,代谢组学已被用于探索代谢物变化并用于奶牛相关疾病的诊断和生物标志物的预测[11]。李卓等[12]通过对酮病奶牛(ketosis cows,KC)血清进行代谢组学分析,筛选出了5种磷脂酰胆碱、4种胆固醇酯、2种鞘磷脂、2种溶血磷脂酰胆碱、2种甘油三酯和3种游离脂肪酸作为酮病奶牛的新型标志物。田甜等[13]通过对亚临床酮病奶牛肝脏脂质代谢组学分析了酮病对奶牛卵泡发育的影响,探寻出缓解奶牛酮病发病的生物标志物。因此,代谢组学技术对于探究生物标志物来缓解疾病发病具有重要作用。然而,参与奶牛酮病的代谢物尚不完全清楚,且仍然缺乏精准有效的预测酮病发病的生物标志物。基于此,本试验选择血浆BHBA含量≤1.0 mmol/L和血浆BHBA含量≥2.1 mmol/L的奶牛分别作为健康奶牛(healthy cows,HC)和酮病奶牛,通过测定奶牛的血浆代谢物来探究酮病奶牛血液中主要生物标志物及其代谢通路,以期为奶牛酮病的精准诊断和从饲粮营养角度进行有效干预提供理论基础和技术支撑。

1 材料与方法

1.1 试验动物筛选

试验选择宁夏某集约化牧场体重为(641±53) kg、胎次为(2.13±1.12)胎且分娩日期相近的24头奶牛,用血酮仪(Freestyle Optium Neo,雅培,美国)测定奶牛产后血浆BHBA含量,筛选出12头试验所用奶牛,分为健康奶牛(血浆BHBA含量≤1.0 mmol/L,n=6)和酮病奶牛(血浆BHBA含量≥2.1 mmol/L,n=6)[14],每组牛BHBA含量如表1所示。奶牛采用散栏式饲养,分别于每日(06:00、12:00、18:00)饲喂全混合日粮(total mixed rations,TMR),自由采食和饮水。试验阶段,患乳房炎、皱胃移位、子宫内膜炎和血乳等疾病奶牛均移除。
表1 健康奶牛和酮病奶牛血浆BHBA含量

Table 1 Plasma BHBA contents of healthy cows and ketosis cows mmol/L

项目
Items
奶牛编号Cow number 平均值
Mean
1 2 3 4 5 6
健康奶牛Healthy cows 0.7 1.0 0.7 0.9 0.8 0.6 0.8
酮病奶牛Ketosis cows 2.5 2.1 2.4 2.1 2.3 2.6 2.3

1.2 血液样品采集及处理

用含有抗凝剂的一次性真空采血管采集尾静脉血10 mL,室温静置30 min使其凝固,然后在4 ℃条件下3 000×g离心15 min,收集上层血浆分装至无菌冻存管内,并迅速置于-80 ℃冰箱保存备用,根据血浆BHBA含量每组选取6个血浆样本,共计12个样本,用于代谢组学分析。

1.3 试验方法

1.3.1 样品制备

将预先采集并保存在-80 ℃的血浆样品用于代谢物分析。在4 ℃条件下将血浆解冻,每个样品取100 μL,加入100 μL预冷超纯水和800 μL预冷的甲醇/乙腈(1∶1,V/V),涡旋混匀,冰水浴中超声提取60 min。然后-20 ℃孵育1 h沉淀蛋白,在4 ℃条件下16 000×g离心30 min,取上清液,上清液在高速真空离心机挥干。质谱检测加入100 μL乙腈-水溶液(1∶1,V/V)复溶,在4 ℃条件下16 000×g离心20 min,取上清液进样分析。

1.3.2 色谱分离及质谱采集

采用SHIMADZU-LC30超高效液相色谱系统(安捷伦科技有限公司)对进样器的样品进行色谱分离。采用电喷雾电离(electro spray ionization,ESI)对每例样品进行正离子和负离子模式检测,采用Q Exactive Plus质谱仪(赛默飞世尔科技有限公司)对超高效液相色谱系统分离后的样品进行分析。代谢物的提取、鉴定和定量分析由上海拜谱生物科技有限公司进行。

1.3.3 数据处理

使用KEGG和上海拜谱生物科技有限公司自建的代谢物标准品库和公共数据库来鉴定代谢物的结构。对所得到的数据进行处理,剔除组内缺失值>50%的离子峰,质量控制(quality control,QC)和总离子图(total ion chromatogram,TIC)比对各样本TIC重叠情况。处理后正离子和负离子峰采用SIMCA-P14.1(Umetrics公司,瑞典)软件进行模式识别,将数据采用单位方差缩放(unit variance scaling,UV)预处理,主成分分析(principal component analysis,PCA)和偏最小二乘判别分析(partial least squares-discrimination analysis,PLS-DA)。构建PLS-DA模型中的变量重要性投影(variable importance for the projection,VIP)评分,对数据进行t检验和变异倍数(fold change,FC)分析。差异代谢物筛选的默认标准为VIP>1,P<0.05且FC≥1.5或FC≤0.667。使用R语言将代谢组数据进行层次聚类分析,并使用MetaboAnalyst生物信息学网站进行KEGG代谢通路分析。

2 结果与分析

2.1 PCA

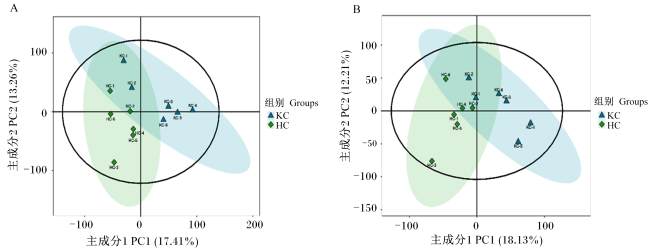
PCA是一种非监督的数据分析方法,可从整体上观察所有样本之间的总体分布趋势(图1)。通过对所有鉴定到的代谢物进行正离子和负离子模式下的PCA,发现在正离子模式下,主成分1(PC1)=11.41%,主成分2(PC2)=13.26%;在负离子模式下,PC1=18.13%,PC2=12.21%,组内各散点均紧密地聚集在一起,说明本试验质量控制很好,且健康奶牛和酮病奶牛血浆代谢物具有一定的离散趋势,可进行区分,表明健康奶牛和酮病奶牛分布情况良好,组间代谢物有明显差异,可用于后续数据分析。
图1 健康奶牛和酮病奶牛血浆样品PCA图

KC:酮病奶牛 ketosis cows;HC:健康奶牛 healthy cows。下图同 the same as below。

A:正离子模式下PCA图;B:负离子模式下PCA图。A: PCA diagram in positive ion mode; B: PCA diagram in negative ion mode.

Fig.1 PCA plots of serum samples of healthy cows and ketosis cows

2.2 PLS-DA

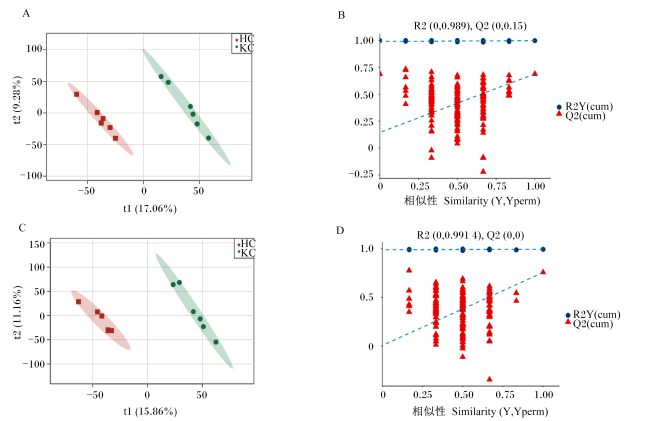
PLS-DA是一种有监督的判别分析统计方法,能更好地区分健康奶牛和酮病奶牛血浆样本代谢组差异,采用PLS-DA对样本进行聚类分析(图2),结果发现正离子模式下,R2Y=0.995,Q2=0.757;负离子模式下,R2Y=0.997,Q2=0.668。模型中R2Y均高于0.9,Q2均大于0.5,表明模型解释率高,预测能力较好。对正离子和负离子模式数据PLS-DA模型进行置换检验,发现在正离子模式下,置换检验参数为R2=(0,0.991 4),Q2=(0,0.0);在负离子模式下,置换检验参数为R2=(0,0.989 0),Q2=(0,0.15),表明健康奶牛和酮病奶牛的血浆代谢谱有明显差异,可用于后续数据分析。
图2 健康奶牛和酮病奶牛血浆样品PLS-DA得分散点图及PLS-DA置换检验图

A:正离子模式下PLS-DA得分散点图;B:正离子模式下PLS-DA置换检验图:C:负离子模式下PLS-DA得分散点图;D:负离子模式下PLS-DA置换检验图。R2Y表示模型解释率,Q2表示模型预测能力。

Fig.2 Scatter plot of PLS-DA score and plot of PLS-DA replacement test for serum samples of healthy cows and ketosis cows

A: scatter plot of PLS-DA scores in positive ion mode; B: plot of PLS-DA replacement test in positive ion mode: C: scatter plot of PLS-DA scores in negative ion mode; D: plot of PLS-DA replacement test in negative ion mode. R2Y represents the model explanation rate; Q2 represents the model predictive power.

2.3 差异代谢产物筛选

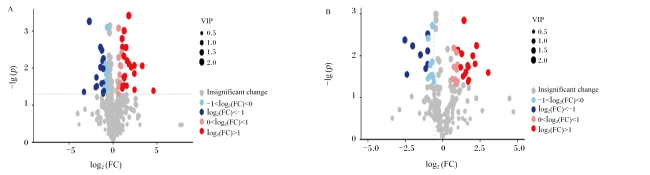
本试验以VIP>1,FC>1.5或FC<0.667,且P<0.05作为显著性差异代谢物筛选标准,对正离子和负离子模式下检测到的所有代谢物进行差异分析,采用火山图对所有筛选出的差异代谢物进行可视化展示(图3),发现健康奶牛和酮病奶牛在正离子模式筛选出61个显著差异代谢物,其中有36个上调、25个下调。在负离子模式下筛选出48个显著差异代谢物,其中有27个上调、21个下调。综上所述,健康奶牛和酮病奶牛血中筛选出的109个差异代谢物的变化可能是导致奶牛发生酮病的主要原因。
图3 健康奶牛和酮病奶牛差异代谢物火山图

VIP:变量重要性投影 variable importance for the projection;FC:变异倍数 fold change;p:PP-value;insignificant change:无显著。下图同 the same as below。

A:正离子模式下差异代谢物火山图;B:负离子模式下差异代谢物火山图。A: volcano plot of differential metabolites in positive ion mode; B: volcano plot of differential metabolites in negative ion mode.

Fig.3 Volcano plot of differential metabolites of healthy cows and ketosis cows

2.4 差异代谢物层次聚类分析

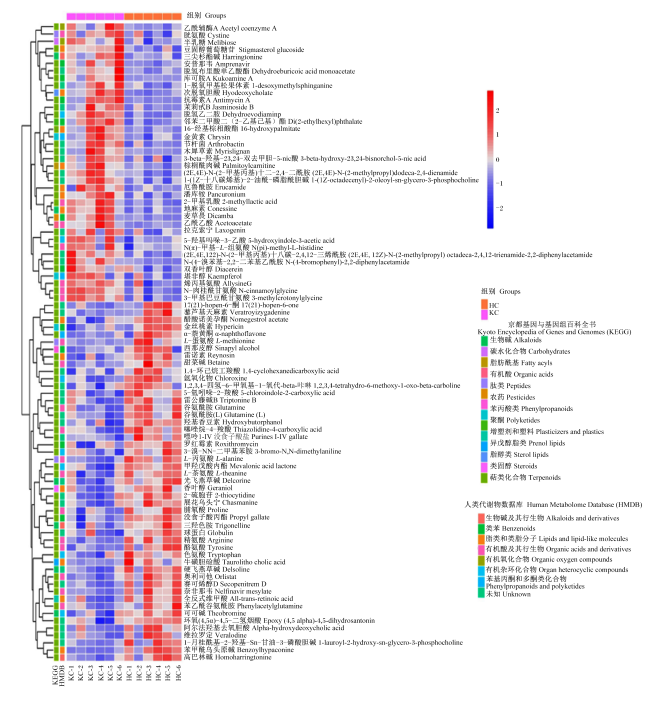
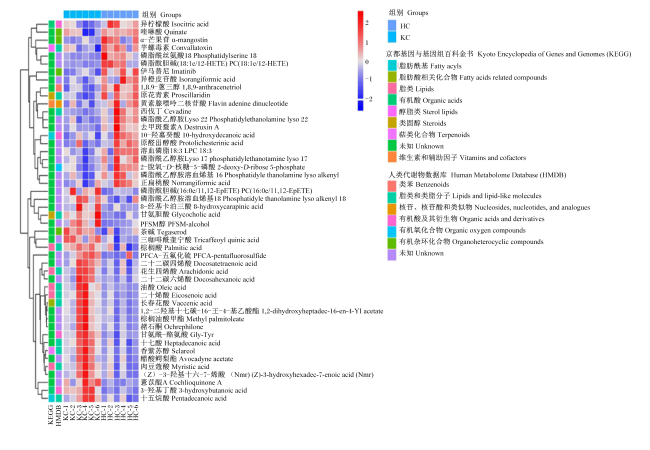
为了更全面直观地显示样本之间的关系、评价候选代谢物的合理性和代谢物在不同样本中的表达模式差异,利用定性的显著性差异代谢物的表达量对健康奶牛和酮病奶牛样本进行层次聚类分析,结果发现健康奶牛和酮病奶牛血浆代谢物之间存在显著差异,正离子模式下(图4),酮病奶牛血浆中半乳糖(melibiose)、豆固醇葡萄糖苷(stigmasterol glucoside)和3-甲基巴豆酰甘氨酸(3-methyicrotonylglycine)等表达量显著高于健康奶牛,色氨酸(tryptophan)、甜菜碱(betaine)和罗红霉素(roxithromycin)等表达量显著低于健康奶牛;负离子模式下(图5),酮病奶牛血浆中十七酸(heptadecanoic acid)、茶碱(tegaserod)、二十二碳四烯酸(docosatetraenoic acid)等表达量显著高于健康奶牛,异柠檬酸(lsocitric acid)、异橙皮苷酸(lsorangiformic acid)和磷脂酰乙醇胺溶血烯基16(phosphatidylethanolamine lyso alkenyl 16)表达量显著低于健康奶牛。上述结果表明,显著上调或显著下调的差异代谢物可能是判定奶牛酮病发病的重要血浆差异标志物。
图4 健康奶牛和酮病奶牛差异代谢物层次聚类图(正离子模式)

Fig.4 Hierarchical clustering map of differential metabolites of healthy cows and ketosis cows (positive ion mode)

图5 健康奶牛和酮病奶牛差异代谢物层次聚类图(负离子模式)

Fig.5 Hierarchical clustering map of differential metabolites of healthy cows and ketosis cows (negative ion mode)

2.5 差异代谢物分类

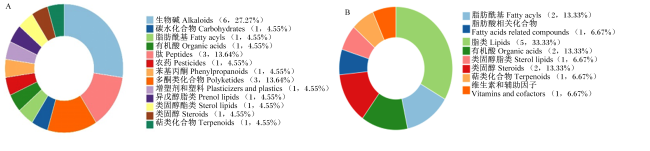
以KEGG数据库作为参考,根据代谢物的结构与功能,对健康奶牛和酮病奶牛血浆差异代谢物进行分类统计。结果显示正离子模式下差异代谢物数量组多的是生物碱类(图6-A),负离子模式下差异代谢物最多的是脂类(图6-B)。以上结果表明,奶牛发生酮病会导致血中生物碱类和脂质类代谢物数量发生显著变化。
图6 健康奶牛和酮病奶牛差异代谢物分类环图

A:正离子模式下差异代谢物分类环图;B:负离子模式下差异代谢物分类环图。

Fig.6 Classification ring diagram of differential metabolites of healthy cows and ketosis cows

A: classification ring diagram of differential metabolites in positive ion mode; B: classification ring diagram of differential metabolites in negative ion mode.

2.6 差异代谢物重要性分析

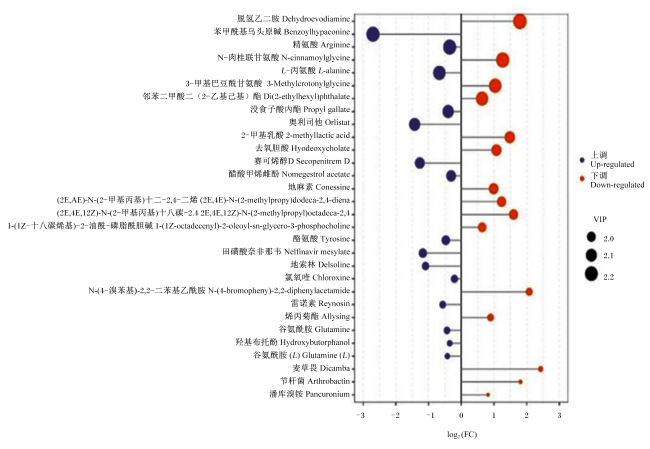
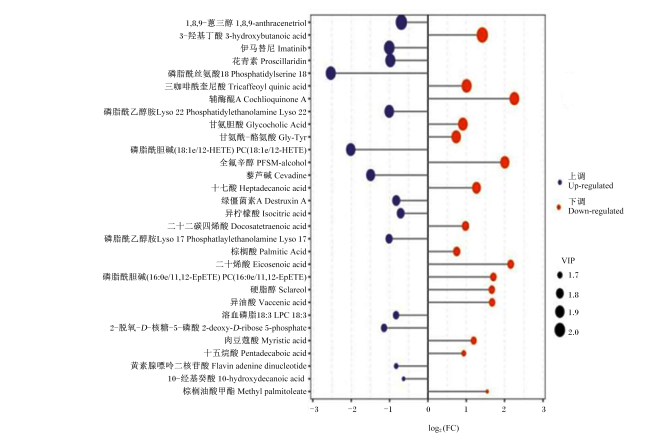
为了深度挖掘导致奶牛发生酮病的主要差异代谢物,对健康奶牛和酮病奶牛代谢物进行了重要性分析,分别筛选出了正离子模式下和负离子模式下排名前30的差异代谢物(图7图8),选择VIP>2的16个代谢物作为重要差异代谢物,如表2所示,脱氢乙二胺(dehydroevodiamine)、N-肉桂酰甘氨酸(N-cinnamoylglycine)、3-甲基巴豆酰甘氨酸(3-methylcrotonylglycine)等10个代谢物显著上调(P<0.05),苯甲酰乌头原碱(benzoylhypaconine)、L-丙氨酸(L-alanine)等6个代谢物显著下调(P<0.05),以上差异代谢物是影响奶牛发生酮病的重要代谢物。
图7 健康奶牛和酮病奶牛差异代谢物柱状图(正离子模式)

Fig.7 Histogram of differential metabolites of healthy cows and ketosis cows (positive ion mode)

图8 健康奶牛和酮病奶牛差异代谢物柱状图(负离子模式)

Fig.8 Histogram of differential metabolites of healthy cows and ketosis cows (negative ion mode)

表2 健康奶牛和酮病奶牛差异代谢物及其相关参数

Table 2 Differential metabolites and their related parameters of healthy cows and ketosis cows

代谢物
Metabolite
差异倍数
FC
P
P-value
变量重要性投影
VIP
趋势
Trend
脱氢乙二胺Dehydroevodiamine 3.466 <0.001 2.248 上调
苯甲酰乌头原碱Benzoylhypaconine 0.154 0.001 2.231 下调
N-肉桂酰甘氨酸N-cinnamoylglycine 2.405 0.001 2.227 上调
L-丙氨酸L-alanine 0.628 0.001 2.187 下调
3-甲基巴豆酰甘氨酸3-methylcrotonylglycine 2.053 0.002 2.182 上调
邻苯二甲酸二(2-乙基己基)酯Di(2-ethylhexyl)phthalate 1.554 0.001 2.172 上调
奥利司他Orlistat 0.372 0.003 2.115 下调
2-甲基乳酸2-methyllactic acid 2.798 0.003 2.073 上调
去氧胆酸盐Hyodeoxycholate 2.106 0.003 2.058 上调
赛可肽D Secopenitrem D 0.415 0.003 2.052 下调
甾体生物碱Conessine 1.984 0.004 2.040 上调
(2E,4E)-N-(2-甲基丙基)十二-2,4-二酰胺
(2E,4E)-N-(2-methylpropyl)dodeca-2,4-dienamide
2.350 0.005 2.017 上调
(2E,4E,12Z)-N-(2-甲基丙基)十八碳-2,4,12-三烯酰胺
(2E,4E,12Z)-N-(2-methylpropyl)octadeca-2,4,12-trienamide
3.026 0.006 2.015 上调
1,8,9-蒽三醇1,8,9-anthracenetriol 0.619 0.002 2.099 下调
3-羟基丁酸3-hydroxybutanoic acid 2.674 0.001 2.086 上调
伊马替尼Imatinib 0.498 0.003 2.017 下调

2.7 差异代谢物KEGG通路分析

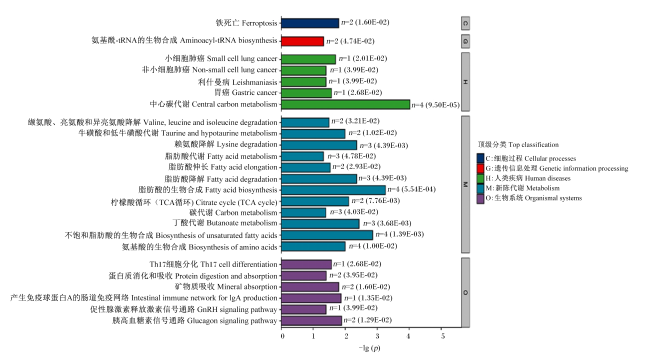
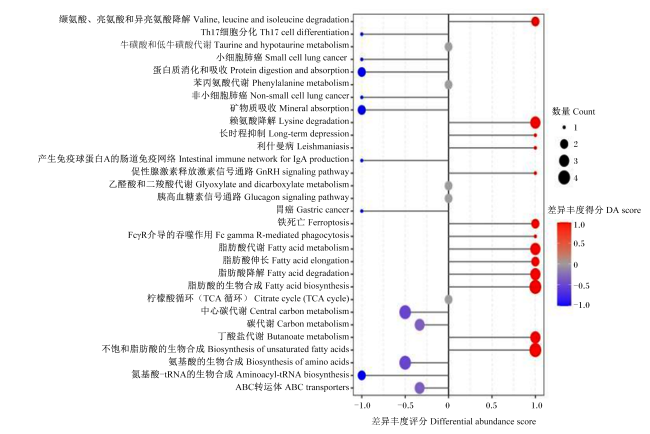
为了系统研究健康奶牛和酮病奶牛代谢变化,对健康奶牛和酮病奶牛血中差异代谢物进行KEGG富集通路分析,并利用差异代谢物丰度对代谢通路进行KEGG富集通路差异丰度得分(differential abundance score,DA score)分析。KEGG富集通路分析结果如图9所示,健康奶牛和酮病奶牛差异代谢物主要富集在中心碳代谢(central carbon metabolism)、脂肪酸生物合成(fatty acid biosynthesis)和不饱和脂肪酸生物合成(biosynthesis of unsaturated fatty acids)通路。KEGG富集通路差异丰度得分分析结果如图10所示,富集在中心碳代谢通路上的代谢物呈下调趋势,富集在脂肪酸生物合成通路和不饱和脂肪酸生物合成通路上的代谢物呈上调趋势。
图9 健康奶牛和酮病奶牛差异代谢物KEGG富集通路柱状图

Fig.9 Histogram of KEGG enrichment pathway graph of differential metabolites of healthy cows and ketosis cows

图10 健康奶牛和酮病奶牛血中差异代谢物KEGG富集通路差异丰度得分图

Fig.10 Score plot of KEGG enrichment pathway differential abundance of differential metabolites of healthy cows and ketosis cows

3 讨论

3.1 中心碳代谢对奶牛酮病的影响

中心碳代谢是细胞生长和发育的主要能量来源,并为其他代谢活动提供前体,包括糖酵解、三羧酸循环、磷酸戊糖途径等[28-29]。糖酵解将葡萄糖等糖类分解为丙酮酸等中间产物,并产生少量能量,三羧酸循环进一步氧化这些中间产物,释放出更多能量并产生二氧化碳,磷酸戊糖途径则参与合成核苷酸等重要物质[30-32]。有研究发现,糖酵解途径被抑制会导致胰岛素信号通路受损,导致细胞对葡萄糖的摄取和利用能力下降[33]。胰岛素通过磷酸化胰岛素受体(insulin receptor,IR)、胰岛素受体底物(insulin receptor substrate,IRS)和磷脂酰肌醇-3-激酶(phosphatidylinositol-3-kinase,PI3K)信号通路在葡萄糖和脂质代谢中起关键作用[34]。肝脏对胰岛素非常敏感,在葡萄糖和脂质稳态方面起着至关重要的作用。肝脏中葡萄糖和脂质代谢失调是代谢性疾病发病的主要因素,这些代谢性疾病的主要特征是肝脏中过量脂质的积累,引起脂肪肝或肝脂肪变性[35]。本研究中,酮病奶牛的中心碳代谢通路呈显著下调趋势,其原因可能是产后奶牛能量需求增加,脂肪加速分解产生大量NEFA被转运至肝脏经β-氧化生成乙酰辅酶A,由于产后奶牛代谢紊乱,过多的乙酰辅酶A会转化为酮体,酮体在肝脏蓄积,不能被及时运输出肝脏,导致肝脏功能受损和线粒体功能受损,氧化磷酸化效率降低,糖代谢途径受到抑制,导致三羧酸循环受阻,使动物机体三磷酸腺苷(adenosine triphosphate,ATP)生成减少,细胞能量供应不足,进而导致乙酰辅酶A的积累,进一步加剧代谢紊乱和酮体的生成[36-37],最终诱发产后奶牛酮病发生。因此,生产中应通过提高产后奶牛中心碳代谢途径来缓解肝脏炎症,使糖代谢、脂代谢和激素水平处于稳态,进而满足奶牛产后能量需求,缓解奶牛酮病发生。

3.2 脂肪酸生物合成和不饱和脂肪酸生物合成对奶牛酮病的影响

脂肪酸是动物机体内重要的信号分子和能量来源,影响多种生理过程,包括炎症调节、氧化应激、细胞膜组成和信号传递[15-16],是脂质代谢的主要底物。脂肪酸在围产期诱导奶牛肝脂质代谢紊乱中起重要作用[17],在能量负平衡状态下,奶牛为维持能量供应会增强脂肪酸的合成[1]。然而,过度的脂肪酸合成可能会导致脂肪在肝脏等部位的异常蓄积,进而加重肝脏的代谢负担,增加奶牛酮病发生的风险。本研究发现,酮病奶牛血浆代谢物中的脂类物质含量明显高于健康奶牛,且酮病奶牛脂肪酸合成和不饱和脂肪酸合成通路显著上调,表明奶牛发生酮病与脂肪酸合成显著相关。肝脏从血浆中吸收的过量脂肪酸可以在肝细胞中代谢成酮体,从而诱导亚临床酮病或临床酮病[18]。田超等[19]研究发现,亚临床酮病奶牛血液中BHBA、NEFA、低密度脂蛋白胆固醇(low density lipoprotein cholesterol,LDL-C)、糖皮质激素(glucocorticosteroid,GC)、胰岛素(insulins,INS)含量升高,而葡萄糖(glucose,GLU)、高密度脂蛋白胆固醇(high density lipoprotein cholesterol,HDL-C)含量降低。亚临床酮病奶牛血液转录组结果发现,脂肪酸生物合成过程呈现正调控,且肝脏甘油三酯(triglyceride,TG)含量显著升高,血浆总胆固醇(total plasma cholesterol,TC)和游离胆固醇含量显著降低[20]。这与本研究酮病奶牛的脂肪酸合成途径呈现上调趋势的结果一致,进一步证明了脂肪酸生物合成在酮病奶牛发病中的重要性。
肝脏是重要的代谢器官,通过维持脂肪酸水平在机体脂肪酸合成和代谢中起着关键作用[21]。饱和脂肪酸是脂质的基本成分之一,其大量合成是引起机体TC、LDL-C和TG含量升高的主要原因[22]。奶牛在能量负平衡状态下,机体为维持能量供应会增强脂肪酸合成。已有研究表明,酮病奶牛脂质代谢紊乱会造成肝脏TG沉积和TC含量升高[23],当肝脏中大量TG不能运输出去时,会导致脂蛋白合成障碍,载脂蛋白缺乏或异常,导致肝脏TG沉积,影响肝脏功能,进而导致酮体积聚,导致奶牛酮病发生[24]。此外,激素调节失衡如胰岛素抵抗会影响相关酶活性,进而导致糖代谢紊乱,诱导奶牛酮病[25]。不饱和脂肪酸在维持细胞膜完整性和功能、调节细胞信号转导等方面发挥重要作用。与饱和脂肪酸相比,不饱和脂肪酸更容易被机体利用产生能量。在奶牛发生酮病时,不饱和脂肪酸如一些多不饱和脂肪酸具有抗炎和抗氧化特性,这些多不饱和脂肪酸合成变化与奶牛酮病引发的炎症反应和氧化应激相关联。此外,不饱和脂肪酸合成途径中的关键酶活性的改变也可能直接影响奶牛体内的代谢平衡,进而影响奶牛酮病发病进程。降低奶牛体循环中n-6不饱和脂肪酸/n-3不饱和脂肪酸的比例则可以有效抑制肝脏损伤[26-27],缓解奶牛酮病。但动物体内合成不饱和脂肪酸相对较少,大多数不饱和脂肪酸来源于饲粮,因此通过改变产后奶牛饲粮结构来提供充足的不饱和脂肪酸对缓解奶牛酮病发病具有积极作用。

4 结论

酮病奶牛和健康奶牛血浆中共筛选出109个差异代谢物。酮病奶牛血中差异代谢物主要为生物碱类和脂类,主要富集在中心碳代谢、脂肪酸生物合成和不饱和脂肪酸生物合成通路上。酮病奶牛中心碳代谢通路显著下调,脂肪酸生物合成和不饱和脂肪酸生物合成通路显著上调。综上所述,奶牛酮病的代谢特征主要表现为中心碳代谢途径的显著抑制以及脂肪酸生物合成途径的过度激活,这可能是酮病发病的重要代谢机制。
[1]
ZHANG G S, HAILEMARIAM D, DERVISHI E, et al. Dairy cows affected by ketosis show alterations in innate immunity and lipid and carbohydrate metabolism during the dry off period and postpartum[J]. Research in Veterinary Science, 2016,107:246-256.

[2]
GORDON J L, LEBLANC S J, DUFFIELD T F. Ketosis treatment in lactating dairy cattle[J]. Veterinary Clinics of North America:Food Animal Practice, 2013, 29(2):433-445.

[3]
YANG W, ZHANG B B, XU C, et al. Effects of ketosis in dairy cows on blood biochemical parameters,milk yield and composition,and digestive capacity[J]. Journal of Veterinary Research, 2019, 63(4):555-560.

[4]
ALEMU T W, SANTSCHI D E, CUE R I, et al. Reproductive performance of lactating dairy cows with elevated milk β-hydroxybutyrate levels during first 6 weeks of lactation[J]. Journal of Dairy Science, 2023, 106(7):5165-5181.

[5]
谢晓刚, 牛华锋, 李丹, 等. 临床上奶牛酮病的症状及分类[J]. 畜牧兽医科技信息, 2022(2):89-90.

XIE X G, NIU H F, LI D, et al. Clinical signs and classification of ketosis in dairy cows[J]. Chinese Journal of Animal Husbandry and Veterinary Medicine, 2022(2):89-90. (in Chinese)

[6]
闫明涛. 规模化奶牛场产后疾病的调查与分析[D]. 硕士学位论文. 泰安: 山东农业大学, 2022.

YAN M T. Investigation and analysis of postpartum diseases in large-scale dairy farms[D]. Master's Thesis. Tai'an: Shandong Agricultural University, 2022. (in Chinese)

[7]
孙睿, 白云龙, 宋玉锡, 等. 81家规模化牧场奶牛酮病、生产性能、疾病及淘汰情况调查分析[J]. 中国畜牧杂志, 2024, 60(7):337-344.

SUN R, BAI Y L, SONG Y X, et al. Survey and analysis of ketosis,performance,disease and culling of dairy cows in 81 large-scale farms[J]. Chinese Journal of Animal Science, 2024, 60(7):337-344. (in Chinese)

[8]
XIA J G, BROADHURST D I, WILSON M, et al. Translational biomarker discovery in clinical metabolomics:an introductory tutorial[J]. Metabolomics, 2013, 9(2):280-299.

[9]
SUN H Z, SHI K, WU X H, et al. Lactation-related metabolic mechanism investigated based on mammary gland metabolomics and 4 biofluids' metabolomics relationships in dairy cows[J]. BMC Genomics, 2017, 18(1):936.

[10]
GUO C Z, SUN D M, WANG X F, et al. A combined metabolomic and proteomic study revealed the difference in metabolite and protein expression profiles in ruminal tissue from goats fed hay or high-grain diets[J]. Frontiers in Physiology, 2019,10:66.

[11]
DERVISHI E, ZHANG G S, DUNN S M, et al. GC-MS metabolomics identifies metabolite alterations that precede subclinical mastitis in the blood of transition dairy cows[J]. Journal of Proteome Research, 2017, 16(2):433-446.

DOI PMID

[12]
李卓, 常仁旭, 孙旭东, 等. 基于HPLC-MS/MS技术的酮病奶牛血清脂质代谢物分析[J]. 中国兽医学报, 2024, 44(4):802-807.

LI Z, CHANG R X, SUN X D, et al. Analysis of serum lipid metabolites in ketotic dairy cows based on HPLC-MS/MS technology[J]. Chinese Journal of Veterinary Science, 2024, 44(4):802-807. (in Chinese)

[13]
田甜, 何基保, 李雯, 等. 亚临床酮病奶牛肝脏脂质代谢组学变化对卵泡发育的影响[J]. 中国兽医杂志, 2023, 59(7):6-16.

TIAN T, HE J B, LI W, et al. Effects of subclinical ketosis-induced liver lipid metabolic profiling changes on follicular development in dairy cows[J]. Chinese Journal of Veterinary Medicine, 2023, 59(7):6-16. (in Chinese)

[14]
MAHRT A, BURFEIND O, HEUWIESER W. Effects of time and sampling location on concentrations of β-hydroxybutyric acid in dairy cows[J]. Journal of Dairy Science, 2014, 97(1):291-298.

DOI PMID

[15]
ISHIHARA T, YOSHIDA M, ARITA M. Omega-3 fatty acid-derived mediators that control inflammation and tissue homeostasis[J]. International Immunology, 2019, 31(9):559-567.

DOI PMID

[16]
INNES J K, CALDER P C. Omega-6 fatty acids and inflammation[J]. Prostaglandins,Leukotrienes,and Essential Fatty Acids, 2018,132:41-48.

[17]
ZHU Y W, LIU G W, DU X L, et al. Expression patterns of hepatic genes involved in lipid metabolism in cows with subclinical or clinical ketosis[J]. Journal of Dairy Science, 2019, 102(2):1725-1735.

DOI PMID

[18]
HA S, KANG S, JEONG M, et al. Characteristics of Holstein cows predisposed to ketosis during the post-partum transition period[J]. Veterinary Medicine and Science, 2023, 9(1):307-314.

[19]
田超, 王雪莹, 邵琦, 等. 亚临床酮病对围产期奶牛生产性能和血液糖脂代谢指标的影响[J]. 饲料工业, 2021, 42(5):47-53.

TIAN C, WANG X Y, SHAO Q, et al. Effects of subclinical ketosis on production performance and blood glucose and lipid metabolism indexes of perinatal dairy cows[J]. Feed Industry, 2021, 42(5):47-53. (in Chinese)

[20]
ZHOU S D, CHEN M R, MENG M J, et al. Subclinical ketosis leads to lipid metabolism disorder by downregulating the expression of acetyl-coenzyme A acetyltransferase 2 in dairy cows[J]. Journal of Dairy Science, 2023, 106(12):9892-9909.

[21]
REMELY M, AUMUELLER E, MEROLD C, et al. Effects of short chain fatty acid producing bacteria on epigenetic regulation of FFAR3 in type 2 diabetes and obesity[J]. Gene, 2014, 537(1):85-92.

DOI PMID

[22]
YAN X, LI L N, LIU P, et al. Targeted metabolomics profiles serum fatty acids by HFD induced non-alcoholic fatty liver in mice based on GC-MS[J]. Journal of Pharmaceutical and Biomedical Analysis, 2022,211:114620.

[23]
ZHANG F J, LI D, WU Q, et al. Prepartum body conditions affect insulin signaling pathways in postpartum adipose tissues in transition dairy cows[J]. Journal of Animal Science and Biotechnology, 2019,10:38.

[24]
JIA H D, LI X B, LIU G W, et al. Perilipin 5 promotes hepatic steatosis in dairy cows through increasing lipid synthesis and decreasing very low density lipoprotein assembly[J]. Journal of Dairy Science, 2019, 102(1):833-845.

DOI PMID

[25]
ZHU Y W, LEI L, WANG X H, et al. Low abundance of insulin-induced gene 1 contributes to SREBP-1c processing and hepatic steatosis in dairy cows with severe fatty liver[J]. Journal of Dairy Science, 2023, 106(8):5626-5635.

DOI PMID

[26]
YAO Y, YAN L J, CHEN H, et al. Cyclocarya paliurus polysaccharides alleviate type 2 diabetic symptoms by modulating gut microbiota and short-chain fatty acids[J]. Phytomedicine, 2020,77:153268.

[27]
XIONG Y H, XU Y, YANG L, et al. Gas chromatography-mass spectrometry-based profiling of serum fatty acids in acetaminophen-induced liver injured rats[J]. Journal of Applied Toxicology, 2014, 34(2):149-157.

[28]
WANG X J, LIU R L, QU X J, et al. α-ketoglutarate-activated NF-κB signaling promotes compensatory glucose uptake and brain tumor development[J]. Molecular Cell, 2019, 76(1):148-162.

DOI PMID

[29]
LIU P S, WANG H P, LI X Y, et al. α-ketoglutarate orchestrates macrophage activation through metabolic and epigenetic reprogramming[J]. Nature Immunology, 2017, 18(9):985-994.

[30]
XIE M, YU Y, KANG R, et al. PKM2-dependent glycolysis promotes NLRP3 and AIM2 inflammasome activation[J]. Nature Communications, 2016,7:13280.

[31]
HAY N. Reprogramming glucose metabolism in cancer:can it be exploited for cancer therapy?[J]. Nature Reviews Cancer, 2016, 16(10):635-649.

[32]
URBA&#x0143;SKA K, ORZECHOWSKI A.Unappreciated role of LDHA and LDHB to control apoptosis and autophagy in tumor cells[J]. International Journal of Molecular Sciences, 2019, 20(9):2085.

[33]
LEE Y, FLUCKEY J D, CHAKRABORTY S, et al. Hyperglycemia-and hyperinsulinemia-induced insulin resistance causes alterations in cellular bioenergetics and activation of inflammatory signaling in lymphatic muscle[J]. The FASEB Journal, 2017, 31(7):2744-2759.

[34]
SALTIEL A R, KAHN C R. Insulin signalling and the regulation of glucose and lipid metabolism[J]. Nature, 2001, 414(6865):799-806.

[35]
LONARDO A, BALLESTRI S, MARCHESINI G, et al. Nonalcoholic fatty liver disease:a precursor of the metabolic syndrome[J]. Digestive and Liver Disease, 2015, 47(3):181-190.

[36]
DU X L, SHEN T Y, WANG H Y, et al. Adaptations of hepatic lipid metabolism and mitochondria in dairy cows with mild fatty liver[J]. Journal of Dairy Science, 2018, 101(10):9544-9558.

DOI PMID

[37]
VAN DER KOLK J H, GROSS J J, GERBER V, et al. Disturbed bovine mitochondrial lipid metabolism:a review[J]. Veterinary Quarterly, 2017, 37(1):262-273.

文章导航

/