综述

褐藻糖胶调控幼龄养殖动物生长与肠道健康的研究进展

  • 张世佳 , 1, 2 ,
  • 殷成港 1 ,
  • 王琤韡 2 ,
  • 蒋显仁 , 1, *
展开
  • 1 中国农业科学院饲料研究所,农业农村部饲料生物技术重点实验室,北京 100081
  • 2 江西科技师范大学生命科学学院,南昌 330013
*蒋显仁,研究员,硕士生导师,E-mail:

张世佳(1998—),女,河南驻马店人,硕士研究生,从事猪饲料与营养调控研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2024-11-14

  网络出版日期: 2025-06-12

基金资助

国家自然科学基金项目(32260850)

Research Progress of Fucoidan Regulation on Growth and Intestinal Health of Young Farming Animals

  • ZHANG Shijia , 1, 2 ,
  • YIN Chenggang 1 ,
  • WANG Chengwei 2 ,
  • JIANG Xianren , 1, *
Expand
  • 1 Key Laboratory of Feed Biotechnology of the Ministry of Agriculture and Rural Affairs, Institute of Feed Research, Chinese Academy of Agricultural Sciences, Beijing 100081, China
  • 2 College of Life Science, Jiangxi Science and Technology Normal University, Nanchang 330013, China
* professor, E-mail:

Received date: 2024-11-14

  Online published: 2025-06-12

摘要

幼龄养殖动物的生长发育、抗氧化能力、免疫力以及肠道健康对于提高养殖效率、降低生产损失以及保障动物福利具有重要的意义。褐藻糖胶作为一种具有生物活性的天然多糖化合物,近年来因其在促进生长、抗氧化、抗肿瘤、调节免疫及改善肠道菌群等方面展现出的潜力而备受关注,在养殖领域中具备了良好的应用前景。因此,本文综述了幼龄养殖动物所面临的应激挑战、褐藻糖胶的理化性质、生物学特性及其在调控幼龄养殖动物生长发育与肠道健康方面的研究进展,旨在为开发新型饲料添加剂提供参考,以期降低幼龄养殖动物肠道疾病发生率并提高其生长性能。

本文引用格式

张世佳 , 殷成港 , 王琤韡 , 蒋显仁 . 褐藻糖胶调控幼龄养殖动物生长与肠道健康的研究进展[J]. 动物营养学报, 2025 , 37(6) : 3585 -3594 . DOI: 10.12418/CJAN2025.295

Abstract

The growth and development, antioxidant capacity, immunity and intestinal health of young farming animals are of great significance for improving breeding efficiency, reducing production losses and ensuring animal welfare. Algin, as a natural polysaccharide compound with biological activity, has attracted much attention in recent years because of its potential in promoting growth, anti-oxidation, anti-tumor, regulating immunity and improving intestinal flora, and has a good application prospect in the field of culture. Therefore, this paper reviewed the stress challenges faced by young farming animals, the physicochemical properties and biological characteristics of fucotose gum, and the research progress in regulating the growth and development of young farming animals and intestinal health, aiming to provide references for the development of new feed additives, with a view to reducing the incidence of intestinal diseases and improving the growth performance of young farming animals.

幼龄养殖动物的生长发育阶段是其生命周期中至关重要的时期,此阶段的健康状况直接关系到成年后的生产力和整体健康。因此,幼龄养殖动物的健康和生长发育是决定养殖业成功的关键因素。幼龄养殖动物具有较高的基础代谢率和营养物质的需求,营养物质摄入和利用对后续生长潜力的发挥具有决定性影响[1-2]。营养物质不能满足动物的需要,可能导致免疫系统损伤,降低免疫力和抗病力,引发疾病。此外,幼龄养殖动物免疫系统尚未发育成熟,自身免疫力较低,易受环境因素影响而感染疾病,如在集约化饲养系统中饲养的仔猪周围的复杂环境可能直接影响它们的生产力[3]。在养殖业中,幼龄养殖动物的腹泻问题是一个重要的挑战,它不仅影响动物的生长发育和生产性能,还可能导致严重的经济损失。为了应对这一挑战曾广泛使用抗生素和高锌高铜进行预防[4],并依赖抗生素进行治疗。然而,为了解决抗生素过量使用和高锌高铜对环境的污染以及病原菌对抗生素的耐药性问题,国内外已颁布一系列饲料法规,禁止或限制在饲粮中添加抗生素和高锌高铜[5],并且积极探索新型的替代性饲料添加剂,以提高幼龄养殖动物的生长发育、免疫力及肠道健康。
我国拥有广阔的海洋领域和丰富的海藻资源,这为海洋养殖业的发展提供了巨大的空间。褐藻糖胶是一种天然多糖,广泛存在于多种海洋褐藻中。其主要成分是含硫酸基的褐藻糖,同时含有少量的半乳糖、甘露糖、木糖、阿拉伯糖和糖醛酸等单糖。褐藻糖胶并非单一化合物,而是一类具有不同化学组成的多糖家族。褐藻糖胶的生物活性因提取方法、结构、硫酸酯化以及分子质量不同而不同[6]。在这些因素中,分子质量是决定多糖生物活性的最重要因素之一。研究证明,低分子质量褐藻糖胶在体外和体内具有比高分子质量褐藻糖胶更好的生物活性[7]。有研究发现,在吸收与代谢过程中,褐藻糖胶在动物体内主要靶向肾脏和肝脏,其转运吸收过程受网格蛋白介导的内吞作用调控[8],并且褐藻糖胶能够刺激胆汁酸的分泌,参与脂质代谢和肠道菌群调控[9]。通过微生物发酵,褐藻糖胶可增加肠道中短链脂肪酸的含量,并调节肠道菌群的组成,从而维持肠道微生态平衡[10]。另一项研究中,通过对5种海藻筛选分离出的褐藻糖胶进行测定,结果显示其在超氧阴离子和羟基自由基清除活性方面表现出显著的抗氧化能力[11]。此外,褐藻糖胶也已被发现具有多种医学用途,包括抗菌[12]和免疫调节特性[13]。这些功能特性使褐藻糖胶成为一种备受期待的潜在饲料添加剂,为提高幼龄养殖动物健康水平、增加生产效益以及促进养殖业的可持续发展提供了新的希望和可能性(图1)。因此,本文综述了幼龄养殖动物应激反应、褐藻糖胶的生物学功能以及在促进幼龄养殖动物的生长发育和维护肠道健康方面的研究进展。
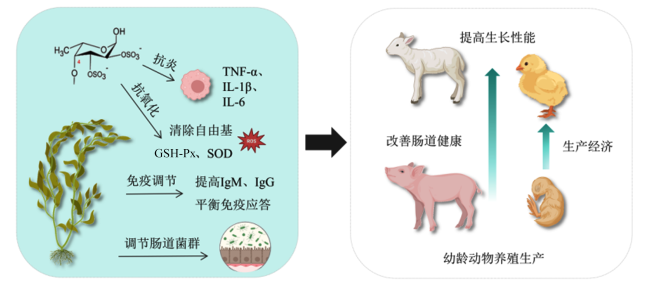
图1 褐藻糖胶在幼龄养殖动物上的应用潜力

TNF-α: 肿瘤坏死因子-α tumor necrosis factor-α;IL-1β: 白细胞介素-1β interleukin-1β;IL-6: 白细胞介素-6 interleukin-6;GSH-Px:谷胱甘肽过氧化物酶 glutathione peroxidase;SOD: 超氧化物歧化酶 superoxide dismutase;IgM: 免疫球蛋白M immunoglobulin M;IgG: 免疫球蛋白G immunoglobulin G。

Fig.1 Potential for application of fucoidan in young farming animals

1 幼龄养殖动物的应激反应

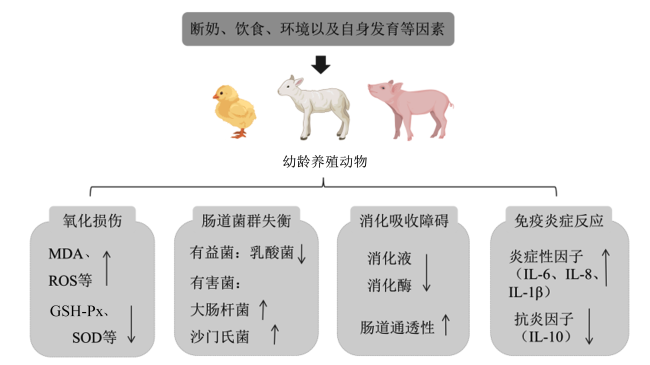
在动物生长发育的过程中,幼龄阶段是一个极为关键且脆弱的时期。早期断奶仔猪由于身体各项机能尚未完全成熟,对外部环境变化的适应能力相对较弱,因而在面临断奶、环境变化、营养不良及疾病感染等各种因素的刺激时容易产生应激反应(图2)。这些应激反应往往涉及多个方面,给仔猪的健康和成长带来诸多挑战[14]
图2 幼龄养殖动物的应激反应

MDA: 丙二醛 malondialdehyde;ROS: 活性氧 reactive oxygen species;GSH-Px:谷胱甘肽过氧化物酶 glutathione peroxidase;SOD: 超氧化物歧化酶 superoxide dismutase;IL-6: 白细胞介素-6 interleukin-6;IL-8: 白细胞介素-8 interleukin-8;IL-10: 白细胞介素-10 interleukin-10;IL-1β: 白细胞介素-1β interleukin-1β。

Fig.2 Stress response of young farming animals

首先,幼龄动物由于机体尚未完全发育成熟,在应激状态下,其体内氧化还原平衡极易被打破,活性氧(ROS)自由基的生成量显著增加,这些具有高活性的分子能够对细胞内的多种生物大分子进行攻击。研究显示,断奶仔猪体中脂多糖(LPS)暴露可以通过增加ROS的形成导致细胞内氧化应激,同时,脂质在ROS的作用下会发生过氧化反应,产生的脂质过氧化物引起细胞毒性,严重破坏细胞膜结构的完整性,进而干扰细胞正常的代谢途径与生理功能[15]。由于ROS水平升高时,会对线粒体内DNA、蛋白质及脂质分子造成损伤,从而使得线粒体功能受损,线粒体氧化应激时也会导致线粒体能量代谢失调,进一步导致线粒体损伤更为严重,从而引发各种疾病的发生,并阻碍断奶仔猪正常的生长进程[16]。在一项对感染瘟病毒(鼠疫)羔羊的研究中,发现受感染羔羊的血浆丙二醛(MDA)含量升高和红细胞谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)和超氧化物歧化酶(SOD)活性降低,这恰恰证实了羔羊在受到氧化应激时更易受到病毒的感染[17]。因此,采取有效的措施来减轻幼龄动物的氧化应激,对于促进其健康生长和提高免疫反应能力具有重要的意义。
其次,食物、环境改变带来的应激使幼龄动物肠道微环境会发生急剧变化,这种变化通常表现为有益菌的生长受到抑制,而有害菌则大量繁殖。肠道菌群失衡影响肠道正常生理运作,引发消化不良、腹泻等消化问题。研究显示,犊牛因外界因素诱发的应激反应会使瘤胃和肠道微生物呈现失衡状态,进而降低其抗病能力[18]。另有研究发现,在断奶时仔猪肠道微生物群还未完全稳定,突然发生的环境和食物转变通常使得仔猪易受到肠道菌群失调,并增加对肠道病原体的易感性,通过乳酸菌属和双歧杆菌属等益生菌的补饲可以减少仔猪肠道中沙门氏菌属和大肠杆菌等病原菌的定植[19]。同样,应激对消化系统也产生负面影响,会促使幼龄动物消化液分泌减少造成肠道的消化吸收能力降低。研究显示,通过对黄鳍金枪鱼幼鱼消化酶进行急性盐度应激试验时,发现其胃蛋白酶和胰蛋白酶活性显著降低,而α-淀粉酶活性呈先降低后升高的波动趋势,结果表明,过度的急性应激压力可能会对消化酶活性产生负面影响并降低幼鱼的消化率[20]
最后,应激状态能够激活幼龄动物的免疫系统,促使免疫细胞活化并释放大量的炎症因子,这一过程极有可能引发局部或全身的炎症反应。研究发现,热应激可能引发仔鸡发生炎症反应,并且严重降低了肉鸡的生长性能[21]。同时,其他应激源所导致的炎症反应以及上皮细胞之间紧密连接完整性的丧失,也可能促使幼龄动物肠道出现渗漏现象[22]。如热应激可能升高肉鸡血清皮质酮和炎性细胞因子水平,并破坏肠道完整性导致肠道对脂多糖(LPS)的通透性增加[23]。断奶应激反应影响仔猪的肠道屏障功能,引发炎症浸润,增加了腹泻的发病风险,而抗菌肽处理可以降低断奶后仔猪的腹泻指数、改善免疫反应、减轻肠道炎症和增强肠屏障功能[24]。Somagond等[25]研究发现,新生犊牛促炎细胞因子的总体平均水平显著升高,在出生0和3 d血浆中白细胞介素(IL)-4、IL-10水平显著降低,在生长过程中可能伴随着免疫反应的不稳定性。
综上所述,幼龄动物在应激状态下会表现出氧化损伤、肠道菌群失衡、消化与吸收障碍以及免疫炎症反应等多方面的不良后果,这些应激反应相互关联、相互影响,共同对幼龄动物的生长发育和健康状况构成严重威胁。然而,一些饲料添加剂和健康管理措施可用于改善肠道健康,以降低腹泻等疾病的发生率。因此,深入研究幼龄动物应激反应的机制,并采取有效的干预措施,对于保障幼龄动物的健康成长、提高动物生产效率及促进养殖业可持续发展具有重要的意义。

2 褐藻糖胶的生物学功能

2.1 抗炎作用

褐藻糖胶具有抗炎作用,可以抑制炎症因子的释放,从而减轻炎症反应。这种抗炎作用对于维持免疫系统的平衡至关重要。在LPS诱导小鼠炎症模型中,褐藻糖胶表现出了降低小鼠骨髓来源的树突状细胞中的TNF-α和IL-1β水平的作用[26]。主要原因是能够抑制炎症细胞的活化,减少炎症介质的产生。褐藻糖胶还能够抑制和减少细胞因子的产生,并降低TNF-α、IL-1β、IL-6等促炎因子的水平,从而改善小鼠结肠炎症的症状[27]。另有研究发现,通过对糖尿病大鼠分别灌洗不同剂量的褐藻糖胶,结果发现褐藻糖胶减轻了促炎细胞因子的积累,值得注意的是其还能够修复肠道屏障功能,伴随着紧密连接蛋白的上调和通过抑制Toll样受体4(TLR4)-核转录因子-κB(NF-κB)信号通路来改善肠道炎症损伤,从而调节葡萄糖代谢[28]。褐藻糖胶的抗炎作用还可能对炎症相关疾病的治疗有益,如关节炎、炎症性肠病等[29]。褐藻糖胶还可通过NF-κB配体激活受体强力抑制破骨细胞分化的关键转录因子,从而加强对骨质稳态的影响[30]。在人视网膜色素上皮细胞炎症模型中,褐藻糖胶通过下调NF-κB/丝裂原活化蛋白激酶(MAPK)信号通路,并降低IL-6、IL-1βIL-8 mRNA表达以及细胞因子IL-6、TNF-α和IL-8的产生,从而起到抗炎作用[31]。总而言之,褐藻糖胶是通过多途径发挥抗炎作用,具有调节免疫细胞、抑制炎症介质产生、抗氧化和调节炎症信号通路等作用。然而,由于褐藻糖胶的结构多样,其抗炎活性与分子质量、硫酸化程度、分支结构等因素有关,结构与活性也是未来研究的关键。

2.2 抗氧化作用

褐藻糖胶是一种具有显著抗氧化特性的天然物质,抗氧化机制主要通过清除自由基和抑制脂质过氧化来实现。抗氧化活性是褐藻糖胶及其寡糖的重要特性之一。褐藻糖胶能够以浓度和时间依赖性的方式清除过氧化酶底物和超氧阴离子自由基。在体外试验中,褐藻糖胶通过清除Vero细胞内ROS并抑制细胞凋亡,从而提高细胞活力,保护细胞免受2,2-偶氮二(2-甲基丙基咪)盐酸盐(AAPH)诱导的氧化损伤[32]。在体内试验中,发现给予糖尿病大鼠食用不同剂量的褐藻糖胶提取物,结果显示,血清和组织中的氧化损伤显著降低而抗氧化酶活性增加[33]。补充褐藻糖胶能够有效降低小鼠血清中ROS和MDA含量,并提高GSH-Px和SOD活性,同时增强机体三磷酸腺苷(ATP)生产能力,促使心脏组织中线粒体呼吸链复合物的水平得以恢复,来防止阿霉素诱导的心脏毒性[34]。在诱导高脂饮食小鼠模型中,褐藻糖胶可降低小鼠肝脏脂肪变性水平[肝脏大小、总胆固醇(TC)、甘油三酯(TG)含量以及脂质过氧化]并增加白色脂肪组织脂蛋白脂酶(LPL)活性,从而缓解小鼠血脂与动脉异常的作用[35]。结合体内、体外试验,证实褐藻糖胶能够提高机体的抗氧化防御能力,减少氧化损伤,这表明褐藻糖胶及所含寡糖作为天然抗氧化剂具有潜在的应用价值。尽管褐藻糖胶的抗氧化功能已经得到广泛认可,但其抗氧化机制的研究仍在进行中。目前,正在探索褐藻糖胶的结构和抗氧化活性之间的关系,以期更好地理解其抗氧化机制。

2.3 免疫调节作用

褐藻糖胶是一种具有多种免疫调节性质的生物活性物质。主要包括在以下几个方面:1)褐藻糖胶能够增强免疫细胞的活性,包括树突状细胞(DC)、自然杀伤(NK)细胞和T淋巴细胞[36],这种增强的免疫细胞活性有助于提高动物的抵抗力,从而增加对病原体的抵抗力;2)褐藻糖胶能够调节动物免疫系统的应答,以平衡免疫应答过程,这种调节作用有助于减少过度炎症反应,降低免疫系统异常激活的风险,例如在诱导皮下移植S180小鼠模型中,褐藻糖胶可以通过激活免疫细胞(T细胞)的功能,升高血清Th1细胞因子、IL-2、干扰素(IFN-γ)和TNF-α水平,增强单核吞噬系统的吞噬功能,刺激分子CD86在骨髓来源的CD11c DCs上的表面表达,进而实现抗肿瘤的免疫反应[37];3)褐藻糖胶可以抑制炎症因子的释放,从而减轻炎症反应,这种抗炎作用对于维持免疫系统的平衡至关重要,例如在LPS诱导动物炎症模型中,褐藻糖胶降低动物巨噬细胞中的TNF-α和IL-1β水平[38]。此外,褐藻糖胶还通过增强T细胞受体(TCR)介导的信号传导,并与非受体酪氨酸激酶(JAK)-信号转导子和转录激活子(STAT)通路合作以刺激T细胞活化,进而来实现程序性死亡受体-1(PD-1)抗体的抗肿瘤活性[39]。上述信号通路的激活可促进细胞因子和趋化因子的产生,从而增强免疫反应。更重要的是褐藻糖胶的免疫调节作用不仅限于抗肿瘤活性,还显示出对自身免疫性疾病和炎症性疾病的潜在治疗价值,通过调节免疫细胞的功能来减轻炎症反应,为开发新的治疗策略提供了新的可能性。

2.4 抗肿瘤作用

褐藻糖胶具有多种抗肿瘤性质,其抗肿瘤作用主要体现在以下几个方面:1)褐藻糖胶可以抑制肿瘤细胞的生长,包括细胞增殖和分化,研究表明,褐藻糖胶可以通过调节磷脂酰肌醇3激酶(PI3K)/蛋白激酶B(AKT)/哺乳动物雷帕霉素靶蛋白(mTOR)等多个信号通路来抑制肿瘤细胞的增殖[40];2)褐藻糖胶可以诱导肿瘤细胞凋亡,使肿瘤细胞自行死亡,这一作用与褐藻糖胶调节凋亡相关基因表达有关,例如在一项针对人胃腺癌细胞的试验中,研究发现,经褐藻糖胶处理后,细胞微管相关蛋白轻链3(LC3)-Ⅰ向LC3-Ⅱ的转化以及苄氯素1的积累均有所增加。此外,细胞凋亡与抗凋亡B淋巴细胞瘤-2(Bcl-2)基因和B 细胞淋巴瘤-额外长型蛋白(Bcl-xL)蛋白的表达下调,线粒体膜电位丧失,半胱天冬酶的激活以及伴随的多聚腺苷核糖聚合酶蛋白的降解也被观察到,这些结果证实了褐藻糖胶通过诱导自噬和细胞凋亡,有效地抑制了人类胃腺癌细胞的生长[41];3)褐藻糖胶可以抑制肿瘤血管生成,降低肿瘤的供血,使肿瘤细胞缺乏氧气和营养,可以通过抑制血管内皮生长因子(VEGF)等的表达来实现抑制人卵巢癌的发展[42];4)褐藻糖胶可以增强宿主免疫系统对肿瘤的识别和清除能力。它可以增加NK细胞的活性,提高T细胞的抗肿瘤效应[36]。综上所述,褐藻糖胶具有显著的抗肿瘤效果,能够调控肿瘤细胞周期,诱导肿瘤细胞凋亡,抑制肿瘤细胞转移和肿瘤血管生成,为褐藻糖胶在肿瘤治疗中的应用提供了重要的理论依据。

2.5 肠道菌群调节作用

褐藻糖胶是一种已被证实具有抗菌活性的多糖,对于抵抗各种病原菌的侵害具有重要作用。褐藻糖胶可通过干预幽门螺旋杆菌的黏附减少由该菌诱导的炎症(如IL-6和TNF-α),从而保护胃免受感染,而不会产生耐药性[43]。此外,褐藻糖胶还能有效抑制金黄色葡萄球菌(Staphylococcus aureus)、单核增生乳杆菌(Lactobacillus monocytogenes)、副溶血性弧菌(Vibrio parahaemolyticus)和鼠伤寒沙门氏菌(Salmonella typhimurium)等其他多种病原菌的黏附,这些病原菌在人结肠上皮细胞上的黏附试验中,都表现出了被褐藻糖胶有效抑制的现象[44]。褐藻糖胶还可以增强或刺激宿主免疫系统对细菌的识别和清除能力。例如,它可以增加白细胞的活性,从而有助于清除感染[45]。褐藻糖胶还能够通过促进DC的成熟和功能的发挥来激活肠道免疫细胞。此外,褐藻糖胶与抗生素等药物联合使用时可以减轻药物引起的肠道菌群紊乱和肠道炎症[46]。需要指出的是,褐藻糖胶的来源、分子结构、分子质量和硫酸化程度的不同,对其抗菌效果也有影响。其中,硫酸化程度可能是影响褐藻糖胶抗菌活性的主要参数之一[47]。总的来说,褐藻糖胶通过生物亲和吸附和靶向清除病原菌,可以降低细菌在宿主细胞表面的黏附能力,从而减少感染的机会,同时也通过增强肠道黏液层和改善肠道上皮细胞的完整性来保护肠道屏障功能,并对肠道菌群进行调节,展现了其在维护和改善肠道健康中的潜力。

3 褐藻糖胶在幼龄养殖动物生产中的应用

3.1 在仔猪上的应用

在幼龄养殖动物生产中,尤其是仔猪养殖上,褐藻糖胶已显示出显著的抗炎、抗氧化和免疫调节作用。本实验室前期研究发现,在低断奶重仔猪的饲粮中添加300 mg/kg的褐藻糖胶,可通过调节仔猪肝脏中的Kelch样环氧氯丙烷相关蛋白1(Keap1)/核因子E2相关因子2(Nrf2)信号通路以及线粒体功能,增强仔猪肝脏的抗氧化能力,保护肝脏免受氧化应激损伤,进而提高仔猪抵抗断奶应激的能力[48]。Walsh等[49]研究表明,在断奶仔猪饲粮中添加240 mg/kg褐藻糖胶可改善仔猪的肠道形态,降低肠黏膜炎症反应和腹泻率。具体来说,褐藻糖胶的添加提高了仔猪肠道绒毛的高度,以及绒毛高度与隐窝深度的比值,此外,还增加了仔猪盲肠中异丁酸的浓度,从而促进断奶仔猪肠道健康。研究显示,肠杆菌科是一类在肠道中常见的细菌,其中一些成员可能会引起肠道疾病,特别是在动物断奶后的一段时间内,这时动物的肠道微生物群落可能会发生显著的变化,增加了腹泻等肠道疾病的风险[50]。Wang等[51]研究发现,在饲粮中添加200和400 mg/kg源自海带的褐藻糖胶,可显著提高断奶仔猪粪便淀粉酶活性,并有效调节血清中的氨基酸含量,这些发现提示源自海带的褐藻糖胶不仅改善断奶仔猪的消化功能,还通过调节氨基酸的代谢,进一步提高断奶仔猪生长性能。Rattigan等[52]发现,250 mg/kg褐藻糖胶可改善粪便黏稠度,并增加仔猪结肠中总挥发性脂肪酸和丙酸盐的浓度。另一项研究显示,在仔猪饲粮中添加褐藻糖胶可以显著增加仔猪粪便中乳酸菌的数量[53]。乳酸菌是一类在肠道中常见的有益菌,可以通过产生乳酸等物质来抑制有害菌的生长,从而维持肠道微生物群落的平衡,保护肠道健康。尽管褐藻糖胶对仔猪生长性能的报道现如今较少,但其对肠道健康的积极影响可能有助于防止肠道疾病的发生。然而,这一发现仍需要进一步的研究来验证,以确定褐藻糖胶在实际生产中的最佳使用剂量和方式,以及对不同种类和生产阶段仔猪的效果。

3.2 在仔鸡上的应用

褐藻糖胶作为一种潜在的饲料添加剂,已显示出对仔鸡生长性能和肠道健康的积极影响,主要表现在饲粮中添加褐藻糖胶可提高肉鸡的平均日增重和降低料重比,表明其对促进幼龄养殖动物生长有积极作用。研究发现,在孵化后仔鸡饲粮中补充250 mg/kg富含褐藻糖胶的海带多糖可以提高仔鸡的生长速度和饲料利用效率,并且通过调节肠道形态和免疫应答改善仔鸡肠道健康[54]。此外,褐藻糖胶可提高肠道紧密连接蛋白的表达,从而提高肠道屏障功能。另有研究发现,褐藻糖胶通过阻止病毒进入Vero细胞并抑制其F蛋白支持的NDV细胞-细胞融合过程,进而降低雏鸡胚胎病毒mRNA的表达来实现抗病毒[55]。从以上的研究结果可以看出,褐藻糖胶在提高仔鸡的生长性能、改善肠道形态以及提高肠道屏障功能等方面效果较理想,但是目前其对雏鸡在生产上的研究还有限,未来仍需进一步探索。

3.3 在羔羊上的应用

有研究显示,饲粮中添加褐藻糖胶可通过提高羔羊的肠道绒毛高度和降低隐窝深度,改善肠道形态,有助于提高营养吸收能力。Yang等[56-57]通过60只2月龄的断奶羔羊作为试验对象进行研究,结果揭示,基础饲粮中补充 0.3%和0.5%褐藻糖胶可以提高羔羊的生长性能,此外,褐藻糖胶还可以提高羔羊血清中的抗氧化酶活性和免疫球蛋白含量,降低促炎细胞因子的含量,进一步研究发现,褐藻糖胶能够提高羔羊肠道相关抗氧化酶活性、分泌性免疫球蛋白A(sIgA)含量以及紧密连接蛋白表达。这些发现进一步证实了褐藻糖胶对羔羊肠道健康的积极影响。褐藻糖胶还可以调整肠道菌群结构,降低肠道有害菌的丰度,提高肠道有益菌的丰度。Guo等[58]通过对褐藻糖胶在断奶羔羊腹泻率和大肠屏障功能的影响进行研究,发现褐藻糖胶能够增强断奶羔羊结肠的抗氧化和免疫功能,有效降低腹泻率,从而缓解断奶应激。上述研究结果证实,褐藻糖胶在提高断奶羔羊的生长性能、抗氧化能力、免疫功能,改善肠道形态以及调整肠道菌群结构等方面具有显著的效果。

3.4 在犊牛上的应用

在现有的研究中,褐藻糖胶在犊牛养殖生产中的应用尚未被报道。然而,一些研究已经开始探索在断奶前犊牛牛奶中加入3种不同的干海藻的可行性。饲喂补充干海藻的牛奶会增加断奶前犊牛先天免疫反应相关变量的血浆含量,主要表现在犊牛血浆纤维蛋白原和血清淀粉样蛋白A含量显著升高[59]。此外,Islam等[60]的研究发现,在母牛分娩前2个月直至犊牛断奶这个时间段补充发酵海藻副产物可以增加哺乳犊牛断奶体重、平均日增重和血清中IgG的含量。这些结果提示发酵海藻副产物对犊牛的生长和免疫系统有积极的影响。综上所述,海藻对犊牛具有一定的益处。然而,以上研究使用的干海藻是未经过进一步加工处理的,其营养价值可能难以在犊牛上体现。相比之下,褐藻糖胶是经过加工处理具有多种生物活性的物质,可能会在加工处理后体现出其价值。因此,褐藻糖胶的应用潜力值得进一步深入研究。

3.5 在其他幼龄养殖动物上的应用

褐藻糖胶在水产养殖动物的生长、健康和抵抗病原体方面同样具有重要作用。在幼年尖吻鲈鱼的饲料中补充10 g/kg的褐藻糖胶时,尖吻鲈鱼的生长速度可以被显著提高,包括体长、体重和肌纤维面积的肥厚增加[61]。此外,褐藻糖胶对南美白对虾生长性能的研究发现,褐藻糖胶不仅可以改善南美白对虾的生长、免疫学和生化参数,还可以增强其对白斑综合征病毒(WSSV)的抗性[62]。在水产养殖动物卵形幼年鲤鱼的研究中,褐藻寡糖的添加显著提高了幼鱼的生长性能、抗氧化能力和免疫功能。这些发现也都揭示了褐藻糖胶在幼龄水产养殖动物生长、健康和抵抗病原体方面的重要作用[63];同时,也提供了一种新的、有效的方法以提高水产养殖动物的抵抗病原体的能力,最终使其更有益于幼龄水产养殖动物的生长。

4 小结与展望

褐藻糖胶能够通过调节免疫系统增强免疫力,并通过提高肠道消化酶活性促进营养成分的分解与吸收,从而维护肠道健康并改善生长性能,为提升幼龄养殖动物的整体健康和生产效益提供了重要支持。尽管褐藻糖胶的研究已取得一定进展,但仍面临挑战,其结构中的硫酸基团含量、多糖骨架的连接方式及分子质量等复杂因素显著影响了其生物活性。因此,后续研究应围绕以下2个方面开展研究:1)聚焦褐藻糖胶结构与功能的关联探究,提高褐藻糖胶的提取效率,增强生物活性;2)针对养殖环境和动物生理特征的差异性,深入研究褐藻糖胶对不同品种畜禽不同生长阶段的最适添加剂量及作用机制。通过进一步探索和开发褐藻糖胶的多种生物活性及其具体作用机制,为畜禽养殖业的可持续发展提供科学依据。
[1]
SADOWSKA J, GEBCZYŃSKI A K, KONARZEWSKI M. Larger guts and faster growth in mice selected for high basal metabolic rate[J]. Biology Letters, 2021, 17(10):20210244.

[2]
孙澜. 冷应激对仔猪肠道菌群和机体代谢的影响[D]. 硕士学位论文. 广州: 华南农业大学, 2020.

SUN L. Effects of cold stress on intestinal flora and metabolism of piglets[D]. Master’s Thesis. Guangzhou: South China Agricultural University, 2020.(in Chinese)

[3]
RAMIREZ B C, HAYES M D, CONDOTTA I C F S, et al. Impact of housing environment and management on pre-/post-weaning piglet productivity[J]. Journal of Animal Science, 2022, 100(6):skac142.

[4]
ZHANG Q, WU T, LI S Y, et al. Protective effect of zinc oxide and its association with neutrophil degranulation in piglets infected with porcine epidemic diarrhea virus[J]. Oxidative Medicine and Cellular Longevity, 2021,2021:3055810.

[5]
EIBL C, BEXIGA R, VIORA L, et al. The antibiotic treatment of calf diarrhea in four European countries: a survey[J]. Antibiotics-Basel, 2021, 10(8):910.

[6]
MENSAH E O, KANWUGU O N, PANDA P K, et al. Marine fucoidans: structural, extraction, biological activities and their applications in the food industry[J]. Food Hydrocolloids, 2023,142:108784.

[7]
KRYLOVA N V, SILCHENKO A S, POTT A B, et al. In vitro anti-orthohantavirus activity of the high-and low-molecular-weight fractions of fucoidan from the brown alga Fucus evanescens[J]. Marine Drugs, 2021, 19(10):577.

[8]
BAI X, ZHANG E, HU B, et al. Study on absorption mechanism and tissue distribution of fucoidan[J]. Molecules, 2020, 25(5):1087.

[9]
XUE M L, LIANG H, ZHOU Z T, et al. Effect of fucoidan on ethanol-induced liver injury and steatosis in mice and the underlying mechanism[J]. Food & Nutrition Research, 2021,65:65.

[10]
LIU A A, ZHANG Y H, LI W H, et al. Fucoidan ameliorated dextran sulfate sodium-induced ulcerative colitis by modulating gut microbiota and bile acid metabolism[J]. Journal of Agricultural and Food Chemistry, 2022, 70(47):14864-14876.

DOI PMID

[11]
LIM S J, WAN AIDA W M, MASKAT M Y, et al. Isolation and antioxidant capacity of fucoidan from selected Malaysian seaweeds[J]. Food Hydrocolloids, 2014,42, Part 2:280-288.

[12]
VLADKOVA T G, STANEVA A D, AVRAMOVA I A, et al. Fucoidan-containing,low-adhesive siloxane coatings for medical applications:inhibition of bacterial growth and biofilm development[J]. Materials, 2023, 16(10):3651.

[13]
PRADHAN B, NAYAK R, PATRA S, et al. A state-of-the-art review on fucoidan as an antiviral agent to combat viral infections[J]. Carbohydrate Polymers, 2022,291:119551.

[14]
MEDLAND J E, POHL C S, EDWARDS L L, et al. Early life adversity in piglets induces long-term upregulation of the enteric cholinergic nervous system and heightened, sex-specific secretomotor neuron responses[J]. Neurogastroenterology and Motility, 2016, 28(9):1317-1329.

DOI PMID

[15]
ZHOU Y X, HU X F, ZHONG S W, et al. Effects of continuous LPS induction on oxidative stress and liver injury in weaned piglets[J]. Veterinary Sciences, 2022, 10(1):22.

[16]
李慧敏. 4-萜品醇对氧化应激断奶仔猪生长性能及肠道损伤的调节作用[D]. 硕士学位论文. 扬州: 扬州大学, 2023.

LI H M. The regulatory effects of 4-terpenol on growth performance and intestinal damage of weaned piglets with oxidative stress[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2023.(in Chinese)

[17]
ASLAN O, GENCAY G, APAYDIN N. The evaluation of oxidative stress in lambs with pestivirus infection[J]. Journal of the Hellenic Veterinary Medical Society, 2018, 68(3):299-306.

[18]
YANG H C, REN J M, JI P, et al. Investigating the regulatory effect of Shen Qi Bu Qi powder on the gastrointestinal flora and serum metabolites in calves[J]. Frontiers in Cellular and Infection Microbiology, 2024,14:1443712.

[19]
CONNELL K R, MILLER P S, BURKEY T E, et al. PSVI-13 identifying probiotic bacteria to reduce pathogen colonization in nursery pigs[J]. Journal of Animal Science, 2022, 100(2):160.

[20]
ZHANG N, YANG R, FU Z, et al. Mechanisms of digestive enzyme response to acute salinity stress in juvenile yellowfin tuna (Thunnus albacares)[J]. ANIMALS, 2023, 13(22):3454.

[21]
NIU Z Y, LIU F Z, YAN Q L, et al. Effects of different levels of vitamin E on growth performance and immune responses of broilers under heat stress[J]. Poultry Science, 2009, 88(10):2101-2107.

DOI PMID

[22]
DUCATELLE R, GOOSSENS E, EECKHAUT V, et al. Poultry gut health and beyond[J]. Animal Nutrition, 2023,13:240-248.

[23]
ALHENAKY A, ABDELQADER A, ABUAJAMIEH M, et al. The effect of heat stress on intestinal integrity and Salmonella invasion in broiler birds[J]. Journal of Thermal Biology, 2017, 70(Pt B):9-14.

[24]
FENG J S, WANG L, XIE Y S, et al. Effects of antimicrobial peptide cathelicidin-BF on diarrhea controlling, immune responses, intestinal inflammation and intestinal barrier function in piglets with postweaning diarrhea[J]. International Immunopharmacology, 2020,85:106658.

[25]
SOMAGOND Y M, ALHUSSIEN M N, DANG A K. Repeated injection of multivitamins and multiminerals during the transition period enhances immune response by suppressing inflammation and oxidative stress in cows and their calves[J]. Frontiers in Immunology, 2023,14:1059956.

[26]
ZHANG W, LEE P C W, JIN J O. Anti-inflammatory effect of fucoidan from costaria costata inhibited lipopolysaccharide-induced inflammation in mice[J]. Marine Drugs, 2024, 22(9):401.

[27]
AHMAD T, ISHAQ M, KARPINIEC S, et al. Oral macrocystis pyrifera fucoidan administration exhibits anti-inflammatory and antioxidant properties and improves DSS-induced colitis in C57BL/6J mice[J]. Pharmaceutics, 2022, 14(11):2383.

[28]
LIU Y P, XU Z, HUANG H Y, et al. Fucoidan ameliorates glucose metabolism by the improvement of intestinal barrier and inflammatory damage in type 2 diabetic rats[J]. International Journal of Biological Macromolecules, 2022,201:616-629.

[29]
AHMAD T, ISHAQ M, EAPEN M, et al. Fucoidan as an inhibitor of pro-inflammatory cytokines:potential candidate for treating inflammatory-related conditions[J]. The FASEB Journal, 2022, 36(1):7837.

[30]
PARK B, YU S N, KIM S H, et al. Inhibitory effect of biotransformed-fucoidan on the differentiation of osteoclasts induced by receptor for activation of nuclear factor-κB ligand[J]. Journal of Microbiology and Biotechnology, 2022, 32(8):1017-1025.

DOI PMID

[31]
LEE S, LEE E J, LEE G M, et al. Inhibitory effect of fucoidan on TNF-α-induced inflammation in human retinal pigment epithelium cells[J]. Frontiers in Nutrition, 2023,10:1162934.

[32]
WANG L, JAYAWARDENA T U, HYUN J, et al. Antioxidant and anti-photoaging effects of a fucoidan isolated from turbinaria ornata[J]. International Journal of Biological Macromolecules, 2023,225:1021-1027.

[33]
LOAYZA-GUTIÉRREZ L T, APUMAYTA-SUÁREZ E V, ABDALA R, et al. Anti-hyperglycemic and antioxidant effect of fucoidan extract from Lessonia trabeculata in alloxan-induced diabetes rats[J]. Journal of Applied Phycology, 2022, 34(6):3247-3261.

[34]
JI Y T, JIN D K, QI J Y, et al. Fucoidan protects against doxorubicin-induced cardiotoxicity by reducing oxidative stress and preventing mitochondrial function injury[J]. International Journal of Molecular Sciences, 2022, 23(18):10685.

[35]
YOKOTA T, NOMURA K, NAGASHIMA M, et al. Fucoidan alleviates high-fat diet-induced dyslipidemia and atherosclerosis in ApoE(shl) mice deficient in apolipoprotein E expression[J]. The Journal of Nutritional Biochemistry, 2016,32:46-54.

[36]
ZHANG W, ODA T, YU Q, et al. Fucoidan from Macrocystis pyrifera has powerful immune-modulatory effects compared to three other fucoidans[J]. Marine Drugs, 2015, 13(3):1084-1104.

[37]
LI Q, WANG X, WAN Y, et al. In vivo immunomodulatory activity of fucoidan from brown alga undaria pinnatifida in sarcoma 180-bearing mice[J]. Journal of Functional Foods, 2023,103:105486.

[38]
JEONG J W, HWANG S J, HAN M H, et al. Fucoidan inhibits lipopolysaccharide-induced inflammatory responses in RAW 264.7 macrophages and zebrafish larvae[J]. Molecular & Cellular Toxicology, 2017, 13(4):405-417.

[39]
YANG J, YANG X Z, PAN W F, et al. Fucoidan-supplemented diet potentiates immune checkpoint blockage by enhancing antitumor immunity[J]. Frontiers in Cell and Developmental Biology, 2021,9:733246.

[40]
JUN P S, YA T C, YUAN B C, et al. Impacts of oxidative stress and PI3K/AKT/mTOR on metabolism and the future direction of investigating fucoidan-modulated metabolism[J]. Antioxidants, 2022, 11(5):911.

[41]
PARK H S, KIM G Y, NAM T J, et al. Antiproliferative activity of fucoidan was associated with the induction of apoptosis and autophagy in AGS human gastric cancer cells[J]. Journal of Food Science, 2011, 76(3):T77-T83.

[42]
BAE H, LEE J Y, YANG C, et al. Fucoidan derived from fucus vesiculosus inhibits the development of human ovarian cancer via the disturbance of calcium homeostasis, endoplasmic reticulum stress, and angiogenesis[J]. Marine Drugs, 2020, 18(1):45.

[43]
CHEN B R, LI W M, LI T L, et al. Fucoidan from Sargassum hemiphyllum inhibits infection and inflammation of Helicobacter pylori[J]. Scientific Reports, 2022, 12(1):429.

[44]
SUN X N, AI C Q, WEN C R, et al. Inhibitory effects of fucoidan from Laminaria japonica against some pathogenic bacteria and SARS-CoV-2 depend on its large molecular weight[J]. International Journal of Biological Macromolecules, 2023,229:413-421.

[45]
ZHOU M, DING Y, CAI L, et al. Low molecular weight fucoidan attenuates experimental abdominal aortic aneurysm through interfering the leukocyte-endothelial cells interaction[J]. Molecular Medicine Reports, 2018, 17(5):7089-7096.

DOI PMID

[46]
RAJESHKUMAR S. Phytochemical constituents of fucoidan (Padina tetrastromatica) and its assisted AgNPs for enhanced antibacterial activity[J]. IET Nanobiotechnology, 2017, 11(3):292-299.

[47]
AYRAPETYAN O N, OBLUCHINSKAYA E D, ZHURISHKINA E V, et al. Antibacterial properties of fucoidans from the brown algae Fucus vesiculosus L. of the Barents Sea[J]. Biology, 2021, 10(1):67.

[48]
YIN C G, BI Q Y, CHEN W N, et al. Fucoidan supplementation improves antioxidant capacity via regulating the Keap1/Nrf2 signaling pathway and mitochondrial function in low-weaning weight piglets[J]. Antioxidants, 2024, 13(4):407.

[49]
WALSH A M, SWEENEY T, O’SHEA C J, et al. Effect of dietary laminarin and fucoidan on selected microbiota, intestinal morphology and immune status of the newly weaned pig[J]. British Journal of Nutrition, 2013, 110(9):1630-1638.

[50]
MELIN L, MATTSSON S, KATOULI M, et al. Development of post-weaning diarrhoea in piglets. Relation to presence of Escherichia coli strains and rotavirus[J]. Journal of Veterinary Medicine, 2004, 51(1):12-22.

[51]
WANG C, CHEN W, XU Y, et al. Laminaria japonica polysaccharides improves the growth performance and faecal digestive enzyme activity of weaned piglets[J]. Veterinary Sciences, 2023, 11(1):11.

[52]
RATTIGAN R, SWEENEY T, VIGORS S, et al. The effect of increasing inclusion levels of a fucoidan-rich extract derived from ascophyllum nodosum on growth performance and aspects of intestinal health of pigs post-weaning[J]. Marine Drugs, 2019, 17(12):680.

[53]
MCDONNELL P, FIGAT S, O’DOHERTY J V. The effect of dietary laminarin and fucoidan in the diet of the weanling piglet on performance, selected faecal microbial populations and volatile fatty acid concentrations[J]. Animal, 2010, 4(4):579-585.

DOI PMID

[54]
SWEENEY T, MEREDITH H, VIGORS S, et al. Extracts of laminarin and laminarin/fucoidan from the marine macroalgal species Laminaria digitata improved growth rate and intestinal structure in young chicks, but does not influence Campylobacter jejuni colonisation[J]. Animal Feed Science and Technology, 2017,232:71-79.

[55]
TREJO-AVILA L M, ELIZONDO-GONZALEZ R, RODRIGUEZ-SANTILLAN P, et al. Innocuity and anti-Newcastle-virus-activity of Cladosiphon okamuranus fucoidan in chicken embryos[J]. Poultry Science, 2016, 95(12):2795-2802.

[56]
YANG W G, CHEN J Y, GUO G Z, et al. The effects of fucoidan dietary supplementation on growth performance, serum antioxidant capacity, immune function indices and intestinal morphology in weaned kids[J]. Animals, 2022, 12(5):574.

[57]
YANG W G, GUO G Z, CHEN J Y, et al. Effects of dietary fucoidan supplementation on serum biochemical parameters, small intestinal barrier function, and cecal microbiota of weaned goat kids[J]. ANIMALS, 2022, 12(12):1591.

[58]
GUO G Z, YANG W G, FAN C J, et al. The effects of fucoidan as a dairy substitute on diarrhea rate and intestinal barrier function of the large intestine in weaned lambs[J]. Frontiers in Veterinary Science, 2022,9:1007346.

[59]
SAMARASINGHE M B, SEHESTED J, WEISBJERG M R, et al. Milk supplemented with dried seaweed affects the systemic innate immune response in preweaning dairy calves[J]. Journal of Dairy Science, 2021, 104(3):3575-3584.

DOI PMID

[60]
ISLAM M M, AHMED S T, MUN H S, et al. Effect of fermented seaweed by-product supplementation on reproduction of hanwoo cows and growth and immunity of their calves[J]. Animal Production Science, 2016, 56(11):1828-1833.

[61]
TULLER J, SANTIS C D, JERRY D R. Dietary influence of fucoidan supplementation on growth of Lates calcarifer (Bloch)[J]. Aquaculture Research, 2014, 45(4):749-754.

[62]
SIVAGNANAVELMURUGAN M, THADDAEUS B J, PALAVESAM A, et al. Dietary effect of Sargassum wightii fucoidan to enhance growth, prophenoloxidase gene expression of Penaeus monodon and immune resistance to Vibrio parahaemolyticus[J]. Fish & Shellfish Immunology, 2014, 39(2):439-449.

[63]
LI F, SUN H, MEI J, et al. Fucoidan changes lipid accumulation in the liver of common carp(Cyprinus carpio)by modulating lipid and glucose metabolism[J]. Frontiers in Marine Science, 2024,11:1415341.

文章导航

/