研究论文

酶解豆粕替代鱼粉对大口黑鲈幼鱼生长、脂质代谢及肝脏抗氧化能力的影响

  • 窦世龙 , 1, 2 ,
  • 徐异桓 , 1, 2, * ,
  • 张丽晗 1, 2 ,
  • 郭冉 , 1, 2, *
展开
  • 1 河北农业大学海洋学院,秦皇岛 066000
  • 2 河北省水产养殖营养调控与病害防治重点实验室,秦皇岛 066000
*徐异桓,讲师,硕士生导师,E-mail: ;
郭冉,教授,博士生导师,E-mail:

窦世龙(2000—),男,山东临沂人,硕士研究生,从事水产动物营养与饲料研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-11-07

  网络出版日期: 2025-06-12

基金资助

河北农业大学引进人才科研专项(YJ2021032)

河北农业大学引进人才科研专项(YJ20022001)

河北省教育厅科学研究项目(BJK2024012)

教育部产学研协同育人项目(230801414084216)

教育部产学研协同育人项目(230804631080459)

Effects of Enzymatic Hydrolyzed Soybean Meal Replacing Fish Meal on Growth, Lipid Metabolism and Liver Antioxidant Capacity of Juvenile Largemouth Bass (Micropterus salmoides)

  • DOU Shilong , 1, 2 ,
  • XU Yihuan , 1, 2, * ,
  • ZHANG Lihan 1, 2 ,
  • GUO Ran , 1, 2, *
Expand
  • 1 Ocean College, Hebei Agricultural University, Qinhuangdao 066000, China
  • 2 Key Laboratory of Nutritional Regulation and Disease Control in Aquaculture of Hebei Province, Qinhuangdao 066000, China
* XU Yihuan, lecturer, E-mail: ;
GUO Ran, professor, E-mail:

Received date: 2024-11-07

  Online published: 2025-06-12

摘要

本研究旨在评估酶解豆粕替代鱼粉对大口黑鲈生长性能、脂质代谢及肝脏抗氧化能力的影响。选择300尾初始体重为(14.02±0.05) g的大口黑鲈幼鱼,随机分为5个组,每组3个重复,每个重复20尾。对照组(T0组)饲喂以鱼粉作为蛋白质源的基础饲料,4个试验组分别饲喂添加8%(T8组)、16%(T16组)、24%(T24组)、32%(T32组)酶解豆粕替代基础饲料中部分鱼粉的试验饲料,进行56 d的养殖试验。结果表明:1)T24组和T32组的终末体重、增重率(WGR)和特定生长率(SGR)显著低于T0组和T16组(P<0.05)。T16组、T24组和T32组的肝体比(HSI)显著低于T0组(P<0.05)。2)T8组、T16组、T24组和T32组的血清甘油三酯(TG)、总胆固醇(TC)和低密度脂蛋白胆固醇(LDL-C)含量显著低于T0组(P<0.05),血清高密度脂蛋白胆固醇(HDL-C)含量显著高于T0组(P<0.05)。3)T24组、T32组的肝脏脂质合成相关基因脂肪酸合成酶(FAS)、乙酰辅酶A羧化酶1(ACC1)、脂肪酸结合蛋白(FABP)以及脂质合成相关转录因子过氧化物酶体增生物激活受体γ1(PPARγ1)、固醇调节元件结合蛋白(SREBP)的mRNA相对表达水平显著高于T0组(P<0.05),脂质分解相关基因激素敏感脂肪酶(HSL)、脂蛋白脂酶(LPL)以及脂质分解相关转录因子过氧化物酶体增殖激活受体α(PPARα)的mRNA相对表达水平显著高于T0组(P<0.05)。由此可见,酶解豆粕部分替代鱼粉可以上调大口黑鲈肝脏脂质合成和分解相关基因的表达,从而减少肝脏脂质的累积,对脂质代谢产生影响,提高肝脏的抗氧化能力。

本文引用格式

窦世龙 , 徐异桓 , 张丽晗 , 郭冉 . 酶解豆粕替代鱼粉对大口黑鲈幼鱼生长、脂质代谢及肝脏抗氧化能力的影响[J]. 动物营养学报, 2025 , 37(6) : 3966 -3978 . DOI: 10.12418/CJAN2025.325

Abstract

This study aims to evaluate the effects of enzymatic hydrolyzed soybean meal replacing fish meal on growth, lipid metabolism and liver antioxidant capacity of juvenile largemouth bass (Micropterus salmoides). A total of 300 juvenile largemouth bass with initial body weight of (14.02±0.05) g were randomly divided into 5 groups with 3 replicates per group and 20 fish per replicate. The control group (T0 group) was fed a basal diet with fish meal as protein source, the 4 experimental groups were fed the experimental diets which supplemented with 8% (T8 group), 16% (T16 group), 24% (T24 group) and 32% (T32 group) enzymatic hydrolyzed soybean meal replacing some fish meal in the basic diet, conducted a 56 days breeding experiment. The results showed as follows: 1) the final body weight, weight gain rate (WGR) and specific growth rate (SGR) of T24 and T32 groups were significantly lower than those of T0 and T16 groups (P<0.05). The hepatopancreas somatic index (HSI) of T16, T24 and T32 groups was significantly lower than that of T0 group (P<0.05). 2) The contents of triglycerides (TG), total cholesterol (TC) and low-density lipoprotein cholesterol (LDL-C) in serum of T8, T16, T24 and T32 groups were significantly lower than those of T0 group (P<0.05), and the serum high-density lipoprotein cholesterol (HDL-C) content was significantly higher than that of T0 group (P<0.05). 3) The mRNA relative expression levels of genes related to lipogenesis such as fatty acid synthase (FAS), acetyl-CoA carboxylase 1 (ACC1) and fatty acid-binding protein (FABP) and transcription factors related to lipogenesis such as peroxisome proliferator activated receptor γ1 (PPARγ1) and sterol-regulatory element binding protein (SREBP) in liver of T24 and T32 groups were significantly higher than those of T0 group (P<0.05), and the mRNA relative expression levels of genes related to lipolysis such as hormone sensitive lipase (HSL) and lipoprotein lipase (LPL) and transcription factor related to lipolysis such as peroxisome proliferator activated receptor α (PPARα) in liver were significantly higher than those of T0 group (P<0.05). In conclusion, the enzymatic hydrolyzed soybean meal replacing fish meal can upregulate the expression of genes related to lipogenesis and lipolysis in liver of largemouth bass, thereby reducing liver lipid accumulation and influencing lipid metabolism, increasing the antioxidant capacity.

水产配合饲料通常以鱼粉作为优质蛋白质源,但是鱼粉供应有限且价格不断上涨,迫切需要开发合适的蛋白质来源以减少鱼粉的添加[1]。豆粕因其成本效益和营养价值备受青睐[2],但豆粕中含有抗营养因子(过敏原、胰蛋白酶抑制剂、胀气低聚糖等),可能产生有害的过敏反应,抑制蛋白质消化和吸收,并引起腹部胀气,因此限制了豆粕的使用[3]。通过单一或多种酶解作用将豆粕中的大分子蛋白质降解为活性小分子肽,是减少豆粕蛋白质过敏原性的有效方法之一[4]。同时,通过酶解处理可降低豆粕中抗营养因子水平,并且豆粕酶解物具有更强的抗氧化性,即更强的清除自由基的能力[5-6]。在中华绒螯蟹(Eriocheir sinensis)饲料中使用酶解豆粕(enzymatic hydrolyzed soybean meal,ESBM)替代鱼粉,可增强中华绒螯蟹的生长性能、抗氧化能力和免疫力[7]。用酶解豆粕替代鱼粉对星斑川鲽(Platichthys stellatus)幼鱼体内组织脂肪的蓄积有一定的改善作用[8]
2023年,我国大口黑鲈(Micropterus salmoides)养殖产量超过88万t,相比2022年增幅达10.66%[9]。商业大口黑鲈饲料的鱼粉含量一般在400 g/kg以上,降低鱼粉含量是降低饲料成本和对海洋渔业资源依赖的重中之重[10]。因此,本研究旨在评估饲料中使用酶解豆粕替代鱼粉对大口黑鲈生长、脂质代谢及肝脏抗氧化能力的影响,减少豆粕在水产饲料应用中的限制因素,探究在大口黑鲈配合饲料中酶解豆粕替代鱼粉的可能性和作用机理。

1 材料与方法

1.1 试验设计

试验动物经河北农业大学试验动物伦理委员会审核(批准编号:2024100)。选择300尾大小均匀、初始体重为(14.02±0.05) g的优鲈3号大口黑鲈幼鱼,随机分为5个组,每组3个重复,每个重复20尾。对照组(T0组)饲喂以鱼粉作为蛋白质源的基础饲料,4个试验组分别饲喂添加8%(T8组)、16%(T16组)、24%(T24组)、32%(T32组)酶解豆粕替代基础饲料中部分鱼粉的试验饲料,进行56 d的养殖试验。
试验饲料组成及营养水平见表1。所有原料粉碎后过80目筛,称量后粗混,加入油料进行充分混合,使用搅拌机混合并加入30%蒸馏水后继续混合10 min,确保混合物均匀一致。使用单螺杆膨化机制成直径为2 mm的颗粒饲料。自然风干后,存放在-20 ℃的冰箱中备用。采用乙醚抽提法(GB/T 6433—2006)测定饲料粗脂肪含量,凯氏定氮法(GB/T 6432—2018)测定饲料粗蛋白质含量。鱼粉和酶解豆粕的营养和氨基酸组成见表2
表1 试验饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis) %

项目
Items
组别Groups
T0 T8 T16 T24 T32
原料Ingredients
鱼粉Fish meal 52.33 46.99 41.66 36.33 31.00
酶解豆粕Enzymatic hydrolyzed soybean meal 8.00 16.00 24.00 32.00
血粉Blood meal 5.00 5.00 5.00 5.00 5.00
面粉Wheat flour 15.50 15.50 15.50 15.50 15.50
鱼油Fish oil 3.40 3.80 4.20 4.60 5.00
其他Others1) 9.50 9.50 9.50 9.50 9.50
预混料Premix2) 2.00 2.00 2.00 2.00 2.00
微晶纤维素Microcrystalline cellulose 12.27 9.21 6.14 3.07
合计Total 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels3)
粗脂肪Ether extract 13.23 13.39 13.54 13.47 13.18
粗蛋白质Crude protein 48.32 48.58 48.82 49.15 48.33

1)其他含 Others contained the following:豆油 soybean oil 40 g,维生素C磷酸酯 vitamin C phosphate ester 5 g,卵磷脂 lecithin 10 g,氯化胆碱 choline chloride 10 g,黏合剂 adhesive 20 g,磷酸二氢钙 Ca(H2PO4)2 10 g。
2)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 10 mg,VB1 6 mg,VB2 5 mg,VB6 7.5 mg,VB12 4 mg,烟酰胺 niacinamide 50 mg,抗坏血酸 ascorbic acid 500 mg,泛酸钙 calcium pantothenate 20 mg,生物素 biotin 2.5 mg,叶酸 folic acid 5 mg,VE 200 mg,VK3 10 mg,VD3 5 mg,肌醇 inositol 100 mg,玉米蛋白粉 corn gluten meal 75 mg,CuSO4·5H2O 10 mg,FeSO4·H2O 300 mg,ZnSO4·H2O 200 mg,MnSO4·H2O 100 mg,KIO3 80 mg,Na2SeO3 67 mg,CoCl2·6H2O 5 mg,NaCl 100 mg,沸石 zeolite 638 mg。
3)营养水平为实测值。Nutrient levels were measured values.

表2 鱼粉和酶解豆粕的营养和氨基酸组成

Table 2 Nutrient and amino acid composition of fish meal and enzymatic hydrolyzed soybean meal %

项目
Items
鱼粉
Fish meal
酶解豆粕
Enzymatic hydrolyzed soybean meal
粗蛋白质CP/% DM 75.67 50.43
粗脂肪EE/% DM 8.40 0.50
水分Moisture/% 3.00 5.63
必需氨基酸Essential amino acids/% DM
蛋氨酸Methionine 1.86 0.56
赖氨酸Lysine 4.97 2.83
苏氨酸Threonine 2.74 1.72
异亮氨酸Isoleucine 2.61 2.06
组氨酸Histidine 2.01 1.06
缬氨酸Valine 3.11 2.16
亮氨酸Leucine 4.94 3.27
精氨酸Arginine 3.93 3.14
苯丙氨酸Phenylalanine 2.61 2.24
色氨酸Tryptophan 0.77 0.55
合计Total 29.55 19.59
非必需氨基酸Non-essential amino acids/% DM
天冬氨酸Aspartic acid 5.81 4.92
丝氨酸Serine 2.49 2.18
谷氨酸Glutamic acid 8.40 7.92
甘氨酸Glycine 3.91 1.87
丙氨酸Alanine 4.08 1.96
胱氨酸Cysteine 0.60 0.43
脯氨酸Proline 2.54 2.30
酪氨酸Tyrosine 1.97 1.36
合计Total 29.80 22.94

1.2 饲养管理

大口黑鲈鱼苗稳定后投喂基础饲料暂养2周。试验开始前对幼鱼禁食24 h,随后,挑选大小一致的300尾幼鱼,随机平均分配到15个室内恒温循环水玻璃缸(60 cm×50 cm×50 cm)中。每天分别于08: 00和17: 00定量投喂,饲料重量占鱼体重的3.00%~5.00%。每2周称重后调整投喂量。24 h供氧,每天检测养殖过程中的溶氧量、pH和温度,每周测定氨氮含量。养殖时水中氨氮含量<0.5 mg/L,溶氧量>6.5 mg/L,pH 7.4±0.3,水温(25.50±1.50) ℃。

1.3 样品采集与处理

饲养试验结束后,对大口黑鲈禁食24 h。使用浓度为100 mg/L的MS-222进行麻醉,对每条鱼进行体长和体重的测量,记录初始体重和终末体重。从群体中随机挑选12条鱼进行解剖,获取血液和组织样本。血液样本于4 ℃环境中静置12 h,以91.80×g的离心力进行离心处理,分离出血清。取肝脏制作成苏木精-伊红(HE)染色切片,用于观察肝脏细胞的形态特征。取2 g肝脏组织,加入组织匀浆液后,在组织研磨仪中以60 Hz的频率匀浆2 min;匀浆后,将样品在4 ℃下以51.65×g的离心力离心10 min,收集上清液,并将其保存在-80 ℃的冰箱中,以备进行生化指标的测定。从部分组织中提取总RNA,使用Trizol试剂进行操作;提取出的RNA随后使用HifairⅡQ-RT SuperMix进行逆转录,生成cDNA,并将其保存在-80 ℃的冰箱中,以便进行肝脏基因表达的检测分析。

1.4 测定指标及方法

生长性能评估的相关计算方法如下:

增重率(WGR,%)=100×(终末体重-初始体重)/初始体重;

特定生长率(SGR,%/d)=100×(ln终末体重-ln初始体重)/养殖天数;

饲料系数(FCR)=饲料摄食量/(终末体重-初始体重);

脏体比(VSI,%)=100×内脏重/终末体重;

肝体比(HSI,%)=100×肝脏重/终末体重;

肥满度(CF,g/cm3)=体重/体长3;

存活率(SR,%)=100×(终末鱼数量/初始鱼数量)。

将全鱼、肌肉和肝脏样品进行冷冻烘干处理后粉碎,参照AOAC(2016)[11]的标准方法测定水分、粗蛋白质、粗脂肪含量。
血清甘油三酯(TG)、总胆固醇(TC)、高密度脂蛋白胆固醇(HDL-C)、低密度脂蛋白胆固醇(LDL-C)、丙二醛(MDA)含量和过氧化氢酶(CAT)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性及总抗氧化能力(T-AOC)均使用南京建成生物工程研究所生产的试剂盒测定。
目的基因包括脂肪酸合成酶(fatty acid synthase,FAS)、乙酰辅酶A羧化酶1(acetyl-CoA carboxylase 1,ACC1)、脂肪酸结合蛋白(fatty acid-binding protein,FABP)、过氧化物酶体增生物激活受体γ1(peroxisome proliferator activated receptor γ1,PPARγ1)、固醇调节元件结合蛋白(sterol-regulatory element binding protein,SREBP)、脂蛋白脂酶(lipoprotein lipase,LPL)、激素敏感脂肪酶(hormone sensitive lipase,HSL)、脂肪甘油三酯脂肪酶(adipose triglyceride lipase,ATGL)、肉碱棕榈酰转移酶1ab(carnitine palmitoyl transferase 1ab,CPT1ab)、过氧化物酶体增殖激活受体α(peroxisome proliferator activated receptor α,PPARα)。根据GenBank中目的基因的cDNA序列,使用在线Primer 3 Plus软件设计基因特异性引物,实时荧光定量PCR(RT-qPCR)的引物序列见表3。在荧光定量PCR仪上测定基因转录水平,以β-肌动蛋白(β-actin)、延伸因子-1α(extension factor-1α、EF-1α)为内参基因,使用2-ΔΔCt法计算目的基因的mRNA相对表达水平。
表3 RT-qPCR的引物序列

Table 3 Primer sequences for RT-qPCR

基因
Genes
引物序列
Primer sequences (5'—3')
GenBank登录号
GenBank accession No.
β-肌动蛋白
β-actin
F:GTGCAAAGCTGGTTTTTCCG
R:ATCCCCTTTTGCTCTGTGC
XM_038712920.1
延伸因子-1α
EF-1α
F:AATTTGCTTGGGTGCTGGAC
R:TGGCCAGGAGCATCAATGATAG
XM_038730435.1
脂肪酸合成酶
FAS
F:ACAGCCAATGGGAAACTTGC
R:ACTTTTGCTGCAGTCTGTGG
XM_038735140.1
乙酰辅酶A羧化酶1
ACC1
F:CAACCGCATGCGCAATTTTG
R:ATGGCTCGCACAAAGAAACG
XM_038709726.1
脂肪酸结合蛋白
FABP
F:TCATCGTGAAGGCAACAAGC
R:TGCGTTTGCTTGTCCTCTTG
XM_038704629.1
过氧化物酶体增生物激活受体γ1
PPARγ1
F:TTCACAAGAAGTCCCGCAAC
R:ATGGCGTTGTGTGACATTCC
XM_038695875.1
固醇调节元件结合蛋白
SREBP
F:TCAACAAGTCTGCAGTGCTG
R:TGCTTGAGTTTCTGGTTGGC
XM_038699585.1
脂蛋白脂酶
LPL
F:ACAGGGATGTTCGAAAGCTG
R:TCCACAACGATCACATTGGC
XM_038715978.1
激素敏感脂肪酶
HSL
F:ATGACAACAGCCATGGCAAC
R:AACTGAAAGCCAAGGCATCG
XM_038710962.1
脂肪甘油三酯脂肪酶
ATGL
F:TGGAACAACATGTGGAACCG
R:TGCTTTGACGCTGATCTTGC
XM_038701257.1
肉碱棕榈酰转移酶1ab
CPT1ab
F:TCCATGACGCGTTTATTCCG
R:ATCATGGCACGAACAAAGGC
XM_038705334.1
过氧化物酶体增殖激活受体α
PPARα
F:TGTTTATGGTGTGGCAGCAG
R:TCAGCACAAACTCGACACTC
XM_038705494.1

1.5 数据统计分析

数据通过SPSS 19.0软件进行单因素方差分析以及方差齐性检验,采用Duncan氏多重比较法进行进一步分析。结果以平均值±标准差(mean±SD)的形式呈现,P<0.05表示具有显著差异。

2 结果

2.1 酶解豆粕替代鱼粉对大口黑鲈幼鱼生长性能的影响

表4可知,T8组的终末体重、WGR显著低于T0组(P<0.05);T16组的终末体重、WGR、SGR与T0组无显著差异(P>0.05);T24组和T32组的终末体重、WGR、SGR显著低于T0组和T16组(P<0.05)。T24组的FCR显著高于T0组和T16组(P<0.05),T16组的FCR与T0组无显著差异(P>0.05)。
表4 酶解豆粕替代鱼粉对大口黑鲈幼鱼生长性能的影响

Table 4 Effects of enzymatic hydrolyzed soybean meal replacing fish meal on growth performance of juvenile largemouth bass

项目
Items
组别Groups P
P-value
T0 T8 T16 T24 T32
初始体重IBW/g 14.02±0.06 14.08±0.02 14.01±0.01 14.00±0.05 13.97±0.03 0.079
终末体重FBW/g 65.12±0.15a 61.95±0.81b 66.04±0.53a 56.68±3.74c 59.20±0.23bc <0.001
增重率WGR/% 372.25±16.34a 340.03±5.60b 371.37±4.10a 305.10±28.29c 323.63±2.05bc <0.001
特定生长率SGR/(%/d) 2.90±0.01ab 2.80±0.02bc 2.93±0.02a 2.64±0.13d 2.72±0.01cd <0.001
存活率SR/% 100±0 100±0 100±0 100±0 100±0
饲料系数FCR 1.00±0.04b 1.08±0.02ab 1.00±0.01b 1.13±0.10a 1.09±0.01ab 0.022

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 酶解豆粕替代鱼粉对大口黑鲈幼鱼形体指标的影响

表5可知,各组之间CF、VSI均无显著差异(P>0.05)。T16组、T24组和T32组的HSI显著低于T0组(P<0.05),当酶解豆粕替代鱼粉比例超过16%后,HSI呈逐渐下降趋势。
表5 酶解豆粕替代鱼粉对大口黑鲈幼鱼形体指标的影响

Table 5 Effects of enzymatic hydrolyzed soybean meal replacing fish meal on morphological indexes of juvenile largemouth bass

项目
Items
组别Groups P
P-value
T0 T8 T16 T24 T32
肥满度CF/(g/cm3) 6.83±0.46 6.65±0.18 6.71±0.14 6.96±0.71 6.67±0.04 0.340
脏体比VSI/% 8.09±0.86 8.26±0.47 8.05±0.45 7.40±1.30 7.64±0.37 0.458
肝体比HSI/% 2.29±0.08a 2.06±0.44ab 1.68±0.14bc 1.27±0.26cd 1.17±0.11d 0.001

2.3 酶解豆粕替代鱼粉对大口黑鲈幼鱼常规化学组成的影响

表6可知,各组之间全鱼、肌肉和肝脏粗蛋白质含量均无显著差异(P>0.05)。T8组和T16组的全鱼粗脂肪含量显著高于其他各组(P<0.05)。T16组的肌肉粗脂肪含量显著低于其他各组(P<0.05),T24组的肌肉粗脂肪含量显著高于其他各组(P<0.05)。T24和T32组的肝脏粗脂肪含量显著低于其他各组(P<0.05),以T16组的肝脏粗脂肪含量最高。
表6 酶解豆粕替代鱼粉对大口黑鲈幼鱼常规化学组成的影响

Table 6 Effects of enzymatic hydrolyzed soybean meal replacing fish meal on conventional chemical composition of juvenile largemouth bass %

项目
Items
组别Groups P
P-value
T0 T8 T16 T24 T32
全鱼Whole fish
水分Moisture 68.95±0.53 68.67±0.70 69.29±0.40 69.76±0.15 69.56±0.51 0.113
粗蛋白质Crude protein 19.15±0.41 19.25±0.18 19.24±0.42 19.24±0.27 19.21±0.37 0.859
粗脂肪Ether extract 8.03±0.40b 9.28±0.16a 9.19±0.06a 8.00±0.20b 7.93±0.65b <0.001
肌肉Muscle
粗蛋白质Crude protein 28.52±0.56 27.53±0.51 26.99±0.35 27.07±0.40 27.22±1.36 0.153
粗脂肪Ether extract 1.80±0.10b 1.95±0.05b 1.41±0.09c 2.33±0.12a 1.93±0.19b <0.001
肝脏Liver
粗蛋白质Crude protein 13.27±2.75 14.79±2.33 14.29±0.09 14.90±2.50 15.05±1.90 0.843
粗脂肪Ether extract 1.92±0.12a 1.97±0.09a 2.15±0.14a 1.35±0.17b 1.30±0.07b <0.001

2.4 酶解豆粕替代鱼粉对大口黑鲈幼鱼肝脏形态的影响

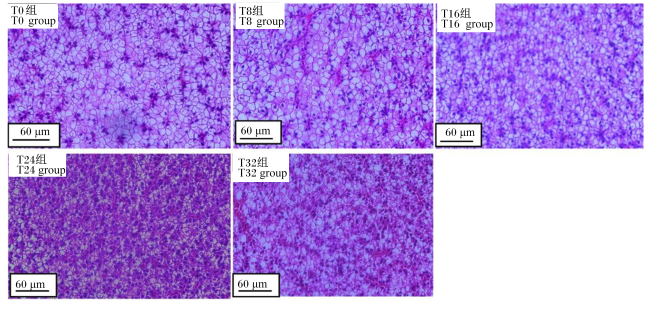
图1可知,T0组、T8组和T16组的肝脏空泡较多,而T24组和T32组的肝脏细胞空泡面积较少,空泡变化趋势与肝脏粗脂肪含量变化趋势相似。
图1 酶解豆粕替代鱼粉对大口黑鲈幼鱼肝脏形态的影响

Fig.1 Effects of enzymatic hydrolyzed soybean meal replacing fish meal on liver morphology of juvenile largemouth bass

2.5 酶解豆粕替代鱼粉对大口黑鲈幼鱼血清生化指标的影响

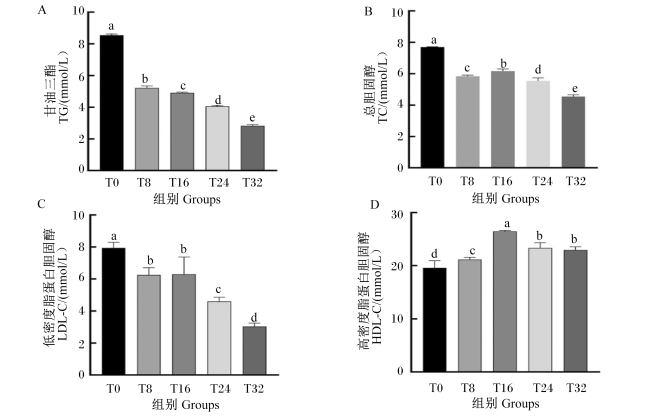
图2可知,T8组、T16组、T24组和T32组的血清TG、TC和LDL-C含量显著低于T0组(P<0.05),均以T32组最低;T8组、T16组、T24组和T32组的血清HDL-C含量显著高于T0组(P<0.05),以T16组最低。
图2 酶解豆粕替代鱼粉对大口黑鲈幼鱼血清生化指标的影响

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of enzymatic hydrolyzed soybean meal replacing fish meal on serum biochemical indexes of juvenile largemouth bass

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.6 酶解豆粕替代鱼粉对大口黑鲈幼鱼肝脏脂质代谢相关基因表达的影响

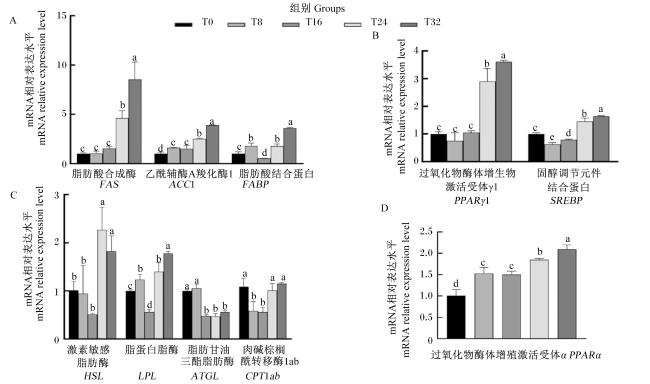
图3可知,对于脂质合成相关基因,T24组和T32组的肝脏FAS的mRNA相对表达水平显著高于T0组(P<0.05);T8组、T16组、T24组和T32组的肝脏ACC1的mRNA相对表达水平显著高于T0组(P<0.05);T8组、T24组和T32组的肝脏FABP的mRNA相对表达水平显著高于T0组(P<0.05),T16组的肝脏FABP的mRNA相对表达水平显著低于T0组(P<0.05)。对于脂质合成相关转录因子,T24组和T32组的肝脏PPARγ1和SREBP的mRNA相对表达水平显著高于T0组(P<0.05),T8组和T16组的肝脏SREBP的mRNA相对表达水平显著低于T0组(P<0.05)。对于脂质分解相关基因,T24组和T32组的肝脏HSL的mRNA相对表达水平显著高于T0组(P<0.05);T8组、T24组和T32组的肝脏LPL的mRNA相对表达水平显著高于T0组(P<0.05),T16组的肝脏LPL的mRNA相对表达水平显著低于T0组(P<0.05);T16组、T24组和T32组的肝脏ATGL的mRNA相对表达水平显著低于T0组(P<0.05);T8组和T16组的肝脏CPT1ab的mRNA相对表达水平显著低于T0组(P<0.05)。对于脂质分解相关转录因子,T8组、T16组、T24组和T32组的肝脏PPARα的mRNA相对表达水平显著高于T0组(P<0.05)。
图3 酶解豆粕替代鱼粉对大口黑鲈幼鱼肝脏脂质代谢相关基因表达的影响

A:脂质合成相关基因;B:脂质合成相关转录因子;C:脂质分解相关基因;D:脂质分解相关转录因子。

Fig.3 Effects of enzymatic hydrolyzed soybean meal replacing fish meal on expression of genes related to lipid metabolism in liver of juvenile largemouth bass

A: genes related to lipogenesis; B: transcription factors related to lipogenesis; C: genes related to lipolysis; D: transcription factor related to lipolysis.

2.7 解豆粕替代鱼粉对大口黑鲈幼鱼肝脏抗氧化指标的影响

表7可知,T8组、T16组、T24组和T32组的肝脏CAT活性显著高于T0组(P<0.05);T8组、T16组和T32组的肝脏SOD活性显著高于T0组(P<0.05),T24组的肝脏SOD活性显著低于T0组(P<0.05);T8组和T16组的肝脏T-AOC和GSH-Px活性显著高于T0组(P<0.05);T8组、T16组、T24组和T32组的肝脏MDA含量显著低于T0组(P<0.05),且T8组和T16组的肝脏MDA含量显著低于T24组和T32组(P<0.05)。
表7 解豆粕替代鱼粉对大口黑鲈幼鱼肝脏抗氧化指标的影响

Table 7 Effects of enzymatic hydrolyzed soybean meal replacing fish meal on liver antioxidant indexes of juvenile largemouth bass

项目
Items
组别Groups P
P-value
T0 T8 T16 T24 T32
过氧化氢酶
CAT/(U/mg prot)
139.80±17.02d 229.19±19.04b 178.74±15.67c 247.04±11.00b 272.39±6.77a <0.001
超氧化物歧化酶
SOD/(U/mg prot)
29.47±0.25d 38.00±0.18a 33.05±0.15b 26.93±0.29e 31.63±0.34c <0.001
总抗氧化能力
T-AOC/(U/mg prot)
0.47±0.01cd 1.19±0.15a 0.93±0.14b 0.64±0.01c 0.42±0.06d <0.001
谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
101.79±27.07b 741.44±138.34a 882.26±211.59a 294.65±13.41b 155.44±6.12b <0.001
丙二醛
MDA/(nmol/mg prot)
0.58±0.09a 0.21±0.01c 0.21±0.05c 0.38±0.02b 0.44±0.03b <0.001

3 讨论

3.1 酶解豆粕替代鱼粉对大口黑鲈幼鱼生长性能的影响

利用植物性蛋白质源替代鱼粉会对水产动物生长性能产生负面影响[12-13]。本研究中,大口黑鲈的FBW、WGR随着酶解豆粕替代鱼粉比例的增加呈现出先降低后升高再降低的趋势,其中T16组大口黑鲈生长性能最好。并且,在亚洲鲈鱼(Lateolabrax japonicas)[14]和凡纳滨对虾(Litopenaeus vannamei)[15]中也得到相似结果。Zhou等[16]在黑鲷(Acanthopagrus schlegelii)的饲料中用发酵豆粕部分替代鱼粉,发现超过30%发酵豆粕替代鱼粉对体重增加和生长速率产生了不利影响。本研究中,T8组的终末体重、WGR显著低于T0组,主要可能是氨基酸平衡问题,由于酶解豆粕中的氨基酸组成与鱼粉存在差异,特别是大口黑鲈有特定需求的蛋氨酸和赖氨酸,8%的酶解豆粕无法满足对其氨基酸的充足供应,导致氨基酸平衡失调,从而影响其生长。然而,T16组的终末体重、WGR、SGR与T0组无显著差异,当16%酶解豆粕代替鱼粉时,酶解豆粕中的小肽可以直接被吸收利用,小肽的吸收不仅提高了氨基酸的总量,还可以促进特定氨基酸的转运和利用,增强其转运效率[17],使得大口黑鲈能够更有效地利用这些氨基酸进行蛋白质合成和生长,从而弥补上了鱼粉减少导致的氨基酸失衡。从T24组开始,大口黑鲈的终末体重、WGR出现显著下降的趋势。在以往使用加工豆粕替代鱼粉对水产的动物研究中也有观察到相似的结果[18],主要是酶解豆粕与鱼粉之间必需氨基酸的组成差异较大,随着酶解豆粕替代鱼粉的比例不断上升,大口黑鲈生长发育所需要的蛋氨酸水平不断下降,影响到了大口黑鲈的生长发育。

3.2 酶解豆粕替代鱼粉对大口黑鲈幼鱼脂质代谢的影响

脂肪组织是体内胆固醇最大的储存池,血清TC含量可以反映脂质吸收和代谢的状态[19]。Wang等[20]使用豆粕分离物替代鱼粉饲喂斑点鲈鱼(Lateolabrax maculatus),发现可降低血清TG和TC含量,也降低了肝脂滴面积,与本试验结果一致。本试验中,随着酶解豆粕替代鱼粉比例的增加,大口黑鲈血清TG和TC含量呈下降趋势,这表明酶解豆粕替代鱼粉有助于降低血液中的脂质含量。LDL-C和HDL-C参与胆固醇的转运,前者从肝脏向组织转运肝脏合成的内源性胆固醇,其在血液中含量过高可能会导致胆固醇在动脉壁上沉积形成斑块[21]。后者通过胆固醇反转运输把组织和动脉血管中的胆固醇运送回肝脏[22]。本试验中,血清LDL-C含量随着酶解豆粕替代比例的增加而下降,以T32组最低,血清LDL-C含量降低可能是脂质运输效率降低;与之相反,试验组血清HDL-C含量显著高于T0组,以T16组最高,其含量的增加可能有助于促进肝脏脂质的逆向运输。本试验中,当酶解豆粕替代鱼粉的比例为24%、32%时,肝脏细胞空泡比例有所减少,表明肝脏中脂肪并未有累积。Zheng等[23]使用自产梭菌粉替代鱼粉对大菱鲆(Scophthalmus maximus L.)进行研究,发现幼年大菱鲆肝脏中脂肪生成相关基因在替代组中趋于增加,与本研究结果相似。
脂质代谢相关基因表达分析表明,参与脂质合成的主要基因FASACC1和FABP的mRNA相对表达水平在T24组和T32组显著高于T0组,且T32组显著高于T24组。核激素受体超家族成员PPARγ1参与特殊脂肪细胞的合成、分化及调控。SREBP是调控脂合成的重要转录调控因子。本研究中,肝脏PPARγ1和SREBP的mRNA相对表达水平与脂质合成相关基因的mRNA相对表达水平趋势相同,表明当酶解豆粕替代鱼粉比例高于24%后,肝脏脂质合成和转录的相关基因上调,促进脂质合成增加。同时,脂肪分解相关基因HSLLPLCPT1ab的mRNA相对表达水平趋势一致。T16组的肝脏LPLCPT1ab的mRNA相对表达水平显著低于T0组;然而,T24组和T32组的肝脏LPLHSLCPT1ab的mRNA相对表达水平均显著高于T0组;脂质分解相关转录因子PPARα的mRNA相对表达水平随着酶解豆粕替代比例的增加呈现升高的趋势。上述脂质分解相关基因的变化趋势表明,在酶解豆粕替代鱼粉比例低于16%时,基因表达下调;在酶解豆粕替代鱼粉比例超过24%以后,基因表达上调。
综上所述,酶解豆粕替代鱼粉通过调控FASACC1等脂质合成相关基因以及LPLHSLCPT1ab等脂质分解相关基因的表达,同时影响PPARγ1、PPARαSREBP等转录因子的活性以及脂质的转运,进而调节大口黑鲈的脂质代谢。酶解豆粕替代鱼粉比例低于16%会导致脂质分解相关基因表达下调,同时血清HDL-C含量上升,使得其他组织运往肝脏的脂肪增多,最终脂肪在肝脏中累积。当酶解豆粕替代鱼粉比例超过24%以后,脂质分解相关基因表达上调,从而使肝脏中粗脂肪含量下降,表现为肝脏切片空泡面积减少,HSI下降。

3.3 酶解豆粕替代鱼粉对大口黑鲈幼鱼抗氧化能力的影响

生物体中存在一系列的抗氧化酶系统,主要包括SOD、GSH-Px、CAT等,是保护生物体免受氧化伤害的第一道防线。GSH-Px是酶促抗氧化防御系统的基本成分,用于清除体内过多的ROS,催化谷胱甘肽(GSH)与过氧化氢(H2O2)转化为水(H2O)[24]。SOD活性的高低间接反映机体清除自由基的能力,而MDA含量的高低则间接反映机体细胞受氧自由基攻击的程度[25]。Zhuang等[26]在大菱鲆(Scophthalmus maximus L.)高植物蛋白质饲料中补充酶解鸡副产物(EHC),发现EHC对大菱鲆幼鱼抗氧化能力和非特异性免疫力有积极影响。本研究使用酶解豆粕替代鱼粉后,提升了大口黑鲈肝脏的抗氧化能力。T0组的肝脏CAT活性显著低于其他各组,表明在没有酶解豆粕替代鱼粉的情况下,肝脏的CAT活性较低。酶解豆粕替代鱼粉的比例从16%增加到32%,CAT活性呈上升趋势,以T32组最高。这说明酶解豆粕替代鱼粉能有效提高肝脏CAT活性,从而增强肝脏的抗氧化能力。除T24组以外,T0组的肝脏SOD活性也显著低于其他各组,其中,T8组的肝脏SOD活性最高,说明适量的酶解豆粕替代鱼粉有利于提高肝脏SOD活性。T0组的肝脏T-AOC显著低于T8组和T16组,这表明酶解豆粕替代鱼粉能够提高肝脏的抗氧化能力;但是随着酶解豆粕替代鱼粉比例的增加,肝脏T-AOC呈下降趋势,说明过高的酶解豆粕替代鱼粉比例会导致肝脏抗氧化能力下降。肝脏GSH-Px活性与T-AOC表现为相同的趋势。T0组的肝脏MDA含量显著高于其他各组,说明在没有酶解豆粕替代鱼粉的情况下,肝脏受到的氧化应激程度高。酶解豆粕替代鱼粉能够提高肝脏抗氧化酶的活性,但在高替代比例下,仍然可能无法完全抵消氧化应激水平的增加。Wang等[27]使用豆粕替代鱼粉饲喂大黄鱼(Larimichthys crocea)幼鱼,发现高比例的豆粕替代鱼粉会降低其抗氧化能力。Zhang等[28]使用发酵豆粕投喂银鲑(Oncorhynchus kisutch)幼鱼,发现可以显著提高银鲑幼鱼的抗氧化能力及其相关基因表达。总体来说,酶解豆粕替代鱼粉通过调控肝脏抗氧化酶活性、减轻氧化应激反应机制,提高了大口黑鲈的抗氧化能力,主要表现为提高CAT、SOD和GSH-Px活性,从而降低MDA的生成,增强肝脏的抗氧化能力。

4 结论

饲料中添加16%酶解豆粕替代鱼粉不会降低大口黑鲈的生长性能,但添加24%和32%酶解豆粕替代鱼粉会对大口黑鲈的生长性能产生不利影响;酶解豆粕替代鱼粉可以上调大口黑鲈肝脏脂质合成和分解相关基因的表达,从而减少肝脏脂质的累积,对脂质代谢产生影响,提高肝脏的抗氧化能力。
[1]
XU X Y, LI X Q, XU Z, et al. Replacing fishmeal with cottonseed protein concentrate in practical diet of largemouth bass (Micropterus salmoides):growth,flesh quality and metabolomics[J]. Aquaculture, 2024,579:740164.

[2]
HAMEED A, MAJEED W, NAVEED M, et al. Success of aquaculture industry with new insights of using insects as feed:a review[J]. Fishes, 2022, 7(6):395.

[3]
WIEDERSTEIN M, BAUMGARTNER S, LAUTER K. Soybean (Glycine max) allergens-a review on an outstanding plant food with allergenic potential[J]. ACS Food Science & Technology, 2023, 3(3):363-378.

[4]
WENG Z B, SUN L, WANG F, et al. Assessment the flavor of soybean meal hydrolyzed with alcalase enzyme under different hydrolysis conditions by E-nose,E-tongue and HS-SPME-GC-MS[J]. Food Chemistry:X, 2021,12:100141.

[5]
陈宝江. 酶解豆粕营养价值评定[J]. 畜牧产业, 2023(9):26-28.

CHEN B J. Evaluation of nutritional value of enzymolysis soybean meal[J]. Animal Agriculture, 2023(9):26-28.(in Chinese)

[6]
LIU F F, LI Y Q, WANG C Y, et al. Physicochemical,functional and antioxidant properties of mung bean protein enzymatic hydrolysates[J]. Food Chemistry, 2022,393:133397.

[7]
HUANG Q C, MIAO Y X, LIU J D, et al. Partial replacement of fish meal by enzymatically hydrolyzed soybean does not adversely impact the growth performance,antioxidant capacity,immunity and intestinal health of the juvenile Eriocheir sinensis[J]. Aquaculture Reports, 2024,36:102072.

[8]
宋志东, 王际英, 李培玉, 等. 酶解大豆蛋白替代鱼粉对星斑川鲽幼鱼生长、血液生化和体组成的影响[J]. 水生生物学报, 2016, 40(1):165-172.

SONG Z D, WANG J Y, LI P Y, et al. Effects of replacement fishmeal with soy protein hydrolysates on growth, blood biochemistry,body composition of juvenile starry flounder Platichthys stellatus Pallas[J]. Acta Hydrobiologica Sinica, 2016, 40(1):165-172.(in Chinese)

[9]
农业农村部渔业渔政管理局, 全国水产技术推广总站, 中国水产学会. 2024中国渔业统计年鉴[M]. 北京: 中国农业出版社, 2024:24-25.

Fishery and Fishery Administration Bureau of the Ministry of Agriculture and Rural Affairs,National Aquaculture Technology Promotion Station Chinese Fisheries Society. 2024China fishery statistical yearbook[M]. Beijing: China Agriculture Press, 2024:24-25.

[10]
CUI Z H, ZHANG J Y, REN X, et al. Replacing dietary fish meal improves ecosystem services of largemouth bass (Micropterus salmoides) farming[J]. Aquaculture, 2022,550:737830.

[11]
AOAC. Official methods of analysis of the association of official analytical chemists[S].20th ed. Washington D.C.: Association of Official Analytical Chemists, 2016.

[12]
MACUSI E D, CAYACAY M A, BORAZON E Q, et al. Protein fishmeal replacement in aquaculture:a systematic review and implications on growth and adoption viability[J]. Sustainability, 2023, 15(16):12500.

[13]
LIU X R, HAN B, XU J, et al. Replacement of fishmeal with soybean meal affects the growth performance,digestive enzymes,intestinal microbiota and immunity of Carassius auratus gibelio♀×Cyprinus carpio♂[J]. Aquaculture Reports, 2020,18:100472.

[14]
YANTI M, DEWIYANTI I, NURFADHILAH N, et al. Replacement of fishmeal with soybean meal for the diet of seabass,Lates calcarifer[J]. IOP Conference Series:Earth and Environmental Science, 2019, 348(1):012105.

[15]
姜德田, 汪毅, 黄旭雄, 等. 低鱼粉饲料中添加酶解豆粕对凡纳滨对虾生长性能和抗胁迫机能的影响[J]. 水产学报, 2020, 44(6):999-1012.

JIANG D T, WANG Y, HUANG X X, et al. Effect of proteolytic soybean meal in low-fish-meal-diet on growth performance and stress resistance of Litopenaeus vannamei[J]. Journal of Fisheries of China, 2020, 44(6):999-1012.(in Chinese)

[16]
ZHOU F, SONG W, SHAO Q, et al. Partial replacement of fish meal by fermented soybean meal in diets for black sea bream,Acanthopagrus schlegelii,juveniles[J]. Journal of the World Aquaculture Society, 2011, 42(2):184-197.

[17]
XU C Z, LIU Y T, LI K, et al. Absorption of food-derived peptides: mechanisms, influencing factors, and enhancement strategies[J]. Food Research International, 2024, 197(Pt.1):115190.

[18]
矣林圆, 桂聪, 刘婧文, 等. 豆粕替代鱼粉添加丁酸梭菌对大口黑鲈生长性能、体组成和抗氧化能力的影响[J]. 华中农业大学学报, 2024, 43(1):176-184.

YI L Y, GUI C, LIU J W, et al. Effects of adding Clostridium butyricum to soybean meal replacing fish meal on growth performance,body composition and antioxidant capacity of largemouth bass (Micropterus salmoides)[J]. Journal of Huazhong Agricultural University, 2024, 43(1):176-184.(in Chinese)

[19]
KADER M A, BULBUL M, KOSHIO S, et al. Effect of complete replacement of fishmeal by dehulled soybean meal with crude attractants supplementation in diets for red sea bream,Pagrus major[J]. Aquaculture, 2012,350/353:109-116.

[20]
WANG Z, YANG L, ZHANG C, et al. Substituting dietary fishmeal with soybean meal isolate influences hepatic lipid metabolism and gut microbiota in spotted seabass (Lateolabrax maculatus)[J]. The Israeli Journal of Aquaculture-Bamidgeh, 2021,73:1542104.

[21]
CHUNG S. Update on low-density lipoprotein cholesterol quantification[J]. Current Opinion in Lipidology, 2019, 30(4):273-283.

DOI PMID

[22]
DI P, PENG B B, LI J, et al. Effects of three feed attractants on the growth,biochemical indicators,lipid metabolism and appetite of Chinese perch (Siniperca chuatsi)[J]. Aquaculture Reports, 2022,23:101075.

[23]
ZHENG J C, ZHANG W C, DAN Z J, et al. Replacement of dietary fish meal with Clostridium autoethanogenum meal on growth performance,intestinal amino acids transporters,protein metabolism and hepatic lipid metabolism of juvenile turbot (Scophthalmus maximus L.)[J]. Frontiers in Physiology, 2022,13:981750.

[24]
YIN P, XIE S W, ZHUANG Z X, et al. Chlorogenic acid improves health in juvenile largemouth bass (Micropterus salmoides) fed high-fat diets:involvement of lipid metabolism,antioxidant ability,inflammatory response,and intestinal integrity[J]. Aquaculture, 2021,545:737169.

[25]
成艳波, 张月星, 董智勇, 等. 小麦蛋白替代鱼粉及大豆蛋白对日本黄姑鱼(Nibea japonica)和黑鲷(Sparus macrocephalus)血清生化指标及肝脏抗氧化指标的影响[J]. 渔业科学进展, 2017, 38(3):106-114.

CHENG Y B, ZHANG Y X, DONG Z Y, et al. Effects of dietary replacement of fish meal and soy protein by wheat gluten on plasma biochemical indices and liver anti-oxidative indices of Nibea japonica and Sparus macrocephalus[J]. Progress in Fishery Sciences, 2017, 38(3):106-114.(in Chinese)

[26]
ZHUANG Y, ZHANG W, ZHENG J, et al. Effects of enzymatic hydrolysis chicken by-product in high plant-based protein diet on growth performance,digestive capacity,antioxidant capacity and non-specific immunity of juvenile turbot (Scophthalmus maximus L.)[J]. Aquaculture Nutrition, 2021,27:1578-1589.

[27]
WANG Y T, WANG Z, ZHANG Z, et al. Effects of dietary fishmeal replacement with soybean meal on growth performance,digestion,hepatic metabolism,antioxidant capacity,and innate immunity of juvenile large yellow croaker (Larimichthys crocea)[J]. Aquaculture Research, 2023, 2023(1):8842781.

[28]
ZHANG Q, LI F, GUO M, et al. Growth performance,antioxidant and immunity capacity were significantly affected by feeding fermented soybean meal in juvenile coho salmon (Oncorhynchus kisutch)[J]. Animals, 2023, 13(5):945.

文章导航

/